Dit protocol beschrijft het Cell-Free Protein Synthesis (CFPS)-systeem dat wordt gebruikt bij het bouwen van synthetische cellen. Het schetst de belangrijkste fasen met representatieve resultaten in verschillende microcompartimenten. Het protocol heeft tot doel best practices vast te stellen voor diverse laboratoria in de synthetische celgemeenschap, waardoor de vooruitgang in de ontwikkeling van synthetische cellen wordt bevorderd.
Methodenartikel
Celvrij eiwitsynthesesysteem voor het bouwen van synthetische cellen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het Cell-Free Protein Synthesis (CFPS)-systeem wordt op grote schaal gebruikt om de bottom-up assemblage van synthetische cellen te vergemakkelijken. Het dient als gastheer voor de kernmachinerie van het Centrale Dogma en vormt een optimaal chassis voor de integratie en assemblage van diverse kunstmatige cellulaire nabootsingssystemen. Ondanks het veelvuldige gebruik bij de fabricage van synthetische cellen, blijft het opzetten van een op maat gemaakt en robuust CFPS-systeem voor een specifieke toepassing een niet-triviale uitdaging. In dit methodedocument presenteren we een uitgebreid protocol voor het CFPS-systeem, dat routinematig wordt gebruikt bij het bouwen van synthetische cellen. Dit protocol omvat belangrijke fasen in de voorbereiding van het CFPS-systeem, waaronder het celextract, de sjabloonvoorbereiding en de optimalisatie van routinematige expressie met behulp van een fluorescerend reportereiwit. Bovendien laten we representatieve resultaten zien door het CFPS-systeem in te kapselen in verschillende microcompartimenten, zoals monolaagdruppels, blaasjes met dubbele emulsie en kamers bovenop ondersteunde lipidedubbellagen. Ten slotte verduidelijken we de kritieke stappen en voorwaarden die nodig zijn voor de succesvolle assemblage van deze CFPS-systemen in verschillende omgevingen. We verwachten dat onze aanpak het opzetten van goede werkpraktijken tussen verschillende laboratoria binnen de steeds groter wordende synthetische celgemeenschap zal vergemakkelijken, waardoor de vooruitgang op het gebied van synthetische celontwikkeling wordt versneld.
Inleiding
De synthese van synthetische of kunstmatige cellen is naar voren gekomen als een zeer prominent gebied van interdisciplinair onderzoek, dat aanzienlijke belangstelling trekt van wetenschappers in de domeinen van synthetische biologie, scheikunde en biofysica. Deze wetenschappers zijn verenigd door het gemeenschappelijke doel om een minimale levende cel te bouwen 1,2,3. De snelle groei van dit vakgebied is in lijn met aanzienlijke vooruitgang in kritieke technologieën, zoals recombinant-DNA-manipulatie4, biomimetische materialen5 en microfabricagetechnieken voor compartimentering6, waaronder de Cell-Free Protein Synthesis (CFPS) -methode7. CFPS-systemen omvatten de essentiële cellulaire machinerie voor transcriptie en vertaling en bieden het fundamentele kader voor de ontwikkeling en integratie van multifunctionele kunstmatige cellen.
Hoewel CFPS-technieken vaak worden gebruikt bij de assemblage van synthetische cellen, blijft het ontwikkelen van een robuust en op maat gemaakt CFPS-systeem voor de assemblage van verschillende synthetische celsystemen een complexe uitdaging. Momenteel zijn er tal van CFPS-systemen beschikbaar, afgeleid van zowel prokaryoten als eukaryoten modelorganismen8, elk gespecialiseerd voor specifieke toepassingen in synthetische celsynthese. Naast hun centrale rol bij transcriptie en vertaling, variëren CFPS-systemen in hun belangrijkste componenten en bijbehorende voorbereidingsprocedures. Deze variaties, waaronder verschillen in celextracten, RNA-polymerasen, sjabloonbereidingsmethoden en buffersamenstellingen, zijn grotendeels te wijten aan de verschillende ontwikkelingstrajecten die worden gevolgd door onderzoeksgroepen die hun systemen intensief hebben geoptimaliseerd voor maximale eiwitopbrengst.
Van de verschillende componenten van het CFPS-systeem is het celextract een kritische enzymatische pool voor transcriptie en translatie, en dus een belangrijke bepalende factor voorde prestaties van CFPS. Op Escherichia coli (E. coli) gebaseerde CFPS is het meest gebruikte systeem vanwege zijn status als het best begrepen prokaryote organisme. Bovendien heeft de onderzoeksgroep van Ueda een volledig gereconstitueerd CFPS-systeem ontwikkeld dat bestaat uit individueel gezuiverde eiwitten en ribosomen, bekend als PURE10, dat bijzonder geschikt is voor toepassingen die een heldere achtergrond vereisen. Tegenwoordig zijn zelfs op E. coli gebaseerde CFPS-systemen gediversifieerd, vooral wat betreft de bronstammen voor de extrac11 en bereidingsmethoden12,13, RNA-polymerase14,15, energiebronnen16,17 en buffersystemen18,19. De meest gebruikte stammen zijn afgeleiden van de K12- en B-stam, zoals A1920, JM10921, BL21 (DE3)22 en Rossetta223, naast hun genetisch gemodificeerde tegenhangers.
Aanvankelijk werden E. coli-stammen met verminderde RNase- en protease-activiteiten gekozen om de mRNA-stabiliteit en de stabiliteit van nieuw gesynthetiseerde recombinante eiwitten te verbeteren, wat leidde tot verhoogde uiteindelijke eiwitopbrengsten24. Vervolgens werden E. coli-extracten ontwikkeld om specifieke posttranslationele modificaties mogelijk te maken, waaronder glycosylering25, fosforylering26 en lipidatie27, om de bovenstaande posttranslationele modificaties te bereiken. Bovendien is een reeks additieven zoals moleculaire chaperons28 en chemische stabilisatoren opgenomen om de vouwing van doeleiwitten te vergemakkelijken, wat bijdraagt aan de diversificatie van CFPS-systemen. De bacteriofaag T7 RNA-polymerase, bekend om zijn hoge processiviteit, wordt voornamelijk gebruikt voor transcriptie, hoewel andere polymerasen zoals SP629 ook zijn gebruikt. E. coli endogene RNA-polymerase is aangepast voor de prototyping van genetische circuits met behulp van sigmafactoren30. Ten slotte zijn een verscheidenheid aan energieprecursoren 31,32,33 en verschillende zouten en buffercomponenten 19,34,35 systematisch geoptimaliseerd om de productiviteit te verhogen.
Naast het CFPS-systeem zelf zijn ook de inkapselingsmethoden en compartimenteringsmaterialen van vitaal belang voor de succesvolle assemblage van synthetische cellen. Verschillende systemen die zijn ontwikkeld om de CFPS-reactie met succes in te kapselen, zijn onder meer met oppervlakteactieve stoffen gestabiliseerde water-/oliedruppels, lipiden/polymeren en hun hybride unilamellaire blaasjes (met diameters variërend van 50 nm tot enkele μm), evenals vlak ondersteunde lipidedubbellagen. Vanwege de gecomplexeerde molecuulinhoud van het CFPS-systeem hangt het slagingspercentage van inkapseling echter af van specifieke gevallen, met name voor de vorming van blaasjes. Om het slagingspercentage en de efficiëntie van de inkapseling van CFFS te verbeteren, zijn er verschillende microvloeistofchips ontwikkeld om de vorming van zowel druppeltjes als blaasjes te vergemakkelijken36. Desalniettemin zullen er extra chips en apparaten moeten worden vastgesteld.
Dit protocol schetst een E. coli CFPS-systeem dat gebruik maakt van de BL21(DE3)-stam, een veelgebruikte gastheer voor de productie van recombinante eiwitten. Het protocol omvat een gedetailleerd verslag van de bereiding van het celextract, de sjabloonbereiding en de optimalisatie van standaardexpressie met behulp van een fluorescerend reporter-eiwit. Bovendien presenteren we voorbeeldige resultaten die zijn bereikt door het CFPS-systeem in te kapselen in diverse microcompartimenten, waaronder monolaagdruppels, dubbele emulsieblaasjes en kamers bovenop ondersteunde lipidedubbellagen. Ten slotte gaan we in op de cruciale procedurele elementen en de vereiste voorwaarden die onmisbaar zijn voor de succesvolle invoering van deze CFPS-systemen binnen verschillende milieucontexten.
Protocol
1. Extract voorbereiding
- Strijk de E. coli BL21 (DE3)-stam uit een glycerolvoorraad op een Luria Bertani (LB)-agarplaat en incubeer gedurende ten minste 15 uur bij 37 °C.
- Bereid een nachtelijke voorcultuur voor door een enkele kolonie van de vers bereide LB-plaat te inoculeren in een kolf van 50 ml Luria Bertani (LB) medium.
- Inoculeer 5 ml voorcultuur in 500 ml 2xYTPG medium in een erlenmeyer van 3 l met blamb. Kweek het bij 37 °C met krachtig schudden (tussen 220 tpm en 250 tpm) en oogst de cellen wanneer ze de mid-log-fase bereiken (OD600 ~ 3). Leg de celculturen vervolgens 10 minuten in koud ijskoud water en centrifugeer ze gedurende 15 minuten bij 4 °C bij 8.000 × g .
OPMERKING: In deze stap kan de glucose in 2xYTPG medium worden weggelaten voor specifieke toepassingen 9,12. - Resuspendeer de resulterende celpellets in 35 ml voorgekoelde S30-buffer A, gevolgd door centrifugeren bij 8.000 × g gedurende 15 minuten bij 4 °C. Gooi het supernatant weg.
- Herhaal stap 1.4 twee keer.
OPMERKING: De celpellets kunnen worden bewaard bij -80 °C als ze niet onmiddellijk worden gebruikt. - Resuspendeer de laatste pellets in S30-buffer B (gebruik bijvoorbeeld 1.1 ml S30-buffer B per 1 g celpellet) en verstoor de cellen in één keer door French Press bij 17.000 psi.
- Voor het gebruik van de French Press volgt u de gebruikershandleiding en brengt u de celsuspensie over naar de metalen disruptiekamer van de French press, waarbij u ervoor zorgt dat alle componenten zijn gemonteerd en de onderste klep van de disruptiekamer gesloten is.
- Breng de gemonteerde disruptiekamer over naar het hydraulische platform en zet de veiligheidsvergrendeling vast.
- Zet de hydraulische pomp aan en start de storing.
- Bedien de uitlaatklep om de celsuspensie uit de uitlaatbuis in een nieuwe buis van 50 ml te laten stromen. Pas de stroomsnelheid aan om een efficiënte onderbreking te garanderen, idealiter één druppel per keer. Houd de druk boven de ondergrens van 15.000 psi.
- Centrifugeer het resulterende lysaat bij 30.000 × g gedurende 30 minuten bij 4 °C en verzamel het supernatant. Herhaal de centrifugatie een keer en verzamel het supernatant. Voeg 0,3 volume pre-incubatiebuffer toe aan het verzamelde supernatans en incubeer met zacht schudden bij 37 °C gedurende 80 min.
OPMERKING: Het gebruik van pre-incubatiebuffer zou de uiteindelijke opbrengst kunnen verhogen, hoewel is gemeld dat een lege afvoer (zonder pre-incubatiebuffer) ook de efficiëntie zou kunnen verbeteren 37,38, die afhankelijk is van de overeenkomstige bronstam. - Dialyse het resulterende afvloeimengsel gedurende 2 uur tegen 2 L S30-buffer C, vervang de dialysebuffer eenmaal door 2 L verse S30-buffer C en dialyseer 's nachts bij 4 °C39.
OPMERKING: De tweede stap van de nachtelijke dialyse kan worden verkort tot ongeveer 3 uur. - Verzamel het gedialyseerde monster en centrifugeer het gedurende 30 minuten bij 4 °C bij 30.000 × g . Verzamel het supernatans en aliquot in de juiste hoeveelheden en vries ze onmiddellijk in vloeibare stikstof in.
OPMERKING: Het ingevroren monster kan ten minste 6 maanden tot 1 jaar bij -80 °C worden bewaard zonder verlies van efficiëntie.
2. T7 RNA-polymerase
- Transformeer pAR1219 plasmide in BL21(DE3) ster E. coli competente cellen40.
- Inoculeer 10 ml van een nachtelijke cultuur in 1 L LB-medium (met 100 μg/ml ampicilline). Laat de cellen groeien bij 37 °C totdat OD600 0,6-0,8 bereikt.
- Start de inductie door een eindconcentratie van 1 mM IPTG toe te voegen. Induceer de cellen gedurende nog eens 5 uur en oogst door centrifugeren bij 8.000 × g gedurende 15 minuten bij 4 °C. Bewaar de celpellets maximaal enkele weken bij -80 °C.
- Resuspendeer de celpellets in 30 ml T7-buffer A en verstoor de cellen in één keer door de Franse pers bij 15.000 psi. Verwijder de celresten door centrifugeren bij 20.000 × g gedurende 30 minuten bij 4 °C.
- Voeg streptomycinesulfaat druppelsgewijs toe aan het supernatans uit de vorige stap en bereik een eindconcentratie van 4% (m/v). Centrifugeer na een korte incubatie op ijs bij 20.000 × g gedurende 30 minuten bij 4 °C.
- Filtreer het supernatans door een filtermembraan van 0,45 μm en laad het gefilterde monster op een sterke anionenuitwisselingskolom (kolomvolume van 40 ml), die vooraf in evenwicht was gebracht met 10 kolomvolumes T7-buffer B, via een geautomatiseerd vloeistofchromatograafsysteem.
- Was de geladen kolom met 50 kolomvolumes T7-buffer B en elueer het monster met 10 kolomvolumes laag zout (50 mM NaCl) en hoog zout (500 mM) T7-buffer C-mengsels, waarbij een lineaire concentratiegradiënt van NaCl wordt vastgesteld van 50 tot 500 mM bij een debiet van ~3 ml/min41.
- Verzamel de piekfracties en analyseer ze met SDS-PAGE.
OPMERKING: T7-polymerase vertoont een overheersende band bij ~100 kDa, terwijl er nog steeds aanzienlijke hoeveelheden onzuiverheden op de SDS-PAGE-gel verschijnen. - Bundel de fracties die T7-polymerase bevatten en dialyseer 's nachts tegen 2 L T7-buffer C.
- Voeg glycerol toe om een eindconcentratie van 10% te bereiken en concentreer het resulterende mengsel tot een eindconcentratie van 3-4 mg/ml door ultrafiltratie42.
OPMERKING: Als er tijdens het concentratieproces neerslag optreedt, stop dan onmiddellijk en verwijder de neerslag door te centrifugeren. - Pas de glycerolconcentratie aan op 50%. Aliquot en vries het monster snel in met vloeibare stikstof. Bewaren bij -80 °C voor een langere periode.
OPMERKING: Een kleine aliquot kan ook gedurende ten minste 1 maand bij -20 °C worden bewaard zonder verlies van efficiëntie.
3. Buffer voorbereiding
- Bereid buffers voor zoals aangegeven in Tabel 1 een dag voor gebruik.
4. Sjabloonontwerp en -voorbereiding
- Kloon het gen van interesse in een op T7-promotor gebaseerde vector of genereer een lineair PCR-product dat het gen van interesse bevat.
OPMERKING: Zie de discussiesectie voor ontwerpprincipes. - Bereid het plasmide uit een nachtelijke cultuur met behulp van een plasmide-extractiekit.
OPMERKING: We raden aan om een plasmidekit te kiezen die een isopropanol-precipitatiestap bevat, gevolgd door een wasprocedure met 70% ethanol. - Los het gedroogde DNA op in een kleine hoeveelheid ultrapuur water tot een concentratie tussen 200 μg/ml en 500 μg/ml, zoals bepaald door een microvolumespectrofotometer.
- Optioneel: Eiwitten uit lineaire PCR-producten direct tot expressie brengen.
OPMERKING: In dit geval is een PCR-zuiveringsstap nodig.
5. Mg2+ en K+ optimalisatie
- Bereid een mastermix voor voor Mg2+ concentratiescreening zoals aangegeven in Tabel 2, of voor K+ concentratiescreening zoals aangegeven in Tabel 3.
- Breng de mastermix over in individuele microfuge-buizen of een V-vormige plaat met 96 putjes.
- Pipeteer het exacte volume Mg2+ of K+ stockoplossingen in individuele microfuge-buisjes of de V-vormige plaat met 96 putjes en voltooi de CFPS-reacties met ultrapuur water. Incubeer de reacties gedurende ten minste 2 uur.
NOTITIE: Als u een V-vormige plaat met 96 putjes gebruikt, sluit u de plaat af met een plastic deksel om verdamping te voorkomen. - Neem 2 μL van het reactiemengsel en breng het over in een zwarte plaat met 96 putjes voor fluorescentiemetingen door een plaatlezer.
OPMERKING: We gebruiken een fluorescerende plaatlezer met de volgende opstelling: excitatie/emissie: 485/528, versterking: 50, leeshoogte: 7,00 mm. Men zou echter zijn plaatlezer moeten afstemmen om een specifieke kalibratiecurve te genereren met behulp van gezuiverde fluorescerende eiwitten.
6. Inkapseling
- Druppel
- Bereid een gefluoreerde olie die oppervlakteactieve stof bevat (2% PFPE-PEG in HFE7500) of een oplossing van lipide-minerale olie door lipide op te lossen in minerale olie (zie stap 6.2.1)
- Bereid een totaal volume van 100 μL CFPS-reactie voor door de overeenkomstige reagentia 2-18 uit tabel 4 te combineren. Voeg CFPS-reactie toe aan 500 μL van de eerder bereide olie in een tube van 1,5 ml en wrijf de tube vervolgens krachtig 50x over het buizenrek om fijne (water-in-olie) druppeltjes te vormen. Incubeer de buis bij 30 °C om de reactie uit te voeren.
OPMERKING: Eenvoudige microfluïdische chips kunnen ook worden gebruikt om homogene druppeltjes te genereren43.
- Reusachtige unilamellaire blaasjes (GUV's)
- Bereiding van de lipide-minerale olie-oplossing
- Voeg 57 μL chloroform toe aan een glazen injectieflacon van 4 ml en voeg vervolgens 18 μL 25 mg/ml 1-palmitoyl-2-oleoyl-glycerol-3-fosfocholine (POPC) lipiden toe om de chloroform-lipidenoplossing te vormen, waarbij een eindconcentratie van 8 mM wordt bereikt (gebruik andere lipiden met vergelijkbare eindconcentraties).
OPMERKING: Deze mengstap was om een homogene menging van verschillende lipiden te garanderen. - Verdamp de chloroform gedurende 15 minuten onder een argonstroom en verdamp vervolgens verder onder vacuüm gedurende 1 uur.
- Los de resulterende droge lipiden op in 1.500 μL minerale olie en bereik een eindconcentratie van 400 μM. Incubeer het mengsel een nacht bij kamertemperatuur.
- Voeg 57 μL chloroform toe aan een glazen injectieflacon van 4 ml en voeg vervolgens 18 μL 25 mg/ml 1-palmitoyl-2-oleoyl-glycerol-3-fosfocholine (POPC) lipiden toe om de chloroform-lipidenoplossing te vormen, waarbij een eindconcentratie van 8 mM wordt bereikt (gebruik andere lipiden met vergelijkbare eindconcentraties).
- Vorming van een grensvlaklipidenlaag
- Voeg 500 μl van de buitenoplossing (zie tabel 5) toe aan een buisje van 1,5 ml en leg langzaam 250 μl lipide-minerale olieoplossing op de buitenoplossing. Incubeer gedurende 30 minuten bij kamertemperatuur om een stabiele grensvlaklipidenlaag te vormen.
- Bereiding van de inwendige oplossing
- Meng alle reagentia in tabel 6 tot de preinneroplossing en bewaar deze op ijs tot gebruik. Voltooi de inwendige oplossing door T7RNAP, S30-extract en DNA-sjabloon toe te voegen aan de prebinnenoplossing als reagentia 16-18 vermeld in tabel 4.
OPMERKING: Het verhogen van de ingekapselde sucroseconcentratie boven 250 mM kan de celvrije translatie remmen44.
- Meng alle reagentia in tabel 6 tot de preinneroplossing en bewaar deze op ijs tot gebruik. Voltooi de inwendige oplossing door T7RNAP, S30-extract en DNA-sjabloon toe te voegen aan de prebinnenoplossing als reagentia 16-18 vermeld in tabel 4.
- Vorming van GUV's
- Voeg 50 μl inwendige oplossing toe aan een nieuwe buis van 1,5 ml met 500 μl lipide-minerale olie, pipetteer snel op en neer en draai krachtig vooruit.
- Laat de tube 10 minuten op ijs liggen en voeg langzaam 20 μL van het emulsiemengsel toe aan de bovenkant van de oliefase in de tube van 1,5 ml uit stap 6.2.2.
- Centrifugeer bij 800 × g (gebruik een centrifugatiesnelheid van 100 × g tot 1000 × g) gedurende 10 minuten bij 4 °C en observeer de vorming van GUV's op de bodem van de buis.
OPMERKING: Er kan een hogere specifieke centrifugatiesnelheid worden gebruikt; men zou echter kunnen overwegen dat de centrifugatiesnelheid van invloed zou kunnen zijn op de grootte van gevormde GUV's45. - Verwijder de bovenste oliefase.
- Zuig voorzichtig 30 μL GUV's op de bodem van de buis op. Incubeer de verzamelde GUV's bij 30 °C.
OPMERKING: De optimale incubatietemperatuur varieert voor verschillende eiwitten. - Gebruik confocale laserscanmicroscopie (LSM) om de expressie van fluorescerende eiwitten te controleren.
- Bereiding van de lipide-minerale olie-oplossing
- Ondersteunde lipide dubbellaag (SLB)
- Voorbereiding van SLB-kamers
- Piranha-clean 24 x 24 mm #1.5 dekglaasjes door zeven druppels zwavelzuur en twee druppels 50% waterstofperoxide toe te voegen aan het midden van elke afdekglaasje. Incubeer de reactanten op de dekglaasjes gedurende ten minste 45 minuten; Spoel grondig af met ultrapuur water.
- Monteer de reconstitutiekamer door een afgesneden microfuge-buis van 0,5 ml op de gereinigde dekglaasjes te bevestigen met optische lijm die gedurende 10 minuten onder een ultraviolette lamp (365 nm) is uitgehard om een reactiekamer te vormen.
- SLB-formatie
- Los 80 mol% 1,2-dioleoyl-sn-glycerol-3-fosfocholine (DOPC), 19,95 mol% 1,2-dioleoyl-sn-glycerol-3-fosfo-L-serine (DOPS) en 0,05 mol% Atto488-DOPE (1,2-dioleoyl-sn-glycero-3-fosfoethanolamine = DOPE) op, meng in chloroform, droog onder milde stikstofstroom en vacuüm gedurende 1 uur om het oplosmiddel volledig te verwijderen.
- Rehydrateer de gedroogde lipidenfilm in SLB-buffer A, wat resulteert in een uiteindelijke lipidenconcentratie van 4 mg/ml.
- Draai en sonicaat de resulterende monsters totdat ze helder worden.
- Verdun 4 mg/ml SUV's met 130 μl SLB-buffer A, breng 75 μl van de suspensie over naar de voorgevormde reactiekamers en incubeer het gedurende 1 minuut op een warmteblok bij 37 °C. Voeg 150 μL SLB-buffer A toe aan de reactiekamer voor verdere incubatie gedurende 2 minuten.
- Was de kamer met 2 ml SLB-buffer B (SLB-buffer A zonder MgCl2) voordat de buffer wordt vervangen door de S30-buffer C met 0,4% (w/v) BSA voor CFPS-reacties, en laat 100 μL buffer in de kamer om te voorkomen dat de gevormde SLB uitdroogt.
- Verwijder de resterende S30-buffer C en voeg het CFPS-reactiemengsel voorzichtig toe aan de SLB-kamer. Incubeer de kamer bij 30 °C en bewaak de expressie onder een confocale laserscanmicroscoop.
- Voorbereiding van SLB-kamers
Resultaten
Voor elke nieuwe batch celextract en T7-RNA-polymerase wordt aanbevolen om een basisscreening uit te voeren van zowel Mg2+- als K+-concentraties om de optimale prestaties van het CFPS-systeem te garanderen. De fluorescentie van superfolder GFP kan dienen als een indicator van de totale opbrengst van het CFPS-systeem onder wisselende omstandigheden, zoals geïllustreerd in figuur 1A,B. Bovendien wordt in figuur 1C een parallelle rendementsvergelijking van het CFPS-systeem over verschillende compartimenten getoond, waaruit blijkt dat de prestaties in ingekapselde CFPS-systemen consistent zijn, zij het met een lichte afname van GUV's, mogelijk als gevolg van de invloed van sucrose46. Bovendien werden CFPS-reacties met succes ingekapseld in druppeltjes (Figuur 2), GUV's (Figuur 3) en bovenop SLB's (Figuur 4).
Figuur 2A toont de vorming van emulsiedruppels, die duidelijk werden toen de olieoplossing turbulent werd. De expressie van groen/rode fluorescerende eiwitten (GFP en mCherry) werd vastgelegd met behulp van een confocale laserscanmicroscopie. Figuur 3 toonde het succes van de inkapseling van de CFPS-reactie in GUV's door middel van het eenvoudige emulsieoverdrachtsproces. Het rode kanaal gaf de gelabelde lipiden aan; het groene kanaal toonde de expressie van superfolder GFP; En het gele kanaal vertegenwoordigde een inerte fluorescerende kleurstof. Figuur 4A toont de SLB-kamer waar de CFPS-reactie zou kunnen worden afgezet. In deze kamer werd een SLB gevormd bovenop het glazen dekglaasje, waarbij het CFPS-reactiemengsel bovenop de voorgevormde SLB werd geplaatst, waardoor beeldvorming via een confocale laserscanmicroscopie mogelijk werd. Zoals aangegeven in figuur 4B, werd SLB gevisualiseerd door gelabelde lipiden, weergegeven in groen, terwijl het tot expressie gebrachte kleine GTPase Cdc42 gefuseerd met mCherry werd weergegeven in magenta. De in-situ expressie van mCherry-Cdc42 was waarneembaar, samen met het omkeerbare membraantargetingproces, onder de microscoop. Het gebruikte CFPS-systeem werd echter aangevuld met prenylatiemachines, zoals beschreven in een recente publicatie47.
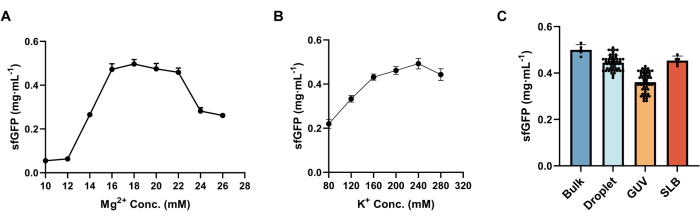
Figuur 1: Optimalisatie en vergelijking van het CFPS-systeem. Screening van (A) Mg2+ concentratie en (B) K+ concentraties voor het CFPS-systeem in bulk. (C) Een staafdiagram met de eiwitexpressieopbrengsten in verschillende compartimenten. De fluorescentie van superfolder GFP werd gebruikt om de opbrengst van het CFPS-systeem te bepalen, gemeten door een plaatlezer of een confocale laserscanmicroscoop. Afkortingen: CFPS = celvrije eiwitsynthese; GFP = groen fluorescerend eiwit; sfGFP = supermap GFP; GUV = reusachtig unilamellair blaasje; SLB = ondersteunde lipide dubbellaag. Klik hier om een grotere versie van deze figuur te bekijken.
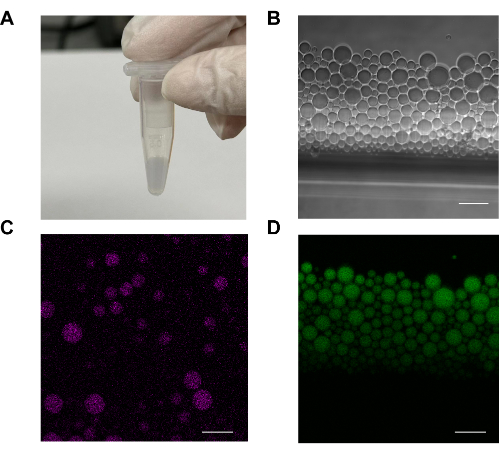
Figuur 2: Celvrije eiwitsynthese in druppels. (A) Een foto van ingekapselde CFPS-reacties in met oppervlakteactieve stoffen gestabiliseerde water-in-oliedruppels. (B) Helderveld- en (C,D) fluorescentiebeelden van CFPS van (C) mCherry en (D) superfolder GFP ingekapseld in druppeltjes gevisualiseerd door confocale laserscanmicroscopie. Superfolder GFP wordt in het groen aangegeven; mCherry wordt aangegeven in magenta. Schaal balken = 20 μm. Afkortingen: CFPS = celvrije eiwitsynthese; GFP = groen fluorescerend eiwit. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Celvrije eiwitsynthese in GUV's. (A) Een foto van ingekapselde CFPS-reacties in GUV's. (B-D) Fluorescentiebeeld van ingekapselde CFP's in POPC GUV's, die superfolder GFP tot expressie brengen. (B) De lipide dubbellaag was gelabeld met 0,05% gelabelde Atto647N-DOPE-lipiden, weergegeven in rood, (C) een inerte kleurstof weergegeven in geel, en (D) superfolder GFP werd aangegeven in groen. Schaal balken = 20 μm. Afkortingen: CFPS = celvrije eiwitsynthese; GFP = groen fluorescerend eiwit; GUV = reusachtig unilamellair blaasje; POPC = 1-palmitoyl-2-oleoyl-glycerol-3-fosfocholine; DOPE = 1,2-dioleoyl-sn-glycero-3-fosfoethanolamine. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Celvrije eiwitsynthese van klein GTPase-eiwit-Cdc42 bovenop SLB's. (A) Schematische illustratie van de reconstructie van Cdc42's membraantargeting en RhoGDI-afhankelijke membraanextractie op SLB's, zoals gevisualiseerd door confocale laserscanmicroscopie. De prenyleringsmachinerie werd geïmplementeerd via een met prenlytransferase verrijkt extract, dat elders in detail wordt beschreven. 47. (B) Een orthogonale weergave van de pre- en postprenylatie van het reactiemengsel bovenop SLB. (C,D) Tijdreeksen van mCherry-Cdc42 intensiteit op het membraan (roze) en in oplossing (zwart) tijdens (C) membraantargeting en (D) membraanextractie. Schaalbalken = 10 μm. (A-D) zijn overgenomen van Kai et al.47. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Lijst van buffers. LET OP: Voeg vlak voor gebruik β-mercaptoethanol en DTT toe. Klik hier om deze tabel te downloaden.
Tabel 2: Pipeteerschema voor screening op Mg2+- concentraties. Klik hier om deze tabel te downloaden.
Tabel 3: Pipeteerschema voor screening op de K+- concentratie. Klik hier om deze tabel te downloaden.
Tabel 4: Samenstelling van de inwendige oplossing. Klik hier om deze tabel te downloaden.
Tabel 5: Samenstelling van de buitenoplossing. Klik hier om deze tabel te downloaden.
Tabel 6: Samenstelling van de preinneroplossing. Klik hier om deze tabel te downloaden.
Discussie
Dit manuscript schetst een gemodificeerd celvrije eiwitsynthese (CFPS) -systeem dat is ontworpen voor gebruik in verschillende microcompartimenten op synthetische celplatforms, waaronder water-in-oliedruppels, GUV's en SLB's. We gebruikten de standaard E. coli recombinante eiwitexpressie-gastheerstam, BL21 (DE3), als bronextract voor het construeren van eiwitgerichte synthetische celsystemen. Deze aanpak leverde ongeveer 0,5 mg/ml eiwit op in verschillende compartimenten. Hoewel andere op maat gemaakte extractbronstammen kunnen worden gebruikt, zijn deze systemen voornamelijk geoptimaliseerd voor een specifiek type eiwit of metabolische activiteit, die suboptimaal kan zijn voor algemene eiwitexpressie. Recente ontwikkelingen in kwantitatieve massaspectrometrie-analyse hebben pilotstudies naar de proteomische analyse van cellysaat48,49 mogelijk gemaakt, met name onder verschillende bereidingsomstandigheden.
Ondanks het verkrijgen van inzichten uit deze studies, blijft het een uitdaging om een kwantitatieve correlatie vast te stellen tussen deze geïdentificeerde eiwitfactoren en de algehele prestaties van CFPS-systemen. Deze leemte liet onbeantwoorde vragen over hoe de prestaties van een bepaalde partij extract kwantitatief moesten worden beoordeeld. Bovendien is er geen systematische en parallelle vergelijking van verschillende bronstammen gerapporteerd. In deze studie gebruikten we 2xYPTG-medium om de productie van biomassa te stimuleren, een strategie die wordt aanbevolen om over te stappen op 2xYPT bij gebruik van endogene RNA-polymerase voor transcriptie. Ondanks suggesties dat T7-polymerase zou kunnen worden geïntegreerd in de extractbereidingsprocedure45, hebben we gekozen voor een apart bereidingsprotocol voor S30-extract en T7-RNA-polymerase om hoge batch-tot-batch-variaties te verminderen.
De productie van doeleiwit is intrinsiek verbonden met het centrale transcriptie-/translatieproces. Een goed sjabloonontwerp en zuiverheid zijn cruciaal voor succesvolle celvrije expressie. Naast het plasmidesjabloon kan ook lineair dubbelstrengs DNA gegenereerd door PCR worden gebruikt, wat geschikt is voor screening en toepassingen met een hoge doorvoer. In tegenstelling tot het conventionele sjabloonontwerp voor in vivo expressie bij E. coli, is het sjabloonontwerp in het E. coli-celvrije systeem vereenvoudigd zonder dat er overwegingen voor expressie-inductie nodig zijn. Het enige essentiële element van een celvrije expressiesjabloon is een T7-regulerende sequentie. In sommige gevallen kan de 5'-sequentie van het doelgen echter de translatie-initiatie beïnvloeden, afhankelijk van de secundaire structuur gevormd door het overeenkomstige getranscribeerde mRNA. Als de ribosoombindingsplaats zich in een stabiele stamlus van het getranscribeerde mRNA bevindt, kan de translatie-initiatie aanzienlijk worden belemmerd, wat leidt tot een slechte algehele expressie. Evenzo kunnen opeenvolgende zeldzame codons de expressie belemmeren en moeten ze worden geoptimaliseerd, vergelijkbaar met in vivo studies. Dit kan worden bereikt door middel van open-source servers die zich toeleggen op codonoptimalisatie50 en mRNA secundaire structuurvoorspelling51.
Wat het buffersysteem betreft, gebruikten we een acetaatbuffer aangevuld met creatinefosfaat en creatinekinase als bronnen van energieregeneratie in onze experimentele opstelling. Deze opstelling leverde een matig expressieniveau en een relatief snelle kinetiek op, toe te schrijven aan de eenstaps energieregeneratiereactie die werd gekatalyseerd door creatinekinase met behulp van creatinefosfaat. Hoewel sommige onderzoekers zijn overgestapt op een glutamaatbuffersysteem, daarbij verwijzend naar de nauwere gelijkenis met de cellulaire omgeving52, hebben we geen significante verschillen waargenomen in de opbrengst van eiwitexpressie met onze huidige protocollen. Recente proteomische analyse gaf echter aan dat verschillende buffersystemen in combinatie met extractverwerkingsmethoden de uiteindelijke expressieopbrengst kunnen beïnvloeden19. Wat energieprecursoren betreft, zijn diverse substraten door talrijke onderzoeksgroepen onderzocht om kosteneffectiviteit en verhoogde expressierendementen te bereiken53,54. In het kader van het gepresenteerde CFPS-systeem is bewust gekozen voor creatinefosfaat en creatinekinase. Deze selectie werd gemotiveerd door de efficiëntie van de energieregeneratie die kan worden bereikt door een eenstapsreactie en de afwezigheid van interferentie met endogene enzymen die van het extract zijn overgeërfd. Bijgevolg zorgt deze configuratie voor een eenvoudig maar robuust systeem dat zeer geschikt is voor verschillende omgevingen met microcompartimenten.
Zoals aangegeven in de weergegeven resultaten, hebben we een succesvolle eiwitexpressie aangetoond in drie verschillende microcompartimenten: water-in-oliedruppels gestabiliseerd door semi-gefluoreerde olie, GUV's gevormd door emulsieoverdracht en bovenop een ondersteunde lipidedubbellaag. De veelzijdigheid van eiwitexpressie in verschillende microcompartimenten benadrukt de robuustheid van ons CFPS-systeem voor de bouw van synthetische cellen. Van deze inkapselingsmethoden was de emulsiedruppeltechniek een opmerkelijk eenvoudige benadering voor het inkapselen van het CFPS-systeem, waarvoor alleen agitatie of vortexen nodig waren. Deze druppeltjes zijn echter vaak onstabiel vanwege de precaire waterinterface, een beperking die kan worden verholpen door lipiden of oppervlakteactieve stoffen toe te voegen aan de oliefase. Ondanks de bruikbaarheid van gestabiliseerde water-in-oliedruppels, repliceren ze de natuurlijke celomgeving niet volledig, die bestaat uit twee waterige compartimenten gescheiden door een celmembraan. In plaats van druppeltjes werden gigantische unilamellaire blaasjes (GUV's) met een grootte van meer dan 1 micron vastgesteld om cellen beter na te bootsen. Het CFPS-systeem werd ingekapseld in de lipidedubbellaag van deze blaasjes en leverde transcriptie- en translatiemachines voor diverse synthetische celsystemen55.
Emulsietransfer, ook wel dubbele emulsie genoemd, onderscheidt zich als de typische techniek voor het inkapselen van CFPS-reacties, vanwege het milde bereidingsproces en de relatief hoge inkapselingsefficiëntie in vergelijking met oplosmiddelvrije methoden. Het genereren van dubbele emulsieblaasjes kan echter variëren van eenvoudige centrifugatiestappen tot het gebruik van microfluïdisch ondersteunde emulsieoverdracht, waarbij elke methode de bijbehorende voor- en nadelen heeft, zoals elders wordt samengevat36. De succesvolle inkapseling van het CFPS-systeem in GUV's is afhankelijk van het afstemmen van de osmolariteit en het uitoefenen van de juiste kracht om de olie-waterinterface te doorlopen. Hoewel de hier beschreven emulsieoverdrachtsmethode de meest eenvoudige is en geen specifieke laboratoriumapparatuur vereist, kunnen de efficiëntie en homogeniteit van gegenereerde GUV's variëren tussen verschillende batches. Bovendien moeten alle emulsieoverdrachtsmethoden te maken hebben met resterende olie in het lumen van de gevormde dubbellaagse interface, waardoor een extra olieverwijderingsstap56 nodig is, wat uitdagingen kan opleveren bij kinetische projecten.
Ten slotte hebben we de succesvolle expressie van CFPS bovenop een Supported Lipid Bilayer (SLB) aangetoond, wat een waardevolle aanpak biedt voor projecten die eiwitsynthese vereisen in de nabijheid van de lipide-biomembraanomgeving. Door het gebruik van het gepresenteerde CFPS-systeem hebben we de succesvolle toepassing ervan aangetoond bij het karakteriseren van het omkeerbare membraantargetingproces van Cdc4247, een centraal eiwitmolecuul dat cruciaal is voor cellulaire polariteit. Samenvattend benadrukken de consistente mediumexpressieopbrengsten en de inherente robuustheid die in verschillende microcompartimenten worden waargenomen, het potentieel van dit CFPS-systeem bij de constructie van diverse synthetische celsystemen. Dit vermogen kan verder worden uitgebreid met verschillende eiwitgecentreerde modellen, die uiteindelijk leiden tot de realisatie van minimale cellen.
Openbaarmakingen
De auteurs verklaren dat ze geen bekende concurrerende financiële belangen of persoonlijke relaties hebben die van invloed zouden kunnen zijn geweest op het werk dat in dit artikel wordt gerapporteerd.
Dankbetuigingen
M. Y. erkent de financiering van het Postgraduate Research & Practice Innovation Program van de provincie Jiangsu, China (Grant No. KYCX22_2803). L.K. is dankbaar voor de steun van het natuurwetenschappelijk onderzoek van Jiangsu Higher Education Institutions of China, China (Grant No. 17KJB180003), de Natural Science Foundation van Jiangsu Normal University, China (Grant No. 17XLR037), Priority Academic Program Development of Jiangsu Higher Education Institutions, China, en het Jiangsu Specially-Designated Professor-programma, China.
Materialen
```html
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1,2-dioleoyl-sn-glycero-3-fosfocholine(DOPC) | Avanti | 850375P | |
| 1,2-dioleoyl-sn-glycero-3-fosfo-L-serine (natriumzout)(DOPS) | Avanti | 840035P | |
| 1,4 dithiothreitol (DTT) | Sigma-Aldrich | 1.11474 | |
| 1-palmitoyl-2-oleoyl-sn-glycero-3-fosfocholine (POPC) | Avanti | 850457P | |
| 3,5-cyclisch AMP (cAMP) | Sigma-Aldrich | A9501 | |
| 50 mL buisjes | Eppendorf | Eppendorf Tubes BioBased | |
| 50% waterstofperoxide | Sigma-Aldrich | 516813 | |
| Azetaat | Sigma-Aldrich | A6283 | |
| Agar poeder | Sigma-Aldrich | 05040 | |
| Alanine | Sigma-Aldrich | A4349 | |
| Amicon Stirred Cells | MerckMillipore | UFSC05001 | |
| Ammoniumacetaat (NH4OAc) | Sigma-Aldrich | A7262 | |
| Arginine | Sigma-Aldrich | A4474 | |
| Asparagine | Sigma-Aldrich | A0884 | |
| Aspartaat | Sigma-Aldrich | A5474 | |
| ATP | Roche | 11140965001 | |
| Atto 488 DOPE | Sigma-Aldrich | 67335 | |
| Atto 647N DOPE | Sigma-Aldrich | 42247 | |
| Baffled Erlenmeyer kolf | Shuniu | 250 mL, 1000mL | |
| Bos Serum Albumine(BSA) | Roche | 10711454001 | |
| Centrifugebuis | Eppendorf | Eppendorf Tubes 3810X | |
| Centrifugebuis houder | Eppendorf | 0030119819 | |
| Chemiluminescentie en epifluorescentie beeldvormingssysteem | Uvitec | Alliance Q9 Advanced | |
| Chloorform | Sigma-Aldrich | 288306 | |
| Confocale Laser Scanning Microscopie (LSM) | ZEISS | LSM 780 | |
| Countess Celtellingskamer Slides | Thermo Fisher Scientific | C10283 | |
| Dekglas | Thermo Scientific | Menzel BB02400500A113MNZ0 | |
| creatine kinase (CK) | Roche | 10127566001 | |
| Creatinefosfaat (CP) | Sigma-Aldrich | 10621714001 | |
| Kweekschotel | Huanqiu | 90 mm | |
| Cysteine | Sigma-Aldrich | C5360 | |
| Cytidine 5'-trifosfaat dinatriumzout (CTP) | aladdin | C101487 | |
| Dialyse membraan | Spectrum | Standard RC Tubing MWCO: 12-14 kD | |
| E.Z.N.A. Cycle Pure Kit | Omega Bio-Tek | D6492-01 | |
| Elektro-verwarmingsstaande temperatuur Cultivator | Yiheng instrument | DHP-9602 | |
| Ethyleendiaminetetraazijnzuur(EDTA) | Biosharp | 1100027 | |
| Fluorescente platenlezer | BioTek | Synergy 2 | |
| Gefluoreerde olie | Suzhou CChip wetenschappelijk instrument | 2%HFE7500 | |
| Folinezuur | Sigma-Aldrich | 47612 | |
| French Press | G.Heinemann | HTU-DIGI-Press | |
| Glucose | Sigma-Aldrich | G7021 | |
| Glutamaat | Sigma-Aldrich | G5667 | |
| Glutamine | Sigma-Aldrich | G5792 | |
| Glycerol | Sigma-Aldrich | G5516 | |
| Glycine | Sigma-Aldrich | G7126 | |
| Guanosine 5'-trifosfaat natriumzout hydraat(GTP) | Roche | 10106399001 | |
| HEPES | Sigma-Aldrich | H3375 | |
| HiPrep Q FF 16/10 | Cytiva | 28936543 | |
| Histidine | Sigma-Aldrich | H6034 | |
| Isoleucine | Sigma-Aldrich | I5281 | |
| Isopropyl-β-D-thiogalactopyranosid (IPTG) | Sigma-Aldrich | I5502 | |
| K2HPO4 | Sigma-Aldrich | P8281 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Leucine | Sigma-Aldrich | L6914 | |
| Lysine | Sigma-Aldrich | L5501 | |
| Magnesiumacetaat tetrahydraat (Mg(OAc)2) | Sigma-Aldrich | M5661 | |
| Magnesiumchloride(MgCl2) | Sigma-Aldrich | M2670 | |
| Methionine | Sigma-Aldrich | M8439 |
Referenties
- Elani, Y. Interfacing living and synthetic cells as an emerging frontier in synthetic biology. Angew Chem Int Ed Engl. 60 (11), 5602-5611 (2021).
- Cho, E., Lu, Y. Compartmentalizing cell-free systems: toward creating life-like artificial cells and beyond. ACS Synth Biol. 9 (11), 2881-2901 (2020).
- Silverman, A. D., Karim, A. S., Jewett, M. C. Cell-free gene expression: an expanded repertoire of applications. Nat Rev Genet. 21 (3), 151-170 (2020).
- Zhang, L., Guo, W., Lu, Y. Advances in cell-free biosensors: principle, mechanism, and applications. Biotechnol J. 15 (9), e2000187(2020).
- Lu, Y., Allegri, G., Huskens, J. Vesicle-based artificial cells: materials, construction methods and applications. Mater Horiz. 9 (3), 892-907 (2022).
- Fu, Z., Ochsner, M. A., De Hoog, H. P., Tomczak, N., Nallani, M. Multicompartmentalized polymersomes for selective encapsulation of biomacromolecules. Chem Commun (Camb). 47 (10), 2862-2864 (2011).
- Ayoubi-Joshaghani, M. H., et al. Cell-free protein synthesis: the transition from batch reactions to minimal cells and microfluidic devices. Biotechnol Bioeng. 117 (4), 1204-1229 (2020).
- Yue, K., Chen, J. Y., Li, Y. Q., Kai, L. Advancing synthetic biology through cell-free protein synthesis. Comput Struct Biotechnol J. 21, 2899-2908 (2023).
- Kwon, Y. C., Jewett, M. C. High-throughput preparation methods of crude extract for robust cell-free protein synthesis. Sci Rep. 5, 8663(2015).
- Shimizu, Y., et al. Cell-free translation reconstituted with purified components. Nat Biotechnol. 19 (8), 751-755 (2001).
- Schwarz, D., et al. Preparative scale expression of membrane proteins in Escherichia coli-based continuous exchange cell-free systems. Nat Protoc. 2 (11), 2945-2957 (2007).
- Levine, M. Z., Gregorio, N. E., Jewett, M. C., Watts, K. R., Oza, J. P. Escherichia coli-based cell-free protein synthesis: protocols for a robust, flexible, and accessible platform technology. J Vis Exp. (144), e58882(2019).
- Cole, S. D., Miklos, A. E., Chiao, A. C., Sun, Z. Z., Lux, M. W. Methodologies for preparation of prokaryotic extracts for cell-free expression systems. Synth Syst Biotechnol. 5 (4), 252-267 (2020).
- Shin, J., Noireaux, V. Efficient cell-free expression with the endogenous E. coli RNA polymerase and sigma factor 70. J Biol Eng. 4, 8(2010).
- Mcmanus, J. B., Emanuel, P. A., Murray, R. M., Lux, M. W. A method for cost-effective and rapid characterization of engineered T7-based transcription factors by cell-free protein synthesis reveals insights into the regulation of T7 RNA polymerase-driven expression. Arch Biochem Biophys. 674, 108045(2019).
- Kim, T. W., et al. Prolonged cell-free protein synthesis using dual energy sources: combined use of creatine phosphate and glucose for the efficient supply of ATP and retarded accumulation of phosphate. Biotechnol Bioeng. 97 (6), 1510-1515 (2007).
- Kim, D. M., Swartz, J. R. Regeneration of adenosine triphosphate from glycolytic intermediates for cell-free protein synthesis. Biotechnol Bioeng. 74 (4), 309-316 (2001).
- Liu, Y., Fritz, B. R., Anderson, M. J., Schoborg, J. A., Jewett, M. C. Characterizing and alleviating substrate limitations for improved in vitro ribosome construction. ACS Synth Biol. 4 (4), 454-462 (2015).
- Rasor, B. J., et al. Mechanistic insights into cell-free gene expression through an integrated-omics analysis of extract processing methods. ACS Synth Biol. 12 (2), 405-418 (2023).
- Kim, D. M., Kigawa, T., Choi, C. Y., Yokoyama, S. A highly efficient cell-free protein synthesis system from Escherichia coli. Eur J Biochem. 239 (3), 881-886 (1996).
- Li, J. J., Li, P. X., Liu, Q., Li, J. J., Qi, H. Translation initiation consistency between in vivo and in vitro bacterial protein expression systems. Front Bioeng Biotechnol. 11, 1201580(2023).
- Shrestha, P., Holland, T. M., Bundy, B. C. Streamlined extract preparation for Escherichia coli-based cell-free protein synthesis by sonication or bead vortex mixing. Biotechniques. 53 (3), 163-174 (2012).
- Sun, Z. Z., et al. Protocols for implementing an Escherichia coli based tx-tl cell-free expression system for synthetic biology. J Vis Exp. (79), e50762(2013).
- Zubay, G. In vitro synthesis of protein in microbial systems. Annu Rev Genet. 7, 267-287 (1973).
- Jaroentomeechai, T., et al. Single-pot glycoprotein biosynthesis using a cell-free transcription-translation system enriched with glycosylation machinery. Nat Commun. 9 (1), 2686(2018).
- Katsura, K., et al. Phosphorylated and non-phosphorylated HCK kinase domains produced by cell-free protein expression. Protein Expr Purif. 150, 92-99 (2018).
- Suzuki, T., et al. N-terminal protein modifications in an insect cell-free protein synthesis system and their identification by mass spectrometry. Proteomics. 6 (16), 4486-4495 (2006).
- Chi, H., Wang, X., Li, J., Ren, H., Huang, F. Chaperonin-enhanced Escherichia coli cell-free expression of functional CXCR4. J Biotechnol. 231, 193-200 (2016).
- Endo, Y., Sawasaki, T. High-throughput, genome-scale protein production method based on the wheat germ cell-free expression system. Biotechnol Adv. 21 (8), 695-713 (2003).
- Shin, J., Noireaux, V. An E. coli cell-free expression toolbox: Application to synthetic gene circuits and artificial cells. ACS Synth Biol. 1 (1), 29-41 (2012).
- Jewett, M. C., Swartz, J. R. Mimicking the Escherichia coli cytoplasmic environment activates long-lived and efficient cell-free protein synthesis. Biotechnol Bioeng. 86 (1), 19-26 (2004).
- Ryabova, L. A., Vinokurov, L. M., Shekhovtsova, E. A., Alakhov, Y. B., Spirin, A. S. Acetyl phosphate as an energy source for bacterial cell-free translation systems. Anal Biochem. 226 (1), 184-186 (1995).
- Guzman-Chavez, F., et al. Constructing cell-free expression systems for low-cost access. ACS Synth Biol. 11 (3), 1114-1128 (2022).
- Jewett, M. C., Swartz, J. R. Substrate replenishment extends protein synthesis with an in vitro translation system designed to mimic the cytoplasm. Biotechnol Bioeng. 87 (4), 465-472 (2004).
- Caschera, F., et al. High-throughput optimization cycle of a cell-free ribosome assembly and protein synthesis system. ACS Synth Biol. 7 (12), 2841-2853 (2018).
- Yue, K., et al. Bottom-up synthetic biology using cell-free protein synthesis. Adv Biochem Eng Biotechnol. 185, 1-20 (2023).
- Liu, D. V., Zawada, J. F., Swartz, J. R. Streamlining Escherichia coli S30 extract preparation for economical cell-free protein synthesis. Biotechnol Prog. 21 (2), 460-465 (2005).
- Kim, T. W., et al. Simple procedures for the construction of a robust and cost-effective cell-free protein synthesis system. J Biotechnol. 126 (4), 554-561 (2006).
- McPhie, P. [4] Dialysis. Methods Enzymol. 22, 23-32 (1971).
- Froger, A., Hall, J. E. Transformation of plasmid DNA into E. coli using the heat shock method. J Vis Exp. (6), e253(2007).
- Kai, L., et al. Systems for the cell-free synthesis of proteins. Methods Mol Biol. 800, 201-225 (2012).
- Lobb, R. J., et al. Optimized exosome isolation protocol for cell culture supernatant and human plasma. J Extracell Vesicles. 4, 27031(2015).
- Hori, Y., Kantak, C., Murray, R. M., Abate, A. R. Cell-free extract based optimization of biomolecular circuits with droplet microfluidics. Lab Chip. 17 (18), 3037-3042 (2017).
- Takahashi, H., Ogawa, A. Preparation of a millimeter-sized supergiant liposome that allows for efficient, eukaryotic cell-free translation in the interior by spontaneous emulsion transfer. ACS Synth Biol. 9 (7), 1608-1614 (2020).
- Adir, O., et al. Preparing protein producing synthetic cells using cell free bacterial extracts, liposomes and emulsion transfer. J Vis Exp. (158), e60829(2020).
- Kai, L., Dotsch, V., Kaldenhoff, R., Bernhard, F. Artificial environments for the co-translational stabilization of cell-free expressed proteins. PLoS One. 8 (2), e56637(2013).
- Kai, L., Sonal, H. T., Schwille, P. Reconstitution of a reversible membrane switch via prenylation by one-pot cell-free expression. ACS Synth Biol. 12 (1), 108-119 (2023).
- Foshag, D., et al. The E. Coli S30 lysate proteome: a prototype for cell-free protein production. N Biotechnol. 40, Pt B 245-260 (2018).
- Garenne, D., Beisel, C. L., Noireaux, V. Characterization of the all-E. coli transcription-translation system mytxtl by mass spectrometry. Rapid Commun Mass Spectrom. 33 (11), 1036-1048 (2019).
- Puigbo, P., Guzman, E., Romeu, A., Garcia-Vallve, S. Optimizer: A web server for optimizing the codon usage of DNA sequences. Nucleic Acids Res. 35, Web Server issue W126-W131 (2007).
- RNAfold WebServer. Institute for Theoretical Chemistry, University of Vienna. , Available from: http://rna.tbi.univie.ac.at/cgi-bin/RNAWebSuite/RNAfold.cgi (2024).
- Wiegand, D. J., Lee, H. H., Ostrov, N., Church, G. M. Cell-free protein expression using the rapidly growing bacterium vibrio natriegens. J Vis Exp. (145), e59495(2019).
- Calhoun, K. A., Swartz, J. R. An economical method for cell-free protein synthesis using glucose and nucleoside monophosphates. Biotechnol Prog. 21 (4), 1146-1153 (2005).
- Kim, D. M., Swartz, J. R. Prolonging cell-free protein synthesis with a novel ATP regeneration system. Biotechnol Bioeng. 66 (3), 180-188 (1999).
- Nishimura, K., et al. Cell-free protein synthesis inside giant unilamellar vesicles analyzed by flow cytometry. Langmuir. 28 (22), 8426-8432 (2012).
- Teh, S. Y., Khnouf, R., Fan, H., Lee, A. P. Stable, biocompatible lipid vesicle generation by solvent extraction-based droplet microfluidics. Biomicrofluidics. 5 (4), 044113(2011).
Herprints en machtigingen
