Vroeggeboorte (bevalling < 37 weken) is een urgent wereldwijd gezondheidsprobleem met suboptimale preventie- en behandelingsopties. We presenteren een muismodel van oplopende vaginale bacteriële infectie-geïnduceerde vroeggeboorte en schetsen hoe de resulterende neonatale morbiditeit en mortaliteit kunnen worden geanalyseerd.
Methodenartikel
Modellering van oplopende vaginale infectie, vroeggeboorte en neonatale morbiditeit bij muizen
In dit artikel
Samenvatting
Samenvatting
Vroeggeboorte blijft wereldwijd een primaire oorzaak van neonatale mortaliteit en morbiditeit, met beperkte preventieve therapieën. Er is een dwingende behoefte aan klinisch
Relevante en reproduceerbare diermodellen voor de vertaling van innovatieve interventies
om werkelijkheid te worden. Er bestaan verschillende muismodellen van vroeggeboorte. Ze recapituleren echter geen menselijke neonatale morbiditeiten, waaronder neuropathologische veranderingen en
longbeschadiging, die kenmerkende gevolgen zijn van oplopende infectie en vroeggeboorte. We hebben een model gekarakteriseerd dat, voor zover wij weten, het enige is dat het menselijke scenario nabootst waarbij deze neonatale morbiditeiten aanwezig zijn na de inductie van vroeggeboorte door een levende bacterie die uit de vagina opstijgt. Dit artikel demonstreert de intravaginale toediening van een bioluminescente stam van Escherichia coli en beschrijft de beoordeling van neuropathologische uitkomsten en longbeschadiging met behulp van immunohistochemie en histologietechnieken.
Inleiding
Vroeggeboorte (PTB; bevalling < 37 weken) levert de belangrijkste bijdrage aan neonatale sterfte wereldwijd 1,2. Het is goed voor 11% van alle geboorten en is een groot wereldwijd gezondheidsprobleem met een complexe etiologie die slecht wordt begrepen, waardoor het moeilijk te voorspellen en te voorkomenis 3,4,5. Neonatale overlevenden van PTB kunnen nadelige neurologische ontwikkelingsresultaten ervaren, waaronder hersenverlamming, ademhalingsstoornissen, zoals bronchopulmonale dysplasie (BPS) en gastro-intestinale stoornissen zoals necrotiserende enterocolitis (NEC)6,7,8. Daarom is er dringend behoefte aan klinisch relevante, reproduceerbare diermodellen om de biologische routes die bijdragen aan PTB aan te pakken en innovatieve interventies te ontwikkelen.
Er zijn een aantal mogelijke mechanismen die ten grondslag liggen aan spontane PTB, zoals deciduale senescentie, een afbraak van de maternale en foetale tolerantie, stress, korte cervicale lengte of cervicale schade9. Er wordt echter gemeld dat ten minste 40% van de spontane PTB's geassocieerd is met microbiële infectie10,11. Microben die vanuit het vaginale kanaal via de baarmoederhals naar de baarmoeder opstijgen, worden verondersteld en algemeen aanvaard als een veel voorkomende infectieroute vanwege de correlatie tussen de microben geïsoleerd uit het vruchtwater en die in de vaginale microbiota 12,13,14. Micro-organismen die vaak in verband worden gebracht met vroeggeboorte zijn onder meer soorten Mycoplasma, Ureaplasma, Fusobacterium en Streptococcus, en de meeste gevallen zijn polymicrobieel15,16.
Muizen worden vaak gebruikt om PTB te modelleren, met als meest gebruikelijke benadering de toediening van het bacteriële toxine lipopolysaccharide (LPS), dat via intra-uteriene routes kan worden toegediend, intraperitoneale of intra-amniotische routes om ontstekingsniveaus te induceren die nodig zijn om de bevalling te starten17. LPS modelleert echter geen levende microbiële infectie, en belangrijker nog, neonatale uitkomsten kunnen niet in deze modellen worden gemeten omdat LPS foetale sterfte induceert18. In de afgelopen jaren zijn er diermodellen van oplopende vaginale bacteriële infectie ontwikkeld, maar het recapituleren van zowel vroeggeboorte als de bijbehorende neonatale uitkomsten was een uitdaging 19,20,21,22,23,24.
Onze groep heeft een nieuw model opgesteld van oplopende vaginale bacteriële infectie, vroeggeboorte en neonatale morbiditeit dat de pathofysiologie van menselijke PTB25 recapituleert. Hier laten we zien hoe neonatale neuropathologie en longbeschadiging kunnen worden beoordeeld bij pups die zijn blootgesteld aan maternale ascenderende vaginale infectie met een pathogene Escherichia coli (E. coli) stam die in verband is gebracht met menselijke neonatale meningitis. Dit model biedt een unieke kans om de pathofysiologie van oplopende infectie te onderzoeken en biedt de middelen om de effectiviteit van vroeggeboorteinterventies bij het verbeteren van neonatale uitkomsten te evalueren.
Protocol
Procedures werden uitgevoerd onder een vergunning van het Britse ministerie van Binnenlandse Zaken (PAD4E6357) in overeenstemming met de Animal Scientific Procedures Act (1986) en de ARRIVE-richtlijnen. Temperatuur (19-23 °C), vochtigheid (~55%) en 12 uur licht/donkercycli werden streng gecontroleerd. Virgin vrouwelijke C57BL/6 Tyrc-2J muizen (leeftijd 6-12 weken) werden 's nachts gedurende 16-18 uur gedekt. Bewijs van de copulatieplug werd toegewezen als embryonale dag (E) 0,5.
Pathogene E. coli O18:K1 (A192PP)26, een door ratten gepasseerde stam van A192 (DSM. Nr. 10719)27, werd gemodificeerd om het luxoperon (luxCDABE) te bevatten, afkomstig van de nematodensymbiont Photorhabdus Luminescens ATCC29999 (Hb-stam), en inclusief een kanamycine-resistentiecassette (Km2)28. Deze stam is gecategoriseerd als gevarengroep 2 door het Advisory Committee on Dangerous Pathogens (ACDP) van de Britse regering. Draag geschikte persoonlijke beschermingsmiddelen (PBM) en volg de lokale richtlijnen bij het hanteren en weggooien van biologische agentia.
1. Muismodel van oplopende vaginale bacteriële infectie
- Bereiding van E. coli culturen
- Bereid de Luria-Bertani (LB) bouillon door het poeder op te lossen in gedestilleerd water (dH2O) om een 20%-oplossing en autoclaaf te maken. Zodra de LB is afgekoeld tot kamertemperatuur, voegt u 50 μg/ml kanamycine toe. Bewaren bij 4 °C gedurende maximaal 1 week.
- Bereid een 20% Pluronic gel F127-oplossing door de vaste stof op te lossen in steriele fosfaatgebufferde zoutoplossing (PBS). Vortex om 's nachts te mengen en te roeren bij 4 °C.
- Voeg 10 ml met antibiotica behandelde LB-bouillon toe aan een steriele universele container van 30 ml. Verwijder een bevroren glycerolvoorraad E. coli uit de opslag van -80 °C. Schraap met een steriele pipetpunt de bevroren glycerolvoorraad E. coli om het uiteinde van de punt lichtjes te bedekken en werp de punt rechtstreeks in de LB-bouillon. Zet de universele container vast met parafilm, bestempel deze als biologisch gevaarlijk en plaats deze een nacht in een orbitale schudder (200 tpm) bij 37 °C.
- Verdun de volgende ochtend de bacteriecultuur 1:100 (0,1 ml cultuur + 9,9 ml verse LB-bouillon) en breng deze terug naar de orbitale schudder gedurende 1,5-3 uur (200 tpm bij 37 °C), waarbij u regelmatig de groei van de cultuur controleert door de extinctie bij 600 nm te meten. Pipetteer 100 μL van de cultuur in tweevoud in een doorzichtige plaat met 96 putjes met platte bodem. Meet de extinctie op een spectrofotometer met geactiveerde padlengtecorrectie. Een OD600 tussen 0,5 en 0,7 betekent de midlogaritmische fase van de groei.
- Wanneer OD600 0,5-0,7 is bereikt (~108-9 kolonievormende eenheden [CFU]), verwijder dan 100 μL uit de bacteriecultuur en verdun in 900 μL steriel PBS. Centrifugeer gedurende 1 minuut bij 14.000 × g om de bacteriële korrel te wassen en de LB-bouillon te verwijderen. Verwijder de supernatant, suspendeer de bacteriële pellet opnieuw in steriel PBS en verdun 1:10.000 in steriel PBS (tot 102-3 CFU).
- Desinfecteer alle tips en containers die zijn blootgesteld aan bacteriën voordat u ze weggooit.
- Anesthesie
- Op E16.5 verdooft u zwangere muizen door inademing van isofluraan (5% voor inductie, 1,5% voor onderhoud in zuurstof). Breng de anesthesiestroom en vervolgens het dier over naar de neuskegel, waarbij het vrouwtje in buikligging wordt geplaatst. Bevestig de anesthesie via de afwezigheid van een teenknijpreflex en houd het isofluraan op het minimumpercentage dat nodig is voor de procedure.
LET OP: Isofluraan is een oog- en huidirriterende stof en giftig voor het centrale zenuwstelsel. Draag de juiste persoonlijke beschermingsmiddelen. Gebruik altijd een opruimsysteem. - Dien 20 μl E. coli in de midlogaritmische fase (1 × 10²-3 CFU gesuspendeerd in steriel PBS) of steriel PBS (mediumcontrole) toe in de vagina met behulp van een steriele pipetpunt van 200 μl (figuur 1). Breng met behulp van een verse, steriele pipetpunt van 200 μL 20 μL 20% Pluronic gel F127 gel in de vagina om bacteriële lekkage te voorkomen. Dep met steriel gaasje kininepoeder op de introïtus om te voorkomen dat de muizen de bacteriële suspensie reinigen. Noteer de datum en tijd van de behandeling.
OPMERKING: De gebruikte CFU waren gebaseerd op titratie-experimenten om het gewenste fenotype te bereiken (vroeggeboorte met levende pups). CFU kan worden bepaald door seriële verdunningen uit te voeren en te plateren op LB-agarplaten29. - Dieren afzonderlijk opsluiten in individueel geventileerde kooien (IVC) en ze de kans geven om te herstellen van de anesthesie voordat de kooi weer naar de wachtruimte wordt teruggebracht; Markeer de kooi duidelijk als een biologisch gevaar. Houd de dieren in de gaten totdat hun normale gedrag is hervat.
OPMERKING: Deze procedure duurt niet langer dan 5 minuten en de dieren moeten snel herstellen (binnen 2-5 minuten).
- Op E16.5 verdooft u zwangere muizen door inademing van isofluraan (5% voor inductie, 1,5% voor onderhoud in zuurstof). Breng de anesthesiestroom en vervolgens het dier over naar de neuskegel, waarbij het vrouwtje in buikligging wordt geplaatst. Bevestig de anesthesie via de afwezigheid van een teenknijpreflex en houd het isofluraan op het minimumpercentage dat nodig is voor de procedure.
- Meting van zwangerschapsuitkomsten
- Stel CCTV in door één camera aan de buitenkant van elke kooi te bevestigen om de muizen te controleren op tekenen van bevalling en bevalling van de pup. Noteer de tijd tot de bevalling als het aantal uren vanaf het moment van intravaginale toediening van E. coli of PBS (stap 1.2.2) tot de bevalling van de eerste jong.
- Noteer het aantal levende/dode pups bij de bevalling en bereken een overlevingspercentage per nest. Observeer de moeder en pups dagelijks, registreer de overleving van de pups tot 7 postnatale dagen en zorg voor het herstel van de moederdieren. Neem in deze periode andere metingen, zoals het gewicht en de lengte van de pup.
OPMERKING: Signalen van bevalling zijn onder meer verhoogde verzorging, rondjes draaien en hun achterpoten strekken en schoppen. Aangezien dit een levende bacteriële infectie is, zullen de moederdieren na verloop van tijd (meestal 24 uur na de behandeling) symptomen ontwikkelen. Het vrouwtje zou moeten herstellen van de infectie, maar als ze na de bevalling nog steeds symptomen van infectie vertoont, geen nest heeft gebouwd of haar pups binnen de eerste dag heeft gevoerd, offer de dieren dan op humane wijze met behulp van Schedule 1-methoden (zoals blootstelling aan CO2 in een stijgende concentratie en bevestiging van de dood door cervicale dislocatie).
- Bioluminescentie beeldvorming
- Na bacteriële inoculatie worden de vrouwtjes om 24 uur en 48 uur in beeld gebracht om de verspreiding van de infectie te volgen, zoals hieronder beschreven. Stel de pups op de postnatale dag (P)0 tot P14 in beeld zonder dat er verdoving nodig is.
- Klik na het openen van de beeldverwerkingssoftware op Initialiseren en wacht tot de camera op bedrijfstemperatuur is (de temperatuurbalk wordt groen en "vergrendeld"). Vink het vakje voor lichtgevende beeldvorming aan en controleer of het excitatiefilter is ingesteld op Blokkeren en het emissiefilter op Open.
- Verdoof volwassen vrouwtjes door isofluraan in te ademen (5% voor inductie, 1,5% voor zuurstofonderhoud). Plaats de dieren in rugligging in de bioluminescentiebeeldvormingsmachine (met een verwarmde trap) met behoud van de verdoving van de muizen. Selecteer Automatische belichtingstijd of stel de belichtingstijd handmatig in (belichtingsbereik: 1 min - 5 min). Breng de dieren na de beeldvorming terug naar hun kooien om te herstellen van de anesthesie voordat u ze terugbrengt naar de wachtkamer.
- Om de fotonstraling kwantitatief te meten, selecteert u interessegebieden (ROI's) op de muisafbeeldingen en registreert u de fotonen per seconde per centimeter in het kwadraat per steradiaal (fotonen∙ (seconde-cm2)-1∙sr-1).
2. Analyses van foetaal en neonataal weefsel
- Perinatale weefselverzameling
- Offer op E18.5 de dam op door blootstelling aan stijgende CO2 -concentratie en bevestiging van de dood door cervicale dislocatie en voer een mini-laparotomie uit om de baarmoeder te verwijderen; Maak vervolgens met een schaar een incisie in de baarmoeder.
- Als u vruchtwater opvangt, maak dan een kleine incisie in de vliezen en vang de vloeistof op met een pasteurpipet of een naaldloze spuit.
- Houd met een tang met één hand de buitenkant van de baarmoeder vast op het punt waar de placenta is bevestigd en, met een gebogen tang in de andere hand, maak de placenta voorzichtig los van de binnenste baarmoederwand door de weefsels uit elkaar te plagen, waarbij u de foetus, met de vliezen en placenta bevestigd, voorzichtig uit de baarmoeder leidt. Nogmaals, met een tang in elke hand, houd de placenta voorzichtig naar beneden en pak en pluk de vliezen op het punt waar ze de placenta raken (zorg ervoor dat deze netjes loskomen).
- Nu de weefsels zijn gescheiden, verzamelt u de vereiste zwangerschapsweefsels (bijv. baarmoeder, placenta, foetale vliezen, baarmoederhals en vagina) en ontleedt u foetale weefsels (bijv. hersenen, longen en darmen).
- Vries de weefsels onmiddellijk in op droogijs of in vloeibare stikstof en/of fixeer weefsels in paraformaldehyde (PFA; 4% in PBS).
- Bewaar ingevroren weefsel bij -80 °C en fixeer de tissues gedurende 24-48 uur; Bewaar vervolgens 30% sucrose bij 4 °C.
LET OP: PFA is ontvlambaar en kan irritatie van de ogen, huid en luchtwegen veroorzaken. Bereid 4% -oplossing in een bioveiligheidskast en draag geschikte persoonlijke beschermingsmiddelen bij het hanteren.
- Postnatale weefselafname
- Verdoof de pups op P7 met isofluraan (5% voor inductie, 1,5% voor zuurstofonderhoud).
- Voer verbloeding en weefselperfusie uit door het rechteratrium in te snijden en injecteer 10 ml PBS in de linker hartkamer. Onthoofd het karkas en verwijder de hersenen en longen met behulp van een steriele schaar en tang. Verwerk en bewaar weefsel zoals hierboven beschreven.
OPMERKING: Maternale en foetale snap-frozen weefsel kunnen worden geanalyseerd op ontstekings- en andere mediatoren door middel van qPCR, ELISA en western blot. Protocollen voor deze technieken zijn direct verkrijgbaar bij de fabrikanten van reagentia of in andere publicaties 25,30,31.
- Cryosectie van foetale en neonatale hersenen
- Verwijder met een mes het cerebellum om een plat oppervlak te creëren en bevries het weefsel op droogijs. Monteer het bevroren weefsel op de preparaathouder met behulp van een optimale snijtemperatuur (OCT) en bedek het weefsel met een dunne laag OCT. Laat 1-2 minuten invriezen.
- Gebruik een cryostaat die is ingesteld op -20 °C, zorg ervoor dat de hendel is vergrendeld en laad de preparaathouder. Pas de positie van het weefsel nauwkeurig aan en vergrendel deze op zijn plaats. Snijd het weefsel bij en begin met het verzamelen van weefselsecties op microdia's uit de fusie van het corpus callosum, waarbij de secties onmiddellijk op droogijs worden bevroren. Snijd 50 seriële secties van 40 μm van elk weefsel.
LET OP: Wees voorzichtig met het scherpe mes. - Bewaar de bevroren secties op microglaasjes bij -80 °C.
- Immunohistochemie
OPMERKING: Het onderstaande protocol kan worden gebruikt om astrocyten te identificeren (gliaal fibrillair zuur eiwit; GFAP), microglia (allotransplantaat ontstekingsfactor 1; IBA-1) en neutrofielen (lymfocytenantigeen 6 familielid G; Ly6G). Informatie over antilichamen is te vinden in Tabel 1.- Selecteer vijf secties per brein, 400 μm uit elkaar, waarmee verschillende hersengebieden op verschillende diepten van de hersenen kunnen worden beoordeeld. Rehydrateer bevroren delen met een druppel dH2O en verdeel en ontvouw het weefsel met behulp van twee fijne borstels. Droog de tissue 20-30 minuten onder een ventilator. Gebruik een hydrofobe (PAP) pen om voorzichtig rond het weefsel te tekenen zonder het aan te raken.
- Bereid op dag 1 4% formaldehyde (FA) door 5,4 ml formaldehyde toe te voegen in 50 ml 0,1 M fosfaatbuffer (PB) voor één cuvet van 50 ml (15 glijcapaciteit). Dompel de objectglaasjes 5 minuten onder in FA om de cryosecties te fixeren, waardoor hechting aan de objectglaasjes mogelijk is en om antigenen te immobiliseren.
LET OP: FA is ontvlambaar en kan oog-, huid- en ademhalingsirritatie veroorzaken. Bereid een 4%-oplossing voor in een bioveiligheidskast en draag geschikte persoonlijke beschermingsmiddelen bij het hanteren. - Bereid 0,1% runderalbumineserum (BSA) door 0,4 g BSA toe te voegen aan 400 ml 0,1 M PB. Was de secties 2x door ze onder te dompelen in 0,1 M PB, gevolgd door één wasbeurt in BSA (~3 s per wasbeurt). Dia's opbergen in
cuvetten met BSA tot nodig. - Bereid de vochtigheidskamers voor door tissuepapier nat te maken met dH2O en plaats deze in de kamer, waarbij u het overtollige water aftapt.
- Bereid 5% geitenserum (50 μL geitenserum in 1 ml 0,1 M PB). Droog het objectglaasje rond het weefselgedeelte voorzichtig af met tissuepapier, zorg ervoor dat de rand van de PAP-pen intact is, en breng vervolgens 50 μL van de oplossing per weefselsectie aan. Incubeer gedurende 30 minuten in de vochtigheidskamer.
- Verwijder het serum door met het objectglaasje op schoon tissuepapier te tikken en voeg het primaire antilichaam toe dat is verdund in BSA (antilichamen en verdunningen worden weergegeven in tabel 1). Incubeer 's nachts bij 4 °C.
- Incubeer op dag 2 het secundaire antilichaam in muizenserum (zie tabel 1) gedurende 30 minuten bij 37 °C en voeg toe aan BSA (verdunning 1:100) (bijv. 5 ml BSA + 100 μl muizenserum + 50 μl secundair antilichaam).
- Was de objectglaasjes 2x door ze (~3 s) onder te dompelen in BSA en daarna één keer in 0,1 M PB. Houd de objectglaasjes in cuvetten met BSA en dep de rand rond elk weefselgedeelte droog. Breng 50 μL van de secundaire antilichaamoplossing per weefselsectie aan en incubeer gedurende 1 uur in de vochtigheidskamer.
- Bereid avidine biotinecomplex (ABC) (0,1% verdunning) door 10 μL A en 10 μL B toe te voegen in 1 ml 0,1 M PB. Dompel de dia's 2x (~3 s) onder in BSA en eenmaal in 0,1 M PB, plaats de dia's vervolgens in een cuvet met 0,1 M PB. Dep de glaasjes droog, breng 50 μL ABC-oplossing per glaasje aan en incubeer gedurende 1 uur in de vochtigheidskamer.
- Bereid diaminobenzidine (DAB) -oplossing. Weeg 25 mg DAB per cuvet af, los op in 50 ml 10 mM PB en filtreer met filtreerpapier nr. 4.
LET OP: DAB is een gevaar voor de gezondheid met mogelijke mutageniteit en carcinogeniteit in geslachtscellen. Draag de juiste persoonlijke beschermingsmiddelen en gooi ze veilig weg. - Was de objectglaasjes 3 x 3 s met 10 mM PB en plaats ze in cuvetten met 10 mM PB. Voeg waterstofperoxide (H2O2) toe aan de DAB-oplossing voordat u de oplossing onmiddellijk in verse cuvetten giet (16,7 μL H2O2 per cuvet). Verplaats de objectglaasjes in de DAB-cuvetten en laat ze ~3 minuten (maximaal 5 min) staan, terwijl u constant de intensiteit van de vlekken onder de microscoop controleert.
LET OP: H2O2 kan ogen, huid en keel irriteren. Draag de juiste persoonlijke beschermingsmiddelen. - Was de objectglaasjes (3 s) eenmaal in 10 mM PB en 2x in dH2O en laat de objectglaasjes drogen. Dompel de droge objectglaasjes 3x onder in xyleen. Breng een druppel DPX-montagemedium aan op een dekglaasje en plaats het over het weefselgedeelte, zorg ervoor dat er geen luchtbellen ontstaan.
LET OP: Xyleen en DPX zijn ontvlambaar en kunnen irritatie van ogen, huid en luchtwegen veroorzaken. Hanteer in een bioveiligheidskast en draag altijd handschoenen bij het hanteren.
- Nissl kleuring
- Rehydrateer en verdeel op dag 1 het weefsel in dH2O. Bereid 4% FA voor door 5,4 ml FA toe te voegen in 50 ml 0,1 M PB en gebruik onmiddellijk. Incubeer de dia's 's nachts in 4% FA.
- Verplaats op dag 2 de dia's van 4% FA naar 70% ethanol (EtOH) en incubeer ze een nacht.
- Bereid de Nissl-kleuring voor door 4 g Cresyl Violet op te lossen in 40 ml 100% EtOH in een gesloten conische buis van 50 ml. Keer 15 minuten om, voeg de oplossing toe aan 360 ml warme dH2O en meng 20 minuten op een roerplaat. Filtreer de oplossing voor gebruik.
- Volg op dag 3 de kleuringsprocedure zoals beschreven in tabel 2 en bedek de weefselcoupes met DPX.
- Terminaal deoxynucleotidyltransferase dUTP nick end labeling (TUNEL)
- Rehydrateer en verspreid het weefsel in dH2O en incubeer de objectglaasjes vervolgens gedurende 5 minuten in 4% FA. Verplaats de glaasjes in een oplossing van H2O2 en methanol (CH3OH) (1:10) en incubeer gedurende 15 minuten. Was de objectglaasjes 2 x 3 s in 0,1 M PB en plaats ze in cuvetten met 0,1 M PB.
- Bereid TUNEL-oplossing op ijs volgens de instructies van de fabrikant. Voeg de oplossing toe aan de objectglaasjes (50 μl per weefselsectie) en incubeer gedurende 2 uur in een vochtigheidskamer bij 37 °C.
- Bereid na 1 uur incubatie de ABC-oplossing zoals beschreven in stap 2.4.9 en incubeer bij kamertemperatuur.
- Verplaats de objectglaasjes na 2 uur gedurende 10 minuten in de TUNEL STOP-oplossing (300 mM NaCl, 30 mM natriumcitraat) en dompel de dia's 3 x 3 s onder in 10 mM PBS-oplossing. Incubeer de objectglaasjes gedurende 1 uur in ABC-oplossing.
- Bereid kobaltsulfaat (1,55 g watervrij CoSO4 in 100 ml dH2O) en nikkelchloride-hexahydraat (2,38 g NiCl2,6H 2O in 100 ml dH2O). Bereid DAB Co-Ni-oplossing (10 mM PB + 25 mg DAB + 1 ml/100 ml Co + 1 ml/100 ml Ni). Filtreer de oplossing onder vacuüm en bewaar deze in het donker. Voeg direct voordat u de DAB-oplossing in de cuvetten giet 16,7 μL H2O2 per cuvet van 50 ml toe.
- Verplaats de objectglaasjes na 1 uur in de DAB-cuvetten en incubeer gedurende ~3 minuten bij kamertemperatuur, waarbij u constant controleert op kleurintensiteit. Stop de reactie door de schuiven naar cuvetten met 10 mM PB te verplaatsen. Was door 2 x 3 s onder te dompelen in dH2O en laat de weefselsecties drogen voordat u ze met DPX bedekt.
- Hematoxyline- en eosinekleuring (H&E)
- Rehydrateer en verdeel het weefsel in dH2O en laat de secties aan de lucht drogen.
- Dompel de glaasjes 2 minuten onder in hematoxyline.
LET OP: Hematoxyline kan oog- en huidirritatie veroorzaken. Draag de juiste persoonlijke beschermingsmiddelen. - Spoel de dia's 5 minuten af in stromend kraanwater, ontkleur ze 1 s in zure alcohol en spoel ze af met kraanwater.
- Tegenkleuring in 0,5% eosine (1,5 g opgelost in 300 ml 95% EtOH) gedurende 30 s.
LET OP: Eosine is ontvlambaar en kan oog- en huidirritatie veroorzaken. Bereid de oplossingen voor in een bioveiligheidskast en draag geschikte persoonlijke beschermingsmiddelen. - Dehydrateer de weefselcoupes in een gradiënt van EtOH: 50%, 70%, 95% en tenslotte 100% EtOH, elk gedurende 3 minuten. Verplaats de glaasjes 2 x 5 minuten in xyleen. Dekglaasje met DPX.
3. Histologie en immunohistochemie beoordelingen voor neuropathologie en longbeschadiging
OPMERKING: Beoordelingen kunnen worden uitgevoerd op de volgende regio's: cortex, pyriforme cortex, externe capsule, striatum, hippocampus en thalamus (Figuur 2). Voor E18.5-hersenen kan het corpus callosum ook worden opgenomen, aangezien de differentiatie van cellen nog niet volledig is en gliacellen nog niet naar alle hersengebieden zijn gemigreerd. De beoordelaar moet blind zijn voor de behandelingsgroepen.
- TUNEL+ celdood
- Tel met een conventionele microscoop de cellen die positief zijn voor TUNEL-kleuring bilateraal met een vergroting van 20x in alle hersengebieden (Figuur 2).
- Beoordeel drie willekeurig geselecteerde optische velden per hersengebied en bereken het gemiddelde aantal cellen per hersengebied.
- Nissl morfologie beoordeling
- Leg beelden van het hele weefsel vast met een kleurencamera met een vergroting van 1x en sla ze op als een TIFF-bestand of een ander gewenst formaat. Importeer de afbeeldingen naar ImageJ voor verdere analyse.
- Geef een overzicht van de interessegebieden van de hersenen (bijv. cortex en hippocampus) en meet met behulp van de tool uit de vrije hand (Figuur 2).
- Om de weefselmeting te verkrijgen, past u de formule toe: (mm 2 × 400 μm) = volume × 100 (herzien32).
- Microgliale vertakkingsindex
- Met behulp van een microscoop met een vierkant raster van 0,049 mm x 0,049 mm telt u bij een vergroting van 40x het aantal IBA-1+ -cellichamen binnen het raster (C) en het gemiddelde aantal vertakkingen dat de rasterlijnen kruist (B). Voer dit uit in drie willekeurig geselecteerde velden (zie Figuur 3) voor elk hersengebied dat wordt weergegeven in Figuur 2.
- Gebruik de formule (B2/ C) om de microgliale vertakkingsindex te berekenen.
- Optische helderheid voor de intensiteit van de GFAP-kleuring
- Met behulp van de software waarnaar wordt verwezen (Table of Materials) en een kleurencamera met een vergroting van 40x, legt u drie willekeurig geselecteerde velden per hersengebied vast (Figuur 2). Druk op Ctrl+H om een histogram te krijgen dat het gemiddelde en de standaarddeviatie (SD) weergeeft. Noteer het gemiddelde en de SD-waarden in een werkblad. Maak alleen een controlebeeld van het omringende glas (d.w.z. geen weefsel) en noteer de gemiddelde en SD-waarden zoals voorheen
- Gebruik de volgende formule om de optische helderheidswaarden (OLV) in een spreadsheet te berekenen:
OLV = (gemiddelde van het glas − standaarddeviatie van het glas) − (gemiddelde van [gemiddelde per afbeelding − standaarddeviatie per afbeelding])
OPMERKING: Bijvoorbeeld:
Omringend glas
Gemiddelde ± SD = 143,5 ± 8,56
Hersengebied (bijv. cortex)
1. 136,7 ± 10,6
2. 140,6 ± 10,4
3. 137,4 ± 11,3
OLV = (143,5 - 8,56) - (gemiddelde van [136,7 - 10,6], [140,6 - 10,4], [137,4 - 11,3])
OLV = 134,94 - 127,47
OLV = 7,47 - Gemiddelde van elke waarde per regio, per dier en vervolgens per experimentele groep.
- Beoordelingen van de longmorfologie
- Leg H&E-secties vast met een vergroting van 40x (drie optische velden per dia, meet luchtruimten per veld), sla ze op als TIFF (of gelijkwaardig) en importeer afbeeldingen in ImageJ. Selecteer willekeurig velden die representatief zijn voor het hele longgedeelte.
- Schets met het gereedschap uit de vrije hand de luchtruimen en noteer de meting (Figuur 4A). Zoek het gemiddelde van drie luchtruimen per veld, dan tussen de drie velden per sectie en uiteindelijk tussen de drie secties per monster.
- Instroom van neutrofielen in de longen
- Maak voorbeeldfoto's met een kleurencamera met een vergroting van 40x, driemaal per longweefselsectie, en sla het originele bestand op als een TIFF-bestand of een ander gewenst formaat. Importeer de afbeeldingen naar ImageJ en tel handmatig individuele neutrofielen in drie velden van dezelfde long. Bereken het gemiddelde van neutrofielen per long.
Resultaten
Dit protocol presenteert een muismodel van oplopende vaginale infectie en beschrijft methoden voor het beoordelen van neonatale neuropathologie en respiratoire uitkomsten. De procedure om een oplopende vaginale infectie te induceren moet snel zijn (binnen 5 minuten) en muizen zouden binnen een paar minuten moeten herstellen. Moeders ontwikkelden symptomen van infectie na ongeveer 24 uur25. Dit omvat langzame beweging, pilo-erectie en een gebogen houding. De geschatte gemiddelde bevallingstijd bij de geïnfecteerde muizen was 40,3 uur na toediening van E. coli (PBS-controlegroep gemiddeld 52,7 uur), optredend op E18,5 in vergelijking met termijntoediening van de PBS-controlegroep op E19,531. Het percentage levend geboren pups per nest was verminderd (van 100% naar 71,4%) met infectie, evenals hun overleving meer dan 7 dagen postnataal (Figuur 5)25. Wanneer bioluminescente bacteriën worden gebruikt, kan beeldvorming de verspreiding van infectie bij moeders en pups volgen. Bacteriën werden waargenomen in de baarmoeder, foetale vliezen, placenta en bij sommige foetussen binnen 18 uur na toediening (Figuur 6), en ontstekingsmediatoren, gemeten met qPCR en ELISA, werden opgereguleerd in deze weefsels, evenals in de perinatale pupweefsels, zoals de hersenen, longen en darmen 25,29,31.
Een reeks neuropathologische beoordelingen, zoals het beoordelen van morfologie, celdood, microgliale activering en activering van astrocyten, werd uitgevoerd op de foetussen en pasgeborenen met behulp van histologie en immunohistochemie 25,31,33. Longweefsel kan ook worden geëvalueerd (Figuur 4 en Figuur 7). Positieve kleuring voor TUNEL suggereert DNA-degradatie, een later stadium van celdood34. We zien een significante toename van TUNEL-kleuring in de cortex, pyriforme cortex, externe capsule, hippocampus en de thalamus in de hersenen van pups die tijdens de zwangerschap zijn blootgesteld aan E. coli-infectie (Figuur 8A,B)31. IBA-1-gelabelde microglia, de residente immuuncellen van de hersenen, kunnen worden gecategoriseerd op basis van hun morfologische toestand, waarbij vertakking een rustfenotype suggereert, terwijl geactiveerde en fagocytische cellen amoeboïde of afgerond van vorm worden35. Daarom presenteren we, in plaats van microgliacellen te kwantificeren, een strategie om hun fenotype te beoordelen als een indicatie van hun toestand. We zien een toename van IBA1+ vertakking in de externe cortex en het striatum van E. coli pups, vergeleken met de PBS-groep (Figuur 8C,D)31. GFAP-gelabelde reactieve astrocyten, die in verband kunnen worden gebracht met ontsteking en neurologisch letsel, waren verhoogd in de pyriforme cortex en de externe capsule bij E. coli-pups (Figuur 8E,F)31,36,37. Nissl-kleuring maakt het mogelijk om grove morfologische veranderingen in de structuur van de hersenen te beoordelen; Cresylviolet is een standaard histologische kleuring voor neuronen en labelt zowel extra nucleaire RNA-korrels als celkernen. In de E. coli-groep zien we een verminderde dikte van de cortex (Figuur 9)31. Op dezelfde manier maakt H&E, die respectievelijk de kern en het cytoplasma van cellen kleuren, het mogelijk om de longmorfologie te beoordelen (Figuur 4)31. We zien een toename van het luchtruim bij muizen die zijn blootgesteld aan E. coli, evenals een toename van het aantal Ly6G+-neutrofielen, een indicatie van ontsteking (Figuur 7)31.
Voor gegevensanalyses werd de tijd tot levering geanalyseerd door een ongepaarde t-toets als de gegevens normaal verdeeld waren. Voor de percentagegegevens voor levend geboren pups was eerst een arcsinus vierkantsworteltransformatie nodig om een verhoudingsverdeling (begrensd door het bereik van 0 tot 1) om te zetten in een normale verdeling, wat een van de vereisten is om een t-toets te kunnen uitvoeren. De overleving van de pup werd geanalyseerd door middel van een Log-rank (Mantel-Cox) test. Voor histologie en immunohistochemie werden ofwel de Mann-Whitney U-test of meerdere t-tests met de correctie van Welsh gebruikt, afhankelijk van het type gegevens en of ze normaal werden verdeeld. Voor voldoende statistische power raden we aan om minimaal vijf moederdieren per behandelingsgroep te gebruiken.
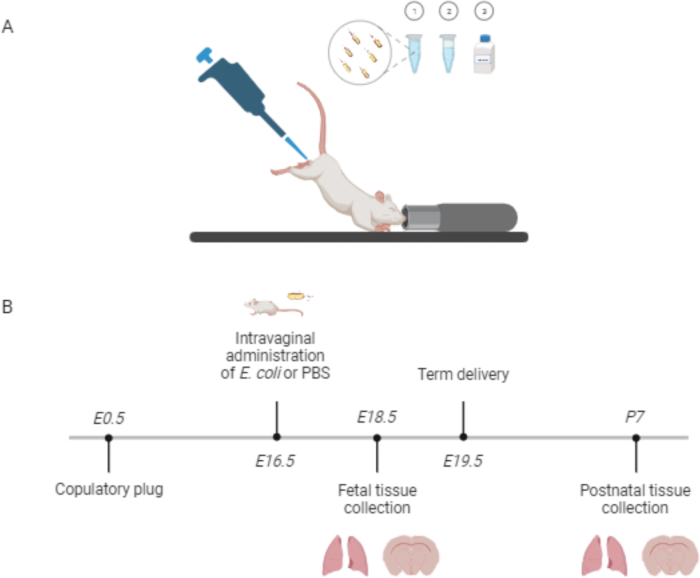
Figuur 1: Intravaginale toediening van Escherichia coli en de behandelingstijdlijn om vroeggeboorte en neonatale morbiditeit bij muizen te induceren. (A) E. coli [1], gevolgd door 20% Pluronische gel F127 [2], wordt in de vagina van de muis toegediend met behulp van een steriele pipetpunt van 200 μL. Kininepoeder wordt toegevoegd aan de introïtus [3]. (B) E. coli wordt op embryonale dag 16.5 in de vagina afgeleverd. Weefsels, zoals de longen en de hersenen, kunnen worden verzameld tijdens de foetale of neonatale periode. Afkorting: EN = embryonale dag N; PN = postnatale dag N; PBS = met fosfaat gebufferde zoutoplossing. Klik hier om een grotere versie van deze figuur te bekijken.
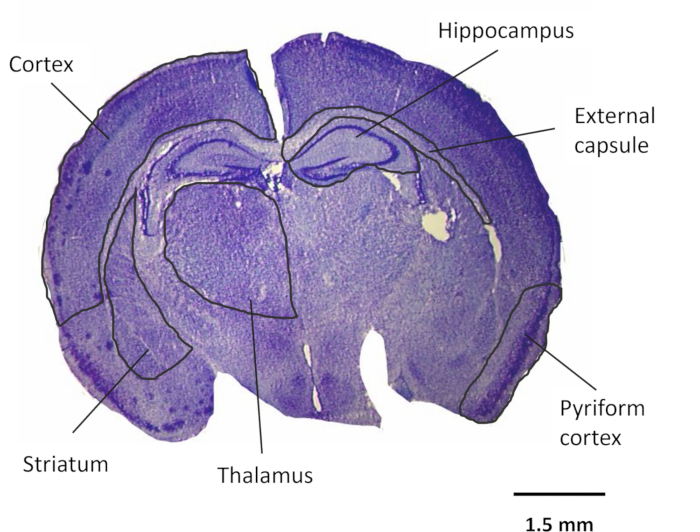
Figuur 2: Hersengebieden beoordeeld op neuropathologie. Een voorbeeld van Nissl-kleuring van de hersenen van een neonatale pup en de regio's die kunnen worden beoordeeld op neuropathologie. Alle hersengebieden kunnen worden beoordeeld op TUNEL, IBA-1 en GFAP. We hebben ervoor gekozen om de morfologie van de cortex en de hippocampus te beoordelen met behulp van Nissl. Vergroting: 1x. Schaal staaf = 1,5 mm. Afkortingen: TUNEL = terminaal deoxynucleotidyltransferase dUTP nick end labeling; IBA-1 = allotransplantaat ontstekingsfactor 1; GFAP = gliaal fibrillair zuur eiwit. Klik hier om een grotere versie van deze figuur te bekijken.
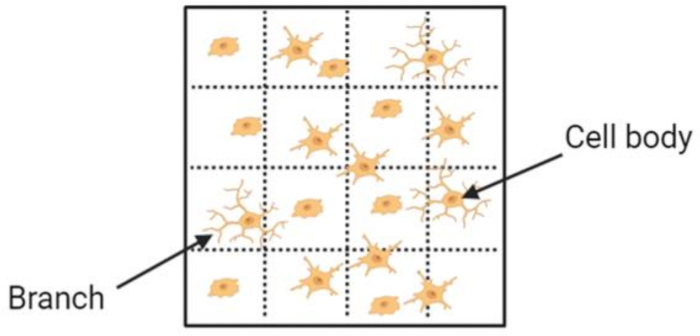
Figuur 3: Positieve beoordeling van de IBA-1-kleuring en vertakkingsindex. Om de vertakkingsindex van IBA-1+ -cellen te kwantificeren, telt u het aantal cellichamen binnen het raster en het gemiddelde aantal vertakkingen dat de horizontale en verticale rasterlijnen kruist. Afkorting: IBA-1 = allograft ontstekingsfactor 1. Klik hier om een grotere versie van deze figuur te bekijken.
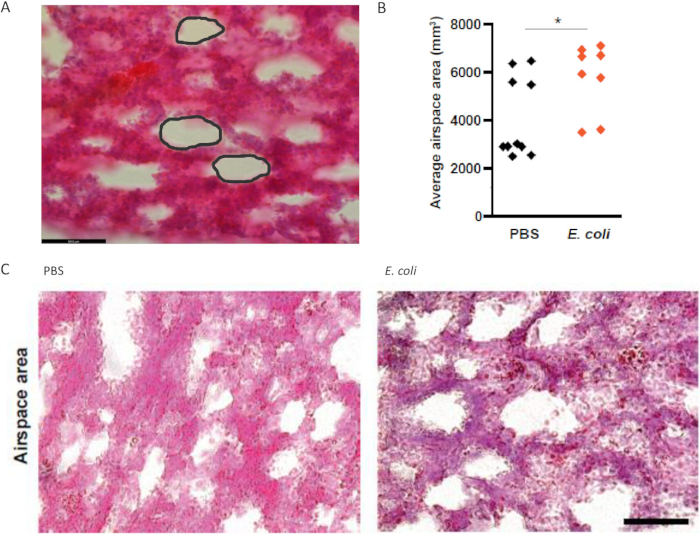
Figuur 4: Luchtruimmetingen in de longen van de pup (H&E-kleuring). (A) Schets de luchtruimen en meet met behulp van het gereedschap uit de vrije hand in AfbeeldingJ. (B) Het gemiddelde luchtruimoppervlak is groter bij pups die zijn blootgesteld aan E. coli in vergelijking met PBS. (C) Representatieve H&E-beelden van de longen van de jongen die in de baarmoeder zijn blootgesteld aan PBS en E. coli. Vergroting: 40x. Schaalbalk = 59,5 μm. Afkortingen: H = hematoxyline; E = eosine. n = 2 van 4 nesten. *P < 0,05. Deze figuur is een bewerking van Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
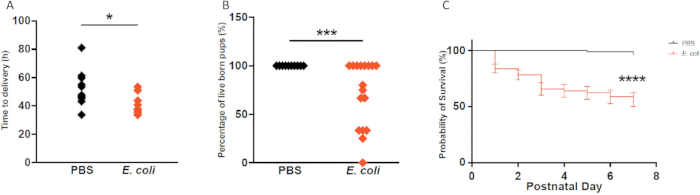
Figuur 5: Effecten van intravaginale E. coli op de tijd tot de bevalling en de overleving van de jongen. (A) De tijd tot de bevalling wordt verkort in aanwezigheid van E. coli. (B) Het percentage levend geboren jongen is significant verminderd en (C) de overleving van de jongen is verminderd bij aan E. coli blootgestelde jongen. Tijd tot levering: n = 8-10 nesten per groep; levend geboren pups: n = 10-17 nesten per groep; Overleving pup: N = 10-12 nesten per groep. *p < 0,05, ***p < 0,001. Deze figuur is een bewerking van Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
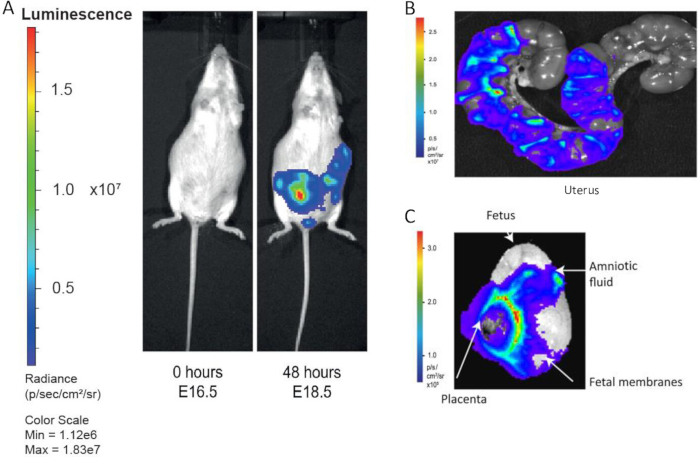
Figuur 6: Bioluminescentiebeeldvorming om de verspreiding van E. coli te monitoren. (A) Bioluminescente E. coli stijgt binnen 48 uur op vanuit de vagina naar de baarmoederhoorns. (B) Ontlede baarmoederhoorns vertonen binnen 18 uur infectie met E. coli , (C) net als de placenta en foetale membranen. Deze figuur is een bewerking van Suff et al.25 en Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
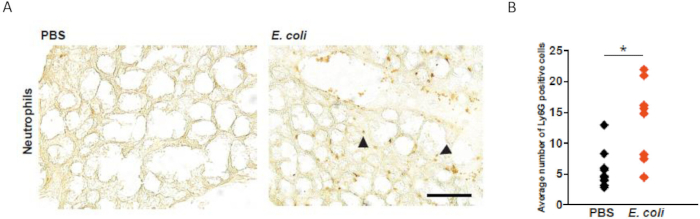
Figuur 7: Ly6G-kleuring voor neutrofielen in foetale longen. (A) Kleuring voor Ly6G (positief: pijlpunten), om de instroom van neutrofielen te beoordelen, bij aan PBS en E. coli blootgestelde foetussen. (B) Het gemiddelde aantal Ly6G+- cellen is significant verhoogd bij E. coli-foetussen . Vergroting: 40x. Schaalbalk = 59,5 μm. n = 10 uit 5 nesten per groep. *P < 0,05. Afkortingen: Ly6G = Lymfocytenantigeen 6 complexe locus G6D. Deze figuur is een bewerking van Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
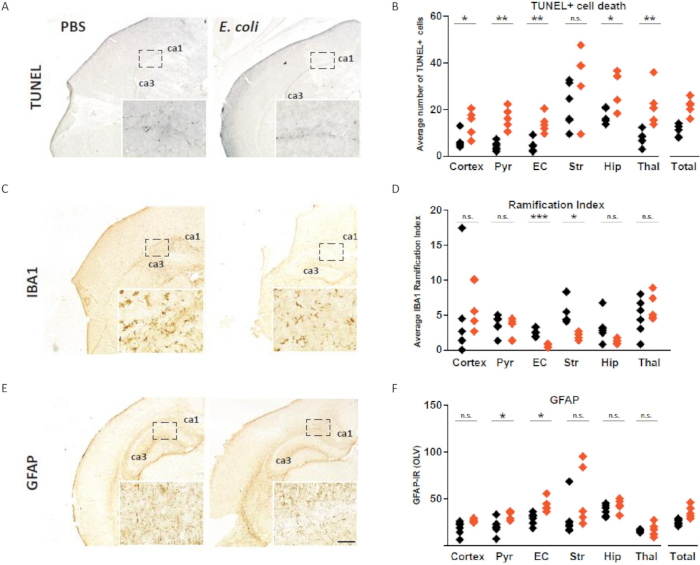
Figuur 8: Voorbeelden van TUNEL-, IBA1- en GFAP-kleuring. (A) TUNEL-kleuring voor celdood in de hersenen van postnatale pups die zijn blootgesteld aan PBS of E. coli. (B) Het gemiddelde aantal TUNEL+ -cellen is verhoogd in de cortex, pyriforme cortex, externe capsule, hippocampus en thalamus. (C) IBA1 immunohistochemie voor microglia in PBS- en E. coli-groepen . (D) De verloopsindex, als maat voor de activering van microglia, is verhoogd in het uitwendige kapsel en het striatum bij E. coli-jongen . (E) GFAP-kleuring voor astrocyten, (F) die verhoogd is in de pyriforme cortex en het externe kapsel bij E. coli-jongen . Schaal balk = 59,5 μm. Afkortingen: GFAP = gliaal fibrillair zuur eiwit; TUNEL = terminaal deoxynucleotidyltransferase dUTP nick end labeling; Pyr = Pyriforme cortex; EC = uitwendige capsule; Str = striatum; Heup = hippocampus; thal = thalamus; totaal = alle regio's; CA = cornu ammonis; OLV = optische helderheidswaarden. Immunohistochemische analyses: n = 5-7 uit 5 nesten per groep. *p < 0,05, **p < 0,01, ***p < 0,001, n.s. - niet-significant. Deze figuur is een bewerking van Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
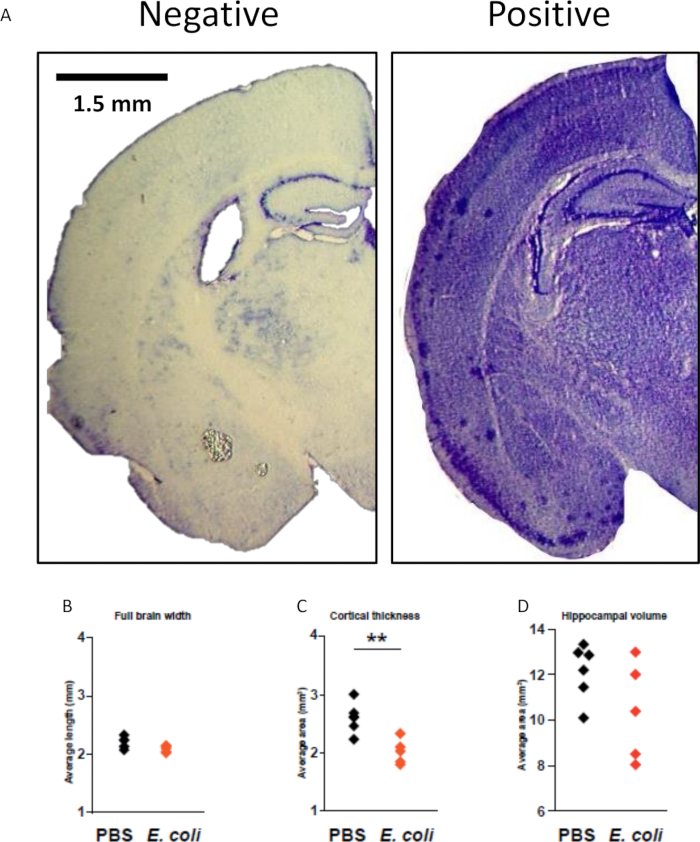
Figuur 9: Voorbeeld van positieve en negatieve Nissl-kleuring en morfologische beoordelingen. (A) Nissl-kleuring van de hersenen van postnatale pups om de weefselstructuur en morfologie te beoordelen. (B) Er is geen invloed op de hersenbreedte, maar (C) de corticale dikte wordt verminderd bij pups die worden blootgesteld aan E. coli. (D) Er is geen verschil in hippocampusvolume. Vergroting: 1x. Schaalbalk = 1,5 mm. n = 5-7 uit 5 nesten per groep. **p < 0,01. Deze figuur is een bewerking van Boyle et al.31. Klik hier om een grotere versie van deze figuur te bekijken.
| Primair antilichaam | Verdunning | Secundair antilichaam/verdunning | Verdunning |
| Konijn anti-GFAP | 1:6000 | Geit anti-konijn | 1:100 |
| Konijn anti-IBA1 | 1:1000 | Geit anti-rat | 1:100 |
| Muis anti-Ly6G | 1:1000 | Geit anti-konijn | 1:100 |
Tabel 1: Antilichamen voor immunohistochemie.
| Stap | Reagens | Tijd (min) |
| 1 | NISSL vlek | 10 |
| 2 | Vers gedestilleerd water | 2 |
| 3 | Vers gedestilleerd water | 2 |
| 4 | 70% Temperatuur | 2 |
| 5 | 90% EthOH | 2 |
| 6 | 96% Kwaliteit | 2 |
| 7 | 96% EtOH met 3-5 druppels ijsazijn | 2-5 (CONSTANT CONTROLEREN) |
| 8 | 100% EtOH | 2 |
| 9 | Isopropanol | 2 |
| 10 | Xyleen | 2 |
| 11 | Xyleen | 2 |
| 12 | Xyleen | 2 |
Tabel 2: Nissl-procedure.
Discussie
Hier beschrijven we de inductie van een nieuw muismodel van vroeggeboorte en neonatale morbiditeit via bacteriële vaginale ascensie. We kozen voor E. coli K1 omdat het een veel voorkomende oorzaak is van neonatale sepsis en meningitis en verticaal wordt overgedragen van de moeder op de foetus 38,39,40. De sleutel tot het succes van dit model is het gebruik van Pluronic thermosensitieve gel, die het lekken van de bacteriële suspensie uit de vagina voorkomt, waardoor infectie zich kan vestigen en naar de baarmoeder kan opstijgen. Aangezien dit model gebruik maakt van levende bacteriën die zijn afgeleid van een bloedvergiftigingsisolaat, is het van cruciaal belang om de dammen nauwlettend in de gaten te houden27. Als de dieren weigeren te bewegen of te eten of niet voor hun pups zorgen (bijv. het nestelen en voeren verwaarlozen), moeten ze onmiddellijk op humane wijze worden geofferd.
Meestal verdwijnen de symptomen van een infectie binnen 24 uur na de bevalling. Het is ook essentieel om te weten dat verschillende serotypen van E. coli en andere bacteriestammen verschillende effecten hebben op de zwangerschapsduur, de mate van infectie/ontsteking en de neonatale uitkomst. We stellen voor om voorbereidende dosisexperimenten uit te voeren met verschillende CFU's bij het gebruik van nieuwe bacteriële serotypen/stammen om de minimale concentratie te bepalen die nodig is voor het gewenste fenotype en om strikte humane eindpunten vast te stellen om lijden te voorkomen. Uiterste voorzichtigheid is geboden bij het afleveren van een levende ziekteverwekker; Laat de literatuur als leidraad dienen voor het juiste gebruik van deze organismen bij het modelleren van oplopende infectie.
De muizenstam is ook belangrijk, omdat hun immuunsysteem verschilt. De timing en CFU's die in dit model worden gebruikt, hebben bijvoorbeeld niet dezelfde resultaten wanneer ze worden uitgevoerd bij C57BL/6-muizen. We kozen ervoor om de C57BL/6 Tyrc-2J-muizen te gebruiken omdat experimenten met het tijdsverloop significant meer infectie in deze stam lieten zien in vergelijking met CD-1, BALB/c en C57BL/6. Bovendien zijn er aanwijzingen dat zwarte vacht bioluminescente signalen doven, wat een nuttige meetbare uitkomst is in dit model29. De optimale zwangerschapsdag voor bacteriële toediening kan ook verschillen per ziekteverwekker en muizenstam. Er is een enorme heterogeniteit in preklinische PTB-modellen; Daarom is het belangrijk om met deze variabelen rekening te houden om reproduceerbare resultaten te ontwikkelen17.
Een andere overweging is de tijdsduur dat de dieren worden blootgesteld aan anesthesie. Aangezien overmatige blootstelling tijdens de dracht in verband wordt gebracht met neurotoxiciteit bij pups, is het essentieel om de tijd die onder narcose wordt doorgebracht tot een minimum te beperken (bijv. maximaal 5 minuten) en om altijd controles op te nemen die zijn blootgesteld aan dezelfde omgeving en behandeld zijn met een mediumstof 41,42,43. Aanvullende controlegroepen die nuttig zijn voor dit model zijn onder meer onbehandelde, intravaginale toediening van alleen Pluronische gel en alleen anesthesie.
Immunohistochemie wordt veel gebruikt als een experimenteel hulpmiddel om verschillende eiwitten en cellen te identificeren, en het kan worden gebruikt om structuur en connectiviteit in de hersenen te karakteriseren. Hier beschrijven we hoe we sleutelcellen van het centrale zenuwstelsel kunnen analyseren die geassocieerd zijn met neuro-inflammatie en neurologisch letsel. We presenteren ook methoden om cellulaire apoptose en histologische kleuringen te beoordelen die nuttig zijn voor het meten van de morfologie van hersenen en longen. Belangrijke overwegingen om het succes van deze protocollen te garanderen, beginnen met het zorgvuldige gebruik van de PAP-pen; als de PAP-pen het weefsel raakt, zal de kleuring verdwijnen, maar als de parameter te breed is, kunnen de secties 's nachts uitdrogen. Evenzo moet de vochtigheidskamer vochtig worden gehouden om uitdroging van de secties te voorkomen.
Bij het uitvoeren van de Nissl-kleuring is de ijsazijnstap het meest kritisch; De secties moeten voortdurend worden gecontroleerd. Wanneer de belangrijkste structuren van de hersenen zichtbaar worden, moeten de secties onmiddellijk naar EtOH worden verplaatst om de reactie te stoppen. We hebben ervoor gekozen om de cortex en de hippocampus te beoordelen, aangezien een verminderde corticale dikte en een verminderd hippocampusvolume zijn gerapporteerd bij menselijke premature pasgeborenen en andere diermodellen, maar andere regio's kunnen worden beoordeeld op morfologische veranderingen 44,45,46,47. Er moet ook veel aandacht worden besteed aan de ontwikkeling van DAB-kleuring. Dit moet worden getimed en consistent worden gehouden tussen experimenten.
Gegevensanalyse is de meest voorkomende beperking van immunohistochemie vanwege de moeilijkheid om de resultaten te kwantificeren, die vaak als subjectief worden beschouwd. Hoewel GFAP-analyse wordt uitgevoerd met behulp van computerondersteunde optische helderheidsmetingen, kan inconsistente kleuring deze metingen beïnvloeden. Bovendien omvatten de beoordelingen van de hersenen en de longmorfologie handmatige metingen uit de vrije hand, afhankelijk van het oordeel van de waarnemer. Om inconsistentie te voorkomen, herhalen we deze beoordelingen twee keer en in een korte tijd. Om eventuele vooringenomenheid verder te verminderen, is het belangrijk dat de beoordelaar blind is voor de behandelgroepen. Lage immunoreactiviteit kan ook een beperkende factor zijn. Gebrek aan signaal kan erop wijzen dat het antigeen van belang afwezig is of dat dit te wijten kan zijn aan een protocolfout. Om dit aan te pakken, voegen we een weefselmonster toe dat waar mogelijk als positieve controle kan fungeren en herhalen we de kleuringsprocedure wanneer we een laag of afwezig signaal waarnemen om er zeker van te zijn dat dit niet het gevolg was van een experimentele fout.
Naast de beschreven protocollen kunnen immunologische analyses van de maternale weefsels, foetale weefsels en neonatale weefsels worden uitgevoerd door middel van qPCR en ELISA. We hebben verhoogde inflammatoire mRNA- en eiwitniveaus waargenomen bij dieren die zijn blootgesteld aan infectie 25,31,48. Onze hypothese is dat de neonatale neuropathologie die we histologisch aantonen, het gevolg kan zijn van foetale hersen-, long- en darmontsteking 25,31. Andere neuropathologische beoordelingen die we hebben uitgevoerd, zijn onder meer myeline-basisch eiwit (MBP) om myelinisatie te onderzoeken en NeuN om neuronale kernen te kleuren25,31. Daarnaast kunnen andere markers worden beoordeeld voor neutrofielen en microglia om het fenotype en het gedrag van deze cellen na blootstelling aan infectie in utero beter te begrijpen49,50. Daarnaast kunnen gedragstesten worden uitgevoerd om de langetermijnimpact op het nageslacht te bepalen.
Dit model is niet zonder beperkingen. Zo zien we variatie in pathologie zowel tussen als binnen nesten. Dit kan het gevolg zijn van het gebruik van een levende bacterie, waarbij de verspreiding van de infectie niet kan worden gecontroleerd. Bijgevolg variëren het patroon en het bereik van een oplopende infectie in de baarmoederhoorns en zijn ze vaak asymmetrisch. Een andere beperking is de pathogeniteit van de E. coli, waardoor de moederdieren soms te ziek worden om voor hun pups te zorgen. Muizen zijn ook niet het beste model voor longbeschadiging, omdat de alveologenese postnataal plaatsvindt, in plaats van prenataal, zoals bij mensen51. We slaagden er niet in om ons longweefsel op te blazen toen de monsters werden verzameld, wat van invloed kan zijn geweest op onze resultaten. Onze resultaten komen echter overeen met de veranderingen die zijn waargenomen in diermodellen met neonatale BPS52,53.
Dit model recapituleert de gepostuleerde menselijke conditie waarbij bacteriële infectie vanuit de vagina naar de baarmoeder opstijgt en een vroege bevalling stimuleert. Na onze eerste publicatie van dit model hebben anderen soortgelijke modellen gerepliceerd of geproduceerd, wat de reproduceerbaarheid en relevantie van deze methodologie verder benadrukt19,54. Cruciaal is dat dit model de veelvoorkomende morbiditeiten vertoont die worden ervaren door premature pasgeborenen, waar andere modellen hebben gefaald. Dit kan te wijten zijn aan het gebruik van een bacteriestam die specifiek wordt geassocieerd met neonatale sepsis. LPS, dat het meest wordt gebruikt om vroeggeboorte op te wekken in diermodellen, is dodelijk voor pups, dus neonatale uitkomsten kunnen niet worden gemeten18. Andere modellen van oplopende infectie hebben ook geworsteld met het produceren van overlevende pups of met het aantonen van neonatale morbiditeit 19,20,21,22,23,24,55,56. Klinisch relevante diermodellen, zoals degene die we beschrijven, zijn van fundamenteel belang voor het begrijpen van de pathofysiologie van vroeggeboorte en voor het ontwikkelen van innovatieve interventies die de neonatale uitkomsten zullen verbeteren.
Openbaarmakingen
De auteurs hebben geen relevante openbaarmakingen.
Dankbetuigingen
Escherichia coli K1 A192PP-luxABCDE werd vriendelijk geschonken door professor Peter Taylor, University College London. Figuur 1 en Figuur 3 zijn gemaakt in BioRender.com. Dit onderzoek werd ondersteund door de Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z (N.S.), Action Medical Research en Borne grant GN2647 (N.S., S.N.W. en D.P.); en Welzijn van vrouwen verlenen RG2365 (AKB, NS, MH, SNW en DP).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anti-GFAP, konijn | Agilent Technologies | Z033429-2 | |
| Anti-IBA1, konijn | Wako | 019-19741 | |
| Anti-Ly6G, muis | BioLegend | 127601 | |
| AVT-Horn 184 3CCD camera | Sony | ||
| Biotin-16-DUTP | Merck | 11093070910 | |
| Borosilicaatglas Rechthoekige dekglasjes | FisherScientific | 12363128 | |
| Cresyl Violet acetaat | ThermoFisher Scientific | 405760100 | |
| Cryostat CM1900 | Leica | ||
| Glas cuvet | Merck | BR472700 | |
| Diaminobenzidine (DAB) | Generon | 40480004-3 | |
| Dissectiepincet, roestvrij staal, 10 cm, gekarteld, gebogen | World Precision Instruments Ltd | 15915 | |
| Dissectiepincet, roestvrij staal, 10 cm, gekarteld, recht | World Precision Instruments Ltd | 15914 | |
| Dissectie schaar, 10 cm lang, recht | World Precision Instruments Ltd | 14393 | |
| DPX | Merck | 100579 | |
| Eosine | Sigma-Aldrich | HT110116 | |
| Formaldehydeoplossing 4% gebufferd | Merck | 100496 | |
| Geit Anti-Konijn IgG Antilichaam (H+L), Biotinyl | Vector Laboratories | BP-9100-50 | |
| Geit Anti-Ratten IgG Antilichaam (H+L), Biotinyl | Vector Laboratories | BA-9400-1.5 | |
| GraphPad Prism v.8 | GraphPad Software | ||
| H2O2 | Sigma-Aldrich | 7722-84-1 | |
| Hematoxylinen | Sigma-Aldrich | MHS16 | |
| ImageJ | National Institutes of Health | ||
| Isoflurane (IsoFlo) | Zoetis | 50019100 | |
| IVIS Lumina II In Vivo Imaging System/Living Image Software | Perkin Elmer/Revvity | ||
| Microslides | VWR | ISO8037/I | |
| Optimas 6.51 | Media Cybernetics Inc. | ||
| Paraformaldehyde | Sigma-Aldrich | 158127 | |
| Fosfaat-gebufferd zout (PBS) | Thermo Fisher Scientific (Life Technologies) | 14190094 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| Quinine | Scientific Laboratory Supplies | Q0132 | |
| ReadyProbes Hydrofobe Barrière Pap Pen | Thermo Fisher Scientific | R3777 | |
| Natriumhydroxide | Honeywell | S8045 | |
| Natriumfosfaat Monobasisch Anhydrous | FisherScientific | BP329-1 | |
| Sucrose | Merck | S9378 | |
| Terminal transferase | Merck | 3333574001 | |
| VECTASTAIN ABC-HRP Kit, Peroxidase | Vector Laboratories | PK-4000 | |
| Xyleen (histologisch niveau) | Sigma-Aldrich | 534056 |
Referenties
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
Herprints en machtigingen
