Dit artikel stelt een pijplijn op voor hoogwaardige eencellige en kernsuspensies van gastrulerende muizenembryo's voor sequencing van individuele cellen en kernen.
Methodenartikel
Single-cell RNA-sequencing van gemuteerde hele muizenembryo's: van de epiblast tot het einde van de gastrulatie
In dit artikel
Samenvatting
Samenvatting
In het afgelopen decennium zijn single-cell-benaderingen de gouden standaard geworden voor het bestuderen van de dynamiek van genexpressie, celheterogeniteit en celtoestanden in monsters. Vóór de vooruitgang van eencellige cellen was de haalbaarheid van het vastleggen van het dynamische cellulaire landschap en snelle celovergangen tijdens de vroege ontwikkeling beperkt. In dit artikel is een robuuste pijplijn ontworpen om eencellige en kernanalyse uit te voeren op muizenembryo's van embryonale dag E6.5 tot E8, wat overeenkomt met het begin en de voltooiing van gastrulatie. Gastrulatie is een fundamenteel proces tijdens de ontwikkeling dat de drie kiemlagen vastlegt: mesoderm, ectoderm en endoderm, die essentieel zijn voor organogenese. Er is uitgebreide literatuur beschikbaar over single-cell omics toegepast op wild-type perigastrulating embryo's. Analyse van eencellige cellen van gemuteerde embryo's is echter nog steeds schaars en vaak beperkt tot FACS-gesorteerde populaties. Dit is gedeeltelijk te wijten aan de technische beperkingen die verband houden met de noodzaak van genotypering, getimede zwangerschappen, het aantal embryo's met de gewenste genotypen per zwangerschap en het aantal cellen per embryo in deze stadia. Hier wordt een methodologie gepresenteerd die is ontworpen om deze beperkingen te overwinnen. Deze methode stelt fok- en getimede zwangerschapsrichtlijnen vast om een grotere kans op gesynchroniseerde zwangerschappen met de gewenste genotypen te bereiken. Optimalisatiestappen in het embryo-isolatieproces in combinatie met een genotyperingsprotocol op dezelfde dag (3 uur) maken het mogelijk om op microdruppels gebaseerde single-cell op dezelfde dag uit te voeren, waardoor de hoge levensvatbaarheid van cellen en robuuste resultaten worden gegarandeerd. Deze methode omvat verder richtlijnen voor optimale kernisolaties van embryo's. Deze benaderingen vergroten dus de haalbaarheid van eencellige benaderingen van mutante embryo's in het gastrulatiestadium. We verwachten dat deze methode de analyse zal vergemakkelijken van hoe mutaties het cellulaire landschap van de gastrula vormgeven.
Inleiding
Gastrulatie is een fundamenteel proces dat nodig is voor een normale ontwikkeling. Dit snelle en dynamische proces vindt plaats wanneer pluripotente cellen overgaan in afstammingsspecifieke voorlopers die bepalen hoe organen worden gevormd. Jarenlang werd gastrulatie lang gedefinieerd als de vorming van drie grotendeels homogene populaties: mesoderm, ectoderm en endoderm. Technologieën met een hoge resolutie en een opkomend aantal embryonale stamcelmodellen 1,2 onthullen echter een ongekende heterogeniteit tussen de vroege kiemlagen 3,4. Dit suggereert dat er nog veel meer moet worden ontdekt over de mechanismen die de verschillende celpopulaties van de gastrula reguleren. De embryonale ontwikkeling van muizen is een van de beste modellen geweest om vroege beslissingen over het lot van cellen tijdens gastrulatie te bestuderen 3,5. Gastrulatie bij muizen is snel, aangezien het hele proces van gastrulatie binnen 48 uur plaatsvindt, van embryonale dag E6.5 tot E85.
Recente ontwikkelingen in eencellige technologieën hebben het mogelijk gemaakt om de embryonale ontwikkeling van wildtype muizen gedetailleerd in kaart te brengen, waardoor een uitgebreid overzicht wordt gegeven van de cellulaire en moleculaire landschappen van embryo's tijdens gastrulatie 3,4,6,7,8. De analyse van mutante embryo's in deze stadia komt echter minder vaak voor en is vaak beperkt tot FACS-gesorteerde populaties 9,10. De schaarse literatuur weerspiegelt de technische uitdagingen die gepaard gaan met de manipulatie en eencellige voorbereiding van gastrulerende embryo's die genotypering vereisen. Het vastleggen van het dynamische proces van gastrulatie kan uitdagingen opleveren vanwege de snelle aard ervan, vooral voor het begrijpen van mutante embryo's. De timing en synchronisatie van zwangerschappen zijn essentieel, omdat zelfs kleine verschillen tussen getimede zwangerschappen verkeerd kunnen worden geïnterpreteerd als een ontwikkelingsfenotype dat het gevolg is van het gemuteerde gen. Dit wordt vooral belangrijk wanneer het gemuteerde gen het proces van gastrulatie beïnvloedt13,14. In deze studie worden richtlijnen opgesteld om gesynchroniseerde zwangerschappen te verkrijgen door visualisatie van vaginale pluggen (d.w.z. de massa gecoaguleerde zaadvloeistof die na de paring in de vagina van het vrouwtje wordt gevormd). Daarnaast is er een strategie ontworpen om robuuste eencellige gegevens te verkrijgen van mutante gastrulerende embryo's van E6.5 tot E8. Deze strategie is ontworpen om de beperkingen te overwinnen die verband houden met het lage aantal embryo's met het gewenste genotype per zwangerschap en de afname van de levensvatbaarheid veroorzaakt door het invriezen en ontdooien van embryo's of cellen.
Dit artikel beschrijft een geoptimaliseerde methodologie van het tot stand brengen van getimede zwangerschappen via vaginale pluggen tot de uiteindelijke sequentiebepaling van individuele cellen/kernen. Deze methode legt uit hoe het aantal gesynchroniseerde zwangerschappen kan worden verhoogd om een groter aantal embryo's met het gewenste genotype te verkrijgen, cel-/kernisolaties om de levensvatbaarheid van de cellen te verbeteren en een genotyperingsprotocol op dezelfde dag. Dit manuscript beschrijft ook het proces van embryo-isolatie op verschillende gastrulatietijdstippen. De methodologie helpt om het aantal uiteindelijk levensvatbare embryocellen/-kernen voor sequencing te verhogen, waardoor sequencinggegevens van hoge kwaliteit worden gegarandeerd. Daarom zal deze methode de deuren openen voor eencellige studies van gastrulerende embryo's die genotypering vereisen.
Protocol
Dit protocol en alle beschreven dierproeven zijn formeel goedgekeurd en in overeenstemming met de institutionele richtlijnen die zijn opgesteld door de Temple University Institutional Animal Care and Use Committee, die de internationale richtlijnen van de Association for Assessment and Accreditation of Laboratory Animal Care volgt. Alle beschreven muizen bevonden zich op de C57/BL6N-achtergrondstam. In deze onderzoeken werden geen problemen met de diergezondheid waargenomen.
1. Kweekkolonie en getimede zwangerschappen
- Time de zwangerschappen door de visualisatie van een vaginale plug. Het middaguur op de dag van de stekker wordt beschouwd als E0.5.
- Huismuizen in kooien met strooisel dat bestaat uit afgebroken hardhouten strooisel en papieren nestmateriaal.
- Elke kooi bevat muizenvoer, zoet water en een verrijkingsitem (bijv. tunnel en nestmateriaal). Volg en verzamel dagelijks kolonie-informatie tijdens het getimed fokken.
- Registreer alle informatie, zoals de leeftijd van de muis, het aantal zwangerschappen dat een vrouwelijke muis heeft gehad, het aantal pluggen dat door een mannelijke muis is geplaatst en het stadium van oestrus (Figuur 2) voor vrouwelijke muizen.
OPMERKING: Vrouwtjes die al 1-2 keer zijn bevallen, zullen bij toekomstige zwangerschappen grotere worpen krijgen.
- Voordat u met getimede zwangerschappen begint, huisvest u de mannelijke muis 1 week voor het fokken alleen in een kooi. Introduceer in de week van de start van de kweek minimaal 1 vrouwtje per mannetje in de kooi.
OPMERKING: Afhankelijk van het goedgekeurde dierprotocol kan het toevoegen van 2-3 vrouwtjes aan een fokkooi zijn toegestaan en heeft het de voorkeur om de pluggeneratie te vergroten. - Zet ten minste 4 foktrio's op (2 vrouwelijke muizen tot 1 mannetje) om de kans op gesynchroniseerde zwangerschappen in de kooien te vergroten (ook wel meerdere pluggen op dezelfde dag genoemd). Dit zal het aantal embryo's dat in hetzelfde ontwikkelingsstadium wordt geïsoleerd, vergroten.
- Regel de ideale paring in de middag of avond voor 5 uur, en vrouwtjes worden in de kooi van het mannetje geplaatst of vice versa. Als de kweek niet binnen 4-5 dagen plaatsvindt, overweeg dan om de dag van paringspartner te wisselen.
OPMERKING: Als u de volgende ochtend niet kunt controleren of er een vaginale plug is, scheid dan het broedpaar de avond ervoor (d.w.z. weekend/feestdagen). - Controleer elke dag in de vroege ochtend op vaginale pluggen; voor 9 uur 's ochtends heeft de voorkeur.
- Om te controleren op vaginale pluggen, tilt u de vrouwelijke muizen voorzichtig op aan de basis van de staart en observeert u de vaginale opening. Zoek naar een witte of crèmekleurige gelatineuze massa. Vaak kan de vaginale plug duidelijk zijn, maar als het onduidelijk is, neem dan een pincet en onderzoek voorzichtig de vaginale opening. Beschouw alleen de meer voor de hand liggende pluggen voor isolatie. Zie afbeelding 2C.
OPMERKING: Het is van cruciaal belang om zo vroeg mogelijk in de ochtend te controleren op vaginale pluggen om te voorkomen dat u een mogelijke zwangerschap mist. Pluggen kunnen er na 12 uur uitvallen of oplossen.
OPMERKING: Zelfs als er een plug wordt waargenomen, garandeert dit niet dat de vrouwelijke muis zwanger zal zijn. Als er een gedeeltelijke of geen plug wordt waargenomen, maar er is roodheid in de buurt van de vaginale opening van de vrouwelijke muizen, overweeg deze vrouwtjes dan niet voor isolatie, omdat de kans kleiner is dat de plug blijft plakken. De kans op zwangerschap na de paring varieert tussen muizenstammen en is afhankelijk van de fase van de oestrische cyclus tijdens de paring (Figuur 2).
- Om te controleren op vaginale pluggen, tilt u de vrouwelijke muizen voorzichtig op aan de basis van de staart en observeert u de vaginale opening. Zoek naar een witte of crèmekleurige gelatineuze massa. Vaak kan de vaginale plug duidelijk zijn, maar als het onduidelijk is, neem dan een pincet en onderzoek voorzichtig de vaginale opening. Beschouw alleen de meer voor de hand liggende pluggen voor isolatie. Zie afbeelding 2C.
- Zodra een vaginale plug wordt waargenomen, noteer je de dag. De middag van dezelfde dag dat de vaginale plug wordt waargenomen, wordt beschouwd als E0.5. Scheid de vrouwelijke muizen van de kweekkooi en isoleer de embryo's, afhankelijk van het gewenste stadium van gastrulatie.
OPMERKING: Deze methode biedt geen precieze timing voor het paren. Conventioneel wordt aangenomen dat de paring de voorafgaande nacht rond middernacht plaatsvindt. Bijgevolg worden embryo's beschouwd als een halve dag oud (E0,5) tegen het middaguur op de dag dat de vaginale plug wordt waargenomen.
2. Isolatie van muizenembryo's tijdens gastrulatie
- Voordat u met de isolatie van het embryo begint, bereidt u alle benodigde reagentia en apparatuur voor.
- Reinig het gebied grondig met 70% ethanol. Zorg ervoor dat alle dissectiehulpmiddelen (tang en schaar) zijn gewassen en gesteriliseerd. Verkrijg steriel 5 ml Dulbecco's Modified Eagle Medium (DMEM)/10% foetaal runderserum (FBS) en 20 ml DPBS-/- en leg op ijs.
- Voer alle isolaties uit met behulp van een stereomicroscoop met een doorvallend lichtstadium en een camera om te helpen bij grove ontwikkelingsfenotypering.
- Euthanaseer de zwangere muizenmoeder en start direct met de isolatie.
- Plaats het drachtige moederdier in een CO2 -kamer met het CO2 -debiet aangepast om 20% van het kooivolume per minuut te verplaatsen. Houd de muis nauwlettend in de gaten en bevestig de dood door de afwezigheid van ademhalingsbewegingen te observeren.
- Houd de CO2 -stroom nog 2 minuten vast na het ontbreken van ademhalingsbewegingen. Bevestig euthanasie door een cervicale dislocatie uit te voeren.
- Plaats de muizen in een normale staande positie op een stevige, vlakke ondergrond. Duw vervolgens, met de duim en wijsvinger van de ene hand tegen de achterkant van de nek aan de basis van de schedel, naar voren en naar beneden terwijl u naar achteren trekt met de andere hand die de staartbasis vasthoudt.
- Controleer de effectiviteit van dislocatie door de scheiding van de nekwervels te voelen. Wanneer het ruggenmerg wordt doorgesneden, is er een ruimte van 2-4 mm voelbaar tussen de occipitale condylen en de eerste halswervel.
OPMERKING: Euthanaseer niet meerdere drachtige moederdieren tegelijk, omdat de levensvatbaarheid van de cellen hierdoor wordt beïnvloed. Isofluoraan kan worden gebruikt als alternatief verdovingsmiddel indien goedgekeurd door de Institutional Animal Care and Use Committee (IACUC) of een gelijkwaardige instantie.
- Plaats de zwangere dam op haar rug en steriliseer het gebied bij de vaginale opening met ethanol.
- Til met een dissectieschaar en een pincet de huidplooi bij de vaginale opening op en maak een kleine V-vormige snee, waardoor langzaam de baarmoeder van de zwangere moeder zichtbaar wordt (Figuur 3 [gele pijl]).
- Ontleed de baarmoederhoorn van de zwangere moeder door het ene uiteinde ervan met een pincet vast te houden en erlangs te snijden, waarbij u ervoor zorgt dat u de baarmoederhals verwijdert. Plaats de baarmoederhoorn in een petrischaaltje van 10 cm met DPBS-/- op ijs (Figuur 3).
OPMERKING: Afhankelijk van het isolatiestadium van het embryo, zal de baarmoeder lijken op kleinere of grotere implantatieplaatsen (d.w.z. 'parels' aan een touwtje).
- Knip met een dissectieschaar en een pincet elke implantatieplaats ('parels') met de deciduale zwellingen erin af en plaats deze in verse DPBS-/- in een petrischaal van 6 cm op ijs (figuur 3).
OPMERKING: Een gemiddelde drachtige moeder heeft ongeveer 6-8 geïmplanteerde embryo's. - Neem een implantatieplaats en plaats deze op een nieuwe petrischaal van 6 cm bovenop de stereomicroscooptafel en voeg er 500 μL DPBS-/- aan toe. Pas de focus van de microscoop en de lichtbron aan (Figuur 3).
OPMERKING: Afhankelijk van de grootte van de implantatieplaats kan de hoeveelheid DPBS variëren; het doel is om voldoende DPBS te hebben dat de implantatieplaats wordt ondergedompeld. - Verwijder met behulp van een dissectie-pincet met fijne punt de baarmoederspier van de implantatieplaats. Houd de implantatieplaats vast met een pincet in de ene hand en steek met de andere hand langzaam een andere pincet in het uiteinde van de implantatieplaats die uit de baarmoederhoorn is gesneden, waardoor de zwelling van de decidua langzaam zichtbaar wordt (Figuur 3).
OPMERKING: Trek of trek niet te hard aan het baarmoederoppervlak, omdat dit kan leiden tot het scheuren van de deciduale zwelling of zelfs de lysis van het embryo. - Nadat de deciduale zwelling is geïsoleerd, gaat u verder met het onthullen van het embryo.
- Houd het anti-mesometrische uiteinde van de deciduale zwelling vast met één pincet en maak met het andere paar langzaam een horizontale snede van ongeveer 1/4 van de grootte van de deciduale zwelling vanaf het mesometriale uiteinde (d.w.z. vaak het meer puntige uiteinde van de deciduale zwelling).
- Duw nu met beide tangen langzaam vanaf het anti-mesomtriale uiteinde van de deciduale zwelling, en het embryo zal uit het vers gesneden mesometrische uiteinde springen (Figuur 3).
OPMERKING: Scheur niet in de deciduale zwelling, omdat dit het embryo zal breken. Maak indien nodig kleinere sneden langs het mesometriale uiteinde van de deciduale zwelling.
- Zodra het embryo is onthuld, verwijdert u alle extra-embryonale weefsels die eraan vastzitten.
- De pariëtale endodermale zak en de ectoplacentale kegel kunnen tijdens het onthullingsproces spontaan loskomen van het embryo, maar als dat niet het geval is, gebruik dan een tang en verwijder ze samen met eventueel geassocieerd moederlijk bloed. Houd vervolgens met een tang het embryo met één paar vast en pel langzaam de viscerale dooierzak van het embryo met de andere set.
- Plaats met behulp van een P20-pipet de dooierzak met niet meer dan 10 μL DPBS-/- uit de schaal in een 8-strooks polymerasekettingreactie (PCR)-buis op ijs, aangezien deze zal worden gebruikt voor genotypering op dezelfde dag.
OPMERKING: Het is van cruciaal belang dat het dooierzakmonster niet besmet is met weefsel van het drachtige moederdier. Contaminatie kan leiden tot een onjuiste toewijzing van het genotype van het embryo.
- Maak heldere veldfoto's van pas geïsoleerde embryo's om ervoor te zorgen dat de enscenering van de nestgenoten vergelijkbaar is. Met een P200-pipet pipetteert u het embryo langzaam op met 50 μL DMEM/10% FBS en plaatst u het in een buisje van 1,5 ml op ijs. Laat de embryo's op het ijs liggen totdat de genotypen zijn bevestigd.
OPMERKING: Embryo's werden 3-4 uur op ijs gehouden zonder duidelijke degradatie, maar overschrijd deze tijd niet, omdat de levensvatbaarheid van de cellen zal afnemen. Label de embryo's en genotyperingsbuisjes dienovereenkomstig. Het maken van heldere veldfoto's wordt aangemoedigd om grove fenotypische verschillen tussen embryo's te identificeren en te annoteren. - Herhaal deze stappen voor alle resterende deciduale zwellingen. Reinig alle dissectie-instrumenten en gebruik nieuw plastic voor elke isolatie om ervoor te zorgen dat er geen verontreiniging door eerdere isolaties optreedt.
OPMERKING: Zorg ervoor dat de dissectieprocedures beperkt zijn tot 1 uur vanaf het moment van afname van de implantatieplaats van het drachtige moederdier. - Ga verder met het isoleren van embryo's van de volgende zwangere moeder (als er meerdere gesynchroniseerde zwangerschappen zijn geïdentificeerd) voordat u overgaat op de genotyperingsstap op dezelfde dag.
3. Genotypering op dezelfde dag (Figuur 4)
- Verteer elke viscerale dooierzak in een PCR-buis met 8 strips. Voeg met behulp van een P20-pipet 19,3 μl PCR-sjabloon DNA-lysisbuffer en 0,7 μl 0,2 μg/ml proteïnase K toe aan elk dooierzakmonster.
- Draai het monster gedurende 10 s en draai het naar beneden om de monsters op de bodem van de buis te positioneren met behulp van een minicentrifuge met een stripadapter op 1.000 x g gedurende 10 s. Plaats de 8-strips PCR-buis gedurende 45 minuten in een warmteblok van 85 °C en elke 5 minuten gedurende 5 s vortex.
OPMERKING: Het is belangrijk om tijdens het verteren monsters te vortexen om de cellyse in 45 minuten te maximaliseren. - Draai na 45 minuten de buisstrip naar beneden met behulp van een minicentrifuge met een stripadapter bij 1.000 x g gedurende 10 s en ga verder met PCR voor de gewenste genetische identificatie. Ter referentie wordt een voorbeeldprotocol voor een Cre-lox-systeem verstrekt. Het volgende is een voorbeeld van PCR-omstandigheden voor Cre-genotypering. Ontwerp primers om de 5'- en 3'-regio's van de beoogde Cre-site te versterken.
- Om de PCR-reactie voor Cre-genotypering uit te voeren, bereidt u een PCR-mastermix per 8-strooks PCR-buis voor elke dooierzak met 10 μL Taq DNA-polymerasemix, 0,5 μL 0,5 μM voorwaartse Cre-primer, 0,5 μL 0,5 μM omgekeerde Cre-primer, 5 μL PCR-gecertificeerd water en 4 μL dooierzak-genoom-DNA.
OPMERKING: Als u een protocol gebruikt dat is geoptimaliseerd voor genotypering van muizenstaarten, voeg dan het dubbele van de hoeveelheid DNA toe die doorgaans wordt gebruikt voor schonere resultaten. - Zodra de PCR-mastermix is gemaakt, voert u het PCR-programma voor de thermische cyclus uit. Voor Cre-genotypering is de cyclus als volgt: (1) 95 °C gedurende 3 min, (2) 95 °C gedurende 30 s, (3) 55 °C gedurende 30 s, (4) 72 °C gedurende 30 s, herhaalde stap 2-4 gedurende 34 cycli, (5) 72 °C gedurende 10 min, (6) 4 °C vasthouden. Laat de PCR-producten op een 1% agarosegel lopen om conclusies te trekken over genotypering.
OPMERKING: Als er meer dan één PCR nodig is voor genetische identificatie, voer dan de PCR-reacties tegelijkertijd uit om de timing te optimaliseren. Om het proces te versnellen, bereidt u de agarosegel een dag van tevoren op de dag van het experiment en bewaart u deze een nacht bij 4 °C. Beschouw geen monsters zonder duidelijke genotypen. Houd bij het nemen van monsters rekening met zowel het genotype als het ontwikkelingsstadium, aangezien nestgenoten zich in verschillende stadia van gastrulatie kunnen bevinden en mogelijk de resultaten kunnen vertekenen. Bij het uitvoeren van de genotypering van de LoxP-allelen kunnen de PCR-banden die in de gel worden verwacht, variëren, afhankelijk van de gebruikte Cre-driver. Als de Cre-driver bijvoorbeeld tot expressie komt in de viscerale dooierzak, zal de Lopp-band verschoven lijken in de Cre-positieve (Cre+) embryo's, vergeleken met de Cre-negatieve (Cre-). Als de Cre echter niet tot expressie wordt gebracht in de viscerale dooierzak, zal de grootte van de Lopp-band even groot zijn in de Cre+ en de Cre-embryo's (d.w.z. de Lopp-allelen zullen niet worden gefloxt in de dooierzaklijn). Een embryo met één Cre+-allel en twee Lopp-allelen wordt beschouwd als een voorwaardelijk KO-embryo. Om de deletie van het gefloxte gen te bevestigen, wordt echter aanbevolen om een bevestiging van de knock-out van het gen uit te voeren op de cellen die de Cre-driver tot expressie brengen, hetzij door het genotyperingsprotocol te herhalen, hetzij door qPCR-analyse van de mRNA-niveaus van het gefloxte gen (Figuur 4D, E). - Bewaar de resterende verteerde dooierzakmonsters in de vriezer van -20 °C voor langdurige opslag.
4. Celdissociatie van embryo's en levensvatbaarheid van cellen
- Zodra de genotypen zijn bevestigd, neemt u een P200-pipet en pipette 50 μL DMEM/10% FBS. Bundel embryo's met hetzelfde genotype in een nieuw buisje van 1,5 ml en plaats het buisje op ijs.
OPMERKING: Ga niet verder met het experiment als er niet ten minste 5 embryo's per groep (E7-E7.5) of 3 (E7.75-E8) zijn, omdat het aantal cellen en de levensvatbaarheid enorm zullen afnemen. - Nadat embryo's zijn samengevoegd op basis van genotypen, laat u ze op de bodem van de buis zakken. Was de gepoolde embryo's door 50 μL DPBS-/- toe te voegen en wacht vervolgens tot de embryo's zijn bezonken voordat u zoveel mogelijk DPBS-/- verwijdert zonder de embryo's uit de buis te verwijderen. Herhaal deze stap twee keer.
OPMERKING: Door de buis van 1.5 ml tegen een lichtbron of in de richting van een raam te houden, kunt u de embryo's gemakkelijker op de bodem van de buis zien nestelen. - Voeg 100 μL trypsine toe aan de gepoolde embryo's en incubeer bij 37 °C in een warmteblok gedurende 5 min. Veeg elke 30 s voorzichtig met de buisjes van 1,5 ml om de cellen te helpen dissociëren.
OPMERKING: Gebruik geen vortex of pipet tijdens het trypsinisatieproces, omdat dit de cellen beschadigt. Als er meer dan 5 embryo's (E7-E7.5) of 3 embryo's (E7.75-E8) worden samengevoegd, voer dan trypsinevertering uit in een ander buisje met een equivalente hoeveelheid trypsine (~20 μL per 1 embryo). Gebruik ~20 μL trypsine per embryo (E6.5-E7.5), 35 μL per embryo (E7.75) en 40 μL voor embryo (E8). - Neutraliseer na 5 minuten de trypsine met 300 μL DMEM/10% FBS. Centrifugeer de gepoolde embryo's bij 100 x g gedurende 4 minuten bij kamertemperatuur (RT). Na het centrifugeren verschijnt er een kleine korrel voor alle monsters. Resuspendeer de pellets in 40 μL DMEM/10% FBS en leg ze op ijs.
OPMERKING: De grootte van de pellet is afhankelijk van het aantal gepoolde embryo's. Het is mogelijk dat de korrel niet zichtbaar is, maar ga verder met de volgende stap. De hoeveelheid DMEM/10% FBS die nodig is om trypsine te neutraliseren, hangt af van de hoeveelheid trypsine die wordt toegevoegd. Voeg 3 keer de hoeveelheid DMEM/10% toe aan de trypsinehoeveelheid. - Bepaal de concentratie van de geresuspendeerde cellen (40 μL) met behulp van een geautomatiseerde cellenteller. Meng 5 μL cellen met 5 μL trypanblauw in een nieuw buisje van 1,5 ml. Pipet, meng grondig en pipetteer op een objectglaasje om het celaantal en de levensvatbaarheid van de cel te bepalen. De optimale concentratie van cellen is 700-1200 cellen/μL en de levensvatbaarheid van de cellen is 90% of hoger.
OPMERKING: Als de concentratie lager is dan 200 cellen/μL en de levensvatbaarheid lager is dan 50%, ga dan niet verder met het experiment. Als de celconcentratie te hoog is, verdun dan de celsuspensie en hertel de cellen opnieuw. Als celklonten worden waargenomen, gebruik dan een celzeef om een eencellige suspensie te garanderen. - Ga verder met het partitioneren van eencellen met behulp van een microfluïdische chip en volg het protocol van de fabrikanten van microfluïdische chips11.
5. Kernisolatie muizenembryo's (optie voor grotere embryonale tijdstippen vanaf E8)
- Bereid verse lysis en wasbuffers zoals beschreven in tabel 1 en leg ze op ijs.
OPMERKING: Kernisolatie kan worden uitgevoerd op verse of bevroren monsters. Als de monsters bevroren zijn, laat ze dan 2-5 minuten ontdooien op ijs. - Voordat u met het experiment begint, bevestigt u alle genotypen en poolt u alleen embryo's met duidelijke genotypen.
- Voeg met behulp van een P200-pipet 50 μL nuclei lysisbuffer toe aan gepoolde embryo's in een buisje van 1,5 ml, waarbij wordt gestreefd naar minimaal 3 embryo's per mutante groep. Laat de monsters 5 minuten op ijs staan met lysisbuffer en draaikolk om de 30 s.
- Centrifugeer na 5 minuten incubatie 5 minuten bij 500 x g bij 4 °C. Verwijder met een P200-pipet het supernatans en suspendeer de pellet in 50 μL wasbuffer. Eenmaal geresuspendeerd, centrifugeren bij 500 x g gedurende 5 minuten bij 4 °C.
- Verwijder het supernatans en resuspendeer in 40 μl DPBS-/-. Tel de cellen met behulp van een geautomatiseerde cellenteller. Meng 5 μL kernen met 5 μL trypanblauw in een nieuwe tube van 1,5 ml. Pipeteer het mengsel grondig en laad het op een objectglaasje om het celnummer en de levensvatbaarheid te bepalen.
OPMERKING: Het kernmembraan is permeabel voor trypanblauw; Daarom is de geïsoleerde kernkleuring positief voor trypanblauw. In een geautomatiseerde cellenteller wordt het percentage dode cellen gebruikt om het percentage geïsoleerde kernen te schatten (Figuur 5A). - Als het percentage intacte kernen groter is dan 90% (wat betekent dat ten minste 90% van de kernen gekleurd is met trypanblauw en een afgeronde vorm en gezwollen aspect vertoont; zie figuur 5B, C), ga dan verder met het gebruik van een microfluïdische chip en volg het protocol van de fabrikanten van microfluïdische chips11.
6. Partitionering van eencellen (inclusief cDNA-amplificatie en bibliotheekconstructie)
- Ga onmiddellijk verder met het single-cell RNA-sequencingprotocol volgens protocol11 van de fabrikant van de microfluïdische chip voor de meest optimale resultaten. Stel het herstel van de doelcel in op 6000 cellen of meer.
7. Opeenvolging
- Nadat bibliotheken zijn geconstrueerd, meet u de fragmentgrootteverdeling en concentraties van monsters met behulp van een geautomatiseerde elektroforese-analysator.
OPMERKING: Optimale fragmentgrootteverdelingen liggen tussen 300-1000 bp. - Samples zijn klaar om in de sequencer te worden geladen. Poolbibliotheken van verschillende voorbeelden samen. De uiteindelijke laadconcentratie van gepoolde bibliotheken is 750 pM in een totaal volume van 24 μL. Laad de gepoolde bibliotheken in de reagenscartridge, volgens het protocol van de sequentiefabrikant12.
- Sequentie van de bibliotheken die in de voorgemonteerde flowcel en cartridge zijn geladen volgens de gewenste sequentiediepte met dubbele indexering aan het paarsgeenuiteinde. De sequentiemetingen die worden gevolgd volgens het protocol dat is uiteengezet door fabrikanten van microfluïdische chips is als volgt11: Lezen 1: 28 cycli, i7 Index: 10 cycli, i5 Index: 10 cycli en Lezen 2: 90 cycli. Na voltooiing van de sequencing ondergaan de gegevens een bio-informaticaanalyse.
- Gebruik bio-informaticamethoden om kwaliteitscontroles uit te voeren. Dit omvat het beoordelen van het aantal gesequencede cellen, lezingen per cel en het aantal genen dat per cel in kaart is gebracht.
OPMERKING: Voor optimale resultaten is het aantal gesequencede cellen ten minste 80% van de beoogde cellen. Het wordt aanbevolen dat het aantal metingen per cel ten minste 30.000 is en het aantal gedetecteerde genen hoger is dan 3000 (voor muizenmonsters).
Resultaten
De methodologie die in dit artikel is ontworpen, is specifiek bedoeld om de voorbereiding van embryomonsters voor single-cell omics van E6.5 tot E8 te verbeteren. Deze robuuste pijplijn bestaat uit vijf belangrijke stappen: gesynchroniseerde getimede zwangerschappen, embryo-isolaties, genotypering op dezelfde dag, celdissociatie en beoordeling van de levensvatbaarheid van cellen (Figuur 1A). Hoewel de gepresenteerde gegevens zich richten op tijdstippen van E7 tot E7.5, kunnen ze worden toegepast op embryo's tot E8 (Figuur 1B) met kleine variaties in de procedure (verwezen naar opmerkingen in het hele protocol). Gesynchroniseerde getimede zwangerschappen werden bereikt door twee vrouwelijke muizen in een kooi met een mannelijke muis te plaatsen. Vaginale pluggen werden elke ochtend voor 10 uur gecontroleerd en als er een plug werd waargenomen, werd deze tegen het middaguur van die dag als E0,5 beschouwd (Figuur 2A). In deze studie vereisten de optimale omstandigheden voor pluggen dat een vrouwelijke muis in het oestrus- of pro-oestrusstadium werd gekoppeld aan een mannetje met een geschiedenis van het succesvol plaatsen van meerdere pluggen tijdens eerdere kweek (Figuur 2B). Alleen voor de hand liggende pluggen werden overwogen voor embryo-isolaties (Figuur 2C).
De timing van de ontwikkeling werd geschat volgens het tijdschema in figuur 2A. Voor E7.5 begon de embryodissectie om 12 uur op de 7edag volgend op de dag van de detectie van een plug. Figuur 3 illustreert een succesvolle embryo-isolatie bij E7.5. Nadat de zwangere moeder was geëuthanaseerd, werd de baarmoederhoorn ontleed, werd de deciduale zwelling afzonderlijk gesneden, waardoor het embryo zichtbaar werd, en werd de dooierzak geïsoleerd voor genotypering (Figuur 3).
Genotypering op dezelfde dag werd uitgevoerd binnen 3 uur na isolatie van het embryo volgens de stappen in figuur 4A. De embryo's werden tijdens het genotyperingsproces op het ijs gehouden om hun integriteit te behouden. Vries de embryo's niet in, omdat dit het aantal levensvatbare cellen per embryo zal verminderen. Figuur 4B,C toont de viscerale dooierzak, de pariëtale endodermale zak en de ectoplacentale kegel met bijbehorend bloed van de moeder. De viscerale dooierzak werd gebruikt voor genotypering (Figuur 4C). Na het verteren van de dooierzak werd de PCR-mix bereid en werd de PCR-reactie uitgevoerd. Het resulterende PCR-product werd vervolgens gescheiden op een agarosegel. Figuur 4D toont de verwachte fragmentgroottes voor de LoxP- en wildtype allelen (respectievelijk 597 bp en 498 bp) en het Cre-allel (650 bp). In figuur 4E wordt een voorbeeld gegeven van genotypering van de dooierzak van 6 embryo's verkregen uit fokparen die Cre- en LoxP (flox) allelen dragen. De gels geven de PCR-producten van de Cre- en LoxP-allelen weer in de 6 geanalyseerde embryo's. Embryo's nummer 2 en nummer 5 dragen 2 flox-allelen en 1 cre-allel; daarom worden ze beschouwd als voorwaardelijke KO-embryo's (Figuur 4E, rode stippen). Embryo's 1 en 3 hebben 2 flox-allelen, maar zijn negatief voor Cre; Daarom worden ze beschouwd als flox-controles. Embryo 4 heeft 2 flox allelen en een vage band voor het Cre-allel, wat resulteert in een "onduidelijk" genotype. Dit embryo werd niet verder verwerkt (als alternatief kan de experimentalist overwegen de genotypering te herhalen of een secundaire validatie van de voorwaardelijke KO uit te voeren met behulp van cellen die Cre tot expressie brengen). Het is belangrijk op te merken dat de Cre-driver die in dit experiment wordt gebruikt, niet tot uiting komt in de viscerale dooierzak15; daarom lijken de LoxP-allelen niet verschoven op de gel van Cre-positieve embryo's in vergelijking met de Cre-negatieve.
Celgetal en een goede levensvatbaarheid zijn vereist voor een succesvol eencellig experiment. Suspensies met een lage levensvatbaarheid van de cellen, een hoog percentage dode cellen, klontering of veel vuil zijn ongeschikt voor verdere verwerking. Optimale omstandigheden zijn voor 700-1200 levende cellen per microliter en >90% levensvatbaarheid. Figuur 5A toont een paneel dat zowel de goede als de suboptimale levensvatbaarheid van cellen illustreert. Dezelfde criteria kunnen ook worden toegepast voor de isolatie van kernen, zoals weergegeven in figuur 5B. Het is echter van cruciaal belang op te merken dat de evaluatie van trypanblauw verschilt van cellen en kernen: levensvatbare cellen bevatten geen trypanblauw, terwijl levensvatbare kernen dat wel doen. Als de suspensie van cellen/kernen optimaal is (>90% levensvatbaarheid), ga dan verder met de partitionering van één cel met behulp van een microfluïdische chip volgens de procedures van de fabrikant11. Er zijn opties voor probleemoplossing beschikbaar voor suspensies waarbij de levensvatbaarheid van cellen/kernen tussen 60%-89% ligt, zoals weergegeven in figuur 5C. Als de levensvatbaarheid, ongeacht het totale aantal cellen, onder de 60% daalt, overweeg dan om het experiment stop te zetten.
De hele pijpleiding van het ruimen van de zwangere dam tot de bouw van de bibliotheek duurt in totaal 8 uur op dezelfde dag (d.w.z. protocolstappen 2 tot en met 6 moeten op dezelfde dag worden uitgevoerd). Volgens de procedures die zijn uiteengezet in de procedures van de fabrikanten van eencellige cellen11, werden bibliotheekconstructies voorbereid voor sequencing van eencellig RNA met behulp van cellen verkregen uit E7-embryo's, met een cellevensvatbaarheid variërend van suboptimale tot optimale omstandigheden, met als doel een geschat doelherstel van 2000 cellen (Figuur 6). Figuur 6A toont een representatieve fragmentgrootteverdeling van scRNAseq-bibliotheken voor zowel suboptimale als optimale omstandigheden, wat aangeeft dat de levensvatbaarheid van cellen geen significante invloed heeft op het gehele partitioneringsproces van één cel. De verdeling van de fragmentgrootte varieerde tussen 400-500 bp. Dit geeft aan dat suboptimale omstandigheden geen invloed hebben op het proces van bibliotheekvoorbereiding. Figuur 6B toont de uitkomsten van zowel succesvolle als suboptimale single-cell RNAseq experimenten. Na sequencing werden kwaliteitscontroles uitgevoerd op monsters en werd vastgesteld dat, in gevallen waarin de levensvatbaarheid van de cellen niet optimaal was, slechts 10% van de cellen met succes werd gesequenced. Daarentegen vertoonden optimale monsters een hoger percentage, waarbij 91% van het totale aantal cellen werd gesequenced. Dit wordt verder bewezen door barcodeplots, die aangeven dat de suboptimale omstandigheden een grotere achtergrondruis hebben in vergelijking met optimale omstandigheden. Voor beide experimenten werd een clusteranalyse uitgevoerd en deze onthulde 9 clusters in de optimale omstandigheden en 4 in de suboptimale. Annotatie van de clusters met behulp van bekende markers3 onthulde verwachte celtypen in de E7-embryo's, waaronder epiblast en primitieve streak (Figuur 6B). Clusterannotaties in het suboptimale experiment waren niet mogelijk vanwege het gebrek aan verrijking in bekende markers voor elk cluster. Dit benadrukt het belang van cellen van hoge kwaliteit die nodig zijn voor de juiste weergave van gegevens tijdens deze ontwikkelingsstadia.

Figuur 1: Optimalisatie van het gastruleren van hele muizenembryo's voor single-cell RNA sequencing. (A) Werkstroomschema voor het verkrijgen van cellen en/of kernen van hoge kwaliteit uit gastrulerende embryo's. (B) Representatieve heldere veldbeelden en aangepast schema3 van muizenembryo's tijdens gastrulatie van E7 tot E8. Schaalbalk: 125 μm. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Strategie voor efficiënte gesynchroniseerde getimede zwangerschappen voor embryo-isolaties tijdens gastrulatie. (A) Schematisch diagram dat de pijplijn voor getimede zwangerschappen aangeeft en een tijdschema dat de tijden beschrijft van plugdetectie tot embryo-isolatie voor analyse van specifieke gastrulatiefasen. (B) Representatieve beelden van de fasen van de oestruscyclus voor vrouwelijke muizen. De fasen die het meest ontvankelijk zijn voor de fokkerij worden aangegeven. (C) Schematisch diagram dat illustreert hoe te controleren op vaginale pluggen en voorbeelden van vaginale openingen zonder plug, een gedeeltelijke plug of een goede plug om te overwegen voor embryo-isolaties. Onder elke afbeelding wordt ingezoomd op de vaginale openingen. De plug (gestold sperma in de vaginaopening) is gemarkeerd met een rode pijl die ernaar wijst. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Dissectie en genotypering van E7.5-embryo's voor single-cell RNA-sequencing. Schematische diagrammen en afbeeldingen van het proces van het isoleren van E7.5-embryo's en het ontleden van de viscerale dooierzak. De gele pijl geeft de baarmoeder van de drachtige moeder aan en de gele stippellijn schetst de locatie van het embryo. Stippellijnen geven de gebieden weer die tijdens de dissectie zijn gesneden. "M" staat voor het mesoomtriale uiteinde, terwijl "AM" het anti-mesoomtriale uiteinde aangeeft. Schaalbalken in stereoscoopafbeeldingen zijn 400 μm. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Genotypering op dezelfde dag van dooierzakjes van gastrulerende muizenembryo's. (A) Werkstroomschema voor genotypering van dooierzakjes op dezelfde dag. (B) Representatief beeld van de pariëtale endodermale zak en de ectoplacentale kegel met geassocieerd maternaal bloed. (C) Viscerale dooierzak in E7.5-embryo's gemarkeerd door de stippellijn. Schaalbalk: 200 μm. (D) Representatieve gels van wildtype (+/+), heterozygoot (Flox/+) en homozygoot flox (Flox/Flox), en Cre-genotypering (Mesp1cre15) met waargenomen DNA-fragmentgroottes. (E) Genotyperingsresultaten op dezelfde dag voor Cre- en flox-allelen uit dooierzakjes van 6 embryo's (1-6) worden verstrekt. De twee embryo's met flox/flox- en Cre-negatieve (-) genotypering zijn flox-controles (blauwe stippen), terwijl die met flox/flox- en Cre-positieve (+) genotypering voorwaardelijke KO's (rode stippen) zijn. Embryo 4 is niet optimaal door de zwakke Cre-band (flox/flox en Cre-onduidelijk) en is daarom uitgesloten van verdere verwerking. Embryo's met hetzelfde genotype worden samengevoegd en verwerkt voor single-cell RNA-sequencing. Merk op dat de aanwezigheid van het Cre-allel in de dooierzak geen invloed heeft op de grootte van de floxbanden , aangezien de gebruikte Cre (Mesp1cre) niet tot uiting komt in de dooierzak. Klik hier om een grotere versie van deze figuur te bekijken.
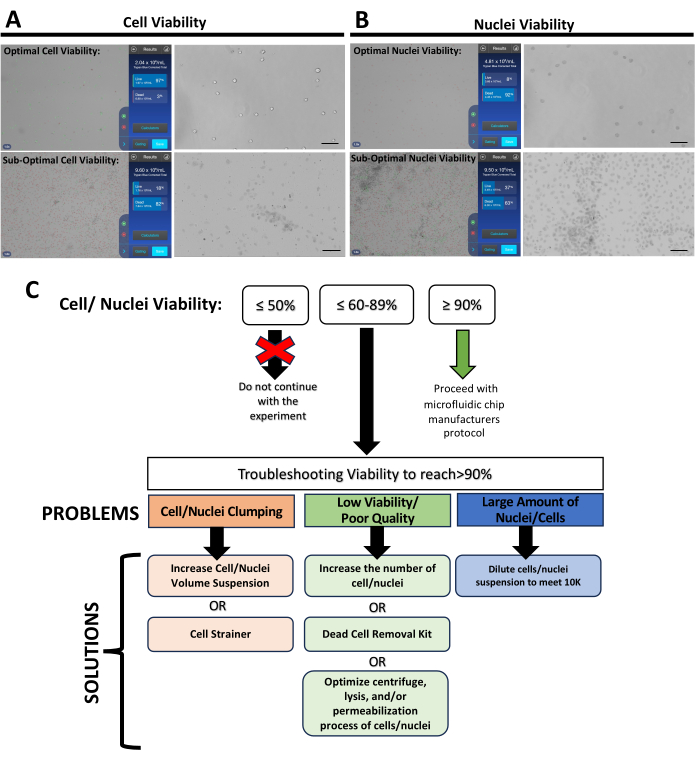
Figuur 5: Beoordeling van de celkwaliteit en de levensvatbaarheid van de celkernen. (A) Representatieve beelden van optimale en suboptimale levensvatbaarheidsomstandigheden van cellen van E7.5-embryo's. (B) Representatieve beelden van optimale en suboptimale levensvatbaarheidsomstandigheden van kernen van E8-embryo's (C) Probleemoplossingsschema dat mogelijke oplossingen aangeeft om de levensvatbaarheid van cellen te helpen vergroten voordat met de partitionering van eencellige cellen wordt begonnen. Klik hier om een grotere versie van deze figuur te bekijken.
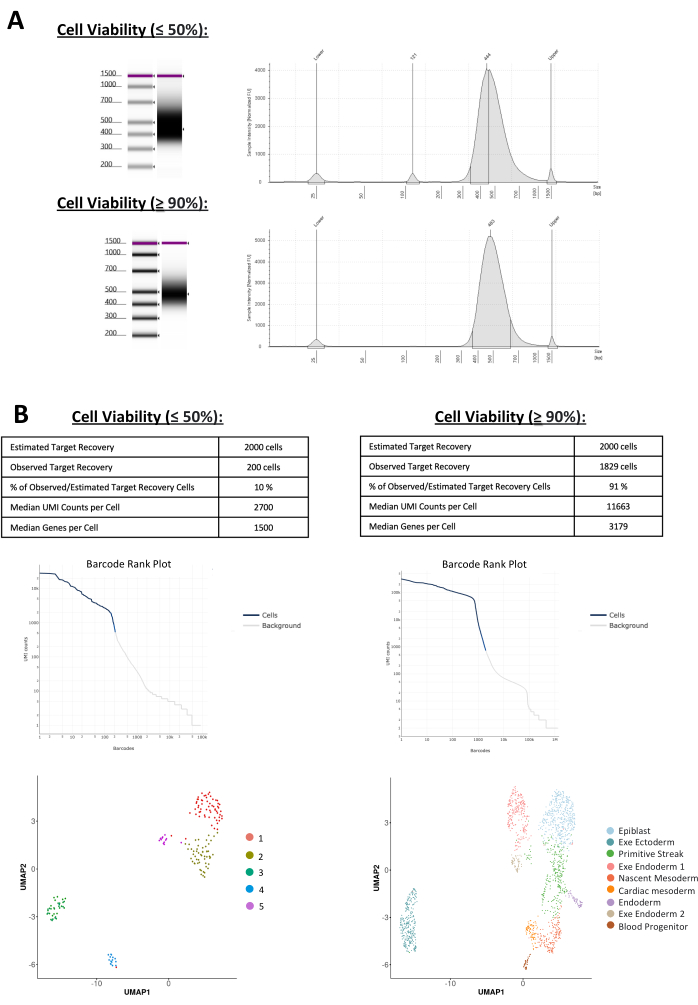
Figuur 6: Single-cell RNA-sequencing van E7-muizenembryo's. (A) Representatief spoor van fragmentgrootteverdeling voor single-cell RNA-sequencingbibliotheken van E7-muizenembryo's voor zowel suboptimale als optimale omstandigheden van cellevensvatbaarheid, met de belangrijkste piek in de buurt van 400-500 bp. Merk op dat de sporen tussen deze omstandigheden vergelijkbaar zijn, wat aangeeft dat de levensvatbaarheid van de cel geen invloed heeft op de kwaliteitscontroles van de bibliotheek. (B) Analyse van eencellige RNA-sequencingresultaten voor E7-muizenembryo's onder zowel suboptimale als optimale omstandigheden, waarbij waargenomen doelherstel, barcoderangschikking en clustering van celtypen worden aangetoond door middel van uniforme variëteitsbenadering en projectie (UMAP) distributie. Klik hier om een grotere versie van deze figuur te bekijken.
| Lysis Buffer | |||
| Naam reagens | Concentratie van de voorraad | Uiteindelijke concentratie | Totaal volume 1 ml |
| Tris-HCL (Ph7) | 1 m boven NN | 10 mM | 10 μL |
| NaCl | 5 miljoen | 10 mM | 2 μL |
| MgCl2 | 0,1 miljoen | 3 mM | 3 μL |
| Tween-20 | 20% | 0.10% | 5 μL |
| Nondiedt P40 | 10% | 0.10% | 10 μL |
| Digitonine | 5% | 0.01% | 2 μL |
| DTT | 1 m boven NN | 1 mM | 1 μL |
| RNase-remmer | 40 E/μL | 1 E/μL | 25 μL |
| Nuclease-vrij water | -- | -- | 924 μL |
| Buffer wassen | |||
| Naam reagens | Concentratie van de voorraad | Uiteindelijke concentratie | Totaal volume 1 ml |
| BSA bij PBS | 10% | 1% | 100 μL |
| PBS | -- | -- | 900 μL |
Tabel 1: Isolatie van kernen, lysisbuffer en samenstelling van de wasbuffer.
Discussie
In dit artikel wordt een robuuste pijplijn gepresenteerd voor het verkrijgen van hoogwaardige eencellige en kernsuspensies uit gastrulerende muizenembryo's, speciaal ontworpen om studies naar mechanismen van cel-lotspecificatie in vroege ontwikkeling te vergemakkelijken. Deze methode pakt een cruciale leemte op het gebied van gastrulatie aan door de analyse van embryo's die genotypen vereisen, zoals geslacht of somatische genen, te optimaliseren. Door gebruik te maken van genetische mutatie muismodellen en gebruik te maken van eencellige sequencing met hoge resolutie op hele muizenembryo's, kan deze pijplijn het begrip van de genexpressieprofielen van de vroege muizengastrula verder verbeteren. Deze methode toont de haalbaarheid aan van het gebruik van een genetisch mutatiemuismodel door een Cre-recombinasesysteem om cellen en kernen van hoge kwaliteit te verkrijgen op vroege ontwikkelingstijdstippen voor single-cell omics. Deze methode evolueerde door middel van meerdere pogingen, waarbij de steekproeven niet voldeden aan de kwaliteitsnormen die vereist zijn voor de voorbereiding en volgorde van de bibliotheek. De uitgelegde methodologie genereert voldoende cellen/kernen van embryo's jonger dan E8 door de optimalisatie van drie kritieke stappen: (1) gesynchroniseerde getimede zwangerschappen om het aantal embryo's te vergroten, (2) genotypering op dezelfde dag om bevriezing/ontdooiing te voorkomen, en (3) het beoordelen van de levensvatbaarheid van cellen/kernen om sequencing van stervende cellen te voorkomen. Dit protocol levert succesvolle resultaten op met single-cell RNASeq, maar de cel- of kernsuspensies die in dit protocol worden verkregen, kunnen worden verwerkt in andere sequencingplatforms, waar de levensvatbaarheid van cellen de beperkende factor is, zoals smart-seq, drop-seq en cel-seq16.
Bij het E7-embryo kan het aantal cellen variëren, afhankelijk van de stam en het mutante genotype. Doorgaans kan een E7-embryo variëren van honderden tot een paar duizend cellen, en het verkrijgen van embryo's met het gewenste genotype is een uitdaging, met slechts 1 of 2 embryo's per zwangere moeder die aan de criteria voldoen. Dit protocol maakt het mogelijk om ongeveer 300 levensvatbare cellen per E7-embryo vast te leggen voor analyse van één cel. Pogingen om de grootte van de embryopool te vergroten door embryo's van zwangere moederdieren op verschillende dagen in te vriezen, bleken niet succesvol, omdat de levensvatbaarheid van de cellen na ontdooien ernstig in het gedrang kwam, zelfs met de toevoeging van cryopreservatiemiddelen. Om deze uitdaging aan te gaan, werd de fokstrategie en synchronisatie van drachtige moederdieren geoptimaliseerd. Om de kans op meerdere isolaties te vergroten, wordt aanbevolen om vrouwelijke muizen te gebruiken die 1-2 keer zijn bevallen voordat ze voor isolatie worden gefokt, omdat ze meer kans hebben op grotere worpgroottes. Het monitoren van de oestrische cyclus van het vrouwtje is cruciaal; Paring komt vaker voor tijdens de pro-oestrus- en oestrusstadia. Als er broedproblemen ontstaan, helpt het ook om de kweekpartners na vier dagen te wisselen als er geen plug wordt geproduceerd.
Het is belangrijk op te merken dat deze methode een beperking heeft: het is gebaseerd op waargenomen pluggen, en zelfs als een plug wordt waargenomen, garandeert het geen zwangerschap, maar geeft het alleen seksuele activiteit aan. Daarom zal het verhogen van het aantal waargenomen pluggen op een dag de kans vergroten dat er meer dan één drachtige moeder op een dag en meer positieve genotypen zijn. Dit protocol toonde de haalbaarheid aan van het gebruik van embryonale stadia variërend van E7 tot E7.75 als een proof of concept tijdens gastrulatie. Deze pijplijn kan echter worden toegepast van E6.5 tot E8 embryo's. Voor E6.5-embryo's wordt aanbevolen om het aantal gesynchroniseerde zwangerschappen te verhogen om ten minste 7 embryo's met het gewenste genotype te verkrijgen. Verhoog in plaats daarvan voor de E8-embryo's de hoeveelheid trypsine die wordt gebruikt om elk embryo te dissociëren tot ~ 40 μL in plaats van 20 μL. Het doel is om een cel/kernsuspensie te verkrijgen in een concentratiebereik van 700-1200 cellen per μl voordat wordt overgegaan tot de partitionering.
Een goede levensvatbaarheid van cellen is essentieel voor het succes van sequencing van één cel. In het microfluïdische chipontwerp dat door de fabrikanten wordt geleverd, worden afzonderlijke cellen verdeeld in gelparels-in-emulsie (GEM's) in een chip die bekende gelkorrels met streepjescode bevat11. Een opmerkelijke beperking van dit proces is echter dat zowel afzonderlijke cellen van hoge als slechte kwaliteit kunnen worden gepartitioneerd. Zelfs met een voldoende aantal levende cellen (d.w.z. 1000 cellen/μL), als de levensvatbaarheid van de suspensie laag is (d.w.z. 1000 levende cellen en 1000 cellen dood, wat resulteert in 50% levensvatbaarheid), zal het sequencing-experiment waarschijnlijk mislukken. Voor een optimaal resultaat wordt aanbevolen om te streven naar een levensvatbaarheid van ongeveer 90%. Als de levensvatbaarheid van de cel tussen ongeveer 60%-89% daalt, kunnen specifieke maatregelen worden genomen om de levensvatbaarheid van het experiment te verbeteren. Als de levensvatbaarheid van de cel echter minder dan 60% is, wordt het ten zeerste afgeraden om door te gaan met het experiment. De reden hiervoor is dat de stervende cellen worden 'gevangen' in de partitioneergel en dat de daaropvolgende bibliotheekvoorbereiding en kwaliteitscontroles zonder merkbare problemen zullen verlopen. Het eigenlijke sequencing-experiment kan echter volledig mislukken, aangezien de meeste sequencing-metingen mitochondriale, ribosomale of apoptose-genen in kaart zullen brengen, wat vanaf het begin tekenen van slechte cellevensvatbaarheid aangeeft. De gegevens in dit artikel illustreren een pijplijn voor eencellige sequencing van gastrulerende muizenembryo's met cellen van hoge kwaliteit. Deze methodologie kan worden toegepast voor het begrijpen van veel verschillende genetische mutatie muismodellen tijdens de ontwikkeling.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We erkennen de Genomics Core van het Fox Chase Cancer Center en de leden van het Dr. Johnathan Whetstine-laboratorium, Zach Gray, Madison Honer en Benjamin Ferman, voor de technische ondersteuning van de sequentie-experimenten. We erkennen laboratoriumleden van Dr. Estaras en Alex Morris, een rotatiestudent die heeft bijgedragen aan de eerste analyse van de eencellige studies. Dit werk wordt gefinancierd door de NIH-subsidies R01HD106969 en R56HL163146 aan Conchi Estaras. Bovendien werd Elizabeth Abraham ondersteund door T32-opleidingsbeurs 5T32HL091804-12.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10 cm Petri dish | Genesee Scientific | 25-202 | |
| 1000 µL Reach Barrier Tip | Genesee Scientific | 23-430 | |
| 20 µL Reach Barrier Tip | Genesee Scientific | 24-404 | |
| 300 µL Reach Barrier Tip | Genesee Scientific | 24-415 | |
| 37 µm Reversible Strainer, small | Stem Cell | 27215 | |
| 6 cm Petri dish | Genesee Scientific | 25-260 | |
| 8-strip PCR tubes | Genesee Scientific | 27-125U | |
| Agarose | Apex Bioresearch Product | 20-102 | |
| Benchmark Scientific BSH300 MyBlock Mini Dry Bath | Genesee | 31-437 | |
| Benchmark Scientific Z216-MK Z216MK Hermle Refrigerated Microcentrifuge | Genesee | 33-759R | |
| Bovine Serum Albumin (BSA) | Sigma-Aldrich | A2153 | |
| Chromium Controller | 10X | PN-1000127 | |
| Chromium Next GEM Single Cell 3' Reagent Kits v3.1 | 10X | PN-1000269 | |
| Countess 3 Automated Cell Counter | Invitrogen | AMQAX2000 | |
| Countess Cell Counting Chamber Slides | Invitrogen | C10283 | |
| D1000 Reagents | Agilent | 5067-5583 | |
| D1000 ScreenTape | Agilent | 5067-5582 | |
| Digitonin | ThermoFisher Scientific | BN2006 | |
| DirectPCR yolk sac | Viagen | 201-Y | |
| Dithiothreitol (DTT) | ThermoFisher Scientific | R0861 | |
| DNA LoBind Tube 1.5 mL | Eppendorf | 22431021 | |
| Dubecco's Modification of Eagle's Medium (DMEM, 1x) | CORNING | 10-013-CV | |
| Dulbecco's PBS | GenClone | 25-508 | |
| Dumont #5 Fine Forceps | Fine Science Tools | 11254-20 | |
| Dumont #5SF Forceps | Fine Science Tools | 11252-00 | |
| Ethanol | Koptec | V1401 | |
| EVOS M7000 Imaging System | Invitrogen | AMF7000 | |
| Fine Scissors - Sharp | Fine Science Tools | 14060-11 | |
| GoTaq G2 Green Master Mix | Promega | M7823 | |
| Graefe Forceps | Fine Science Tools | 11049-10 | |
| MgCl2 | ThermoFisher Scientific | AC223211000 | |
| MiniAmp Thermal Cycler | Applied Biosystems | A37834 | |
| NaCl | Fisher Chemical | S271-500 | |
| NextSeq 1000/2000 P2 Reagents (100 Cycles) v3 | Illumina | 20046811 | |
| NextSeq2000 | Illumina | ||
| Nikon SMZ 1000 Stereo Microscope | Nikon | ||
| Nondiedt P40 | Sigma-Aldrich | 74385 | |
| Nuclease-free Water | GenClone | 25-511 | |
| Optical Tube 8x Strip (401428) | Agilent | 401428 | |
| Optical Tube Cap 8x Strip (401425) | Agilent | 401425 | |
| Poseidon 31-511, HS24 Microcentrifuge, with 24 x 1.5/2.0 mL rotor, 1 Centrifuge/Unit | Genesee | 31-511 | |
| Proteinase K | Sigma-Aldrich | P6556 | |
| Qubit dsDNA Quantification Assay Kits | Invitrogen | Q32851 | |
| Qubit Flex 3 | Invitrogen | ||
| RNase inhibitor | Fisher Scientific | 12-141-368 | |
| Standard Pattern Forceps | Fine Science Tools | 11000-12 | |
| Tape Station Loading tips | Agilent | 5067-5598 | |
| Tapestation 4150 | Agilent | G2992AA | |
| Tris-HCL (Ph7) | Quality Biological | 351-007-101 | |
| Trypan Blue Stain 0.4% | Thermo Fisher Scientific | T10282 | |
| Tryple Express | Gibco | 12604-021 | |
| Tween-20 | Bio-Rad | 1662404 | |
| Vortex mixer IKA MS3 with 96-well sample plate adapter | IKA | 3617000 |
Referenties
- Arias, A. M., Marikawa, Y., Moris, N. Gastruloids: Pluripotent stem cell models of mammalian gastrulation and embryo engineering. Dev Biol. 488, 35-46 (2022).
- Kim, Y., Kim, I., Shin, K. A new era of stem cell and developmental biology: from blastoids to synthetic embryos and beyond. Exp Mol Med. 55 (10), 2127-2137 (2023).
- Pijuan-Sala, B., et al. A single-cell molecular map of mouse gastrulation and early organogenesis. Nature. 566 (7745), 490-495 (2019).
- Mittnenzweig, M., et al. A single-embryo, single-cell time-resolved model for mouse gastrulation. Cell. 184 (11), E22 P2825-P2842 (2021).
- Bardot, E. S., Hadjantonakis, A. K. Mouse gastrulation: Coordination of tissue patterning, specification and diversification of cell fate. Mech Dev. 163, 103617(2020).
- Argelaguet, R., et al. Multi-omics profiling of mouse gastrulation at single-cell resolution. Nature. 576 (7787), 487-491 (2019).
- Chan, M. M., et al. Molecular recording of mammalian embryogenesis. Nature. 570 (7759), 77-82 (2019).
- Mohammed, H., et al. Single-cell landscape of transcriptional heterogeneity and cell fate decisions during mouse early gastrulation. Cell Rep. 20 (5), 1215-1228 (2017).
- Lescroart, F., et al. Defining the earliest step of cardiovascular lineage segregation by single-cell RNA-seq. Science. 359 (6380), 1177-1181 (2018).
- Scialdone, A., et al. Resolving early mesoderm diversification through single-cell expression profiling. Nature. 535 (7611), 289-293 (2016).
- Chromium Next GEM single cell 3' reagent kits v3.1: User guide. 10X Genomics. , Available from: https://www.10xgenomics.com/support/single-cell-gene-expression/documentation/steps/library-prep/chromium-single-cell-3-reagent-kits-user-guide-v-3-1-chemistry (2024).
- NextSeq 1000/2000 Sequencing v2.0 Protocol. Illumina. , Available from: https://support-docs.illumina.com/SW/ClarityLIMS-INT/Content/SW/ClarityLIMS/Integrations/NextSeq10002000Intv20Config.htm (2024).
- Dai, H. Q., et al. TET-mediated DNA demethylation controls gastrulation by regulating Lefty-Nodal signalling. Nature. 538, 528-532 (2016).
- Li, Q., et al. editing-mediated one-step inactivation of the Dnmt gene family reveals critical roles of DNA methylation during mouse gastrulation. Nat Commun. 14 (1), 2922(2023).
- Saga, Y., et al. MesP1 is expressed in the heart precursor cells and required for the formation of a single heart tube. Development. 126 (15), 3437-3447 (1999).
- Ziegenhain, C., et al. Comparative analysis of single-cell RNA sequencing methods. Mol Cell. 65 (4), 631-643 (2017).
Herprints en machtigingen
