Dit protocol beschrijft in vitro kweek van de syfilispathogeen Treponema pallidum subsp. pallidum in co-cultuur met zoogdiercellen. De methode is schaalbaar; het kan worden gebruikt om grote hoeveelheden T. pallidum te produceren en om klonale culturen te genereren.
Methodenartikel
Procedures voor in vitro kweek van Treponema pallidum, de syfilisspirocheet
In dit artikel
Samenvatting
Samenvatting
Meer dan een eeuw lang kon Treponema pallidum subsp. pallidum, de spiraalvormige bacterie die syfilis veroorzaakt, alleen worden vermeerderd door inoculatie en oogst van de organismen uit konijnentestikels. In 2018 beschreven we een methode om T. pallidumin vitro continu te kweken. Dit systeem maakt gebruik van co-cultuur met konijnenepitheelcellen (Sf1Ep-cellen) in een serumbevattend weefselkweekmedium genaamd TpCM-2. De verdubbelingstijd van T. pallidum in de kweek is vergelijkbaar met die welke naar schatting optreedt tijdens natuurlijke infectie (ongeveer 33-45 uur). Het organisme kan continu worden gekweekt met een standaard doorlooptijd van 1 week in een zuurstofarme (1,5%) omgeving bij 34 °C. Dit artikel bevat de protocollen voor het kweken van T. pallidum, methoden voor het kweken en onderhouden van de benodigde weefselkweekcellen, en de techniek voor het genereren van isogene stammen door verdunning te beperken. Het vermogen om T. pallidum in vitro te laten groeien, biedt nieuwe experimentele wegen om dit raadselachtige organisme te bestuderen en te begrijpen.
Inleiding
Treponema pallidum is een soort spiraalvormige bacterie (spirocheten genaamd) die syfilis en aanverwante infecties veroorzaakt bij mensen en andere primaten. Syfilis is een ernstige ziekte met langetermijneffecten op geïnfecteerde personen, en naar schatting komen er wereldwijd elk jaar meer dan 8 miljoen nieuwe gevallen van syfilis voor. T. pallidum is onderverdeeld in drie ondersoorten op basis van de ziekten die ze bij de mens veroorzaken en kleine genetische verschillen: ondersoort pallidum (die de seksueel overdraagbare aandoening syfilis veroorzaakt), ondersoort pertenue (yaws) en ondersoort endemicum (die bejel of endemische syfilis veroorzaakt)2,3. T. pallidum subsp. pertenue veroorzaakt ook infecties bij bavianen, chimpansees en andere primaten. Een nauw verwant organisme genaamd Treponema paraluiscuniculi (ook wel Treponema paraluisleporidarum genoemd) veroorzaakt een infectie bij konijnen en hazen 4,5. Al deze bacteriën zijn zeer nauw verwant, met een DNA-sequentie-identiteit van meer dan 98% op genoomniveau 6,7,8. Ze hebben elk een enkel, klein cirkelvormig chromosoom van ongeveer 1,14 miljoen basenparen (Mb) groot. De leden van deze T. pallidum-groep worden alleen gevonden in associatie met hun zoogdiergastheren; Als zodanig zijn het obligate ziekteverwekkers die afhankelijk zijn van hun gastheersoort voor overleving en groei 9,10.
Pogingen om T. pallidum in vitro te kweken begonnen kort na de identificatie door Schaudinn en Hoffman in 190511,12. Deze inspanningen leidden echter niet tot een consistente, reproduceerbare groei van het organisme. Als gevolg hiervan vereisten T. pallidum-onderzoeksstudies de voortplanting van het organisme door de experimentele infectie van proefdieren, meestal het konijn13,14. In 1981 introduceerden Fieldsteel et al.15 een weefselkweeksysteem dat de vermenigvuldiging van T. pallidum-stammen gedurende een periode van maximaal 2 weken bevorderde. Dit systeem omvatte co-cultuur van T. pallidum met Sf1Ep katoenstaartkonijnepitheelcellen in een gemodificeerd weefselkweekmedium (T. pallidum Culture Medium 1, TpCM-1) op basis van Eagle's Minimum Essential Medium (MEM) en 20% foetaal runderserum (FBS). Andere vereiste kweekvoorwaarden waren incubatie bij 34 °C in een atmosfeer met 1,5%O2 en 5% CO2 9,16. In dit systeem hecht T. pallidum zich aan de Sf1E-cellen en vermenigvuldigt zich wanneer het in nauwe associatie is met het celoppervlak van zoogdieren. Ondanks vele pogingen tot subculturen en andere aanpassingen, slaagde het systeem van Fieldsteel et al. er niet in om continue in vitro groei te bevorderen.
In 2018 meldde ons laboratorium dat het gebruik van een gemodificeerd medium genaamd TpCM-2 (waarin Eagle's MEM werd vervangen door een complexer weefselkweekmedium, CMRL 1066) T. pallidum de benodigde voedingsstoffen leverde om een consistente langdurige kweek mogelijk te maken17. Tot op heden heeft deze modificatie geleid tot een consistente, continue cultuur van ten minste 5 stammen van T. pallidum subsp. pallidum (Nichols, SS14, Mexico A, UW231B en UW249B) en één stam van T. pallidum subsp. endemicum (Bosnië A)18,19. Zo wordt de Nichols-stam nu al meer dan 6 jaar onafgebroken in vitro gekweekt. Tot nu toe zijn pogingen om yaws isolaten (T. pallidum subsp. pertenue) of T. paraluiscuniculiin vitro te kweken niet succesvol geweest18. Het TpCM-2-systeem vereist nog steeds de aanwezigheid van Sf1Ep-cellen, lage zuurstofconcentraties en incubatie bij 34 °C, waardoor het systeem complexer is dan de meeste bacteriekweektechnieken. Dit gemodificeerde T. pallidum-kweeksysteem is echter nuttig geweest voor het verder definiëren van de groeivereisten van de bacterie18, het bepalen van minimale remmende concentraties (MIC's) van antimicrobiële verbindingen en peptiden 20,21,22,23,24,25, het vermeerderen van nieuwe stammen uit weefselaspiraten van patiënten26, het isoleren van klonale populaties van de organisme27, het karakteriseren van het tprK-antigene variatiesysteem27,28, het onderzoeken van genexpressie29 en het uitvoeren van mutatieanalyse 30,31,32.
Hier beschrijven we de huidige methoden voor het in vitro kweken van T. pallidum. We hopen dat deze informatie zal helpen om de meer wijdverbreide toepassing van deze in vitro kweektechniek te vergemakkelijken voor de verbeterde diagnose, behandeling en preventie van syfilis en gerelateerde treponemale infecties.
Protocol
OPMERKING: Alle stappen vereisen het gebruik van een aseptische techniek en steriele materialen en reagentia. Het gebruik van een laminaire stromingskap voor weefselkweek wordt aanbevolen om zowel a) de blootstelling van personeel aan infectieus materiaal als b) de mogelijkheid van microbiële besmetting van culturen te verminderen.
1. Vaststellen van Sf1Ep-celvoorraden
OPMERKING: Sf1Ep epitheelcellen van katoenstaartkonijnen kunnen worden gekocht als bevroren voorraden uit de American Type Culture Collection (zie Materiaaltabel). De langzaam groeiende aard en lage stofwisseling van Sf1Ep-cellen lijken de sleutel te zijn tot hun vermogen om de overleving en groei op lange termijn van T. pallidum33 te ondersteunen; Daarom wordt vervanging door andere celculturen van zoogdieren niet aanbevolen. Sf1Ep-cellen zijn geen onsterfelijke cellijn en kunnen slechts 25-30 passages in cultuur worden gehouden. Daarom is het belangrijk om een bevroren voorraad Sf1E-cellen met een lage doorgang aan te houden voor toekomstig gebruik. Onsterfelijke Sf1Ep-lijnen ontstaan af en toe tijdens de langdurige kweek van Sf1Ep-cellen. (niet-gepubliceerde waarnemingen). Deze lijnen groeien vaak sneller en zijn gemakkelijker te hanteren; soms verliezen ze echter het vermogen om de groei van T. pallidum te ondersteunen. Onsterfelijke Sf1Ep-lijnen kunnen worden gebruikt en vervolgens worden vervangen wanneer de spirocheten langzaam beginnen te groeien.
- Bereid een Sf1Ep-celmedium voor en verwarm het voor in een incubator van 37 °C, 5% CO2 .
OPMERKING: Sf1Ep-celmedium bestaat uit Eagle's MEM aangevuld met 10% FBS, 1x MEM niet-essentiële aminozuren, 2 mM L-glutamine en 1 mM natriumpyruvaat. (zie Tabel met materialen). Het medium moet worden gesteriliseerd met een filter en kan maximaal 2 maanden bij 4 °C worden bewaard. Antibiotica (zoals penicilline en streptomycine) mogen niet worden gebruikt in het Sf1Ep-celmedium, omdat overdracht van zelfs sporen van de antibiotica de groei van T. pallidum zal verstoren. - Ontdooi de ingevroren Sf1Ep-bouillon snel bij 37 °C. Veeg de buitenkant van de injectieflacon af met 70% ethanol.
- Voeg 1 ml Sf1Ep-celmedium toe aan de cryovial en meng voorzichtig. Voeg het mengsel van medium/celbouillon toe aan een steriele conische centrifugebuis van 15 ml met 5 ml Sf1Ep-celmedium en meng voorzichtig.
- Pelleteer de cellen door centrifugeren bij 100 x g gedurende 7 minuten. Verwijder het supernatant en gooi het weg, zorg ervoor dat u de celpellet niet verstoort.
- Resuspendeer de ontdooide Sf1Ep-cellen voorzichtig in 15 ml vers Sf1Ep-celmedium en breng ze over in een T75-weefselkweekkolf.
OPMERKING: Het herstel van de pas ontdooide Sf1Ep-cellen wordt verbeterd door centrifugatie om de DMSO te verwijderen die wordt gebruikt om de cellen te bevriezen. De stappen 1.4-1.7 kunnen echter worden overgeslagen en de ontdooide cellen uit stap 3 kunnen direct worden gezaaid in een T75-weefselkweekkolf met 14 ml Sf1Ep-celmedium. Vervang na een nacht incubatie de helft van het medium door vers Sf1Ep-medium om de resterende DMSO te verdunnen. - Incubeer de Sf1Ep-culturen in een standaard bevochtigde weefselkweekincubator bij 37 °C, 5% CO2. Draai de doppen van niet-geventileerde weefselkweekkolven los om de juiste gemiddelde pH te behouden.
2. Passerende Sf1Ep-cellen
OPMERKING: De groei van Sf1Ep-celcultuur wordt gecontroleerd met een omgekeerde microscoop met behulp van fasecontrastoptiek. Doorgaans hebben de cellen ongeveer een week nodig om bijna samenvloeiing te bereiken. Wanneer de cellen ~90% samenvloeiing bereiken, kunnen ze worden gepasseerd, gebruikt voor de teelt van T. pallidum of de bereiding van bevroren voorraden. Het cultuurleven kan worden verlengd tot twee weken door de helft van het cultuurmedium te vervangen na een week cultuur.
- Zuig het groeimedium Sf1Ep op en gooi het uit de kolf. Spoel de cellaag af met 5 ml steriele PBS bij kamertemperatuur (RT), zuig de PBS-spoeling op en gooi deze weg.
- Voeg 2,5 ml trypsine-EDTA toe aan de kolf en sluit de dop af. Schud de kolf heen en weer om de cellaag met trypsine-EDTA te bedekken en broed de kolf gedurende 5 minuten uit bij 37 °C.
- Tik zachtjes op de kolf om de cellen los te maken. Observeer onder een omgekeerde microscoop om de verspreiding van de Sf1Ep-cellen te bevestigen.
- Voeg 5 ml Sf1Ep groeimedium toe en schud de kolf om te mengen met de trypsine-EDTA en stop de werking van de trypsine. Verwijder de gesuspendeerde Sf1Ep-cellen in een steriele conische buis.
- Kwantificeer de cellen met behulp van een hemocytometer of geautomatiseerde celteller.
- Om de werkende celvoorraden te behouden, brengt u een aliquot (0,5-1,0 ml of ~8 x 10⁵ cellen) van het medium/trypsine-EDTA/celmengsel over in een nieuwe T75-weefselkweekkolf met 15 ml vers Sf1Ep-medium.
- Voor T. pallidum-cultuur , verdun de cellen in Sf1Ep-medium tot 0,25-0,5 x 10⁵ cellen/ml en zaad in geschikte kweekvaten (tabel 1).
- Om Sf1Ep-cellen in te vriezen, draait u in een tafelcentrifuge op 100 x g gedurende 7 minuten. Verwijder het supernatans voorzichtig zonder de celkorrel te verstoren. Resuspendeer de celpellet in Sf1Ep-medium aangevuld met 10% DMSO van weefselkweekkwaliteit.
- Verdeel 1 ml van de celsuspensie over elke cryovial en vries 's nachts in bij -70 °C tot -80 °C in een geïsoleerde container (zoals een piepschuimen reageerbuishouder) om het behoud van de levensvatbaarheid te verbeteren voordat de injectieflacons worden overgebracht naar een cryogeen vat met vloeibare stikstof.
3. Het kweken van T. pallidum
LET OP: Alle ondersoorten en stammen van T. pallidum zijn pathogeen voor de mens en zijn geclassificeerd als bioveiligheidsniveau 2 (BSL-2) pathogenen34. Passende maatregelen zijn nodig om het personeel te beschermen; deze omvatten het gebruik van handschoenen en andere persoonlijke beschermingsmiddelen (PBM), evenals desinfectie van oppervlakken, materialen en vloeistoffen die mogelijk zijn blootgesteld aan T. pallidum. T. pallidum wordt gemakkelijk geïnactiveerd door blootstelling aan 70% ethanol of in de handel verkrijgbare ontsmettingsmiddelen. Consequent gebruik van laminaire stromingskappen voor het hanteren van monsters die T. pallidum bevatten, wordt aanbevolen.
OPMERKING: T. pallidum is een micro-aerofiel organisme dat kan worden gedood door een paar uur blootstelling aan atmosferische zuurstofniveaus 9,16,35. Daarom wordt aanbevolen om de behandeling van T. pallidum in de lucht indien mogelijk te beperken tot minder dan een uur. Ook moet het TpCM-2-medium vooraf in evenwicht worden gebracht in 1,5% O2, 5% CO2, balans N2, en krachtig roeren (bijv. gebruik van een vortex) moet worden beperkt. Omdat de T. pallidum-cultuur meestal wordt uitgevoerd in afwezigheid van antibiotica, is extra zorg nodig om besmetting met bacteriën of schimmels te voorkomen. De Sf1Ep-TpCM-2-procedure voor het kweken van T. pallidum is samengevat in figuur 1 en omvat meerdere stappen, waaronder het zaaien van kweekvaten met Sf1Ep-cellen, de bereiding van het TpCM-2-medium en de inoculatie van de culturen met T. pallidum. Warmte-geïnactiveerd foetaal runderserum (FBS) is een essentieel mediumcomponent en de werkzaamheid ervan varieert tussen verschillende leveranciers en partijen19. Prescreening van FBS-partijen op werkzaamheid is noodzakelijk.
- Selecteer de juiste cultuurgrootte.
OPMERKING: De T. pallidum-cultuur is schaalbaar van grote formaten (zoals75 cm 2 kolven die ~1 x 10⁹T. pallidum per cultuur opleveren) tot platen met 96 putjes (geschikt voor kloonexperimenten)17,18,19,27.- Houd bij het aanpassen van de kweekgrootte rekening met het aantal Sf1Ep-cellen en T. pallidum dat per cultuur is geïnoculeerd, evenals de benodigde hoeveelheid medium, zoals weergegeven in tabel 1. Gebruik kolven met geventileerde doppen, omdat deze een vrije circulatie van gassen mogelijk maken met minder volumeverlies door verdamping.
- Gebruik het plaatformaat met 6 putjes voor initiële culturen, omdat het handig is om drievoudsduplicaten en extra putjes op te nemen voor het geval er microbiële besmetting optreedt.
- Zaad Sf1Ep-cellen 1-2 dagen voorafgaand aan het experiment.
- Bereid een suspensie van Sf1Ep-cellen voor door trypsinisatie van stamculturen, zoals beschreven in stap 2.7.
- Bepaal de concentratie van Sf1Ep-cellen in de suspensie met behulp van een hemacytometer of geautomatiseerde celteller.
- Voeg het juiste aantal Sf1Ep-cellen en Sf1E-medium (tabel 1) toe aan elke cultuur. Incubeer de culturen bij 37 °C in een standaard weefselkweekincubator met 5% CO2 tot gebruik.
- Bereid TpCM-2 1 dag voor het experiment voor.
OPMERKING: TpCM-2 kan worden bereid en enkele maanden bij -20 °C worden bewaard. Het medium moet de dag vóór het experiment worden ontdooid en in evenwicht worden gebracht in de zuurstofarme incubator.- Verkrijg steriele oplossingen voor de componenten van TpCM-2 (tabel 2) in de handel of bereid ze voor uit droge reagentia en filtreer ze met een filter. Bewaar de oplossingen maximaal 2 maanden bij 4 °C. Stel de pH van de MOPS-buffer in op 7,5 voorafgaand aan de sterilisatie van het filter; anders hoeven de componenten of de uiteindelijke TpCM-2 niet pH-aangepast te worden.
OPMERKING: Het gebruik van steriel gedestilleerd water van weefselkweekkwaliteit voor de bereiding van de mediumcomponenten wordt aanbevolen. - Combineer de reagentia vermeld in Tabel 2 in een steriele container en voeg dithiothreitol (DTT) toe als droge poederleest (om de oxidatie te minimaliseren). Schaal de hoeveelheden van elk onderdeel op (of af) om de benodigde hoeveelheid TpCM-2 te bereiden. Meng en filtreer het medium voorzichtig met behulp van een filtereenheid van 0,22 μm.
- Draai het deksel van de kolf met de TpCM-2 los. Breng het medium vooraf in evenwicht door het in een anaërobe (brouw)pot te plaatsen, driemaal te evacueren en opnieuw te vullen met een 95% N2, 5% CO2 -gasmengsel en vervolgens te vullen met 1,5% O2, 5% CO2, balans N2 gasmengsel na de definitieve evacuatie. Een voorbeeld van een systeem voor het uitvoeren van dit gasuitwisselingsproces is weergegeven in figuur 2.
- Breng het medium snel over naar een tri-gasincubator die is opgesteld om een atmosfeer van 1,5% O2, 5% CO2 te leveren en deN2-atmosfeer in evenwicht te brengen bij 34 °C. Als alternatief kan de anaërobe pot met het medium na de in punt 3.3.3 beschreven gasuitwisseling worden afgesloten en naar een standaardincubator worden overgebracht.
- Verkrijg steriele oplossingen voor de componenten van TpCM-2 (tabel 2) in de handel of bereid ze voor uit droge reagentia en filtreer ze met een filter. Bewaar de oplossingen maximaal 2 maanden bij 4 °C. Stel de pH van de MOPS-buffer in op 7,5 voorafgaand aan de sterilisatie van het filter; anders hoeven de componenten of de uiteindelijke TpCM-2 niet pH-aangepast te worden.
- Controleer op de ochtend van het experiment de Sf1E-culturen met een omgekeerde microscoop. Zorg ervoor dat de cellen zijn bevestigd en 5%-10% samenvloeien. Verwijder het medium aseptisch.
- Spoel de putjes kort af met een klein volume (0,2 ml tot 2 ml, afhankelijk van de grootte van het vat) van het vooraf gebalanceerde TpCM-2, verwijder het spoelen en voeg de juiste hoeveelheid TpCM-2 toe (tabel 1). Breng de platen in evenwicht in een atmosfeer van 1,5% O2, 5% CO2 en balanceer deN2-atmosfeer bij 34 °C gedurende 3-4 uur zoals eerder beschreven.
- Breng de platen over naar een laminaire vloeikap en inoculeer met het juiste nummer (tabel 1) van T. pallidum uit bevroren voorraden of getrypsiniseerde preparaten uit vers geoogste culturen (zoals hieronder beschreven). Er mag ook vers bereide of ingevroren bouillon worden gebruikt die aseptisch is verzameld bij besmette konijnen13. Breng de platen opnieuw in evenwicht zoals beschreven in 3.3.3 en broed de culturen uit in een atmosfeer van 1,5% O2, 5 % CO2 en breng de N. 2-atmosfeer in evenwicht bij 34 °C.
4. Oogsten en doorgeven van T. pallidum culturen
OPMERKING: Omdat het grootste deel van T. pallidum in cultuur is gehecht aan het oppervlak van de Sf1Ep-cellen, is het noodzakelijk om de treponemes te dissociëren van de zoogdiercellen om ze terug te halen en een nauwkeurige telling van de organismen te verkrijgen. Zo'n 'oogst' en overgang naar verse culturen wordt meestal gedaan op dag 7 van de cultuur. De hier beschreven procedure is voor platen met 6 putjes; de hoeveelheid trypsine-EDTA-oplossing die wordt gebruikt, wordt naar boven of naar beneden aangepast, afhankelijk van de grootte van het kweekformaat 17,19,27.
- Verwijder op het moment van oogsten de culturen uit de broedmachine. Onderzoek de Sf1Ep-cellaag in elk putje met behulp van een omgekeerde fasecontrastmicroscoop en noteer de celdichtheid (bijv. 80% confluent) en het uiterlijk. Let ook op de kleur van de TpCM-2; de resazurine-indicator verandert vaak van roze naar geel als gevolg van een lagere pH.
- Pipeteer het medium uit elk putje in een steriel conisch buisje van 15 ml, waarbij u voor elk putje afzonderlijke pipetten gebruikt om kruisbesmetting te voorkomen. Spoel elk putje af met 0,35 ml voorverwarmde trypsine-EDTA-oplossing en voeg het spoelen toe aan het medium.
- Voeg nog eens 0,35 ml trypsine-EDTA-oplossing toe aan elk putje en incubeer de plaat gedurende 5 minuten in een standaard incubator van 37 °C; een lage O2-atmosfeer is niet vereist voor deze korte periode.
- Controleer op de afronding en loslating van de Sf1Ep-cellen, wat ook correleert met de dissociatie van T. pallidum van de zoogdiercellen. Bewaak dit proces met behulp van de omgekeerde microscoop en geef indien nodig extra tijd of een Trypsine-EDTA-oplossing. Het dissociatieproces wordt vergemakkelijkt door zachtjes met een plastic reageerbuisrek of iets dergelijks op de zijkant van de geïmmobiliseerde plaat te tikken.
- Pipeteer het gereserveerde medium en spoel het in de put om de gedissocieerde T. pallidum en cellen op te halen. Noteer het totale opgehaalde volume voor de berekening van de opbrengst per cultuur.
- Breng in de meeste experimenten een bepaald volume van de geoogste T. pallidum over naar kweekplaten met verse Sf1Ep-cellen en TpCM-2. Breng in dergelijke gevallen ongeveer 1/20ste van het kweekvolume over (zoals 200 μl voor een plaatcultuur van 4 ml met 6 putjes); pas dit volume naar boven of naar beneden aan, afhankelijk van of de T. pallidum-stam snel of langzaam groeit. Verwijder de Sf1E-cellen in het inoculum door centrifugatie bij 100 x g gedurende 5 minuten, maar deze stap is niet nodig voor routinematige transfers.
- Onmiddellijk nadat de platen voor een experiment zijn geïnoculeerd, wordt de atmosfeer in de platen verwisseld door middel van het evacuatie- en bijvulproces (stap 3.3.3). Incubeer de platen bij 34 °C in de brouwpot of breng ze over naar een tri-gasincubator.
- Inventariseer T. pallidum door middel van donkerveldmicroscopie met behulp van een Helber-telkamer of een soortgelijk apparaat, volgens de instructies van de fabrikant.
OPMERKING: De Helber-kamer is een gekalibreerd glasplaatje en dekglaasje dat de nauwkeurigheid en reproduceerbaarheid van het aantal bacteriën aanzienlijk verbetert; De kamer is gemakkelijk te desinfecteren, schoon te maken en te drogen met 70% ethanol en papieren zakdoekjes en kan voor onbepaalde tijd worden hergebruikt. Idealiter zou de donkerveldmicroscoop een 40x objectief en 15x oculairs moeten hebben. Voer dubbele tellingen uit voor elke cultuur en noteer het aantal beweeglijke en niet-beweeglijke T. pallidum en eventuele morfologische veranderingen die worden geregistreerd. Kwantitatieve PCR (qPCR) kan ook worden gebruikt in gevallen waarin nauwkeurige kwantificering en bepaling van de beweeglijkheid niet vereist zijn 17,24. - In experimenten waarbij behandeling met trypsine niet wenselijk is (zoals die waarbij het eiwitgehalte van T. pallidum wordt onderzocht), gebruik een EDTA-dissociatiemedium om de T. pallidum en de celmonolaag te dissociëren17,19.
OPMERKING: Dissociatiemedium bestaat uit FBS dat is gedialyseerd tegen fosfaatgebufferde zoutoplossing (PBS) of Earle's Basic Salt Solution (EBSS) zonder calciumchloride en magnesiumchloride om tweewaardige kationen te verwijderen in een vereenvoudigd T. pallidum kweekmedium (Tabel 2). Deze procedure kan een langere periode duren (tot 30 minuten) of een herhaalde behandeling voor volledige dissociatie.
5. Invriezen en bewaren van T. pallidum culturen
OPMERKING: T. pallidum kan voor onbepaalde tijd worden bewaard bij of onder -70 °C, waarbij de levensvatbaarheid bij ontdooiing doorgaans 50%-90% is.
- Vries T. pallidum culturen bij de oogst in met toevoeging van 10% (v/v) glycerol. Verdeel de glycerol door het hele preparaat door middel van zacht pipetteren of inversie. Verdeel het preparaat vervolgens in aliquots van 1-2 ml in diepvriesflacons met schroefdop en plaats de flacons onmiddellijk in een vriezer van -80 °C of een vriezer met vloeibare N2-code.
- Om een T. pallidum-cultuur uit bevroren bouillon te starten, bereidt u eerst de geschikte kweekvat(en) voor die Sf1Ep-cellen en TpCM-2 bevatten, zoals beschreven in sectie 3. Ontdooi de injectieflacon met de bevroren T . pallidum bouillon snel; Voorzichtig gebruik van een waterbad van 37 °C of verwarmingsblok is in dit opzicht nuttig.
- Breng vervolgens het ontdooide preparaat over naar de kweekvat(en). Zorg ervoor dat de verhouding tussen het volume van de bevroren bouillon en het Tp-CM2-medium 1:5 of hoger is om voldoende verdunning van glycerol te garanderen om de overleving en groei van T. pallidum te bevorderen.
- Incubeer de cultuur gedurende 7 dagen onder micro-aerobe omstandigheden en breng over naar verse culturen zoals beschreven in deel 4.
6. Het genereren van isogene klonen van T. pallidum
OPMERKING: Deze procedure wordt in detail beschreven in een eerdere studie27.
- In een typisch experiment bereidt u twee platen met 96 putjes met 1000 Sf1Ep-cellen en 200 μl TpCM-2 per putje voor en pre-equibileert u deze, zoals beschreven in sectie 3.
OPMERKING: Een meerkanaals pipetor van 200 μl en compatibele steriele reagensreservoirs voor eenmalig gebruik vereenvoudigen de stappen voor Sf1E-celinoculatie, mediumuitwisseling en inoculatie aanzienlijk. - Kwantificeer de concentratie van T. pallidum in een vers geoogst preparaat met behulp van een donkerveldmicroscoop en een Helberkamer (stap 4.8). Verdun de T. pallidum-suspensie in TpCM-2 tot twee preparaten met concentraties van 10 treponemes/ml en 40 treponemes/ml; 10 ml van elk preparaat is meer dan voldoende om bij elke verdunning één plaat met 96 putjes te inoculeren. Bereid ter controle 1 ml van een andere verdunning met 2 x 10³ T. pallidum/ml.
- inoculeert met een standaard eenkanaalspipet of een meerkanaalspipet 50 μl per putje van het 10 T. pallidum/ml-preparaat in een van de voorbereide platen met 96 putjes, waarbij u twee controleputjes weglaat. Herhaal dit proces met het 40 T. pallidum/ml preparaat en de andere plaat. Inoculeer in de twee controleputjes in elke plaat de 2 x 10³ T. pallidum/ml verdunning. Dit proces levert platen op met (gemiddeld) 0,5 of 2 T. pallidum per putje, samen met positieve controleputjes met 100 T. pallidum.
OPMERKING: De uitplatingsefficiëntie van T. pallidum is onder deze omstandigheden laag, dus zelfs putten die zijn ingezaaid met ~2 organismen zullen waarschijnlijk klonale populaties opleveren. - Breng de platen in evenwicht met het gasmengsel met een laagO2-gehalte (stap 3.3.3) en broed ze uit in een brouwerpot of tri-gasincubator bij 34 °C.
- Verwijder na 7 dagen 100 μL medium uit elk cultuurputje en vervang het door 100 μL vers, evenwichtig TpCM-2. Controleer de levensvatbaarheid en groei van T. pallidum in de controleputjes door middel van donkerveldmicroscopie en telling om er zeker van te zijn dat de kweekomstandigheden de vermenigvuldiging van T. pallidum ondersteunen.
OPMERKING: Zorg ervoor dat u voor elk putje een nieuwe pipetpunt gebruikt om kruisbesmetting van klonale culturen te voorkomen. - Breng na 14 dagen 50 μl van het bovendrijvende stof van elk putje over op verse platen die zijn bereid volgens stap 6.1.
- Herhaal indien nodig afwisselend voeden en passageren op dag 21 en 28.
- Bewaak de aanwezigheid van T. pallidum in elk putje met behulp van donkerveldmicroscopie of qPCR26.
OPMERKING: Met de langzame groeisnelheid van T. pallidum en het noodzakelijke verlies van organismen tijdens het voeden en overbrengen, zijn de putjes die zijn bezaaid met 0,5 of 2 T. pallidum meestal niet positief volgens beide methoden tot dag 28 of daarna. - Zodra positieve putjes zijn geïdentificeerd, trypsiniseert u en brengt u deze putjes over naar platen met 24 putjes voor verdere uitbreiding. Bepaal de klonaliteit aan de hand van het overwicht van een enkele tprK-sequentie en de aanwezigheid van enkelvoudige sequenties op plaatsen die heterogeen zijn in de ouderstam27.
Resultaten
Met behulp van de beschreven omstandigheden behoudt T. pallidum doorgaans 90% beweeglijk>heid en vermenigvuldigt hij zich logaritmisch met een verdubbelingstijd van 33 uur tot 45 uur gedurende ongeveer 7 dagen voordat hij de stationaire fase ingaat (Figuur 3). In de loop van 1 week ondergaan de spirocheten ongeveer 4-5 verdubbelingen (Figuur 4). ). Bovendien kunnen verschillende stammen van T. pallidum met verschillende snelheden groeien. Stammen van de SS14-groep van T. pallidum hebben de neiging om langzamere verdubbelingstijden te hebben dan die van de Nichols-groep17.
Het voeden van culturen kan de kweektijd met enkele dagen verlengen, maar de Sf1Ep-cellaag faalt vaak na een week kweken. Bovendien bereiken de treponemes een bovengrens van organismen van ongeveer 5 x 10⁷/ml. Culturen die met tussenpozen van 7 dagen worden overgedragen, gaan doorgaans door met logaritmische vermenigvuldiging met weinig of geen vertragingsfase. Organismen in de stationaire fase worden vaak moeilijk te passeren.
De meeste T. pallidum zijn gehecht aan de Sf1Ep-cellen. Er blijft echter genoeg T. pallidum in het supernatans dat mediummonsters periodiek kunnen worden verwijderd om de levensvatbaarheid en vermenigvuldiging te controleren. Indien zorgvuldige kwantificering vereist is, moet het volume van het verwijderde medium worden gemeten, het aantal T. pallidum worden gekwantificeerd en het totale aantal verwijderde organismen worden opgeteld bij de uiteindelijke tellingen bij de oogst.
In eerdere studies was de kloneringsefficiëntie (aantal culturen positief per geïnoculeerd organisme) 12,5% voor 2 T. pallidum geënt per putje en 6,7% voor 0,5 T. pallidum geënt perputje 27. Het is dus waarschijnlijk dat elke positieve put de uitgroei van een enkel organisme bij een van deze inocula vertegenwoordigt. De klonaliteit van de resulterende populaties moet echter worden geverifieerd door de cultuur te onderzoeken op homogeniteit op plaatsen die heterogeen zijn in de moedercultuur. De meest definitieve manier om aan te tonen dat de cultuur isogeen is, is door middel van sequencing van het hele genoom27.
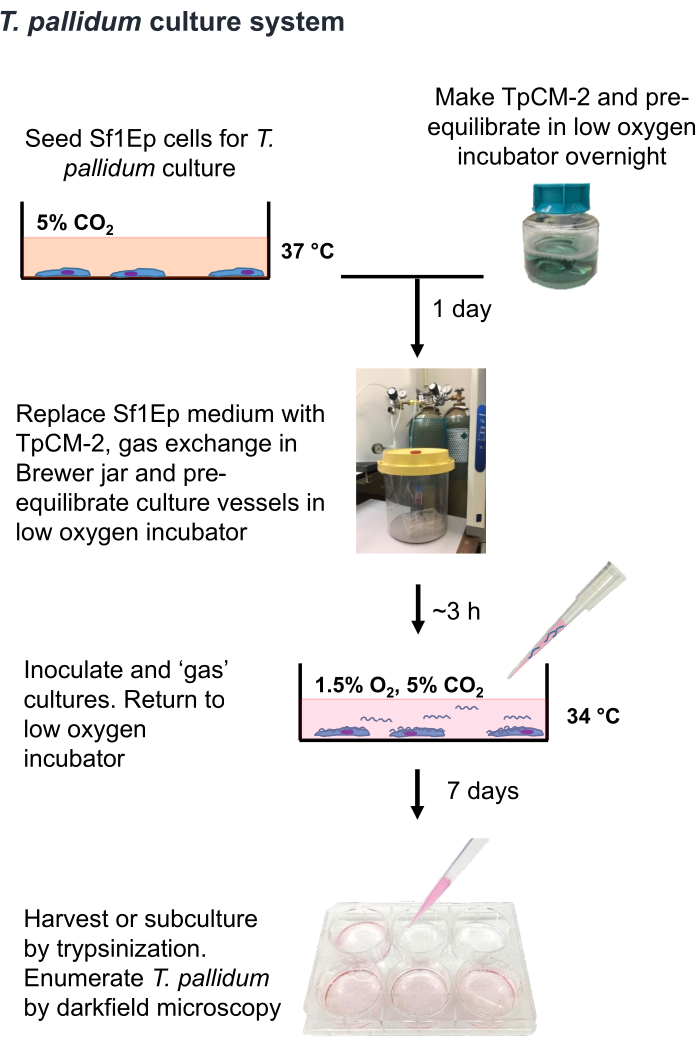
Figuur 1: Stroomschema van de T. pallidumin vitro kweekprocedure. Dit cijfer is herdrukt met toestemming van Edmondson en Norris (2021)19. Klik hier om een grotere versie van deze figuur te bekijken.
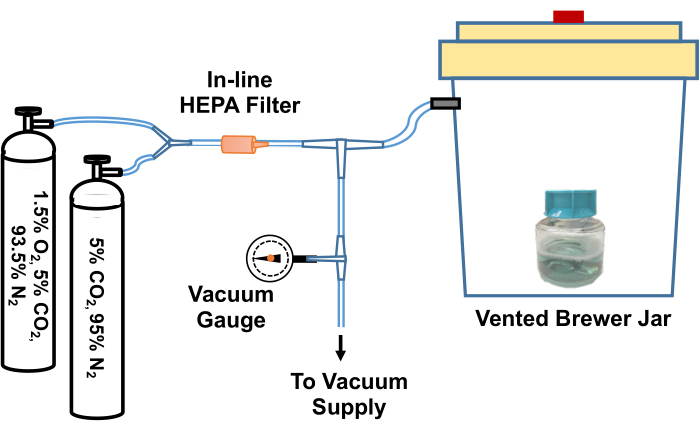
Figuur 2: Diagram van het systeem om T. pallidum cultuurreagentia in evenwicht te brengen met een zuurstofarme omgeving. Een Brewer jar ontluchting wordt via een T-verbinding verbonden met een vacuümbron (zoals een huisstofzuiger) en met gasflessen met op maat gemaakte gasmengsels (5% CO2, balansstikstof en 1,5% O2, 5% CO2, balansstikstof). Een in-line vacuümmeter meet het vacuüm dat in de pot wordt getrokken. Het vacuüm wordt in de pot getrokken tot ongeveer -58 kPa. De geëvacueerde pot wordt vervolgens langzaam opnieuw gevuld met de gasmengsels. De brouwpot wordt drie keer bijgevuld met 5% CO2, evenwichtsstikstof voor een definitieve evacuatie en opnieuw gevuld met 95% N2, 5% CO2, 1,5% O2. Culturen of media worden vervolgens uit de pot gehaald en snel overgebracht naar de zuurstofarme incubator. Als alternatief kan de slang tussen de brouwpot en de eerste T-verbinding stevig worden vastgeklemd, kan de slang worden losgekoppeld van de T-verbinding en kan de hele brouwerpot worden overgebracht naar een incubator van 34 °C. Dit cijfer is herdrukt met toestemming van Edmondson en Norris (2021)19. Klik hier om een grotere versie van deze figuur te bekijken.
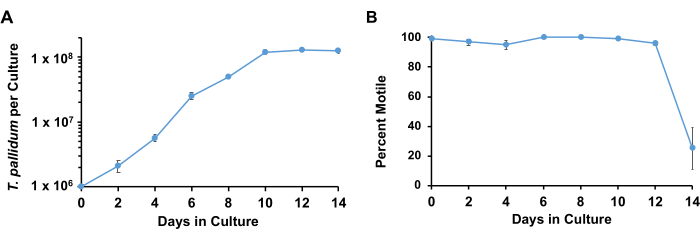
Figuur 3: Groeicurves van T. pallidum gekweekt met Sf1Ep-cellen met TpCM-2 medium. Parallelle drievoudculturen werden gezaaid met T. pallidum. Replicaten werden op elk tijdstip geoogst; de resultaten vertegenwoordigen het gemiddelde + SEM voor deze culturen. (A) De veranderingen in T. pallidum per cultuur en (B) percentage beweeglijkheid worden weergegeven. Dit cijfer is aangepast met toestemming van Edmondson et al.18. Klik hier om een grotere versie van deze figuur te bekijken.
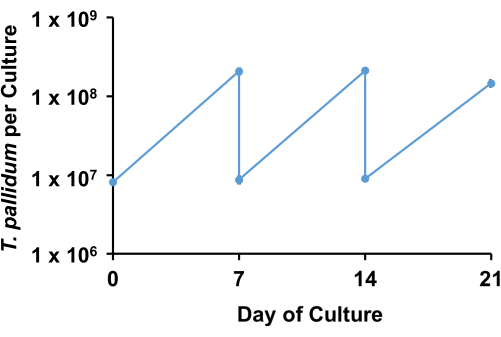
Figuur 4: Voorbeeld van het passeren van in vitro cultuur van T. pallidum, Nichols-stam. Parallelle drievoudculturen werden gezaaid met T. pallidum en wekelijks gepasseerd met behulp van een verdunning van 1:20. De zaagtanddiagram toont de aantallen T. pallidum per cultuur en het aantal dat op elk tijdstip naar nieuwe culturen is overgebracht. De resultaten vertegenwoordigen het gemiddelde ± SEM voor drie biologische replicaten. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Gemiddeld volume en zaaiverhoudingen voor kweekvaten. Klik hier om deze tabel te downloaden.
Tabel 2: Media voor de teelt van T. pallidum . Alle media moeten na bereiding worden gesteriliseerd. Sf1Ep medium kan maximaal twee maanden bij 4 °C worden bewaard. TpCM-2 wordt meestal een dag voor gebruik gemaakt. Het dissociatiemedium moet worden gealiciteerd en ingevroren. Klik hier om deze tabel te downloaden.
Discussie
Het Sf1Ep-TpCM-2-systeem is het eerste beschikbare procedé dat de continue in vitro kweek van T. pallidum bevordert. Het systeem is complex vanwege de extreme groei-eisen van dit organisme: 1) complexe voedingsbehoeften vanwege beperkte biosynthetische mogelijkheden; 2) een slecht begrepen behoefte aan kleine hoeveelheden zuurstof, ondanks een hoge gevoeligheid voor reactieve zuurstofsoorten 9,10,16,36; en 3) de huidige behoefte aan de aanwezigheid van Sf1Ep-cellen. Hoewel het verleidelijk is om 'de kantjes eraf te lopen' op de procedure, wordt aanbevolen om de stappen zorgvuldig te volgen totdat een succesvolle langetermijncultuur is bereikt voordat u wijzigingen probeert. Naarmate aanvullende informatie over de metabole vereisten van T. pallidum zich opstapelt, kan het mogelijk zijn om axenische aandoeningen te ontwikkelen die de aanwezigheid van Sf1Ep-cellen niet vereisen. De in vitro groeisnelheid zal echter waarschijnlijk traag blijven (met een minimale verdubbelingstijd van 33 uur tot 46 uur, afhankelijk van de stam)17,18, aangezien T. pallidum zich vermenigvuldigt met een geschatte verdubbelingstijd van 30 uur tot 33 uur, zelfs tijdens zoogdierinfectie37,38. Zoals bij elke bacteriecultuur wordt aanbevolen om voorraden met een lage passage aan te houden en om experimenten uit te voeren met T. pallidum-culturen die minder dan 10 passages van deze bestanden verwijderd zijn om 'genetische drift' en daarmee samenhangende fenotypische veranderingen als gevolg van mutaties te voorkomen.
Sf1Ep-cellen leveren blijkbaar essentiële voedingsstoffen of enzymatische activiteiten aan de treponemes. Ze consumeren echter ook voedingsstoffen (zoals glucose en zuurstof) en kunnen toxische omstandigheden veroorzaken, zoals een lage pH 9,16,39. Daarom is er een evenwichtsoefening tussen het hebben van voldoende Sf1Ep-cellen om de vermenigvuldiging van T. pallidum te ondersteunen en het voorkomen van overgroei en toxiciteit van zoogdiercellen. Hoge passageaantallen van Sf1Ep-cellen hebben de neiging om sneller te groeien en verliezen soms het vermogen om de vermenigvuldiging van T. pallidum te ondersteunen. Als zodanig moet het Sf1EP-passagenummer worden gecontroleerd en moet de celvoorraad periodiek worden vervangen door ingevroren preparaten met een lage passage. De aanwezigheid van Sf1Ep-cellen bemoeilijkt ook de studie van T. pallidum-eigenschappen zoals DNA-, RNA- en eiwitinhoud en enzymactiviteiten. Verwijdering van de konijnencellen is tot op zekere hoogte mogelijk door herhaalde centrifugatie op lage snelheid (100 x g gedurende 5 min) of, effectiever, door gebruik te maken van Percoll- of Hypaque-gradiënten40,41. De gradiëntcentrifugatiemethoden zijn echter over het algemeen alleen effectief bij hoge aantallen T. pallidum. Alternatieve methoden voor de vermeerdering van T. pallidum zijn beperkt tot infectie van proefdieren zoals konijnen13,14. Deze aanpak heeft ethische overwegingen en is steeds duurder geworden; het konijnenmodel is echter zeer nuttig voor het bestuderen van de pathogenese van T. pallidum en de immuunresponsen van de gastheer. Bovendien zijn er waarschijnlijk enkele verschillen in genexpressie, groei of gedrag van T. pallidum tijdens in vitro kweek en konijneninfectie27.
Op het moment van dit rapport is het Sf1Ep-TpCM-2-systeem vastgesteld in ten minste 6 onderzoeksgroepen in de Verenigde Staten en Europa en heeft het geresulteerd in 16 publicaties met onderwerpen variërend van T. pallidum basisbiologie en genetica tot antimicrobiële gevoeligheid. De waarde van in vitro cultuur bij het bestuderen van deze raadselachtige ziekteverwekker zal waarschijnlijk toenemen met uitgebreid gebruik en toekomstige verbeteringen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
Dit werk werd ondersteund door subsidie R01 AI141958 van de National Institutes of Health / NIAID van de Verenigde Staten. De financiers hadden geen rol bij de opzet van het onderzoek, de gegevensverzameling en -analyse, de beslissing om te publiceren of de voorbereiding van het manuscript.
Materialen
```html
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.5 M EDTA, pH 8.0 | Sigma | E8008 | |
| 10x Earle’s Balanced Salts, w/o Mg2+, Ca2+ | Gibco | 14155063 | |
| 15 and 50 mL conische steriele wegwerp centrifuge buizen | N/A | N/A | |
| 2 mL cryogene vloeibare vials | Corning | 430659 | |
| 6-well cellcultuur platen voor T. pallidum cultivatie | Falcon | 353046 | De platen moeten beschikken over deksels met lage verdamping. |
| 70% ethanol | N/A | N/A | |
| 75 cm2 weefselcultuur kolven met geventileerde doppen | Corning | 43061U | |
| 93.5% stikstof, 5% CO2, en 1,5% zuurstof voor pre-equilibrering van medium en culturen | N/A | N/A | |
| 95% stikstof en 5% CO2 voor pre-equilibrering van medium en culturen | N/A | N/A | |
| 96-well laag verdamping heldere, platte bodem weefselcultuur behandelde microplates | Corning Falcon | 353072 | |
| Verstelbare multi-kanaals pipet met 200 ul capaciteit | N/A | N/A | Optioneel, maar zeer nuttig voor klonen |
| Cellcultuur kwaliteit water | Sigma | W3500 | |
| CMRL 1066 zonder L-Glutamine of Fenol Rood | US Biological | C5900-03A | |
| CO2 voor tri-gas en weefselcultuur incubators | N/A | N/A | |
| Cryogene vloeibare stikstof weefselcultuur opslagtank | N/A | N/A | |
| D-glucose | Sigma-Aldrich | G6152 | |
| Weggebruikbare filter units, 0,2 µm, > 100 mL capaciteit | N/A | N/A | |
| Weggebruikbare pipetten: 25 mL, 10 mL, 5 mL, aspirant | N/A | N/A | |
| DL-Dithiothreitol | Sigma-Aldrich | D9779 | |
| D-Mannitol | Sigma-Aldrich | M1902 | |
| DMSO (steriele cellcultuur kwaliteit) | Sigma-Aldrich | D2650 | |
| Eagle’s MEM | Sigma-Aldrich | M4655 | |
| Foetaal bovien serum, hitte geactiveerd | Sigma-Aldrich | F4135 | We bevelen dit product sterk aan. Moet pre-screenen voor T. pallidum cultuur compatibiliteit als u een ander merk of catalogusnummer gebruikt. |
| Freezer met mogelijkheid om -70 °C of -80 °C te handhaven | N/A | N/A | Voor opslag van T. pallidum; vloeibare stikstof opslag kan ook worden gebruikt |
| Freezing medium (Sf1Ep medium + 10% [v/v] DMSO) | N/A | N/A | |
| Gasflessen met geschikte fittingen | N/A | N/A | |
| GasPak 150 geventileerde anaërobe pot (Brewer Pot) | Fisher Scientific | 11-816 | |
| Glycerol | N/A | N/A | |
| Helber tellkamers met Thoma rulings | Hawksley Medical and Laboratory Equipment | Voor het kwantificeren van T. pallidum | |
| Hemocytometer | N/A | N/A | Voor Sf1Ep cel kwantificering |
| Incubator tank schakelaar | NuAire | NU-1550 TankGuard Automatic CO2 Incubator Tank Switch | Optioneel, maar zeer nuttig bij het handhaven van geschikte O2 omstandigheden. |
| Inverteer microscoop met fase contrast optiek | N/A | N/A | Voor het bekijken van Sf1Ep cel culturen |
| L-Glutamine | Sigma-Aldrich | G7513 | |
| L-Histidine | Sigma-Aldrich | H6034 | |
| MEM Niet-Essentiële Aminozuren | Gibco | 11140-050 | |
| Microscoop met darkfield condensor | N/A | N/A | De microscoop moet een 40x objectief en 15x oogstukken hebben. |
| MOPS | Sigma-Aldrich | M3183 | |
| Multi-kanaals adapter voor aspirator | Integra | 155520 | Optioneel, maar nuttig voor klonen |
| NaHCO3 (7,5%) | Sigma-Aldrich | S8761 | |
| Stikstof voor tri-gas incubator | N/A | N/A | |
| Resazurin | Sigma-Aldrich | R7017 | |
| Sf1Ep (NBL-11) cellen | American Type Culture Collection | CCL-68 | |
| Natriumpyruvaat | Sigma-Aldrich | S8636 | |
| Steriele PBS (zonder calciumchloride en magnesiumchloride) | Sigma-Aldrich | D8537 | |
| Steriele reagent reservoirs, 50 of 100 mL grootte | N/A | N/A | |
| T. pallidum monster, bevroren of vers | van een konijn infectie of in vitro cultuur | ||
| Weefselcultuur incubator gehandhaafd bij 37 °C, 5% CO2 | N/A | N/A | |
| Tri-gas weefselcultuur incubator gehandhaafd bij 34 °C, 5% CO2, 1,5% O2 | Thermofisher | Heracell™ VIOS 160i Tri-Gas CO2 Incubator | Optioneel; anaërobe potten kunnen in plaats daarvan worden gebruikt (zie Ref. 17) |
| Trypsin-EDTA oplossing | Sigma-Aldrich | T4049 | |
| Vacuum bron (bijv. huis vacuüm), vacuümbuis, vacuümmeter en connectoren | N/A | N/A | |
| Water, geschikt voor celcultuur, filter |
Referenties
- Implementing the global health sector strategies on HIV, viral hepatitis and sexually transmitted infections, 2022-2030: Report on progress and gaps. World Health Organization. , Available from: https://www.who.int/publications/i/item/9789240094925 2022-2030 (2024).
- Antal, G. M., Lukehart, S. A., Meheus, A. Z. The endemic treponematoses. Microbes Infect. 4 (1), 83-94 (2002).
- Norris, S. J., Paster, B. J., Smibert, R. M. Bergey's Manual of Systematic Bacteriology. 4, Springer. New York, NY. (2010).
- Lumeij, J. T., Mikalová, L., Šmajs, D. Is there a difference between hare syphilis and rabbit syphilis? Cross infection experiments between rabbits and hares. Vet Microbiol. 164 (1-2), 190-194 (2013).
- Knauf, S., et al. High prevalence and genetic diversity of Treponema paraluisleporidarum isolates in European lagomorphs. Microbiol Spectr. 12 (1), e0177423(2024).
- Šmajs, D., et al. Complete genome sequence of Treponema paraluiscuniculi, strain Cuniculi A: the loss of infectivity to humans is associated with genome decay. PLoS One. 6 (5), e20415(2011).
- Šmajs, D., Norris, S. J., Weinstock, G. M. Genetic diversity in Treponema pallidum: implications for pathogenesis, evolution and molecular diagnostics of syphilis and yaws. Infect Genet Evol. 12 (2), 191-202 (2012).
- Šmajs, D., Strouhal, M., Knauf, S. Genetics of human and animal uncultivable treponemal pathogens. Infect Genet Evol. 61, 92-107 (2018).
- Norris, S. J., Cox, D. L., Weinstock, G. M. Biology of Treponema pallidum: correlation of functional activities with genome sequence data. J Mol Microbiol Biotechnol. 3 (1), 37-62 (2001).
- Radolf, J. D., et al. Treponema pallidum, the syphilis spirochete: making a living as a stealth pathogen. Nat Rev Microbiol. 14 (12), 744-759 (2016).
- Schaudinn, F. R., Hoffman, E. Vorläufiger bericht über das Vorkommen für Spirochaeten in syphilitischen Krankheitsprodukten und bei Papillomen. Arb Gesundh Amt Berlin. 22, 528-534 (1905).
- Schaudinn, F., Hoffmann, E. Über Spirochaetenbefunde im Lymphdrüsensaft Syphilitischer. Deut Med Wochenschr. 31 (18), 711-714 (1905).
- Turner, T. B., Hollander, D. H. Biology of the treponematoses. World Health Organization. , (1957).
- Lukehart, S. A., Marra, C. M. Isolation and laboratory maintenance of Treponema pallidum. Curr Protoc Microbiol. , Chapter 12, Unit 12A.1 (2007).
- Fieldsteel, A. H., Cox, D. L., Moeckli, R. A. Cultivation of virulent Treponema pallidum in tissue culture. Infect Immun. 32, 908-915 (1981).
- Cox, D. L. Culture of Treponema pallidum. Meth Enzymol. 236, 390-405 (1994).
- Edmondson, D. G., Hu, B., Norris, S. J. Long-term in vitro culture of the syphilis spirochete Treponema pallidum subsp. pallidum. mBio. 9 (3), e01153-e01218 (2018).
- Edmondson, D. G., DeLay, B. D., Kowis, L. E., Norris, S. J. Parameters affecting continuous in vitro culture of Treponema pallidum strains. mBio. 12 (1), e03536-e03620 (2021).
- Edmondson, D. G., Norris, S. J. In vitro cultivation of the syphilis spirochete Treponema pallidum. Curr Protoc. 1 (2), e44(2021).
- Edmondson, D. G., Wormser, G. P., Norris, S. J. In vitro susceptibility of Treponema pallidum subsp. pallidum to doxycycline. Antimicrob Agents Chemother. 64 (10), e00979-e01020 (2020).
- Leimer, N., et al. A selective antibiotic for Lyme disease. Cell. 184 (21), 5405-5418 (2021).
- Haynes, A. M., et al. Efficacy of linezolid on Treponema pallidum, the syphilis agent: A preclinical study. EBioMedicine. 65, 103281(2021).
- Houston, S., et al. Identification and functional characterization of peptides with antimicrobial activity From the syphilis spirochete, Treponema pallidum. Front Microbiol. 13, 888525(2022).
- Tantalo, L. C., et al. Antimicrobial susceptibility of Treponema pallidum subspecies pallidum: an in-vitro study. Lancet Microbe. 4 (12), e994-e1004 (2023).
- Hayes, K. A., Dressler, J. M., Norris, S. J., Edmondson, D. G., Jutras, B. L. A large screen identifies beta-lactam antibiotics which can be repurposed to target the syphilis agent. NPJ Antimicrob Resist. 1 (1), 4(2023).
- Tantalo, L. C., Molini, B. J., Bose, M., Klausner, J. D., Giacani, L. In vitro isolation of Treponema pallidum subsp. pallidum from fresh and frozen needle aspirates of primary experimental syphilis lesions. Sex Transm Dis. 50 (3), 180-183 (2023).
- Edmondson, D. G., De Lay, B. D., Hanson, B. M., Kowis, L. E., Norris, S. J. Clonal isolates of Treponema pallidum subsp. pallidum Nichols provide evidence for the occurrence of microevolution during experimental rabbit infection and in vitro culture. PLoS One. 18 (3), e0281187(2023).
- Lin, M. J., et al. Longitudinal TprK profiling of in vivo and in vitro-propagated Treponema pallidum subsp. pallidum reveals accumulation of antigenic variants in absence of immune pressure. PLoS Negl Trop Dis. 15 (9), e0009753(2021).
- De Lay, B. D., Cameron, T. A., De Lay, N. R., Norris, S. J., Edmondson, D. G. Comparison of transcriptional profiles of Treponema pallidum during experimental infection of rabbits and in vitro culture: Highly similar, yet different. PLoS Pathog. 17 (9), e1009949(2021).
- Romeis, E., et al. Genetic engineering of Treponema pallidum subsp. pallidum, the syphilis spirochete. PLoS Pathog. 17 (7), e1009612(2021).
- Phan, A., Romeis, E., Tantalo, L., Giacani, L. In vitro transformation and selection of Treponema pallidum subsp. pallidum. Curr Protoc. 2 (8), e507(2022).
- Romeis, E., et al. Treponema pallidum subsp. pallidum with an artificially impaired TprK antigenic variation system is attenuated in the rabbit model of syphilis. bioRxiv. , 524629(2023).
- Fieldsteel, A. H., Becker, F. A., Stout, J. G. Prolonged survival of virulent Treponema pallidum (Nichols strain) in cell-free and tissue culture systems. Infect Immun. 18, 173-182 (1977).
- U.S. Department of Health and Human Services. Biosafety in Microbiological and Biomedical Laboratories (BMBL) 6th Edition. U.S. Department of Health and Human Services, Centers for Disease Control and Prevention, National Institutes of Health. , (2020).
- Norris, S. J., Miller, J. N., Sykes, J. A., Fitzgerald, T. J. Influence of oxygen tension, sulfhydryl compounds, and serum on the motility and virulence of Treponema pallidum (Nichols strain) in a cell- free system. Infect Immun. 22 (3), 689-697 (1978).
- Cox, C. D., Barber, M. K. Oxygen uptake by Treponema pallidum. Infect Immun. 10 (1), 123-127 (1974).
- Magnuson, H. J., Eagle, H. The minimal infectious inoculum of Spirochaeta pallida (Nichols strain), and a consideration of its rate of multiplication in vivo. Am J Syph. 32, 1-18 (1948).
- Cumberland, M. C., Turner, T. B. The rate of multiplication of Treponema pallidum in normal and immune rabbits. Am J Syph. 33, 201-211 (1949).
- Norris, S. J., Edmondson, D. G. Factors affecting the multiplication and subculture of Treponema pallidum subsp. pallidum in a tissue culture system. Infect Immun. 53, 534-539 (1987).
- Baseman, J. B., Nichols, J. C., Rumpp, O., Hayes, N. S. Purification of Treponema pallidum from infected rabbit tissue: resolution into two treponemal populations. Infect Immun. 10, 1062-1067 (1974).
- Hanff, P. A., Norris, S. J., Lovett, M. A., Miller, J. N. Purification of Treponema pallidum, Nichols strain, by Percoll density gradient centrifugation. Sex Transm Dis. 11, 275-286 (1984).
Herprints en machtigingen
