Dit protocol stelt methoden vast voor het extraheren en kwantificeren van reacties op het vluchtige seksferomoon in C. elegans, en biedt hulpmiddelen om chemische communicatie en navigatietraject te bestuderen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Vluchtige seksferomoonextractie en chemo-aantrekkingstest bij Caenorhabditis elegans
In dit artikel
Samenvatting
Samenvatting
Chemische communicatie is van vitaal belang voor de gezondheid, de voortplanting en het algehele welzijn van het organisme. Het begrijpen van de moleculaire routes, neurale processen en berekeningen die deze signalen beheersen, blijft een actief onderzoeksgebied. De nematode Caenorhabditis elegans biedt een krachtig model voor het bestuderen van deze processen, omdat het een vluchtig seksferomoon produceert. Dit feromoon wordt gesynthetiseerd door maagdelijke vrouwtjes of sperma-verarmde hermafrodieten en dient als lokstof voor mannetjes.
Dit protocol beschrijft een gedetailleerde methode voor het isoleren van het vluchtige seksferomoon uit verschillende C. elegans-stammen (WT-stam N2, daf-22 en fog-2) en C. remanei. We bieden ook een protocol voor het kwantificeren van de mannelijke chemotaxisrespons op het vluchtige seksferomoon. Onze analyse maakt gebruik van metingen zoals de chemotaxis-index (CI), aankomsttijd (AT) en een trajectplot om mannelijke reacties onder verschillende omstandigheden nauwkeurig te vergelijken. Deze methode maakt robuuste vergelijkingen mogelijk tussen mannen met verschillende genetische achtergronden of ontwikkelingsstadia. Bovendien is de hier geschetste experimentele opstelling aanpasbaar aan het onderzoeken van andere chemo-aantrekkingschemicaliën.
Inleiding
De wisselwerking tussen chemische communicatie en reproductief succes is een fundamenteel principe in het dierenrijk 1,2,3,4,5,6,7,8,9,10. Seksferomonen veroorzaken een breed scala aan seksueel dimorf gedrag dat essentieel is voor het vinden van partners, het coördineren van de stappen die betrokken zijn bij het vinden en aantrekken van een partner, en uiteindelijk het bevorderen van de voortplanting van een soort 11,12,13,14,15,16,17. Er is aanzienlijke vooruitgang geboekt in het begrijpen van feromoonsignalering, maar de moleculaire mechanismen, neurale circuits en computationele processen die deze interacties beheersen, blijven vaak onvolledig gedefinieerd 18,19,20,21,22,23,24,25,26.
De nematode Caenorhabditis elegans biedt een krachtig model om deze vragen te ontleden. Met name C. elegans vertoont een ongebruikelijke voortplantingsstrategie - hermafrodieten kunnen zichzelf bevruchten, maar ook uitkruisen met mannetjes 27,28,29,30,31,32,33. Deze flexibiliteit vereist een robuust communicatiesysteem om de voortplantingsstatus te signaleren. C. elegans staat bekend om zijn goed gekarakteriseerde wateroplosbare feromonen, de ascarosiden, die verschillende rollen spelen bij ontwikkeling, gedrag en sociale interacties. Recente ontdekkingen hebben een aparte klasse van vluchtige seksferomonen onthuld die door nematoden worden gebruikt. Deze feromonen worden specifiek geproduceerd door geslachtsrijpe C. elegans en C. remanei maagdelijke vrouwtjes en sperma-verarmde hermafrodieten, en dienen als lokstof voor volwassen mannen 29,34,35. Deze lokstof vertoont een opmerkelijk seksueel dimorfisme in zijn productie en perceptie. De vrouwelijke somatische geslachtsklier regelt de synthese van dit vluchtige seksferomoon, en de productie weerspiegelt dynamisch de voortplantingsstatus, stopt bij het paren en wordt enkele uren later hervat29,34.
Inzicht in de communicatie van nematodenseksferoomen geeft inzicht in de evolutie van chemische communicatiesystemen, de wisselwerking tussen voortplantingstoestand en gedrag, en de mechanismen die ten grondslag liggen aan seksueel dimorfe neurale verwerking 24,26,36,37,38,39. Studies impliceren dat het amfideneuron AWA bij mannen cruciaal is voor de detectie van feromoonen, waarbij de G-eiwitgekoppelde receptor SRD-1 een sleutelrol speelt bij de detectie van feromonen bij mannen24. C. elegans is zeer geschikt voor het bestuderen van chemische communicatie bij dieren, met name seksferomoonsignalering, vanwege zijn afhankelijkheid van het olfactorische systeem voor het zoeken naar partners. Hoewel er veel bekend is over ascaroside-signalering, biedt het vluchtige seksferomoonsysteem unieke vergelijkingsmogelijkheden 25,26,36,40,41,42,43,44,45,46,47,48,49,50,
51,52,53,54,55,56,57. Bovendien is C. elegans een krachtig genetisch modelorganisme vanwege zijn volledig gesequencede genoom, duidelijk gedefinieerde cellulaire afstamming en goed gekarakteriseerde olfactorische mutanten.
Het volledige neurale circuit dat betrokken is bij de verwerking van dit feromoon, de berekeningen die de perceptie vertalen in gericht partnerzoekend gedrag en de biosyntheseregulatie moeten echter nog volledig worden opgehelderd. Verder onderzoek naar deze processen is cruciaal voor het begrijpen van de diverse mechanismen die de communicatie en het voortplantingsgedrag van dieren bepalen. De identificatie van sleutelgenen die betrokken zijn bij feromoonsynthese, secretie en perceptie belooft nieuwe moleculaire spelers in de communicatie met dieren te onthullen. De hier beschreven analyses bieden een basis om deze vragen te beantwoorden.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Ruwe geslachtsferomoonextractie van vrouwen en hermafrodieten
- Protocol voor synchronisatie van C. elegans
- Preparaat van volwassen vrouwtjes of hermafrodieten
- Controleer dagelijks de kweekplaten totdat er een grote populatie volwassen vrouwelijke/hermafrodieten bestaat en de voedselbron OP50 uitgeput raakt. Gebruik fog-2 C. elegans en WT C. remanei vrouwtjes voor ruwe seksferomoonextractie, bereid gesynchroniseerde eieren van de gepaarde vrouwtjes.
OPMERKING: In dit protocol worden C. elegans fog-2 mutant XX-dieren, die geen zelfsperma produceren, aangeduid als C. elegans-vrouwtjes .
- Controleer dagelijks de kweekplaten totdat er een grote populatie volwassen vrouwelijke/hermafrodieten bestaat en de voedselbron OP50 uitgeput raakt. Gebruik fog-2 C. elegans en WT C. remanei vrouwtjes voor ruwe seksferomoonextractie, bereid gesynchroniseerde eieren van de gepaarde vrouwtjes.
- Wormen wassen en pilleren
- Was volwassen wormen van een gemengde populatieplaat met M9-buffer. Verzamel de wormsuspensie in een microcentrifugebuisje van 1,5 ml. Centrifugeer bij 1.500 × g gedurende 0,5-1 min om de wormen te pelleteren.
OPMERKING: Voorreiniging bij zware vervuiling (optioneel): Laat de wormen zich in de buis nestelen als deze sterk vervuild is. Pipeteer het supernatans eruit om bacteriën te verwijderen en herhaal dit totdat het supernatans helder wordt.
- Was volwassen wormen van een gemengde populatieplaat met M9-buffer. Verzamel de wormsuspensie in een microcentrifugebuisje van 1,5 ml. Centrifugeer bij 1.500 × g gedurende 0,5-1 min om de wormen te pelleteren.
- Bleken
- Voeg 200 μL M9-buffer toe aan de wormenkorrel. Bereid lysisbuffer voor door huishoudbleekmiddel en 1 M NaOH te mengen in een verhouding van 1:1. Voeg 500 μL van deze lysisbuffer toe aan het mengsel, draai gedurende 10 s en pauzeer dan om de lysistoestand onder een ontleedmicroscoop te controleren. Herhaal dit proces van 10 s vortexen gevolgd door observatie totdat de volwassen wormen volledig zijn gelyseerd.
- Stoppen met bleken en pilleren van de embryo's
- Wanneer volwassen wormen in kleine fragmenten worden gelyseerd (maar niet volledig zijn opgelost), voeg dan onmiddellijk 500 μL M9-buffer toe om de reactie te vertragen. Centrifugeer bij 15.000 × g gedurende 30-60 s om de embryo's te pelleteren.
OPMERKING: Overmatige lysis kan de embryo's beschadigen. Stop de reactie wanneer de volwassen wormlichamen in kleine fragmenten zijn afgebroken. De lysis gaat door tijdens de centrifuge- en wasstappen totdat alle lysisbuffer is verwijderd.
- Wanneer volwassen wormen in kleine fragmenten worden gelyseerd (maar niet volledig zijn opgelost), voeg dan onmiddellijk 500 μL M9-buffer toe om de reactie te vertragen. Centrifugeer bij 15.000 × g gedurende 30-60 s om de embryo's te pelleteren.
- Was de embryo's 5x met 1 ml M9-buffer en centrifugeer bij 15.000 × g gedurende 30-60 s na elke wasbeurt. Verwijder het supernatans na het centrifugeren.
- Synchronisatie
- Resuspendeer de embryo's in 800 μL M9-buffer in een microcentrifugebuisje van 1,5 ml. Draai de buis gedurende 12-15 uur bij 20 °C voor het uitkomen van L1 en het stoppen van wormen in het L1-stadium omdat er geen voedselvoorziening is. Laat de wormen 3 dagen los en kweek ze bij 20° C totdat ze het L4-stadium bereiken.
- Preparaat van volwassen vrouwtjes of hermafrodieten
2. Ruwe seksferomoonextractie van maagdelijke vrouwtjes van één dag oud (figuur 1A)
OPMERKING: We nemen een eerder vastgesteld protocol24 aan om seksferomonen te extraheren uit eendags oude virgin fog-2 (feminisatie van de kiembaan) mutante vrouwtjes van C. elegans en WT-vrouwtjes van C. remanei.
- Voorbereiding van volwassen vrouwtjes
- Selecteer en isoleer ongeveer 200 L4 stadium fog-2 vrouwtjes 1 dag voor de feromoonextractie. Om ervoor te zorgen dat alleen maagdelijke vrouwtjes worden verzameld, scheidt u deze L4 fog-2 vrouwtjes zorgvuldig op geslacht en verdeelt u ze over drie afzonderlijke OP50 NGM-platen van 6 cm. Plaats een kleine hoeveelheid OP50-bacteriën in het midden van elk bord.
OPMERKING: Verdeel 200 vrouwelijke wormen van L4 over drie afzonderlijke platen om het risico te voorkomen dat er per ongeluk een mannelijke worm op de plaat komt. Als een mannetje wordt geplukt, zal het waarschijnlijk met veel vrouwtjes paren, waardoor de meeste vrouwtjes de volgende dag, wanneer ze volwassen worden, worden bevrucht. Bevruchte vrouwtjes zenden geen vluchtige seksferomonen uit totdat het sperma is uitgeput, wat de extractieresultaten beïnvloedt. De beperkte voedselbron beperkt de hermafrodieten tot een kleiner gebied in het midden van het bord, waardoor de kans op ontsnapping van het bord tijdens de isolatieperiode wordt geminimaliseerd.
- Selecteer en isoleer ongeveer 200 L4 stadium fog-2 vrouwtjes 1 dag voor de feromoonextractie. Om ervoor te zorgen dat alleen maagdelijke vrouwtjes worden verzameld, scheidt u deze L4 fog-2 vrouwtjes zorgvuldig op geslacht en verdeelt u ze over drie afzonderlijke OP50 NGM-platen van 6 cm. Plaats een kleine hoeveelheid OP50-bacteriën in het midden van elk bord.
- Extractie proces
- Op de extractiedag (dag 1 van de reproductieve volwassenheid, 3 dagen nadat de wormen zijn vrijgelaten uit L1-arrestatie), pluk en isoleer 100 maagdelijke, 1 dag oude fog-2-vrouwtjes in een microcentrifugebuis met 1 ml M9-buffer. Was de vrouwtjes 5x met M9-buffer om bacteriële besmetting te minimaliseren en incubeer ze gedurende 6 uur bij 20 °C in 100 μL M9-buffer om feromoonproductie en accumulatie in de media mogelijk te maken.
- Voer een soortgelijk extractieproces uit voor vrouwtjes van C. remanei , waarbij alleen vrouwtjes van 15-20 L4 worden geïsoleerd die de dag voor de extractie op drie platen zijn geïsoleerd, en de volgende dag vijf maagdelijke vrouwtjes uitbroeden in 100 μl M9-buffer gedurende 6 uur bij 25 °C (optimale groeitemperatuur voor C. remanei)58.
OPMERKING: C. remanei vrouwtjes produceren een grotere hoeveelheid vluchtige seksferomonen in vergelijking met C. elegans vrouwtjes. Daarom zijn slechts vijf vrouwtjes voldoende om 100 μL ruw vluchtig seksferomoon te extraheren.
- Opslag
- Centrifugeer monsters bij 15.000 × g gedurende 30-60 s om de wormen te pelleteren. Breng het supernatans (dat feromonen bevat) voorzichtig over in een schone buis en gooi de buis met de wormkorrel weg. Bewaar het geïsoleerde supernatans voor volgende chemo-aantrekkingstests.
OPMERKING: Het ruwe vluchtige seksferomoonextract kan ten minste 1 jaar bij -80 °C worden bewaard in een microcentrifugebuis omwikkeld met parafilm om verdamping te minimaliseren.
- Centrifugeer monsters bij 15.000 × g gedurende 30-60 s om de wormen te pelleteren. Breng het supernatans (dat feromonen bevat) voorzichtig over in een schone buis en gooi de buis met de wormkorrel weg. Bewaar het geïsoleerde supernatans voor volgende chemo-aantrekkingstests.
- Kwaliteitscontrole
- Voordat u het extract gebruikt, voert u een kwaliteitscontroletest uit met N2-mannetjes of -2-5 mannetjes om de chemoaantrekkelijkheid te verifiëren (zie rubriek 4).
3. Een grote hoeveelheid ruwe seksferomoonextractie van 6 dagen oude maagdelijke hermafrodieten (Figuur 1A)
- De cultuur van de worm
- Om ongeveer 20 ml ruw C. elegans-seksferomoon te verkrijgen, synchroniseert u twintig NGM-platen van 10 cm met gezonde volwassen C. elegans-wormen (N2 - of daf-22-mutant ) met behulp van het eerder genoemde bleekprotocol en wast u ze vervolgens 5x met M9-buffer.
OPMERKING: Dit proces bereidt voldoende embryo's voor op feromoonextractie. N2: De standaard WT C. elegans-stam die zowel in water oplosbare ascaroside-feromonen als niet-ascaroside vluchtige seksferomonen produceert. daf-22-mutant : Een mutant die niet in staat is om veel ascaroside-feromonen te produceren, waardoor ze nuttig zijn bij het bestuderen van niet-ascaroside vluchtige seksferomonen in isolatie. - Om wormen in het L1-stadium te synchroniseren, roteert u de embryo's in de M9-buffer gedurende 12-15 uur om de ontwikkeling te stoppen. Breng de gearresteerde L1-wormen over naar NGM-kweekplaten van 10 cm die zijn ingezaaid met OP50-bacteriën voor groei en ontwikkeling.
- Om de aanwezigheid van mannetjes op hermafrodiete platen tot een minimum te beperken, controleert u de platen 2 dagen na het loslaten van de worm, in het L4-stadium, en verwijdert u alle waargenomen mannetjes (zeer zelden).
- Zoek na drie dagen ontwikkeling naar het verschijnen van embryo's die aangeven dat de wormen reproductief volwassen volwassenen zijn geworden.
OPMERKING:fog-2-mutante vrouwtjes van C. elegans en WT-vrouwtjes van C. remanei zijn ongeschikt voor bulkextractie van vluchtige seksferomoonen. mist-2 mutant C. elegans en C. remanei hebben een hoog percentage mannetjes in hun populaties, en mannetjes paren continu met vrouwtjes. Bevruchte vrouwtjes produceren geen vluchtige seksferomonen. De aanwezigheid van mannen bemoeilijkt de extractie van deze verbindingen.
- Om ongeveer 20 ml ruw C. elegans-seksferomoon te verkrijgen, synchroniseert u twintig NGM-platen van 10 cm met gezonde volwassen C. elegans-wormen (N2 - of daf-22-mutant ) met behulp van het eerder genoemde bleekprotocol en wast u ze vervolgens 5x met M9-buffer.
- Wormen wassen en embryo's scheiden
- Was de embryo's herhaaldelijk met M9-buffer en laat ze bezinken (1 g bezinking) totdat de meeste volwassenen zich op de bodem van de buis bevinden; Herhaal 5-7x. Laat de microcentrifugebuisjes enkele minuten ongestoord in een rek bezinken om de bezinking van volwassen wormen te vergemakkelijken en de scheiding van de volwassen wormpopulatie van de embryo's, die in de bovenliggende embryo's blijven hangen, mogelijk te maken.
- Pipeteer de gescheiden volwassenen en breng ze over naar nieuwe NGM-platen met OP50-zaad.
- Herhaal dit wasproces gedurende 5-6 dagen om het zelfsperma uit te putten.
OPMERKING: Gebruik voor de extractie van vluchtige seksferomonen hermafrodieten die 5-6 dagen oud zijn. Deze timing zorgt ervoor dat hun zelfsperma waarschijnlijk uitgeput raakt, aangezien hermafrodieten met beschikbaar zelfsperma geen vluchtige seksferomonen produceren. Talrijke dode of niet-uitgekomen embryo's op de plaat op dag 5 of 6 geven een geschikt moment aan om met feromoonextractie te beginnen.
- Sex feromoon extractie
- Extraheer het seksferomoon zoals beschreven in rubriek 1 met aanpassingen.
- In plaats van 100 C. elegans vrouwtjes per 100 μL toe te voegen, voeg je M9-buffer toe op basis van het uiteindelijke volume van de wormkorrel. Voeg 1 ml M9-buffer toe per 50 μL verpakte wormen.
- Kwaliteitscontrole en homogenisatie
- Testbatches voor kwaliteitscontrole van geëxtraheerd feromoon met behulp van de chemoaantrekkelijkheidstest met N2-mannetjes of hem-5-mannetjes (zie rubriek 4).
- Meng alle batches om een homogeen ruw vluchtig seksferomoon te creëren voor experimenten die een grote hoeveelheid feromoon nodig hebben, zoals screening of microfluïdische experimenten. Bewaar het ruwe seksferomoonextract minimaal 1 jaar bij -80 °C in buisjes van 50 ml omwikkeld met parafilm om verdamping te minimaliseren.
- Op chemo-aantrekkingstest gebaseerde titratiemethode voor standaardisatie van ruw seksferomoonextract
- Voer een titratietest uit door seriële verdunningen van elk feromoonextract te testen op zowel WT N2 als him-5 mannelijke C. elegans. Bepaal de hoogste verdunning (laagste concentratie) die consequent een robuuste en reproduceerbare chemotaxisrespons opwekt bij controlestammen.
- Bereid een reeks verdunningen van elk ruw extract (bijv. 1:2, 1:4, 1:8, enz.) in M9-buffer.
- Chemotaxis assays
- Voer gestandaardiseerde chemotaxistests uit (zie rubriek 4) met behulp van elke verdunning op de referentiestam van mannetjes. Voer drie replicaties uit om reproduceerbaarheid te garanderen. Vergelijk de optimale verdunningen over verschillende extractiebatches om de consistentie in feromoonconcentratie te beoordelen.
OPMERKING: Dit stelt een referentiepunt vast voor het evalueren van de bioactiviteit van elk extract. In de standaard chemomolumon-chemoaantrekkelijkssay zullen de originele onverdunde extracten worden gebruikt voor volgende experimenten, waarbij de titratie dient als een kwaliteitscontrolestap om een consistente feromoonactiviteit tussen batches te garanderen. De verdunningsreeksen kunnen worden aangepast op basis van specifieke experimentele behoeften. Aangezien het standaard extractieprotocol consequent verzadigde ruwe feromoonextracten oplevert, is een titratietest om het extract te standaardiseren voor de meeste experimenten misschien niet nodig. Het wordt aanbevolen om dezelfde partij ruw seksferomoon te gebruiken in een reeks gerelateerde experimenten om de consistentie te behouden en de variabiliteit in feromoonactiviteit te minimaliseren.
- Voer gestandaardiseerde chemotaxistests uit (zie rubriek 4) met behulp van elke verdunning op de referentiestam van mannetjes. Voer drie replicaties uit om reproduceerbaarheid te garanderen. Vergelijk de optimale verdunningen over verschillende extractiebatches om de consistentie in feromoonconcentratie te beoordelen.
4. Vluchtige chemomolumon-chemoaantrekkelijkheidstest
OPMERKING: De chemoattractiontest met vluchtige seksferomoon is aangepast van eerder vastgestelde methoden die in andere chemoattractionstudies worden gebruikt 24,29,59,60,61. Deze aanpassingen werden geïmplementeerd om de gevoeligheid en specificiteit van de test te optimaliseren voor het detecteren van reacties op vluchtige seksferomonen. Deze op maat gemaakte aanpak verbetert de toepasbaarheid van de test op specifieke onderzoeksbehoeften.
- Observeer de kweekplaten dagelijks totdat er volop volwassen vrouwtjes/hermafrodieten zijn. De gezondheid van de wormen beïnvloedt hun reactie op het seksferomoon.
- Voorbereiding van hem-5 mannen
- Gebruik het standaard bleekprotocol om hem-5 wormen te synchroniseren. Was de wormen na synchronisatie 5x met M9 buffer. Isoleer L4-mannetjes de dag voor de test; Breng vervolgens volwassen mannelijke wormen van een dag oud over van hun gezaaide platen en spoel ze vóór de test af in de M9-buffer. Plaats ze voorafgaand aan de test op niet-gezaaide NGM-platen om resterende bacteriën te elimineren en interferentie van voedsel tijdens de test te voorkomen.
OPMERKING: Laat de wormen niet langer dan een uur voor de test uithongeren, omdat dit hun interne toestand kan veranderen en de resultaten van de seksferomoonchemoattractietest kan beïnvloeden. Daarom, als u van plan bent om meer dan 10 tests op één dag uit te voeren, vervang dan de wormmonsters elk uur. Wissel bovendien herhaaldelijk af tussen één experimentele test en één controletest.
- Gebruik het standaard bleekprotocol om hem-5 wormen te synchroniseren. Was de wormen na synchronisatie 5x met M9 buffer. Isoleer L4-mannetjes de dag voor de test; Breng vervolgens volwassen mannelijke wormen van een dag oud over van hun gezaaide platen en spoel ze vóór de test af in de M9-buffer. Plaats ze voorafgaand aan de test op niet-gezaaide NGM-platen om resterende bacteriën te elimineren en interferentie van voedsel tijdens de test te voorkomen.
- Bereiding van chemo-aantrekkings-agar-analyseplaten
- Bereid chemo-aantrekkingstestplaten voor met 1,5% agar, 25 mM NaCl, 1,5 mM Tris-base en 3,5 mM Tris-Cl zoals beschreven in relevante literatuur24.
- Verwarm de agar in de chemoattractie-oplossing met behulp van een magnetron tot deze volledig is opgelost. Laat de oplossing 5 minuten afkoelen bij kamertemperatuur.
- Gebruik een pipethulpmiddel om de chemo-aantrekkingsagar-oplossing gelijkmatig over petrischaaltjes te verdelen: giet 30 ml in elk schaaltje van 10 cm en 20 ml in elk schaaltje van 6 cm.
- Nadat u de chemo-aantrekkingsagar-oplossing in de petrischaaltjes hebt gegoten, laat u de deksels minstens 40 minuten open op een schone plaats om het oppervlak van de agar enigszins te laten drogen. Zodra het oppervlak op de juiste manier is opgedroogd, sluit u de deksels.
OPMERKING: Deze droogtijd kan variëren afhankelijk van de vochtigheid en temperatuur van de laboratoriumomgeving.
- Opslag van de plaat en voorbereiding vóór de test
- Verpak en bewaar de voorbereide testplaten maximaal 1 week in een koelcel. Haal de platen voor gebruik uit de koelcel en laat ze meer dan een uur op kamertemperatuur komen. Open de deksels om eventueel restvocht uit de agar te laten verdampen 20 minuten voor de test in een schone ruimte, zorg ervoor dat er geen duidelijk water op het oppervlak is voordat de test wordt uitgevoerd.
- Experimenteel ontwerp en chemo-aantrekkingstest
- Om de chemo-aantrekkingstest uit te voeren, markeert u drie verschillende plekken op het deksel en de onderkant van de petrischaal of gebruikt u een sjabloon gedrukt op transparant plastic papier dat onder de schaal wordt geplaatst of aan de ontleedmicroscoop is bevestigd. Deze markeringen omvatten een middelste stip (•) als startpunt voor de wormen, een plusteken (+) voor de experimentele plek (2 μL seksferomoon op het deksel en 2 μL 1 M natriumazide op de plaat) en een minteken (-) voor de controleplek (2 μL M9-buffer op het deksel en 2 μL 1 M natriumazide) (Figuur 2A). Pas de afstand tussen deze markeringen aan op basis van de grootte van het gerecht en specifieke experimentele behoeften. Stel voor petrischaaltjes van 6 cm doorgaans een vaste afstand van 1,5 cm in vanaf het startpunt tot elke teststof voor de positieve controletests.
- Gedetailleerde stappen om de test uit te voeren (Figuur 2)
- Breng 2 μL 1 M natriumazide aan op elke experimentele en controleplek op de plaat.
- Pluk 20 gezonde en vrij bewegende mannelijke wormen met een wormenprikker. Laat tegelijkertijd 20 mannelijke wormen los op het startpunt onder een ontleedmicroscoop.
- Voeg snel 2 μL seksferomoon en 2 μL M9-buffer toe aan respectievelijk de experimentele en controleplekken op het deksel.
- Sluit het deksel voorzichtig en plaats de testplaat op een rustige, temperatuurstabiele plaats naast de microscoop.
- Scoor na 30 minuten de test door het aantal wormen op elke plek te tellen.
OPMERKING: Het proces van het plukken van 20 wormen mag niet langer duren dan 1-2 minuten om te voorkomen dat de vroeg geplukte wormen uitdrogen en ongezond worden, wat de resultaten kan beïnvloeden. Het hele proces, van het kiezen van de mannetjes tot het sluiten van het deksel, duurt tussen de 2 en 5 minuten.
- Screening op positieve controle
- Test de mannelijke wormen op een 1.000-voudige verdunde oplossing van diacetyl (opgelost in 10% ethanol en 90% M9-buffer) om hun chemotaxis-responsiviteit te bevestigen. Evalueer de resultaten van de chemo-aantrekkingstest 30 minuten na het starten van de test. Scoor wormen die verlamd zijn op de aangewezen plekken op basis van hun locatie: 'C' voor degenen op de controleplek en 'E' voor degenen op de experimentele plek. Snijd wormen op geen van beide plekken als 'N' (Figuur 2C).
- Gebruik de volgende formule om de chemo-aantrekkingsindex (CI) te berekenen:
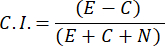
- Selecteer alleen mannelijke monsters met een chemotaxis-index ≥ 0,4 (C.I., zie figuur 2C). Gebruik het mannetje uit dezelfde batch voor de daaropvolgende seksferomoontest.
OPMERKING: Voer drie afzonderlijke tests uit, elk met 20 wormen, om de consistentie en betrouwbaarheid van de experimentele resultaten te garanderen. Drie testen zijn doorgaans voldoende om consistentie af te leiden.
5. Richtlijnen voor timing en scores voor chemo-aantrekkingstest
- Evalueer de chemo-aantrekkingskracht van de wormen op basis van hun uiteindelijke locaties. Scoor het aantal wormen op elke plek aan het einde van de test, meestal 30 minuten na het begin.
OPMERKING: Het gebruik van natriumazide op experimentele en controleplekken verlamt aankomende wormen, waardoor een nauwkeurige score mogelijk wordt. De meeste WT N2 en him-5 mannetjes zijn in staat om de feromoonbron binnen 6-8 minuten te lokaliseren in een plaat van 6 cm met een afstandsopstelling van 1,5 cm. - Om defecten op de chemotaxis-efficiëntie vast te leggen, vooral om subtiele defecten te detecteren, kunt u overwegen de test met regelmatige tussenpozen van 3-5 minuten te controleren.
OPMERKING: Deze frequente observatie maakt het mogelijk om de tijden te documenteren waarop wormen op de testplekken aankomen. Een dergelijke gedetailleerde tracking kan gevallen aan het licht brengen waarin wormen een verminderde chemotaxis-efficiëntie vertonen, maar er toch in slagen de testplek binnen het onderzoeksvenster te bereiken.
6. Optionele wijzigingen
- Voor een verbeterde beoordeling van chemotaxis gebruikt u een camera die boven de plaat is geplaatst om de banen van de wormen tijdens de test vast te leggen.
OPMERKING: Deze wijziging maakt een uitgebreide analyse van hun bewegingspatronen mogelijk, waardoor een dieper inzicht wordt verkregen in het gedrag en het traject van chemo-aantrekkingskracht (Figuur 3).
7. Analyse van de gegevens
- Scoren en berekenen van de chemo-aantrekkingsindex (C.I.)
- Volg de stappen 4.7.1 en 4.7.2.
- Aankomsttijd plot
- Voor een uitgebreidere analyse van chemo-aantrekkingstesten kunt u overwegen de test met tussenpozen van 3-5 minuten te controleren of een camera boven de plaat te gebruiken om de banen van de wormen tijdens de test vast te leggen.
OPMERKING: Deze benaderingen maken het niet alleen mogelijk om de aankomsttijden van de wormen op de ontwerpplekken te scoren, maar ook om de gemiddelde aankomsttijden te vergelijken en de verdeling van deze tijden te analyseren.
- Voor een uitgebreidere analyse van chemo-aantrekkingstesten kunt u overwegen de test met tussenpozen van 3-5 minuten te controleren of een camera boven de plaat te gebruiken om de banen van de wormen tijdens de test vast te leggen.
- Videogebaseerde trajectanalyse en datavisualisatie
OPMERKING: Om de bewegingspatronen van C. elegans Tijdens chemoattraction-tests, registreer en extraheer trajecten (zie de Tabel met materialen) en verdere analyse (Figuur 3).- Stel het opnamesysteem in.
- Start een nieuwe opname en open het venster met opname-instellingen .
- Definieer de gewenste opnameparameters:
- Bestandsvoorvoegsel: Kies een beschrijvende naam voor de videobestanden (bijvoorbeeld 'experiment1_').
- Frame Rate (FPS): Selecteer de juiste frames per seconde om de beweging van de worm vast te leggen (bijv. 7,5 FPS voor wormen op de agarplaat en 30 FPS voor zwemmende wormen).
- Duur: Stel de lengte van de opname in seconden in (bijv. 1.800 s [30 min] voor bulkchemo-aantrekkingstest).
- Optimaliseer de beeldkwaliteit: Pas de verlichtingsintensiteit aan om ervoor te zorgen dat de wormen duidelijk zichtbaar zijn tegen de achtergrond en verfijn de scherpstelling om een scherp beeld van de wormen te krijgen.
- Om de analyseplaat voor te bereiden, doseert u eerst de controlevloeistof op de daarvoor bestemde controleplek. Pak vervolgens de worm(en) voorzichtig op en laat ze voorzichtig los op het midden van de plaat. Zodra de worm(en) zich hebben gevestigd, brengt u de seksferomoonoplossing aan op de aangewezen experimentele plek.
- Plaats de plaat: Plaats de plaat met de wormen voorzichtig in het midden van het opnameveld om het opnamegebied te maximaliseren.
- Om de stress op de wormen tijdens chemotaxis-assays te verminderen, kunt u de volgende twee benaderingen overwegen.
- Voor een enkelvoudige wormtest plaatst u de worm op de testplaat en laat u deze 5 minuten acclimatiseren voordat u de seksferomoonoplossing op de aangegeven afstand introduceert (de positie op basis van de huidige locatie van de worm).
OPMERKING: Dit minimaliseert het hanteren en geeft de worm de tijd om zich aan te passen aan zijn nieuwe omgeving. - Bulk chemo-aantrekkingstest: Laat de wormen zich gedurende 5 minuten op natuurlijke wijze op de plaat nestelen en verspreiden. Breng na deze gewenningsperiode de feromoonoplossing in op de aangewezen vaste positie. Meet tijdens de post-video-analyse de startafstand van elke worm tot het feromoon en groepeer ze dienovereenkomstig voor verdere analyse.
- Voor een enkelvoudige wormtest plaatst u de worm op de testplaat en laat u deze 5 minuten acclimatiseren voordat u de seksferomoonoplossing op de aangegeven afstand introduceert (de positie op basis van de huidige locatie van de worm).
- Procedure voor videoanalyse
- Importeren en instellen: Importeer de opgenomen video in de software. Configureer de sequentie-informatie (bijv. framesnelheid); Specificeer de beeldschaal (pixels per meeteenheid).
- Beeldaanpassing: Om de detectie van wormen te optimaliseren, past u de detectiedrempel aan totdat het groene label de wormen strak omlijnt zonder achtergrondruis of artefacten vast te leggen. Pas bovendien algoritmen voor het gladmaken van de achtergrond toe om ruis en oneffenheden in de afbeelding te verminderen, waardoor het contrast tussen de wormen en de achtergrond wordt verbeterd. Experimenteer met verschillende afvlakkingsniveaus om de optimale balans te vinden tussen ruisonderdrukking en behoud van wormdetails.
OPMERKING: De ideale drempel moet het grootste deel van het lichaam van elke worm bedekken, terwijl externe elementen worden uitgesloten. - Optimalisatie van detectieparameters: selecteer een representatieve worm om automatisch detectieparameters te genereren. Controleer de nauwkeurigheid van de detectie door 5-10 willekeurige frames visueel te inspecteren. Als de detectie niet bevredigend is, verfijnt u de detectieparameters handmatig, controleert u indien nodig de instellingen voor beeldaanpassing opnieuw en gaat u verder met volgen zodra de detectie betrouwbaar is.
- Proeflezen en repareren van volgtrajecten: Nadat het geautomatiseerde volgproces is voltooid, voert u een handmatige proeflezing uit van de gegenereerde trajecten. Als er tijdens het proeflezen inconsistenties worden gevonden, gebruikt u de reparatiefunctie om het traject te corrigeren en voert u de volgende bewerkingen uit: Deelnemen: Verbind trajectsegmenten waaraan ten onrechte verschillende ID's zijn toegewezen, maar die tot dezelfde persoon behoren. Splitsen: afzonderlijke trajectsegmenten waaraan ten onrechte dezelfde ID is toegewezen, maar die tot verschillende personen behoren.
OPMERKING: Het doel is ervoor te zorgen dat elke unieke ID (nummer) gedurende de gehele trackingperiode consequent aan dezelfde persoon wordt toegewezen.
Voorbeeld: Als een worm gedurende een bepaalde periode als "3" wordt gelabeld en vervolgens voor een volgende periode ten onrechte als "7" wordt gelabeld, voegt de reparatiefunctie deze twee segmenten samen onder de identifier "3". Omgekeerd, als twee wormen beide gedurende een bepaalde periode als "12" worden gelabeld, zou de reparatiefunctie dit segment opsplitsen in twee afzonderlijke trajecten, elk met een unieke identificatiecode. Door zorgvuldig te proeflezen en de nodige reparaties uit te voeren, kan de nauwkeurigheid en betrouwbaarheid van de trackinggegevens aanzienlijk worden verbeterd. - Visualisatie en export van resultaten: Gebruik software voor visualisatie en basisanalyse. Exporteer gegevens als CSV-bestanden voor verdere analyse met de gewenste tools of code. Deze methode biedt een basiscode (zie https://github.com/edmondztt/pheromone-traj-analysis.git) om het bewegingstraject van de worm te visualiseren op basis van vijf belangrijke parameters (Figuur 3). Tijd: De progressie van het traject, kleurgecodeerd om het verstrijken van de tijd aan te geven sinds het begin van het experiment. Afstand tot feromoon: De afstand tussen de worm en de feromoonbron op elk tijdstip. Snelheid: De snelheid van de worm op elk punt, die ook de draai- en stopgebeurtenissen aangaf. Rechtheid: Hoe recht het pad van de worm is. Richtingscorrectheid: Hoe uitgelijnd is de beweging van de worm met de richting van het feromoondoelwit? Deze code biedt een fundamentele visualisatie voor het begrijpen van wormgedrag en kan worden aangepast en uitgebreid voor diepere analyse.
OPMERKING: Deze geavanceerde benadering biedt een uitgebreid alternatief voor de traditionele chemoattraction-index door het navigatietraject van wormen in reactie op seksferomonen in detail te beschrijven. Het maakt het mogelijk om bewegingspatronen te begrijpen zonder te vertrouwen op willekeurige eindpunten van de navigatie en tijdvensterbepaling, en biedt diepere inzichten in de gedragsdynamiek van de test. De gegevens werden gemiddeld over 20 frames, die kunnen worden aangepast op basis van specifieke experimentele behoeften, om beweging veroorzaakt door het draaien van het lichaam uit te filteren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Trajectanalyse van vluchtige seksferomoonperceptie defecte stam in chemoattractietest
Deze chemo-aantrekkingstest maakt op betrouwbare wijze onderscheid tussen wildtype en mutante stammen van C. elegans in hun reactie op vluchtige seksferomonen. Succesvolle experimenten met hem-5 mannetjes tonen consequent robuuste chemotaxis aan in de richting van de feromoonbron. Dit komt tot uiting in een hoge chemotaxis-index (C.I.) (Figuur 2...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit protocol biedt een robuuste methodologie voor de extractie van vluchtige seksferomonen uit C. elegans, samen met het opzetten van een robuuste chemo-aantrekkingstest om mannelijke chemo-aantrekkingsreacties te meten. Aanvullende informatie is te vinden in de gebruikershandleiding van WormLab (zie de Tabel met materialen); Voor een basiscode om het bewegingstraject van de worm te visualiseren, zie protocolsectie 7.3.8.5. Een aantal cruciale stappen in het pro...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
We zijn Dr. Tingtao Zhou dankbaar voor het ontwerpen en schrijven van de code voor de trajectvisualisaties die in onze analyse zijn gebruikt. Dit werk werd ondersteund door financiering: R01 NS113119 (PWS), Chen senior postdoc fellowship en het Tianqiao en Chrissy Chen Institute for Neuroscience.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10 cm Petri dishes | Falcon | 25373-100 | Falcon bacteriologische Petri-schaal 100 x 15 mm |
| 6 cm Petri dishes | Falcon | 25373-085 | Falcon bacteriologische Petri-schaal 60 x 15 mm |
| C. remanei (EM464) | CGC | ||
| Centrifuge | Eppendorf | centrifuge 5418 | Elk merk mag werken. |
| Chemoattractie assay platen | Zelf gemaakte oplossing | N/A | 1,5% agar, 25 mM NaCl, 1,5 mM Tris-base en 3,5 mM Tris-Cl |
| Cholesterol | Alfa Aesar | 57-88-5 | |
| Dissectiemicroscoop | Leica | LeicaMZ75 | Elk merk mag werken. |
| E. Coli OP50 | CGC | ||
| Ethanol | Koptec | 64-17-5 | |
| fog-2(q71) (JK574) | CGC | ||
| him-5(e1490)(CB4088) | CGC | ||
| Huishoudbleek | Clorox Germicidal bleek geconcentreerd | Bleekmiddel | |
| M9 buffer | Zelf gemaakte oplossing | N/A | 3 g KH2PO4, 11,3 g Na2HPO4.7H2O, 5 g NaCl, H2O tot 1 L. Steriliseer door autoclaven. Voeg 1 mL 1 M MgSO4 toe nadat het is afgekoeld tot kamertemperatuur. |
| Magnesiumsulfaat, watervrij, poeder | Macron | M1063-500GM-EA | |
| Microgolfoven | TOSHIBA | N/A | Elk merk mag werken. |
| N2 | CGC | ||
| NaOH | Sigma-aldrich | S318-3 | 1 M |
| NGM platen oplossing | Zelf gemaakte oplossing | N/A | 2,5 g Pepton, 18 g agar, 3 g NaCl, H2O tot 1 L.Steriseer door autoclaven. Wacht tot de temperatuur van het medium 65 °C is gedaald (2 u). Zet op een hotplate op 65 °C en roer. Voeg vervolgens het volgende toe, 5 minuten wachten tussen elk om kristallisatie te voorkomen: 1 mL CaCl2 (1 M), 1 mL MgSO4 (1 M), 25 mL K3PO4 (1 M, pH=6), 1 mL Cholesterol ( 5 mg/mL in ethanol). |
| Parafilm | Bemis | 13-374-10 | Bemis Parafilm M Laboratoriumwikkelfilm |
| Pepton | VWR | 97063-324 | |
| Pipet- aid | Drummond Scientific | 4-000-100 | Elk merk mag werken. |
| Kunststofpapier | Octago | Waterproof Screen Printing Inkjet Transparency Film | https://www.amazon.com/Octago-Waterproof-Transparency-Printing-Printers/dp/B08HJQWFGD |
| Kaliumchloride | Sigma-aldrich | SLBP2366V | |
| Kaliumfosfaat | Spectrum | 7778-77-0 | |
| Pipet | Eppendorf | SKU: EPPR4331; MFG#: 2231300006 | 20 - 200 µL, 100 - 1000 µL, elk merk mag werken. |
| Rotator | Labnet | SKU: LI-H5500 | Labnet H5500 Mini LabRoller met tweerichtingsrotator. Elk merk mag werken. |
| Natriumchloride | VWR | 7647-14-5 | |
| natriumfosfaat dibasisch | Sigma-aldrich | SLCG3888 | |
| Tris-base | Sigma-aldrich | 77-86-1 | |
| Tris-Cl | Roche | 1185-53-1 | |
| Trypton | VWR | 97063-390 | |
| Vortex | Scientific industries | Vortex-Genie 2 | Elk merk mag werken. |
| WormLab systeem | MBF Bioscience | N/A | https://www.mbfbioscience.com/help/WormLab/Content/home.htm; https://www.mbfbioscience.com/products/wormlab/ |
| Wormpicker | Zelf gemaakt | N/A | gemaakt met platina en glazen pipet tips |
Referenties
- Audesirk, T. E. Chemoreception in Alphysia californica. Iii. Evidence for pheromones influencing reproductive behavior. Behav Biol. 20 (2), 235-243 (1977).
- Traynor, K. S., Le Conte, Y., Page, R. E. Jr Queen and young larval pheromones impact nursing and reproductive physiology of honey bee (Apis mellifera) workers. Behav Ecol Sociobiol. 68 (12), 2059-2073 (2014).
- Cowley, J. J., Wise, D. R. Pheromones, growth and behaviour. Ciba Found Study Group. 35, 144-170 (1970).
- Epple, G. Pheromones in primate reproduction and social behavior. Adv Behav Biol. 11, 131-155 (1974).
- Levinson, H. Z. Possibilities of using insectistatics and pheromones in pest control. Naturwissenschaften. 62 (6), 272-282 (1975).
- Roelofs, W. Manipulating sex pheromones for insect suppression. Environ Lett. 8 (1), 41-59 (1975).
- Marchlewska-Koj, A. Pheromones and mammalian reproduction. Oxf Rev Reprod Biol. 6, 266-302 (1984).
- Keverne, E. B. Neuroendocrinology briefings 11: Pheromones and reproduction. J Neuroendocrinol. 12 (11), 1045-1046 (2000).
- Rekwot, P. I., Ogwu, D., Oyedipe, E. O., Sekoni, V. O. The role of pheromones and biostimulation in animal reproduction. Anim Reprod Sci. 65 (3-4), 157-170 (2001).
- Gomez-Diaz, C., Benton, R. The joy of sex pheromones. EMBO reports. 14 (10), 874-883 (2013).
- Shorey, H. H., Gaston, L. K., Jefferson, R. N. Insect sex pheromones. Adv Pest Control Res. 8, 57-126 (1968).
- Bruce, H. M. Pheromones and behavior in mice. Acta Neurol Psychiatr Belg. 69 (7), 529-538 (1969).
- Shorey, H. H., Bartell, R. J. Role of a volatile female sex pheromone in stimulating male courtship behaviour in Drosophila melanogaster. Anim Behav. 18 (1), 159-164 (1970).
- Bobadoye, B., et al. Evidence of aggregation-sex pheromone use by longhorned beetles (coleoptera: Cerambycidae) species native to Africa. Environ Entomol. 48 (1), 189-192 (2019).
- Saunders, J. R. Sex pheromones in bacteria. Nature. 275 (5682), 692-694 (1978).
- Schulz, S., Toft, S. Identification of a sex pheromone from a spider. Science. 260 (5114), 1635-1637 (1993).
- Finnegan, D. E., Chambers, J. Identification of the sex pheromone of the guernsey carpet beetle, Anthrenussarnicus mroczkowski (coleoptera: Dermestidae). J Chem Ecol. 19 (5), 971-983 (1993).
- Vaillancourt, L. J., Raudaskoski, M., Specht, C. A., Raper, C. A. Multiple genes encoding pheromones and a pheromone receptor define the b beta 1 mating-type specificity in Schizophyllum commune. Genetics. 146 (2), 541-551 (1997).
- Ludewig, A. H., Schroeder, F. C. Ascaroside signaling in C. elegans. WormBook : the online review of C. elegans biology. , 1-22 (2013).
- Sakai, N., et al. A sexually conditioned switch of chemosensory behavior in C. elegans. PLoS One. 8 (7), e68676(2013).
- Sengupta, S., Smith, D. P. How Drosophila detect volatile pheromones: signaling, circuits, and behavior. Neurobiology of chemical communication. Mucignat-Caretta, C. , CRC Press. (2014).
- Zhang, Y. K., Reilly, D. K., Yu, J., Srinivasan, J., Schroeder, F. C. Photoaffinity probes for nematode pheromone receptor identification. Org Biomol Chem. 18 (1), 36-40 (2019).
- Aprison, E. Z., Ruvinsky, I. Dynamic regulation of adult-specific functions of the nervous system by signaling from the reproductive system. Curr Biol. 29 (23), 4116-4123.e3 (2019).
- Wan, X., et al. SRD-1 in AWA neurons is the receptor for female volatile sex pheromones in C. elegans males. EMBO Rep. 20 (3), e46288(2019).
- Peckol, E. L., Troemel, E. R., Bargmann, C. I. Sensory experience and sensory activity regulate chemosensory receptor gene expression in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 98 (20), 11032-11038 (2001).
- Jang, H., et al. Neuromodulatory state and sex specify alternative behaviors through antagonistic synaptic pathways in. C. elegans. Neuron. 75 (4), 585-592 (2012).
- Liu, K. S., Sternberg, P. W. Sensory regulation of male mating behavior in Caenorhabditis elegans. Neuron. 14 (1), 79-89 (1995).
- Chasnov, J. R., Chow, K. L. Why are there males in the hermaphroditic species Caenorhabditis elegans. Genetics. 160 (3), 983-994 (2002).
- Chasnov, J. R., So, W. K., Chan, C. M., Chow, K. L. The species, sex, and stage specificity of a Caenorhabditis sex pheromone. Proc Natl Acad Sci U S A. 104 (16), 6730-6735 (2007).
- Susoy, V., et al. Natural sensory context drives diverse brain-wide activity during C. elegans mating. Cell. 184 (20), 5122-5137.e17 (2021).
- Barriere, A., Felix, M. A. High local genetic diversity and low outcrossing rate in Caenorhabditis elegans natural populations. Curr Biol. 15 (13), 1176-1184 (2005).
- Click, A., Savaliya, C. H., Kienle, S., Herrmann, M., Pires-Dasilva, A. Natural variation of outcrossing in the hermaphroditic nematode Pristionchus pacificus. BMC Evol Biol. 9, 75(2009).
- Anderson, J. L., Morran, L. T., Phillips, P. C. Outcrossing and the maintenance of males within C. elegans populations. J Hered. 101 (suppl_1), S62-S74 (2010).
- Leighton, D. H., Choe, A., Wu, S. Y., Sternberg, P. W. Communication between oocytes and somatic cells regulates volatile pheromone production in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 111 (50), 17905-17910 (2014).
- White, J. Q., et al. The sensory circuitry for sexual attraction in C. elegans males. Curr Biol. 17 (21), 1847-1857 (2007).
- Fagan, K. A., et al. A single-neuron chemosensory switch determines the valence of a sexually dimorphic sensory behavior. Curr Biol. 28 (6), 902-914.e5 (2018).
- Lipton, J., Kleemann, G., Ghosh, R., Lints, R., Emmons, S. W. Mate searching in Caenorhabditis elegans: A genetic model for sex drive in a simple invertebrate. J Neurosci. 24 (34), 7427-7434 (2004).
- Frady, E. P., Palmer, C. R., Kristan, W. B. Jr Sexual attraction: Sex-specific wiring of neural circuitry. Curr Biol. 22 (22), R953-R956 (2012).
- Liu, Q., et al. Two preputial gland-secreted pheromones evoke sexually dimorphic neural pathways in the mouse vomeronasal system. Front Cell Neurosci. 13, 455(2019).
- Ludewig, A. H., et al. Pheromone sensing regulates Caenorhabditis elegans lifespan and stress resistance via the deacetylase sir-2.1. Proc Natl Acad Sci U S A. 110 (14), 5522-5527 (2013).
- Golden, J. W., Riddle, D. L. A pheromone influences larval development in the nematode Caenorhabditis elegans. Science. 218 (4572), 578-580 (1982).
- Butcher, R. A., Fujita, M., Schroeder, F. C., Clardy, J. Small-molecule pheromones that control dauer development in Caenorhabditis elegans. Nat Chem Biol. 3 (7), 420-422 (2007).
- Jeong, P. Y., et al. Chemical structure and biological activity of the Caenorhabditis elegans dauer-inducing pheromone. Nature. 433 (7025), 541-545 (2005).
- Butcher, R. A., Ragains, J. R., Kim, E., Clardy, J. A potent dauer pheromone component in Caenorhabditis elegans that acts synergistically with other components. Proc Natl Acad Sci U S A. 105 (38), 14288-14292 (2008).
- Aprison, E. Z., Ruvinsky, I. Counteracting ascarosides act through distinct neurons to determine the sexual identity of C. elegans pheromones. Curr Biol. 27 (17), 2589-2599.e3 (2017).
- Aprison, E. Z., Ruvinsky, I. Sex pheromones of C. elegans males prime the female reproductive system and ameliorate the effects of heat stress. PLoS Genet. 11 (12), e1005729(2015).
- Izrayelit, Y., et al. Targeted metabolomics reveals a male pheromone and sex-specific ascaroside biosynthesis in Caenorhabditis elegans. ACS Chem Biol. 7 (8), 1321-1325 (2012).
- Kaplan, F., et al. Ascaroside expression in Caenorhabditis elegans is strongly dependent on diet and developmental stage. PLoS One. 6 (3), e17804(2011).
- Pungaliya, C., et al. A shortcut to identifying small molecule signals that regulate behavior and development in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 106 (19), 7708-7713 (2009).
- Srinivasan, J., et al. A modular library of small molecule signals regulates social behaviors in Caenorhabditis elegans. PLoS Biol. 10 (1), e1001237(2012).
- Srinivasan, J., et al. A blend of small molecules regulates both mating and development in Caenorhabditis elegans. Nature. 454 (7208), 1115-1118 (2008).
- Choe, A., et al. Ascaroside signaling is widely conserved among nematodes. Curr Biol. 22 (9), 772-780 (2012).
- Von Reuss, S. H., et al. Comparative metabolomics reveals biogenesis of ascarosides, a modular library of small-molecule signals in C. elegans. J Am Chem Soc. 134 (3), 1817-1824 (2012).
- Choe, A., et al. Sex-specific mating pheromones in the nematode panagrellus redivivus. Proc Natl Acad Sci U S A. 109 (51), 20949-20954 (2012).
- Hsueh, Y. P., Mahanti, P., Schroeder, F. C., Sternberg, P. W. Nematode-trapping fungi eavesdrop on nematode pheromones. Curr Biol. 23 (1), 83-86 (2013).
- Hong, M., et al. Early pheromone experience modifies a synaptic activity to influence adult pheromone responses of C. elegans. Curr Biol. 27 (20), 3168-3177.e3 (2017).
- Ryu, L., et al. Feeding state regulates pheromone-mediated avoidance behavior via the insulin signaling pathway in Caenorhabditis elegans. EMBO J. 37 (15), e98402(2018).
- Diaz, S. A., Lindström, J., Haydon, D. T. Basic demography of Caenorhabditis remanei cultured under standard laboratory conditions. J Nematol. 40 (3), 167(2008).
- Bargmann, C. I. Chemosensation in C. elegans. WormBook : the online review of C.elegans biology. , 1-29 (2006).
- Margie, O., Palmer, C., Chin-Sang, I. C. elegans chemotaxis assay. JoVE: J Vis Exp. (74), e50069(2013).
- Bargmann, C. I., Hartwieg, E., Horvitz, H. R. Odorant-selective genes and neurons mediate olfaction in C. elegans. Cell. 74 (3), 515-527 (1993).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
