Deze studie presenteert een eenvoudige, gebruiksvriendelijke ratiometrische FRET-test voor de detectie en kwantitatieve beoordeling van DNase-activiteit, en demonstreert de toepassing ervan bij de analyse van een zwakke nuclease.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Beoordeling van DNase-activiteit door ratiometrische fluorescentieresonantie energieoverdracht
In dit artikel
Samenvatting
Samenvatting
Het huidige protocol beschrijft een eenvoudige en gevoelige ratiometrische Förster resonantie energieoverdracht (FRET) assay voor de detectie en kwantitatieve beoordeling van DNase-activiteit. Ratiometrische FRET-metingen maken gebruik van de verhouding van donor- en acceptoremissiesignalen. De test detecteert enkelstrengs DNA-breuken met behulp van een nietvormige, dubbel gelabelde 38-mer FRET-oligoprobe, die wordt gebruikt als een real-time DNA-splitsingssensor. De belangrijkste toepassing van de beschreven benadering is de kwantitatieve beoordeling van de effecten van reactieomstandigheden, zoals pH, temperatuur en buffersamenstelling, op DNase-activiteit. Vanwege het vermogen om zelfs kleine en langzame DNA-splitsing te detecteren, is de test bijzonder geschikt voor het onderzoeken van zwakke nucleolytische activiteit die langere perioden van observatie vereist en voor het bestuderen van de effecten van pH op DNase-activiteit. Deze specifieke voordelen van dit ratiometrische FRET-protocol worden geïllustreerd door de toepassing ervan op de detectie en analyse van de DNase-activiteit van leukocytenelastaseremmer (LEI).
Inleiding
De ratiometrische fluorescentiebenadering is een analytische methode die gebruik maakt van verhoudingen van fluorescentiesignalen in plaats van alleen te vertrouwen op de intensiteit van een enkel signaal 1,2. Het voordeel van het gebruik van de verhoudingen is dat ze interne kalibratie bieden en compenseren voor veel willekeurige factoren, zoals variaties in monster- en sondeconcentraties, instrumentparameters, enz. Dit verbetert de nauwkeurigheid en gevoeligheid van fluorescerende sondes.
In de specifieke context van Förster resonantie energieoverdracht (FRET) sondes, verwijst de term "ratiometrisch" naar het feit dat de meting is gebaseerd op de verhouding van twee emissiesignalen van het paar FRET-donor- en acceptorfluoroforen. Om de activiteit van de doelanalyt te kwantificeren, gebruiken ratiometrische FRET-sondes de verhouding van acceptor/donor-emissie-intensiteiten (of, in sommige gevallen, de omgekeerde donor/acceptor-ratio). De verhouding is direct gerelateerd aan de FRET-efficiëntie. Het biedt een zelfnormaliserend mechanisme dat achtergrondruis minimaliseert en rekening houdt met variaties in verlichtingsomstandigheden en sondeconcentratie3.
Recente interessante toepassingen van de ratiometrische methode zijn onder meer het gebruik ervan in ratiometrische elektrochemische biosensoren voor de detectie van circulerend tumor-DNA (ctDNA)4,5, in Brownse bewegingsaangedreven bio-nanomachines voor FRET-detectie van de fagocytische fase van apoptose6, en voor express FRET-labeling en analyse van fagocytische klaring7. De ratiometrische FRET-benadering die in dit werk wordt beschreven, is nuttig voor de kwantitatieve beoordeling van DNase-activiteit. De analysemetingen zijn gebaseerd op de verhoudingen van de emissies van het FRET-paar. Vanwege het vermogen om zelfs kleine en langzame DNA-splitsing te detecteren, is de test bijzonder geschikt voor het onderzoek naar zwakke nucleolytische activiteit die langere observatieperioden vereist en voor experimenten met verschillende pH-waarden.
Hier worden enkele specifieke voordelen van de ratiometrische FRET-test geïllustreerd door de toepassing ervan om de DNase-activiteit van een zwakke nuclease-leukocytenelastaseremmer (LEI) te bestuderen. Het rapport bevat een gedetailleerd protocol met stap-voor-stap instructies en een beschrijving van de ratiometrische data-analyse.
Beschrijving van de ratiometrische FRET-sonde
De ratiometrische FRET-sonde is een zelfcomplementaire 38-mer DNA-oligo die het donor-acceptor FRET-paar van FAM-TAM (fluoresceïne-tetramethylrhodamine) draagt. De volgorde is 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. De zelfhybridiserende 38-mer neemt een nietvormige conformatie aan, bestaande uit twee verbonden haarspelden van 23 en 15 nucleotiden, die de twee fluoroforen op 23,8 Å van elkaar plaatsen. Dit is aanzienlijk dichterbij dan de Förster-straal voor dit paar, R0 = 55 Å8. Een dergelijke positionering komt overeen met een zeer hoge efficiëntie van de energieoverdracht van donor naar acceptor7: EFRET = 0,993477. Als gevolg hiervan zendt de FRET-sonde, wanneer deze wordt verlicht op de FAM-excitatiegolflengte (488 nm), fluorescentie uit op de emissiegolflengte van de acceptor TAM (580 nm), terwijl FAM-emissie (525 nm) wordt onderdrukt.
Figuur 1A toont de door UNAFold voorspelde secundaire structuur van de sonde, met kleine lussen aan beide haarspelduiteinden als gevolg van sterische hinder door strakke kromming. Het schema van de detectie van DNA-breuken door de FRET-sonde wordt weergegeven in figuur 1B. Het laat zien dat breuk van de oligoprobe door een DNase het FRET-paar scheidt. Deze scheiding veroorzaakt drastische veranderingen in de emissiespectra van beide fluoroforen in de sonde. Figuur 1C toont de emissiespectra van de sonde voor en na de splitsing en toont aan dat de splitsing van het FRET-paar na de splitsing van de DNase II-sonde de donoremissie verhoogt bij 525 nm (ID 525 nm) en tegelijkertijd de acceptoremissie vermindert bij 580 nm (IA 580 nm). Figuur 1D toont de PAGE-gel- en FRET-verhoudingen die overeenkomen met de emissiespectra. De splitsing van de DNase II-sonde produceerde twee brede banden die overeenkomen met 12-16-mer FAM (groen) en 20-24-mer TAM (rood) fragmenten, wat wijst op willekeurige sneden van de 38-mer aan weerszijden van T23 in de buurt van het verbindingsgebied tussen de haarspelden.
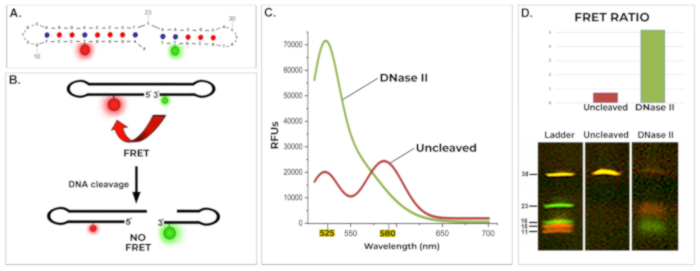
Figuur 1: Structuur en werking van de ratiometrische FRET-sonde. (A) Voorspelde secundaire structuur van de FRET-sonde gegenereerd door UNAFold. (B) Schematische weergave van de werkende FRET-sonde. De ratiometrische FRET-sonde is een nietvormig 38-mer oligonucleotide gelabeld met een FRET-donor (FAM) en acceptor (TAM) op een effectieve FRET-afstand van 23,8 Å, wat een FRET-efficiëntie van >99% garandeert. Splitsing van de oligoprobe door een DNase scheidt het FRET-paar, waardoor FRET wordt opgeheven. (C) Emissiespectra van de FRET-sonde voor en na DNase II-gemedieerde splitsing. Voorafgaand aan de splitsing wordt FAM-emissie onderdrukt en is TAM-emissie prominent. DNase-gemedieerde splitsing scheidt FAM en TAM, herstelt FAM-emissie (525 nm piek) en schaft TAM-emissie (580 nm daling) af. λexcitatie = 488 nm. (D) Ratiometrische en elektroforetische beoordeling van de FRET-sonde voor en na DNase II-splitsing. Bovenste paneel: FRET-verhoudingen (RD/A = ID 525 nm / IA 580 nm), die een kwantitatieve maat voor de sondetoestand vertegenwoordigen. Rood: ongekloven; groen: DNase II-gekloofd. Onderste paneel: Denaturerende PAGE-gel die overeenkomt met fluorometrische gegevens. DNase II-splitsing levert FAM-gelabelde fragmenten (12-16 nt, groen) en TAM-gelabelde fragmenten (20-24 nt, rood) op, wat wijst op splitsing in de buurt van de verbinding tussen haarspelden, flankerend T23. Ongesplitste controle vertoont gele fluorescentie. Ladder: FAM- en TAM-gelabelde oligonucleotiden die overeenkomen met de 5′ en 3′ segmenten van de 38-mer sonde, met fluorescerende labels op hun oorspronkelijke posities. Reactiecondities: 10 mM natriumacetaatbuffer (pH 5,2), 1 pmol/μL FRET-sonde, 0,0033 U/μL DNase II, 24 uur bij 37 °C. RD/A = ID 525 nm/IA 580 nm; λexcitatie = 488 nm. UNAFold voorwaarden: 1 μM FRET-sonde, 10 mM Na+, 0 mM Mg2+, 37 °C. Klik hier om een grotere versie van deze figuur te bekijken.
Hoewel de veranderingen in de afzonderlijke testemissiespectra duidelijk zijn, vereisen kwantitatieve vergelijkingen tussen grote aantallen emissiespectra een gebruiksvriendelijkere en compactere kwantitatieve parameter. Deze rol wordt gespeeld door de FRET-ratio. De gepresenteerde fluorescentiemethode behoort tot een groep ratiometrische benaderingen die voor hunkwantitatieve beoordelingen afhankelijk zijn van de directe (tweekanaals) verhoudingen van fluorescentie-emissies van FRET-paarleden 2,9.
De benadering maakt gebruik van de verhouding van donor/acceptor-emissies (RD/A = ID 525 nm / IA 580 nm), die gerelateerd is aan de FRET-efficiëntie en kwantitatief de toestand van de 38-mer (gebroken of intact) karakteriseert. DeI.D/I.A-verhouding biedt een zelfnormaliserend mechanisme dat inherent rekening houdt met variaties in factoren zoals sondeconcentratie, excitatie-intensiteit en fotobleken3. De aanpak is alleen geschikt voor FRET-sondes waarbij donor en acceptor binnen dezelfde sonde zijn gekoppeld, waarbij hun verhouding bekend en constant is. Om deze reden hoeft de aanpak geen rekening te houden met de directe excitatie van de acceptant of donoroverspraak2. De vaste donor-acceptor stoichiometrie van de sonde zorgt ervoor dat de donor/acceptor-emissieverhoudingen niet worden beïnvloed door deze variaties en direct de toestand van de sonde weerspiegelen. Als gevolg hiervan biedt de verhouding van donor-acceptoremissies een kwantitatieve DNA-splitsingsparameter met ingebouwde signaalnormalisatie 2,3.
De test maakt gebruik van de ID / IA-verhouding (in plaats van de tegenovergestelde IA / ID-ratio ) omdat deze verhouding de FRET-stopzetting na sondesplitsing beschrijft en dus in dezelfde richting verandert als DNase-activiteit, toenemend met verhoogde splitsing. Dit wordt geïllustreerd door Figuur 1D, die de FRET-verhouding van de ratiometrische sonde en zijn PAGE-elektroforese voor en na zijn splitsing door DNase II toont, beide overeenkomend met de spectra in Figuur 1C. Om het gemak, de tijdsbesparing en het gebruiksgemak van de ratiometrische FRET-test aan te tonen, werd deze toegepast om de DNase-activiteit van een zwakke nuclease-leukocytenelastaseremmer (LEI) bloot te leggen en te bestuderen.
Zwakke nuclease LEI
Proteaseremmer LEI is van nature metastabiel, d.w.z. topologisch onevenwichtig. Deze eigenschap is essentieel voor het remmende mechanisme. Wanneer het doelprotease de LEI-reactieve sitelus (RSL) splitst, ondergaat het proteaseremmermolecuul een drastische conformatieverandering, waarbij het protease mechanisch wordt uitgerekt tot een inactieve vorm10,11. Opmerkelijk is dat dit ook het LEI-molecuul zelf breekt en uitzet en een cryptische DNase-site ontmaskert die in zijn oorspronkelijke vouw is bedekt, waardoor LEI wordt omgezet in een actief endonuclease L-DNase II (LEI-afgeleid DNase II)11,12. De cryptische DNase-site kan ook worden blootgesteld door de denaturatie en breuk van LEI veroorzaakt door de nachtelijke incubatie bij pH 2 in zwavelzuur10,13. Het gebruik van deze FRET-test om LEI te bestuderen toonde aan dat agressieve chemische denaturatiebehandelingen en gerichte enzymatische splitsing niet strikt nodig zijn om de latente nucleolytische activiteit van LEI te ontmaskeren.
De gepresenteerde toepassing en het protocol van de ratiometrische FRET-benadering beschrijven het blootleggen van zwakke DNase-activiteit die inherent aanwezig is in normale, niet-gedenatureerde LEI. De ontdekking van het intrinsieke nucleolytische vermogen van ongesplitste LEI en de analyse ervan was mogelijk dankzij de geschiktheid van de test voor langere observatieperioden bij verschillende zure pH-waarden.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Beoordeling van DNase-activiteit door ratiometrische fluorescentieresonantie energieoverdracht
De methode is geschikt voor de detectie en analyse van de nucleolytische eigenschappen van een oplosbaar eiwit. Om de pH-afhankelijkheid van het onderzochte DNase te onderzoeken, beoordeelt de procedure tegelijkertijd de DNase-activiteit over een reeks pH-waarden. De techniek kan worden gebruikt om zwakke en trage nuclease-activiteiten te bestuderen. De details van de reagentia en de apparatuur die in dit onderzoek zijn gebruikt, staan vermeld in de materiaaltabel.
1. Voorbereiding van incubatiemengselcomponenten voor het fluorometrische beoordelingssysteem
- Bereid de bufferoplossingen voor op het gewenste pH-bereik. Gebruik voor een pH-bereik van 6,8 tot 8,0 Tris-HCl of fosfaatbuffers. Gebruik Tris-HCl-buffer voor fysiologische pH-omstandigheden (pH 7,2 tot 8,0) vanwege de stabiliteit en minimale interferentie met enzymactiviteit.
OPMERKING: Fosfaatbuffers zijn geschikt voor dit pH-bereik, maar zijn minder geschikt voor hogere pH-waarden (>7,5) vanwege hun beperkingen van de buffercapaciteit.
Gebruik voor een pH-bereik van 4,2 tot 7,2 acetaat- of citraatbuffers. Acetaatbuffer is effectief voor lagere pH-omstandigheden, tot pH 4,2.
LET OP: Citraatbuffer is bruikbaar bij iets hogere pH-waarden (pH 5,6 tot 7,2) en biedt een goede buffercapaciteit. Deze buffers zijn geschikt voor het bestuderen van DNase-activiteit onder zure tot neutrale omstandigheden. De gepresenteerde studie van de nucleolytische activiteit van LEI maakte gebruik van 10 mM natriumacetaatbuffers met een pH variërend van 4,8 tot 6,5. - Verdun het eiwitmonster tot een geschikte concentratie in elke bufferoplossing. Wanneer de activiteit in het monster volledig onbekend is, bereidt u een reeks verdunningen van het eiwit voor. De optimale verdunning hangt af van de sterkte van de DNase-activiteit en moet experimenteel worden bepaald door verschillende eiwitconcentraties te testen.
OPMERKING: De gepresenteerde studie van de ultrazwakke nucleolytische activiteit van LEI gebruikte het in een concentratie van 1 μM.- Controleer altijd de pH van de uiteindelijke oplossing bij gebruik van sterk geconcentreerde buffers, omdat de pH van geconcentreerde buffers kan veranderen bij verdunning.
- Bereid de ratiometrische FRET-sondeoplossing voor in nucleasevrij water. Gebruik FRET-sondeconcentraties in de buurt van 1 μM (1 pmol/μL). Vermijd het gebruik van zeer hoge sondeconcentraties.
Verwarm en koel de sondeoplossing snel af vóór het aanbrengen om volledige dissociatie van ongewenste basenparen te garanderen.
OPMERKING: De gepresenteerde studie van de nucleolytische activiteit van LEI gebruikte een concentratie van 1 μM (1 pmol/μL) FRET-sonde in nucleasevrij water.
2. Inductie van de DNase-reactie met behulp van de ratiometrische FRET-sonde als substraat
- Bereid drie putjes in een plaat met 96 putjes voor elke te testen pH-conditie. Voeg drie extra putjes toe, elk voor de positieve en negatieve controles.
- Meng in elk putje voor de pH-serie het volgende:
70 μL nucleasevrij water
10 μL 10X Buffer (buffer naar keuze)
10 μL monster met eiwit
10 μL ratiometrische sondeoplossing (10 pmol/μL stockconcentratie)
OPMERKING: De gepresenteerde studie van de nucleolytische activiteit van LEI in zure pH gebruikte de volgende 10X Buffer: 100 mM Na Acetaat pH 5,2 - Meng in elk positief controleputje het volgende:
79 μL nucleasevrij water
10 μL 10X DNase II-buffer (100 mM Na-acetaat pH 5,2)
0,33 μL DNase II (1 E/μL voorraad)
10 μL ratiometrische sondeoplossing (10 pmol/μL stockconcentratie)
OPMERKING: Voor onderzoek naar een zure pH wordt DNase II als positieve controle gebruikt. Bij het beoordelen van DNase-activiteit in de buurt van pH 7 (met name pH 6,5-8), schakelt u over op DNase I en de bijbehorende buffer (bijv. 10 mM Tris-HCl, 2,5 mM MgCl2, 0,5 mM CaCl2, pH 7,6) in plaats van DNase II en acetaatbuffer. - Voeg in elk negatief controleputje nucleasevrij water toe in plaats van het eiwitmonster.
- Meng in elk putje voor de pH-serie het volgende:
- Induceer de DNase-reactie door de sondeoplossingen toe te voegen aan de reactiemengsels die DNase-eiwit met verschillende pH-waarden bevatten.
OPMERKING: Meng alle monsters grondig en vermijd luchtbelvorming. Voor actieve DNase-monsters moeten alle reacties zo dicht mogelijk bij gelijktijdig worden gestart. Voor ultrazwakke activiteit, zoals die van LEI, is strikte timing minder kritisch.
OPMERKING: Om consistente incubatietijden te garanderen, vooral bij het omgaan met actieve nucleasen, spreidt u de toevoeging van monsters op basis van de tijd die nodig is voor elke meting. Als elke meting bijvoorbeeld 10 s duurt, voegt u het tweede monster 10 s na het eerste toe.
3. Incubatie
- Incubeer de bestudeerde DNase met de ratiometrische FRET-sonde bij 37°C in een waterbad of temperatuurgeregelde incubator gedurende verschillende tijdsperioden. Gebruik meerdere tijdstippen met regelmatige bemonsteringsintervallen om de omloopsnelheid van enzymen nauwkeurig te beoordelen en artefacten te minimaliseren. De gepresenteerde studie van de ultrazwakke nucleolytische activiteit van LEI maakte gebruik van 24-uurs incubaties om de langzame nucleolytische reactie te registreren.
OPMERKING: Bepaal de optimale incubatietijd in de voorbereidende experimenten, omdat deze afhangt van de sterkte van de bestudeerde DNase. Een actieve nuclease zou een zeer korte tijd nodig hebben om de sondesplitsing te voltooien, dus begin met een incubatie van 15-30 minuten. Als het monster te geconcentreerd is en de reactie te snel is, moet de eiwitconcentratie worden verlaagd. Als het monstereiwit te zwak is, kan de incubatietijd naar behoefte worden verlengd.
4. Signaalnormalisatie naar dezelfde pH-omstandigheden
- Stop alle incubatiereacties door 100 μL 250 mM Tris-HCL (pH 8,0) toe te voegen. Deze stap egaliseert ook de pH over alle monsters.
OPMERKING: De pH-vereffeningsstap is belangrijk bij het vergelijken van reacties die onder verschillende pH-omstandigheden zijn gestart. De procedure zorgt voor volledige scheiding van de sondefragmenten, waardoor het op FRET gebaseerde signaal wordt gemaximaliseerd. Bovendien wordt de FAM-fluorofore-emissie van de sonde verminderd in zure pH en is deze optimaal bij pH 8,0. Voor monsters met een hogere ionische sterkte dan die welke in dit onderzoek zijn gebruikt, kan een meer geconcentreerde (>250 mM) en hogere pH (>8,0) egalisatieoplossing nodig zijn om een effectieve pH-aanpassing te bereiken.
OPMERKING: Alkalische pH stopt effectief de activiteit van zuurnucleasen zoals LEI, zoals aangetoond in de huidige studie. Voor neutrale of alkalische nucleasen moeten geschikte specifieke inactiveringsmethoden worden geïdentificeerd en toegepast voordat het signaal wordt beoordeeld.
5. Fluorometrische signaaldetectie en berekening van FRET-verhoudingen
- Gebruik onmiddellijk na de pH-vereffeningsstap een spectrofluormeter om de emissiespectra van zowel de donor- als de acceptorfluoroforen vast te leggen. Voer metingen rechtstreeks uit in de plaat met 96 putjes door de donorfluorofoor bij 488 nm op te wekken en tegelijkertijd emissies te detecteren bij 525 nm (donor) en 580 nm (FRET-afgeleid acceptorsignaal).
- Gebruik de geregistreerde fluorescentie-intensiteiten om de DNase-activiteit in elk monster te evalueren. Pas de juiste statistische methoden toe om de gegevens te analyseren en de significantie te beoordelen.
OPMERKING: Bereken de FRET-verhouding met behulp van de formule: RFRET = donoremissie bij 525 nm/acceptoremissie bij 580 nm. In deze test verstoort DNA-splitsing FRET door de fluoroforen te scheiden, wat resulteert in een verhoogde donoremissie en een verminderde acceptoremissie. Deze verschuiving verhoogt de FRET-ratio (RFRET), die dient als een indicator van DNase-activiteit.
6. Verificatie van splitsing op basis van PAGE
- Controleer de splitsing van de FRET-sonde door denaturering van polyacrylamidegelelektroforese uit te voeren (PAGE)14. De FRET-sonde en zijn splijtingsproducten zijn fluorescerend gelabeld en zichtbaar zonder extra vlekken.
OPMERKING: In de representatieve studie werd LEI-gemedieerde splitsing van de 38-mer FRET-sonde bevestigd door PAGE te denatureren (zie figuur 2). Uit de analyse bleek dat LEI 6-8-mer FAM-gelabelde fragmenten en 15-16-mer TAM-gelabelde fragmenten produceerde, consistent met splitsing in de buurt van beide haarspeldtopexen. Dit patroon verschilde van het fragmentprofiel dat door DNase II werd gegenereerd.- Laad 15 μL van elk monster op een 20% denaturerende PAGE-gel.
- Laat de gel 1 uur draaien op 100 V.
- Verkrijg gelafbeeldingen met behulp van een documentatiesysteem dat is uitgerust met een kleurencamera met hoge resolutie.
OPMERKING: De beelden in het representatieve onderzoek zijn gemaakt met een digitale spiegelreflexcamera.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Deze representatieve studie belicht specifieke voordelen van de ratiometrische FRET-benadering voor het onderzoeken van langzame enzymatische reacties die langere observatieperioden vereisen. De applicatie demonstreert met name de detectie en analyse van de inherente DNase-activiteit van LEI met behulp van een ratiometrisch FRET-systeem. De resultaten van dit onderzoek zijn weergegeven in figuur 2.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Deze studie demonstreert de toepassing van ratiometrische FRET voor de detectie en evaluatie van DNase-activiteit met behulp van een zwakke nuclease - leukocytenelastaseremmer (LEI). De aanpak biedt een handige en kwantitatieve methode voor het beoordelen van de DNase-eigenschappen van eiwitten en biomoleculen. Het protocol is eenvoudig en de procedure voor gegevensanalyse is direct en eenvoudig. De test maakt gebruik van een 38-mer FRET-sonde die lange incubaties bij verschillende zure ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit onderzoek werd ondersteund door subsidie R01 GM148812 van het National Institute of General Medical Sciences, NIH; door subsidies R21 CA255979 van het National Cancer Institute, NIH; en verleent R21 AG073887 en R21 AG071978 beide van het National Institute on Aging, NIH (alle V.V.D.).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 96 well plate | Falcon | 353219 | |
| DNA FRET Probe | IDT DNA | 5’-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3’; FAM – Fluorescein-dT; TAM – Tetramethylrhodamine-dT. | |
| DNase II | Sigma Aldrich | D8764 | |
| EVOLT digital SLR Camera | Olympus | E500 | |
| Gel Electrophoresis Apparatus with Power supply | Bio-Rad | ||
| LEI | Novoprotein | CJ01 | |
| LiCOR Gel Imaging System | LiCOR | ||
| Nuclease-free water | Invitrogen | 10977015 | |
| Pre-Cast PAGE Gel | Invitrogen | EC68852 | |
| Sodium Acetate Buffer Solution pH 5.2 | Sigma Aldrich | S2899-100ML | |
| Spectrofluorometer | Tecan | Saffire 2 |
Referenties
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
