Dit protocol illustreert een methode voor optogenetische stimulatie van intrinsieke hartneuronen in transgene muizenharten. De beschreven benadering wordt gebruikt voor het onderzoeken van de kinetiek van plotselinge activering van hartneuronen in ex vivo geperfuseerde harten en de interacties tussen cholinerge en catecholaminerge activiteit.
Methodenartikel
Optogenetische activering van intrinsieke cardiale autonome neuronen in uitgesneden geperfuseerde muizenharten
In dit artikel
Samenvatting
Samenvatting
Een balans tussen cholinerge en catecholaminerge activering is noodzakelijk om de gezondheid van het hart te behouden. Het onderzoeken van de interactie tussen deze routes kan worden gedaan met behulp van optogenetica door selectieve expressie van channelrhodopsine-2 (ChR2) in autonomische neuronen van het hart. Dergelijke cardiale toepassingen van optogenetica maken het mogelijk om de intrinsieke afgifte van neurotransmitters op een spatiotemporele manier te bestuderen. Deze methode illustreert een ex vivo benadering voor specifieke optogenetische stimulatie van hartneuronen in geperfundeerde muizenharten. Transgene muizen werden gefokt om ChR2 tot expressie te brengen in choline-acetyltransferase (ChAT) of tyrosinehydroxylase (TH) neuronen door het hele lichaam. Een micro-LED (465 nm) ingekapseld in een siliconenelastomeer werd voorbereid om de neuronen van het rechter atrium te stimuleren die de sinoatriale knoop innerveren. De micro-LED werd aangesloten op een functiegenerator die was ingesteld op pulsgolven van 10 Hz met een pulsbreedte van 30 ms. Harten met bevestigde expressie werden weggesneden en retrograde geperfundeerd op een Langendorff-systeem circulerende Krebs-Henseleit-oplossing. Elektrocardiogram (ECG), temperatuur en coronaire stroomsnelheid werden geregistreerd met behulp van de LabChart-software. Zodra het hart gestabiliseerd was, werd de micro-LED op het rechter atrium geplaatst en getest op een optimale hartslagrespons. Een toepassing van deze benadering combineert de intrinsieke afgifte van cholinerge neurotransmitter (acetylcholine) tijdens optogenetische activering van een ChAT-ChR2-muizenhart gelijktijdig met toenemende exogene catecholaminerge neurotransmitter (noradrenaline) die aan het perfusaat wordt toegevoegd. De resulterende veranderingen in hartslag tijdens de gelijktijdige cholinerge en catecholaminerge activering worden gepresenteerd. Deze methode beschrijft een waardevolle experimentele benadering voor het onderzoeken van de kinetiek van plotselinge intrinsieke autonome neuronactivering in geperfuseerde harten en de interacties tussen cardiale cholinerge en catecholaminerge activiteit.
Inleiding
Optogenetica is een methode om lichtgevoelige eiwitten (opsins) te introduceren in gerichte celpopulaties. Dit maakt spatiotemporele modulatie van specifieke cellen en weefsels mogelijk die niet kan worden bereikt met elektrische of chemische middelen1. Cardiale toepassingen van optogenetica zijn de afgelopen 15 jaar steeds populairder geworden2. Fotostimulatie van excitatoire opsines zoals channelrhodopsine-2 (ChR2), een kation, in cardiale myocyten of neuronen resulteert in cellulaire depolarisatie, waardoor veranderingen in het hartritme3 ontstaan. Er zijn twee manieren om opsins selectief tot expressie te brengen in celpopulaties met behulp van de Cre-lox-benadering: virale transductie4 en kruising van transgene dieren5. Selectieve expressie van ChR2 in specifieke autonome neuronen kan worden bereikt door kruising om nakomelingen te creëren die ChR2 tot expressie brengen in cholinerge of catecholaminerge neuronen met behulp van celspecifieke promotors6. Eén ouder met een gefloxed ChR2-gen kan worden gepaard met een ouder die Cre-recombinase tot expressie brengt onder controle van een promotor zoals tyrosinehydroxylase (TH, catecholaminerge neuronen) of choline-acetyltransferase (ChAT, cholinerge neuronen). Nakomelingen brengen vervolgens ChR2 tot expressie in TH- of ChAT-neuronen door het hele lichaam7.
De functionele respons van het hart op acute activering van autonome neuronen kan worden onderzocht met behulp van promotorgestuurde expressie van ChR2 binnen specifieke neuronale populaties, bijvoorbeeld cholinerge of catecholaminerge neuronen. Het pulsinterval en de intensiteit van fotostimulatie kunnen worden gevarieerd om de depolarisatiesnelheid van die neuronen die ChR2 tot expressie brengen te regelen om te bestuderen hoe niveaus van neurale activering de hartfunctie moduleren8. Voor deze methode worden neuronen gebruikt om te verwijzen naar alle cellichamen, axonen en/of axonale projecties die voor het gemak optogenetisch zijn geactiveerd. Het is ook mogelijk om fotostimulatie te combineren met chemische activering door de introductie van medicijnen of neurotransmitters om gelijktijdige effecten op het hartritme en de contractiliteit te onderzoeken9. Optogenetische cholinerge stimulatie kan bijvoorbeeld worden gecombineerd met de injectie van exogene noradrenaline (NE) om de impact van gelijktijdige autonome activering in het hart te onderzoeken. Het uitvoeren van dergelijke studies met behulp van geïsoleerde geperfuseerde harten heeft het voordeel dat het een goed gecontroleerd experimenteel platform biedt om functionele veranderingen veroorzaakt door fotoactiveringte bestuderen 10. Veranderingen in ECG-morfologie, hartslag en coronaire stroomsnelheid kunnen worden gecontroleerd terwijl temperatuur, oxygenatie en perfusiedruk streng worden gecontroleerd.
Het doel van dit protocol is om een experimentele benadering te presenteren om een specifieke populatie van autonome neuronen in muizenharten te activeren om veranderingen in de hartslag te bestuderen. De constructie en het gebruik van een micro-LED-apparaat voor optogenetische activering in geperfuseerde harten wordt ook gepresenteerd. Harten van muizen die ChR2 tot expressie brachten in cholinerge of catecholaminerge neuronen werden weggesneden en retrograde geperfundeerd met een zuurstofrijke Krebs-Henseleit-oplossing onder constante druk. ChR2 dat tot expressie komt in de neuronen van het rechter atrium (RA) werd fotostimuleerd met een hartslag van 10 Hz met een pulsbreedte van 30 ms. De onmiddellijke hartslag werd berekend met behulp van het RR-interval en gecontroleerd op veranderingen tijdens fotostimulatie. Er wordt ook een voorbeeldexperiment beschreven om de hartslagkinetiek te bestuderen tijdens intrinsieke optogenetische fotostimulatie van ChAT-neuronen gelijktijdig met bèta-adrenerge activering met behulp van exogene noradrenaline.
Protocol
Alle dierprotocollen werden goedgekeurd door het Animal Care and Use Committee van de George Washington University en volgden de gids van het National Institute of Health voor de verzorging en het gebruik van proefdieren.
1. Micro-LED-lichtbron constructie
- Soldeer onder een snijmicroscoop in een goed geventileerde ruimte de gestripte uiteinden van twee geïsoleerde koperdraden met een lengte van ten minste 20 cm aan de contactpunten van een micro-LED van 465 nm (Figuur 1). Test het solderen door de LED aan te sluiten op een stroombron en aan te zetten.
- Snijd de onderste 1 cm van een gefilterde pipetpunt van 200 μL af. Duw het filter naar buiten met behulp van een staaf met een kleine diameter. Steek de micro-LED met draden in de pipetpunt zodat de LED gelijk ligt met het uiteinde van de tip. Plaats het filter aan de bovenkant van de pipetpunt terug om de LED en de draden op hun plaats te houden en lijm vervolgens de randen van de LED op de pipetpunt. Laat de secondelijm drogen.
- Bereid siliconenelastomeer voor door de basis en het verharder in een verhouding van 10:1 te combineren en goed te mengen. Verwijder eventuele luchtbellen uit het mengsel met behulp van een vacuümkamer of door centrifugeren.
- Neem een centrifugebuis van 0,5 ml en kerf de zijkanten in om het verwijderen van de LED te vergemakkelijken (hier kan desgewenst ook smeermiddel aan de binnenkant van de buis worden toegevoegd). Plak de buitenkant van de buis af om ervoor te zorgen dat deze niet lekt. Giet ongeveer 0.2 ml van het mengsel van siliciumelastomeer in de buis en plaats vervolgens de micro-LED-pipetpunt in de buis, waarbij er ten minste 1 mm ruimte blijft tussen de LED en de onderkant van de buis. Als er luchtbellen zijn gevormd, tik dan met de centrifugebuis op een hard oppervlak om ze los te maken.
OPMERKING: De pipetpunt kan preventief worden gecoat met siliconenelastomeer om de vorming van luchtbellen te verminderen bij het plaatsen van de LED. - Plaats de centrifugebuis micro-LED rechtop in een laboratoriumoven of incubator van 50 °C en laat deze minimaal 8 uur of een nacht staan. Draag hittebestendige handschoenen bij interactie met de oven. Zodra het elastomeer is uitgehard, verwijdert u de LED uit de centrifugebuis. Als het elastomeer nog plakkerig is, plaats het dan terug in de oven.
- Eenmaal volledig uitgehard, verwijdert u overtollig elastomeer van de punt van de LED met een precisiemes, zodat u niet meer dan 1 mm overlaat. Een goede inkapseling van de LED minimaliseert de opwarming van het weefsel tijdens fotostimulatie.
- Bepaal het optische vermogen van de LED met behulp van een optische vermogensmeter. Zet de vermogensmeter aan en pas de golflengte-instellingen aan op 465 nm. Plaats de LED in lijn met een fotodiode-vermogenssensor en zet de LED aan met de functiegenerator. De optische vermogensmeter geeft een meting in watt. Bereken de bestralingssterkte door het vermogen te delen door het oppervlak van het verlichte oppervlak (0.88 mm2).
OPMERKING: De ideale bestralingssterkte moet ongeveer 2,4 mW/mm2 zijn voor een juiste activering van ChR211.
2. Experimentele voorbereiding
- Fok muizen in overeenstemming met eerdere publicatie om ChR2 tot expressie te brengen in cholinerge neuronen (ChAT-ChR2) of catecholaminerge neuronen (TH-ChR2)12 (Figuur 2). Bevestig de expressie van TH-Cre of ChAT-Cre bij muizen die zijn gebruikt voor experimenten met behulp van een genotyperingsbenadering zoals eerder beschreven12.
- Bereid ten minste 225 ml Krebs-Henseleit (KH)-oplossing (in mM: 118 NaCl, 4.7 KCl, 1.25 CaCl2, 0.57 MgSO4, 25 NaHCO3, 1.17 KH2PO4, 6 glucose) en filtreer met behulp van een 0.2 μm cellulosenitraatmembraanfilter. Pas de pH aan op 7,4 wanneer u zuurstof krijgt met 95% O2 en 5% CO2.
- Spoel het Langendorff-perfusiesysteem voorafgaand aan het experiment met gezuiverd water en verwijder overtollig water voordat u met het experiment begint.
- Voeg een membraanfilter van 10 μm toe aan het systeem voordat er KH wordt gecirculeerd. Zet de waterbaden aan die zijn ingesteld om de perfusaattemperatuur op 37 °C te houden met een debiet tussen 2-5 ml/min.
- Voeg 175 ml KH toe aan het perfusiesysteem en begin met circuleren. Bubbel de oplossing met 95% O2 / 5% CO2 om voldoende oxygenatie te bieden.
OPMERKING: Het KH-circulatievolume varieert van systeem tot systeem, afhankelijk van de afmetingen van de slangen en het reservoir. - Kalibreer de debietmeter door de stroom door het perfusiesysteem te onderbreken met een kraan en op de nulknop op de debietmeter te drukken.
- Bereid een fysiologische data-acquisitiesoftware zoals LabChart voor met 12 kanalen: hartbadtemperatuur, aortaperfusaattemperatuur, ECG-kabels I-III plus vier extra berekende kabels, hartslagberekening, debiet en functiegeneratoroutput om LED-pulsen te volgen.
- Bereken de hartslag in LabChart met behulp van het kanaal dat is gereserveerd voor de hartslag en bereken de hartslag in LabChart met de functie voor cyclische metingen om muis-ECG op afleiding I te detecteren. De uitbreiding van de hartas van LabChart gebruikt afleiding I en afleiding II om afleiding III, aVR, aVL en aVF te berekenen.
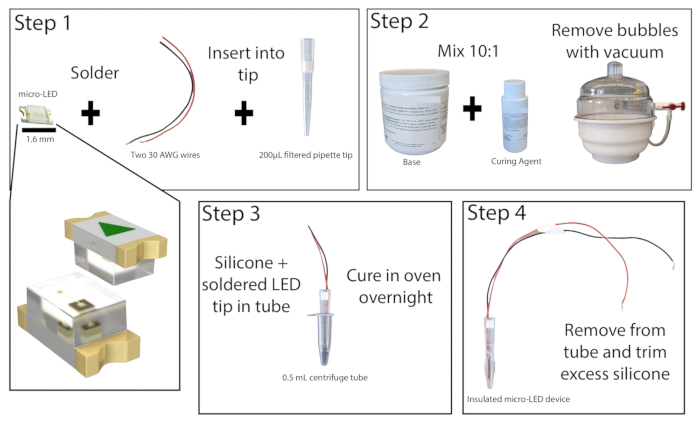
Figuur 1: Micro-LED constructie. Vereenvoudigd overzicht van de stappen voor het bouwen van een micro-LED-lichtbron. Twee draden worden aan de micro-LED gesoldeerd en in een pipetpunt van 200 μL gestoken en vervolgens supergelijmd (stap 1). Siliconenelastomeer wordt gemengd in een verhouding van 10:1 en in een vacuümkamer geplaatst om luchtbellen te verwijderen (stap 2). Het siliconenelastomeer wordt in een microcentrifugebuis gegoten en de micro-LED-pipetpunt wordt ingebracht en een nacht uitgehard (stap 3). De geïsoleerde micro-LED wordt vervolgens uit de buis verwijderd en overtollige siliconen moeten worden bijgesneden (stap 4). Klik hier om een grotere versie van deze figuur te bekijken.
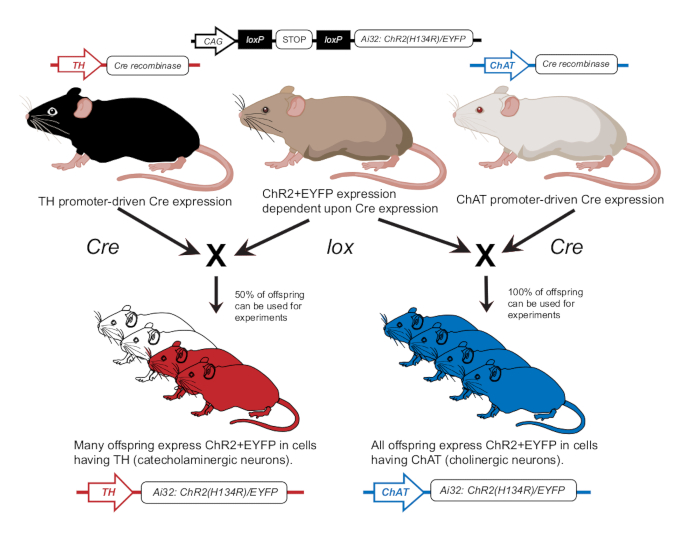
Figuur 2: Transgeen fokschema voor muizen. Een oudermuis met het lox-afhankelijke ChR2-gen wordt gekruist met een andere muis met een Cre-promotor. Een oudermuis met tyrosinehydroxylase (TH) Cre-promotor zal heterozygote nakomelingen produceren waarbij 50% ChR2 tot expressie zal brengen in catecholaminerge cellen. Een oudermuis met choline-acetyltransferase (ChAT) Cre-promotor zal homozygote nakomelingen produceren waarbij 100% ChR2 tot expressie zal brengen in cholinerge cellen. Expressie wordt bevestigd door genotypering. Dit cijfer is gewijzigd met toestemming van12. Klik hier om een grotere versie van deze figuur te bekijken.
3. Hartexcisie en -perfusie
- Dien voorafgaand aan de excisie 250 eenheden heparine (ongeveer 8 E/g) toe door middel van intraperitoneale injectie met behulp van een spuit van 1 ml. Wacht minimaal 10 minuten voor de operatie.
- Plaats een volwassen muis in een anesthesie-inductiekamer. Dien ~4% isofluraan toe en wacht tot de ademhalingsfrequentie vertraagt en verdiept. Haal de muis uit de kamer en controleer het stoppen van een pijnreflex door in de teen te knijpen voordat u cervicale dislocatie uitvoert.
- Houd het xiphoid-proces vast met een tang en snijd in de buikholte met een chirurgische schaar. Open de borstholte door voorzichtig door het middenrif te snijden. Snijd door de ribben om het hart en de longen bloot te leggen. Pak voorzichtig de longen vast en snijd het hart en de longen weg.
- Plaats het hart in een schaal met gehepariniseerde KH. Verwijder de longen en eventuele grote stukken vet. Plaats het gereinigde hart in een2e schaaltje met gehepariniseerde KH onder een ontleedmicroscoop die is ingesteld op een vergroting van 2x. Zoek de aorta en schuif deze met een fijne tang over de canule. Bevestig het hart aan een canule met behulp van 4-0 zijden hechtdraad.
OPMERKING: Canulatie kan over ijs worden gedaan om de metabolische activiteit van het hart te verminderen. - Spoel een bolusinjectie van gehepariniseerd KH door de canule om bloed uit de kransslagaders te verwijderen voordat deze op het perfusiesysteem wordt geplaatst.
- Sluit het gecanuleerde hart aan op het perfusiesysteem en plaats het in de PDMS-schaal gevuld met perfusaat. Plaats ECG-naaldelektroden in de PDMS-schaal volgens driehoek13 van Einthoven. Acclimatiseer het hart gedurende minimaal 5 minuten.
- Draai het hart zodat het linker atrium toegankelijk is en knip een gat van ~1 mm in het linker atrium met een micro zelfopenende schaar. Steek een buis met een diameter van 1 mm door deze plak in de linkerventrikel om het perfusaat dat daar vastzit vrij te maken.
OPMERKING: Het hebben van een ontleedmicroscoop om naar het hart te kijken, kan het gemak van deze stap verbeteren. - Draai het hart zodat de RA naar boven wijst en de sinusknoop (SA) toegankelijk is voor verlichting (Figuur 3).
- Pas de ECG-elektroden naar behoefte aan door de elektroden dichter bij het hart te plaatsen of ze onder te dompelen in perfusate om de signalen met een geschikte signaal-ruisverhouding te ontvangen. Instellingen kunnen variëren, afhankelijk van de hardware en software voor ECG-acquisitie die wordt gebruikt. Deze methode maakte gebruik van een Einthoven Goldberger-module met een versterking van 2000 en een 500 Hz cut-off filter, en de software-instellingen omvatten een netfilter en een bemonsteringsfrequentie van 1000 Hz.
4. Optogenetische activering
- Sluit het micro-LED-apparaat aan op een functiegenerator die is ingesteld om pulsgolven te produceren met de volgende parameters: frequentie 10 Hz, pulsbreedte van 30 ms, amplitude van 10 Vpp .
- Plaats de micro-LED voorzichtig op de SA-node. Druk niet te hard op de micro-LED, omdat dit kan leiden tot een afname van de hartslag en functie.
- Schakel de functiegenerator in en meet veranderingen in de hartslag door fotostimulatie. Onmiddellijke veranderingen in de hartslag duiden op effectieve activering. Catecholaminerge activering veroorzaakt een exponentiële stijging van de hartslag10, terwijl cholinerge activering een onmiddellijke daling veroorzaakt8.
- Schakel de functiegenerator uit. Laat de hartslag terugkeren naar het niveau van vóór de activering.
- Als optogenetische activering resulteert in een hartslagverandering van minder dan 100 slagen per minuut, verplaats dan de micro-LED om de neuronen van de RA beter te verlichten. Herhaal indien nodig.
5. Experimentele procedure en gegevensanalyse
- Om de hypothese te testen dat intrinsieke optogenetische cholinerge stimulatie exogene bèta-adrenerge activering door noradrenaline (NE) kan onderdrukken, bereidt u 10 μM en 100 μM stockoplossingen van NE in een rookvoer.
- Voeg een bolusdosis NE toe aan het perfusiesysteem via een injectiepoort. Zodra de hartslagverhoging plateaus bereikt, schakelt u de micro-LED gedurende ~10 s in. Doe het licht uit en houd veranderingen in de hartslag in de gaten.
- Nadat de hartslag is teruggekeerd naar het sinusritme, verhoogt u de dosis NE en herhaalt u de optogenetische stimulatie. Ga door met elke dosis NE.
- Sluit aan het einde van het onderzoek de gastoevoer af, verwijder het hart uit het systeem en bewaar het indien nodig in fixatief.
- Spoel de reservoirs en slangen van het perfusiesysteem indien nodig af met gedemineraliseerd water of afwasmiddel. Droog het systeem goed af om schimmel te voorkomen.
- Sla het LabChart-bestand op. Exporteer het hartslagsignaal en de ECG-kanalen voor offline analyse en grafische presentatie.
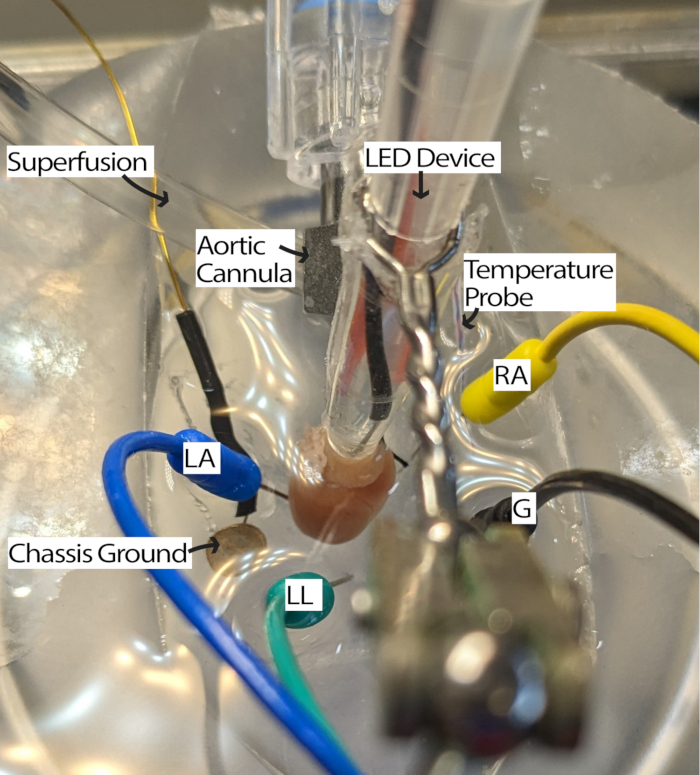
Figuur 3: Configuratie van het hartbad van de muis. Een gecanuleerd muishart met de plaatsing van een LED-apparaat en ECG-elektroden. Er is een chassismassa aanwezig om het geluid van omringende elektronica te verminderen. ECG-naaldelektroden worden geplaatst op basis van de driehoek van Einthoven. Afkortingen: LA = linkerarm; RA = rechterarm; LL = linkerbeen; G = massa. Klik hier om een grotere versie van deze figuur te bekijken.
Resultaten
Een Langendorff-perfusiesysteem met constante druk (Figuur 4) moet in staat zijn om de hartslag van muizen gedurende meer dan een uur van ten minste 300 slagen per minuut te handhaven als de juiste oxygenatie, temperatuur en coronaire stroom worden aangehouden. Met deze opstelling is de temperatuur van het aortaperfusaat afhankelijk van de coronaire stroming, dus de temperatuur van het waterbad moet mogelijk worden aangepast als het debiet verandert om de aortatemperatuur op 37 °C te houden. De coronaire stroomsnelheden van het hart van muizen variëren doorgaans van 1,5-4,5 ml/min, afhankelijk van de grootte van het hart. Het handhaven van de perfusaattemperatuur op 37 °C tijdens fluctuaties van het debiet is noodzakelijk voor een consistente hartfunctie en is vooral belangrijk voor een constante drukperfusie. Het beschreven perfusiesysteem is ontworpen om een hydrostatische druk van 70 mmHg door de hoogte van de perfusaatkolom te handhaven. Dit wordt bereikt met een pompsnelheid die zorgt voor een consistente overloop vanuit het bovenste reservoir. Het perfusaat kan worden aangevuld met 20 μM van de vaatverwijdende cromakalin om de normale of supranormale coronaire stroom te verbeteren en te behouden om volledige myocardiale oxygenatie te garanderen14.
Fotostimulatie van cholinerge neuronen in ChAT-ChR2-muizenharten bij 10 Hz en pulsbreedte van 30 ms zou moeten resulteren in een bijna onmiddellijke daling van de hartslag. Efficiënte fotostimulatie van cholinerge neuronen in voldoende geperfundeerde harten zou moeten leiden tot een verlaging van de hartslag met ten minste 100 slagen per minuut. Figuur 5 toont een onmiddellijke daling van 75 bpm wanneer de micro-LED wordt ingeschakeld, die blijft dalen tot een maximale daling van 135 bpm. Binnen een halve seconde na het uitschakelen van de micro-LED stijgt de hartslag tot 175 slagen per minuut voordat hij geleidelijk terugkeert naar het niveau van vóór de stimulatie. Een ECG met zes afleidingen wordt gepresenteerd om de verschillen in RR-interval voor, tijdens en na stimulatie te illustreren (Figuur 5B). Leads aVR, aVL en aVF worden berekend in de LabChart-software met behulp van Leads I en II.
Fotostimulatie van catecholaminerge neuronen in TH-ChR2-muizenharten veroorzaakt een meer geleidelijke (exponentiële) verandering in hartslag in vergelijking met fotostimulatie van cholinerge neuronen. Dit wordt waarschijnlijk veroorzaakt door bèta1-adrenerge activering waarvoor het tweede boodschappersysteem van cAMP PKA activeert, dat doeleiwitten fosforyleert, terwijl muscarine-activering dat niet doet. Figuur 6 toont een toename van de hartslag met 135 slagen per minuut in de loop van 10 seconden. Nadat het licht is uitgeschakeld, is er nog eens 10 s nodig om terug te keren naar het normale sinusritme. Als de micro-LED niet goed geïsoleerd is, kan deze het hart verwarmen, waardoor de hartslag toeneemt. Deze verwarmingsreactie is minder intens dan TH-ChR2-stimulatie; Daarom is de verandering in hartslag minder uitgesproken.
Een toepassing van dit protocol is het gebruik van optogenetische stimulatie om neuronen te depolariseren, wat leidt tot het vrijkomen van endogene neurotransmitters en tegelijkertijd exogene neurotransmitters aan het parfumaat toevoegt. Figuur 7A illustreert de endogene afgifte van acetylcholine uit een ChAT-ChR2-muizenhart met een bolusdosis NE toegevoegd aan het perfusaat. Zonder NE zorgde fotostimulatie ervoor dat de hartslag met meer dan 100 slagen per minuut daalde en deze daling aanhield voor de duur van de stimulatie. Terwijl bij een grote dosis NE (2000 nM) de maximale hartslagdaling tijdens fotostimulatie 40 bpm was. De hartslag begon onmiddellijk te stijgen en bereikte bijna het niveau van vóór de stimulatie voordat het licht werd uitgeschakeld. Dit resultaat geeft aan dat optogenetische onderdrukking van de hartslag door fotostimulatie van ChAT-neuronen niet in staat was om verhogingen van de hartslag als gevolg van een hoge dosis NE volledig te onderdrukken, wat leidde tot een kortere tijd van hartslagonderdrukking en een lagere afname van de hartslag (Figuur 7B). Deze resultaten komen overeen met eerder werk bij grote dieren die progressieve AV-knoopblokkade vertoonden tijdens gelijktijdige stimulatie van de nervus vagus en de stellate ganglia12,13.
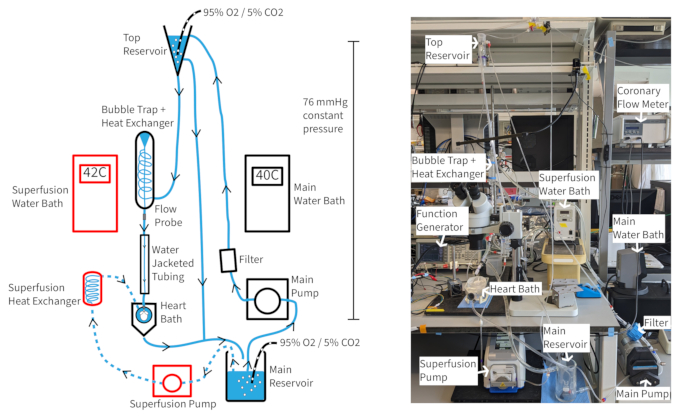
Figuur 4: Experimentele opstelling. Schema van het perfusiesysteem. Pijlen geven de richting van het parfumaat aan. Superfusieperfusaat wordt aangegeven door stippellijnen en de componenten zijn rood omlijnd. Klik hier om een grotere versie van deze figuur te bekijken.
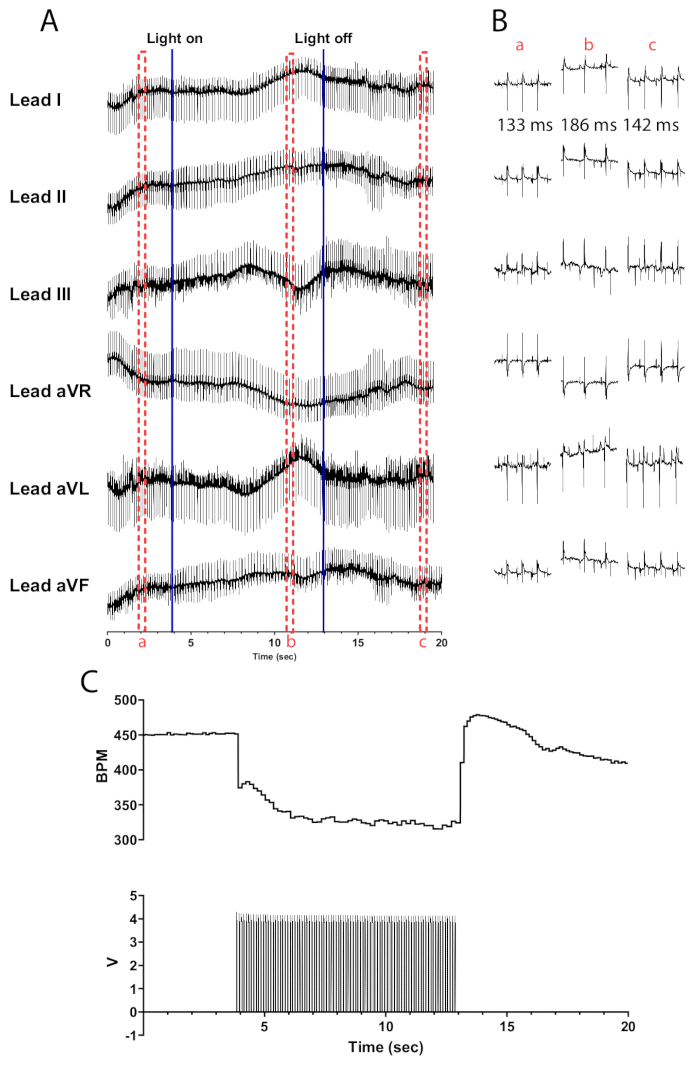
Figuur 5: Representatieve cholinerge fotostimulatierespons. (A) Een 6-afleidingen ECG tijdens ChAT-ChR2 optogenetische activering. Ononderbroken blauwe lijnen geven aan dat de micro-LED wordt in-/uitgeschakeld. Rode stippelvakken geven de tijd aan voor (B) fragmenten. (B) Fragmenten van een halve seconde van het ECG-signaal vóór (a), tijdens (b) en na fotostimulatie (c). Het RR-interval wordt voor elke sectie weergegeven. (C) De hartslag (boven) wordt weergegeven samen met de pulsgolven van een functiegenerator (onder). De hartslag begint bij 450 slagen per minuut en daalt tot 315 slagen per minuut na 8 s fotostimulatie voordat hij terugkeert naar 410 slagen per minuut 7 seconden nadat de fotostimulatie is beëindigd. Klik hier om een grotere versie van deze figuur te bekijken.
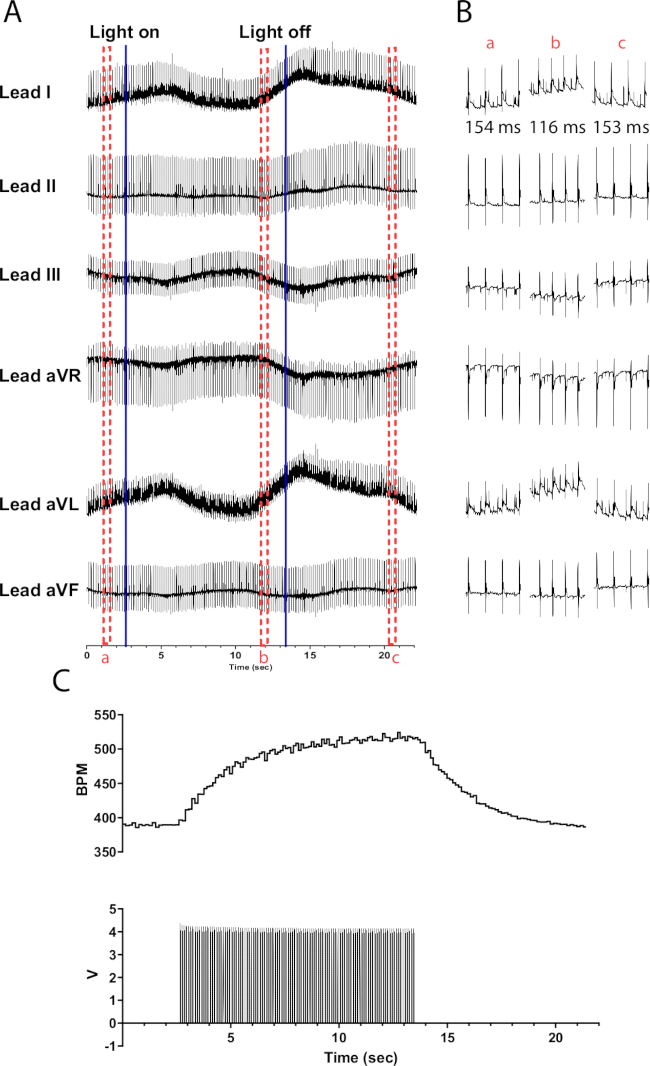
Figuur 6: Representatieve catecholaminerge fotostimulatierespons. (A) Een 6-afleidingen ECG tijdens TH-ChR2 optogenetische activering. Ononderbroken blauwe lijnen geven aan dat de micro-LED wordt in-/uitgeschakeld. Rode stippelvakken geven de tijd aan voor (B) fragmenten. (B) Fragmenten van een halve seconde van het ECG-signaal vóór (a), tijdens (b) en na fotostimulatie (c). Het RR-interval wordt voor elke sectie weergegeven. (C) De hartslag (boven) wordt weergegeven samen met de pulsgolven van een functiegenerator (onder). De hartslag begint bij 390 slagen per minuut en piekt tot 525 slagen per minuut na 10 seconden fotostimulatie voordat hij terugkeert naar 390 slagen per minuut 8 seconden nadat de fotostimulatie is beëindigd. Klik hier om een grotere versie van deze figuur te bekijken.
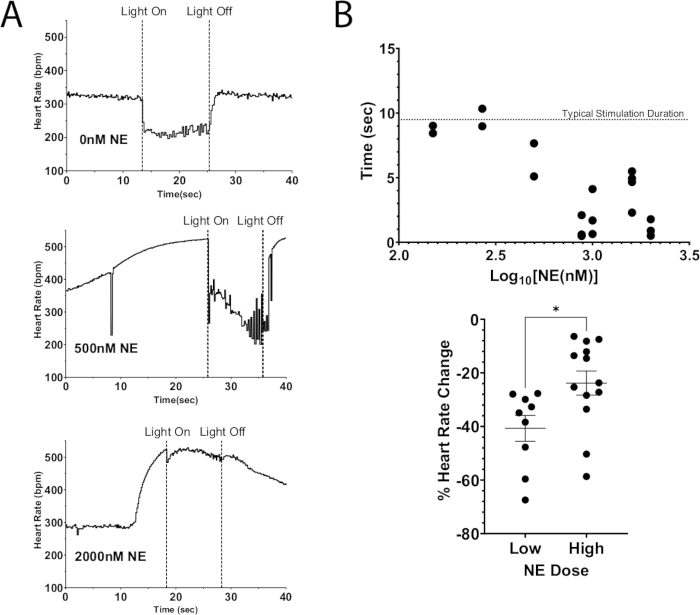
Figuur 7: Cholinerge fotostimulatie met exogene NE. (A) Hartslagrespons tijdens ChAT-ChR2-fotostimulatie met toenemende doses NE toegevoegd om te parfumeren. Zodra de hartslag een maximale toename bereikte als gevolg van NE, werd de micro-LED ongeveer 10 s ingeschakeld. Hartslagonderdrukking was nog steeds mogelijk bij hoge doses NE, maar de duur van de stimulatie nam af naarmate de dosis toenam. (B) De hoeveelheid tijd dat de hartslag onderdrukt bleef. Tijden dichter bij 10 s bleven over het algemeen onderdrukt gedurende de volledige duur van de stimulatie. (C) De daling van de hartslag tijdens fotostimulatie was minder ernstig bij hogere doses NE dan bij lage doses. Lage doses resulteerden in een gemiddelde afname van de hartslag van 40%, terwijl hogere doses slechts 25% daalden. Een ongepaarde t-test werd uitgevoerd om de statistische significantie te beoordelen. Gepresenteerd als standaardfout van het gemiddelde * p < 0,05. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Optogenetische stimulatie van intrinsieke cardiale autonome neuronen produceerde vergelijkbare niveaus van hartslagrespons als elektrische stimulatie van de nervus vagus of stellate ganglia14,15. Elektrische stimulatie van uitgesneden geperfuseerde harten mist echter het voordeel dat het gemakkelijk kan worden gericht op specifieke neuronenpopulaties. Farmacologische activering biedt het voordeel dat het zich richt op specifieke receptoren, maar heeft geen ruimtelijke specificiteit en de responstijd is afhankelijk van de coronaire stroomsnelheid. Optogenetische activering biedt het voordeel van een bijna onmiddellijke respons, het richten op neuronale populaties en het vermogen om het niveau van fotostimulatie te veranderen16. In dit protocol hebben we ook uitgelegd hoe je een eenvoudige, goedkope lichtbron kunt bouwen voor het fotostimuleren van de intrinsieke hartneuronen.
Het ontwikkelen van een beter begrip van de impact van het intracardiale zenuwstelsel zal een betere diagnose en behandeling van hart- en vaatziekten mogelijk maken. Selectieve expressie van ChR2 maakt het mogelijk om nieuwe hypothesen met betrekking tot de activiteit van specifieke zenuwpopulaties tijdens de ziekte te testen. Zenuwpopulaties in het hele hart kunnen op deze manier worden ondervraagd, zoals intrinsieke cardiale ganglia rond de longaders of door de ventrikels. In muismodellen van een hartinfarct kan fotostimulatie van intrinsieke autonome neuronen bijvoorbeeld nuttig zijn voor het ondervragen van elektrofysiologische veranderingen in grenszoneweefsel naarmate het infarct evolueert en neuronen transdifferentiatie ondergaan17. In dit protocol beschrijven we een ander voorbeeld met gecontroleerde experimenten met acute cardiale responsen op gelijktijdige activering van cholinerge en catecholaminerge routes, waarbij de combinatie van optogenetische en farmacologische middelen het mogelijk maakt om unieke dosisresponsen te onderzoeken. Deze gelijktijdige activering is een fenomeen dat verband houdt met verdrinking, bekend als autonoom conflict, dat nog niet volledig is opgehelderd18. Bovendien kan dit protocol, mits de juiste combinaties van licht, kleurstof en filter, worden gecombineerd met cardiale optische mapping om de acute effecten van autonome neuronstimulatie op cardiale elektrofysiologie en neuro-cardiale aritmiemechanismen te bestuderen 19,20,21.
Er zijn verschillende belangrijke concepten waarmee rekening moet worden gehouden bij het gebruik van dit protocol om het intrinsieke cardiale zenuwstelsel in uitgesneden geperfuseerde harten te bestuderen. Muizenharten zijn gevoelig voor kleine veranderingen in de perfusieomgeving. Het nauwlettend volgen van de hartslag is nuttig om problemen met coronaire perfusie te identificeren die een lage oxygenatie van het myocardium, ischemie en een slechte hartfunctie kunnen veroorzaken. Het protocol beveelt aan om het perfusaat bij zowel het hoofd- als het bovenste reservoir van zuurstof te voorzien om mogelijke problemen te beperken. Het volledig onderdompelen van de oxygenatieslang helpt om een optimaal zuurstofgehalte in het parfumaat te garanderen. Een ultraviolette zaklamp kan op het hart worden geschenen om NADH-fluorescentie te onthullen die hypoxie/ischemie aangeeft, en de oxygenatie kan dienovereenkomstig worden aangepast19,20. De perfusaattemperatuur is afhankelijk van het coronaire debiet tijdens perfusie onder constante druk. Als het coronaire debiet daalt, kan de temperatuur van het aortaperfusaat ook dalen als gevolg van afkoeling in de slang proximaal van de aortacanule, wat resulteert in een lagere hartslag. Het verhogen van de temperatuur van het perfusaatwaterbad kan dit probleem helpen verhelpen. Dit protocol maakt ook gebruik van een superfusielus om een hartbadtemperatuur van 37 °C te behouden. Druppels in de temperatuur van het hartbad kunnen het nodig maken om het superfusiedebiet te verhogen. De micro-LED is een andere bron van mogelijke veranderingen in de harttemperatuur, omdat de temperatuur van de RA kan stijgen tijdens fotostimulatie. Als het siliconenelastomeer dat het apparaat omhult te dun is, kan de micro-LED warm worden en de SA-knoop verwarmen, wat resulteert in een onverwachte verhoging van de hartslag. Het testen van de micro-LED-lichtbron op een wildtype hart kan nuttig zijn om de verwarmingsniveaus te meten. De micro-LED mag geen hartslagverhoging van meer dan 10% over 30 s veroorzaken. Als dit gebeurt, moet het siliconenelastomeer worden vervangen.
Het doel van ex vivo geperfuseerde hartexperimenten is om bijna-fysiologische omstandigheden na te bootsen met controleerbare variabelen, maar ze hebben beperkingen22. Kristalloïde perfusaat is de standaard voor deze experimenten; Het kan echter de zuurstoftoevoer naar de mitochondriën beperken onder stressvolle omstandigheden23,24. Bovendien mist het perfusaat circulerende hormonen die van nature in vivo zouden voorkomen. Een extra beperking is dat variabele lichtintensiteit en plaatsing van de micro-LED kunnen leiden tot lokale verschillen in neurale stimulatie, dus er zijn altijd enkele aanpassingen nodig in de positionering van de micro-LED boven het hart voordat met een experimenteel protocol wordt begonnen.
Samenvattend illustreert dit protocol een ex vivo benadering voor specifieke optogenetische stimulatie van hartneuronen in geperfundeerde muizenharten. Er werd een micro-LED-lichtbron geconstrueerd om de neuronen van het rechter atrium te stimuleren. Een toepassing van deze benadering combineerde de intrinsieke afgifte van acetylcholine tijdens optogenetische activering van een ChAT-ChR2-muizenhart gelijktijdig met toenemende exogene NE. De resulterende veranderingen in hartslag tijdens de gelijktijdige catecholaminerge en cholinerge activering werden gepresenteerd. Dit protocol beschrijft een waardevolle experimentele benadering voor het onderzoeken van de kinetiek van plotselinge intrinsieke autonome neuronactivering in geperfuseerde harten en de interacties tussen cardiale cholinerge en catecholaminerge activiteit.
Openbaarmakingen
Geen belangenconflicten te melden.
Dankbetuigingen
Dit werk werd ondersteund door NIH R01 HL144157 naar MWK, NIH R01 HL144157 naar EE en MWK, en NIH R01s HL147279 en HL146169 naar MWK en DM, en een Collins Distinguished Doctoral Fellowship naar RR.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| #3c Forceps (x2) | Dumont | 11231-20 | |
| 0.2 μm Cellulose Nitrate Membrane Filter | Whatman | 7182-004 | Voor het filteren van KH |
| 0.5 ml, Microcentrifuge Tube | Ultra Cruz | sc-200269 | |
| 10 μm Nuclepore Membrane Filter | Whatman | 111115 | Voor systeemfilter |
| Analog Incubator | Qunicy Labs | 12-140 | |
| Aortic Cannula | Harvard Apparatus | 73-2798 | |
| Arbitrary Function Generator | Tektronix | AFG3021B | |
| Braided Silk Suture 4-0 | Surgical Specialties Look | SP116 | |
| CaCl2 | Sigma-Aldrich | C1016 | |
| Curved Hemostat | Ted Pella | 53065 | |
| Einthoven Goldberger Module | Hugo Sachs Elektronik | 73-1778 | |
| Flexible Silicone Wire 30AWG | BNTECHGO | 619317716902 | |
| Glucose | Sigma-Aldrich | G8270 | |
| Heavy Curved Iris Forceps | Aesculap | OC022R | |
| Heparin Sodium Injection | Sagent | 400-30 | |
| Iris Scissors | Ted Pella | 13215 | |
| Isoflurane Solution | Covetrus | 029405 | |
| KCl | Sigma-Aldrich | P3911 | |
| KH2PO4 | Sigma-Aldrich | P9791 | |
| LabChart 8 | ADInstruments | Data-acquisitiesoftware | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| Microdissecting Scissors | WPI | 504520 | |
| Micro-LED | Dialight | 598-8091-107F | |
| NaCl | Sigma-Aldrich | S9625 | |
| NaHCO3 | Sigma-Aldrich | S6014 | |
| Optical Power Meter | Thorlabs | PM100D | |
| PowerLab 8/35 | ADInstruments | PL3508 | |
| Self-opening Precision Scissors | Excelta | 366 | |
| Single Animal Anesthesia Machine | E-Z Systems | EZ-108SA | |
| Soldering Station | Weller | WES51 | |
| SureOne Filter Pipette Tips | Fisherbrand | 02-707-478 | |
| SYLGARD 184 Silicone Elastomer Kit | DOW | 04019862 | |
| Tissue Forceps | Ted Pella | 13220 | |
| Tubing Flow System | Transonic | TS410 |
Referenties
- Deisseroth, K., et al. Next-generation optical technologies for illuminating genetically targeted brain circuits. J Neurosci. 26 (41), 10380-10386 (2006).
- Entcheva, E., Kay, M. W. Cardiac optogenetics: a decade of enlightenment. Nat Rev Cardiol. 18, 349-367 (2021).
- Ambrosi, C. M., Klimas, A., Yu, J., Entcheva, E. Cardiac applications of optogenetics. Prog Biophys Mol Biol. 115 (2-3), 294-304 (2014).
- Pinol, R. A., Bateman, R., Mendelowitz, D. Optogenetic approaches to characterize the long-range synaptic pathways from the hypothalamus to brain stem autonomic nuclei. J Neurosci Meth. 210 (2), 238-246 (2012).
- Zeng, H., Madisen, L. Mouse transgenic approaches in optogenetics. Prog Brain Res. 196, 193-213 (2012).
- Sauer, B. Inducible gene targeting in mice using the Cre/lox system. Methods. 14 (4), 381-392 (1998).
- Hedrick, T., et al. Characterization of channelrhodopsin and archaerhodopsin in cholinergic neurons of Cre-lox transgenic mice. PLoS One. 11 (5), 1-15 (2016).
- Moreno, A., et al. Sudden heart rate reduction upon optogenetic release of acetylcholine from cardiac parasympathetic neurons in perfused hearts. Front Physiol. 10, 1-11 (2019).
- Habecker, B. A., et al. Molecular and cellular neurocardiology in heart disease. J Physiol. , (2024).
- Wengrowski, A. M., et al. Optogenetic release of norepinephrine from cardiac sympathetic neurons alters mechanical and electrical function. Cardiovas Res. 105 (2), 143-150 (2015).
- Williams, J. C., et al. Computational optogenetics: empirically-derived voltage- and light-sensitive channelrhodopsin-2 model. PLoS Comput Biol. 9 (9), e1003220(2013).
- Moreno, A., Kowalik, G., Mendelowitz, D., Kay, M. W. Optogenetic control of cardiac autonomic neurons in transgenic mice. Meth Mol Biol. 2191, 309-321 (2021).
- Einthoven, W., Fahr, G., de Waart, A. On the direction and manifest size of the variations of potential in the human heart and on the influence of the position of the heart on the form of the electrocardiogram. Am Heart J. 40 (2), 163-211 (1950).
- Giles, A. V., et al. Paradoxical arteriole constriction compromises cytosolic and mitochondrial oxygen delivery in the isolated saline-perfused heart. Am J Physiol Heart Circ Physiol. 315 (6), H1791-H1804 (2018).
- Wallick, D. W., Martin, P. J., Masuda, Y., Levy, M. N. Effects of autonomic activity and changes in heart rate on atrioventricular conduction. Am J Physiol. 243 (4), H523-H527 (1982).
- Entcheva, E. Cardiac optogenetics. Am J Physiol Heart Circ Physiol. 304 (9), H1179-H1191 (2013).
- Wang, L., et al. Cardiac sympathetic nerve transdifferentiation reduces action potential heterogeneity after myocardial infarction. Am J Physiol Heart Circ Physiol. 318 (3), H558-H565 (2020).
- Shattock, M. J., Tipton, M. J. Autonomic conflict: a different way to die during cold water immersion. J Physiol. 590 (14), 3219-3230 (2012).
- Sacconi, L., et al. KHz-rate volumetric voltage imaging of the whole Zebrafish heart. Biophys Rep. 2 (1), 100046(2022).
- Asfour, H., Swift, L. M., Sarvazyan, N., Doroslovacki, M., Kay, M. W. Signal decomposition of transmembrane voltage-sensitive dye fluorescence using a multiresolution wavelet analysis. IEEE Trans Biomed Eng. 58 (7), 2083-2093 (2011).
- Nyns, E. C. A., et al. Optogenetic termination of ventricular arrhythmias in the whole heart: towards biological cardiac rhythm management. Eur Heart J. 38 (27), 2132-2136 (2017).
- Ripplinger, C. M., et al. Guidelines for assessment of cardiac electrophysiology and arrhythmias in small animals. Am J Physiol Heart Circ Physiol. 323 (6), H1137-H1166 (2022).
- Swift, L. M., Kay, M. W., Ripplinger, C. M., Posnack, N. G. Stop the beat to see the rhythm: excitation-contraction uncoupling in cardiac research. Am J Physiol Heart Circ Physiol. 321 (6), H1005-H1013 (2021).
- Asfour, H., et al. NADH fluorescence imaging of isolated biventricular working rabbit hearts. J Vis Exp. (65), e4115(2012).
Herprints en machtigingen
