Hier presenteren we een studie die is opgezet in de iDiv Ecotron, terrestrische mesokosmoskamers met gecontroleerde omgevingscondities boven en onder de grond, om de onafhankelijke en interactieve effecten van plantgeschiedenis en bodemgeschiedenis op het functioneren van ecosystemen van graslandgemeenschappen langs een plantendiversiteitsgradiënt te bestuderen.
Methodenartikel
JenaTron - Een experimentele benadering om de effecten van plantgeschiedenis en bodemgeschiedenis op het functioneren van graslandecosystemen te bestuderen
In dit artikel
Samenvatting
Samenvatting
Het wereldwijde verlies aan biodiversiteit heeft geleid tot veel studies die experimenteel de rijkdom aan plantensoorten variëren en de gevolgen voor het functioneren van ecosystemen onderzoeken. Dergelijke experimenten tonen over het algemeen een positieve relatie aan tussen boven- en ondergrondse biodiversiteit en het functioneren van terrestrische ecosystemen. Bovendien heeft deze relatie de neiging om in de loop van de tijd sterker te worden, gezien als een verbeterd functioneren van diverse plantengemeenschappen en een verminderd functioneren van plantengemeenschappen met een lage diversiteit. Er wordt verondersteld dat verschillen in multitrofe gemeenschapsassemblage en biotische interacties in plantengemeenschappen met een hoge versus lage diversiteit de plantprestaties beïnvloeden door de structuur en functie van de consumentengemeenschap te veranderen en plastische of micro-evolutionaire reacties van plantensoorten in de plantengemeenschappen te stimuleren. Om dit complexe samenspel van gemeenschapsgeschiedenis op te lossen, hebben we deze effecten opgesplitst in plant- en bodemgeschiedenis. Plantgeschiedenis verwijst naar alle reacties op plantniveau op abiotische en biotische selectiedruk in het verleden die in hun gemeenschappen worden ervaren, terwijl bodemgeschiedenis betrekking heeft op alle abiotische en biotische bodemeigenschappen die zijn ontwikkeld als een erfenis van plant-bodeminteracties onder variabele plantendiversiteit. We hebben een biodiversiteitsexperiment opgezet in een Ecotron, een terrestrische mesokosmos-faciliteit die het mogelijk maakt om de omgevingscondities boven en onder de grond te beheersen, om te testen of de versterkende relatie tussen biodiversiteit en ecosysteemfunctioneren te wijten is aan bodemgeschiedenis, plantgeschiedenis of een combinatie van beide. We hebben een plantendiversiteitsgradiënt vastgesteld die bestaat uit 1, 2, 3 en 6 graslandplantensoorten en factorieel genesteld met bodemgeschiedenis en plantgeschiedenisbehandelingen voor elk niveau van plantensoortenrijkdom. Representatieve resultaten tonen de succesvolle vaststelling van doelbehandelingen in het Ecotron-experiment, waarbij de effecten van plant- en bodemgeschiedenis op de initiële plantontwikkeling en de uiteindelijke plantengroei worden geobserveerd. Daarnaast bieden we een casestudy voor data-analyse van individuele responsvariabelen. We schetsen onderzoeksdoelstellingen en -methoden om de multifunctionele responsen op de experimentele behandelingen die nodig zijn om uiteindelijk de overkoepelende hypothese te beantwoorden, uitgebreid te beoordelen.
Inleiding
In de afgelopen drie decennia heeft de groeiende bezorgdheid over het verlies aan biodiversiteit geleid tot uitgebreid onderzoek gericht op het experimenteel manipuleren van de rijkdom aan plantensoorten om de impact ervan op het functioneren van ecosystemen te onderzoeken 1,2. Experimentele studies hebben een positieve relatie aangetoond tussen plantendiversiteit en het functioneren van ecosystemen1, die in de loop van de tijd de neiging heeft toe te nemen 3,4,5,6,7,8,9. Dit is een belangrijke bevinding, omdat het suggereert dat experimentele resultaten verkregen van jonge, recent opgerichte gemeenschappen waarschijnlijk de gevolgen van biodiversiteitsverlies onderschatten, terwijl het belang van het behoud van oudere, soortenrijke ecosystemen wordt benadrukt10.
Veranderingen in biotische en abiotische processen in de loop van de tijd, die alleen kunnen worden waargenomen in langetermijnexperimenten, zijn een mogelijke verklaring voor de versterkende effecten van biodiversiteit op het functioneren van ecosystemen. Een hoge plantendiversiteit is in verband gebracht met een toename van de koolstof- en nutriëntenconcentraties in de bodem 3,9,11,12,13, geoptimaliseerde complementariteit van hulpbronnen 3,8,14, verbeterde nichedifferentiatie tussen planten15, accumulatie van mutualisten op alle trofische niveaus10,16, en verminderde bedreigingen van ziekteverwekkers en herbivoren via sterkere top-down regulerende mechanismen 17,18,19. Omgekeerd is een lage plantendiversiteit in verband gebracht met selectieve druk om meer te investeren in de afweer van planten en minder efficiënt gebruik van hulpbronnen 10,20,21,22. Alles bij elkaar wordt verondersteld dat verschillen in multitrofe gemeenschapsassemblage en biotische interacties in plantengemeenschappen met een hoge versus lage diversiteit de plantprestaties beïnvloeden door de structuur en functie van de consumentengemeenschap te veranderen, en door plastische of micro-evolutionaire veranderingen van plantensoorten op het niveau van plantengemeenschappen te stimuleren 23,24,25,26. Om het complexe samenspel van de gemeenschapsgeschiedenis op te lossen, werden deze effecten opgesplitst in twee belangrijke componenten: plantgeschiedenis en bodemgeschiedenis. Plantgeschiedenis verwijst naar alle reacties van planten op abiotische en biotische selectiedruk in het verleden die in hun respectievelijke gemeenschappen is ervaren, terwijl bodemgeschiedenis betrekking heeft op alle abiotische en biotische bodemeigenschappen die zijn ontwikkeld als gevolg van plant-bodeminteracties 23,24,27,28. Beide componenten worden steeds meer erkend als belangrijke aanjagers van biodiversiteitseffecten op de lange termijn 29,30,31.
Experimentele veldstudies leveren waardevolle inzichten op in de langetermijneffecten van bodem- en plantgeschiedenis onder realistische omgevingsomstandigheden en op grote ruimtelijke schaal32,33. Veldexperimenten zijn echter onderhevig aan verschillende ongecontroleerde externe factoren, zoals weersschommelingen, natuurlijke verstoringen en interacties met andere organismen. Daarentegen bieden kleinschalige microkosmosexperimenten, hoewel beperkt in het vastleggen van de complexiteit en dynamiek van natuurlijke ecosystemen, nauwkeurige controle over abiotische factoren zoals temperatuur, licht en water34. Om de voordelen van beide benaderingen te combineren, ontstonden in de jaren 1990 nieuwe experimentele faciliteiten, 'Ecotrons' genaamd, (bijv. Ecotron in Silkwood, UK34; Ecotron in Montpellier, Frankrijk35; Ecotron in Hasselt, België36). Roy et al. (2021)37 definiëren een Ecotron als een experimentele faciliteit die bestaat uit gerepliceerde behuizingen die zijn ontworpen om ecosysteemmonsters te huisvesten, waardoor een realistische simulatie van boven- en ondergrondse omgevingsomstandigheden mogelijk is en tegelijkertijd de gelijktijdige en geautomatiseerde meting van ecosysteemprocessen wordt vergemakkelijkt. Ecotrons maken dus de geïntegreerde studie van complexe ecosysteemprocessen, multitrofe interacties en ecosysteemfuncties mogelijk. Ze kunnen een verscheidenheid aan boven- en ondergrondse organismen van meerdere trofische niveaus herbergen in een grote reeks onafhankelijke mesokosmoskamers, waardoor nauwkeurige controle en monitoring van de omgevingsomstandigheden in zowel boven- als ondergrondse systemen mogelijk is37,38.
In deze studie hebben we een experiment opgezet in de iDiv Ecotron38,39, aangeduid als het "JenaTron Experiment" (Figuur 1 en Figuur 2), om te testen of relaties tussen biodiversiteit en ecosysteemfunctioneren (BEF) in gemeenschappen met verschillende niveaus van plantensoortenrijkdom worden gemoduleerd door bodemgeschiedenis, gedeelde plantgeschiedenis of een gecombineerd effect van beide. De iDiv Ecotron is speciaal ontworpen voor multitrofe biodiversiteitsexperimenten, gericht op het gezamenlijk onderzoek naar boven- en ondergrondse interacties in terrestrische ecosystemen 38,39,40. Het bestaat uit 24 identieke experimentele eenheden, 'EcoUnits' genoemd (Figuur 2F,G), die elk in staat zijn om maximaal vier individuele ecosystemen in geïsoleerde compartimenten te huisvesten (Figuur 2K), waardoor de constructie van complexe, bijna-natuurlijke ecosystemen mogelijk is en de impact van milieuvariabiliteit wordt geminimaliseerd. Een belangrijk voordeel is het vermogen om meerdere replicaten van intacte bodemmonolieten vast te stellen (Figuur 2A-C) onder gecontroleerde omgevingsomstandigheden, waardoor ingewikkelde ecosysteemprocessen kunnen worden gemeten, waaronder plant-plant en plant-bodem feedbackeffecten, die vaak moeilijk vast te leggen zijn in kleinschalige microkosmosexperimenten38,39.
In Europa behoren halfnatuurlijke graslanden tot de meest biodiverse en complexe terrestrische ecosystemen en leveren ze essentiële ecosysteemdiensten. Sinds het begin van de 20eeeuw worden deze extensief beheerde graslanden echter steeds meer bedreigd door veranderingen in landgebruik, waardoor ze een belangrijk aandachtspunt zijn voor het behoud van en onderzoek naar biodiversiteit. Een van 's werelds langstlopende biodiversiteitsexperimenten op extensief beheerde graslanden is het Jena Experiment 32,33, gelegen in Jena, Duitsland (50.951°N, 11.621°E, 139 m boven zeeniveau; website: https://the-jena-experiment.de). Het experiment, dat in 2002 werd opgezet, onderzoekt de relaties tussen de diversiteit van graslandplanten en het functioneren van ecosystemen, met name gericht op de nutriëntenkringloop en trofische interacties32,33. Voor de installatie van het JenaTron-experiment in de iDiv Ecotron hebben we gebruik gemaakt van het Trait-Based Experiment41 (TBE), een onderdeel van het Jena-experiment dat in 2010 is gestart en in 2021 is voltooid. In 2022 werden 23 percelen van de TBE geselecteerd om een plantendiversiteitsgradiënt vast te stellen, variërend van één tot zes soorten, verspreid over 24 plantengemeenschappen binnen de iDiv Ecotron. Deze gemeenschappen bestonden uit zes graslandplantensoorten, die overlapten met het hoofdexperiment van het Jena-experiment en drie grassoorten vertegenwoordigden (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) en drie forb-soorten (Leucanthemum vulgare agg., Plantago lanceolata L. en Ranunculus acris L.; zie tabel 1 voor details over de samenstelling van plantensoorten en replicaten voor elk plantdiversiteitsniveau). Deze soorten, wijdverspreid en vaak naast elkaar bestaand in semi-natuurlijke Europese graslanden, verschillen bovendien in hun eigenschappen voor het verwerven van tijdelijke hulpbronnen, waardoor ze ideaal zijn voor uitgebreide studies van het gebruik van tijdelijke hulpbronnen, zoals plantenfenologie41. De 24 plantsamenstellingen werden willekeurig toegewezen aan alle EcoUnits (Figuur 1C), waarbij elke EcoUnit verder werd onderverdeeld in vier compartimenten om plaats te bieden aan de factoriële combinaties van bodemgeschiedenis en plantgeschiedenisbehandelingen.
De bodemgeschiedenis (figuur 1A) werd vastgesteld door in totaal 96 bodemmonolieten uit het Jena-experiment op te graven. De bodem van de site is een voedselrijke uiterwaardenbodem die is geclassificeerd als Eutric Fluvisol, ontwikkeld uit leemachtige riviersedimenten32,33. Gedetailleerde informatie over de pH van de bodem, veranderingen in de bodemtextuur en organisch materiaal binnen het bodemprofiel van het Jena Experiment is te vinden in Lange et al. (2023)9. Van de 96 monolieten werden er 48 verkregen door twee monolieten op te graven uit elk van de 22 TBE-percelen, die monoculturen, mengsels van twee en drie soorten omvatten. Bovendien werden vier monolieten genomen uit een perceel van acht soorten, die zullen dienen als een mengsel van zes soorten in het JenaTron-experiment. Elk van deze 48 bodemmonolieten (diepte: 0,8 m; diameter: 0,5 m) herbergde sinds 2010 een perceelspecifieke woongemeenschap, die dus een plantgemeenschapspecifieke bodemgeschiedenis vertegenwoordigt (+SH). De overige 48 monolieten werden opgegraven uit vier kale grondpercelen die sinds de start van het Jena-experiment in 2002 vrij van vegetatie werden gehouden, waardoor er geen enkele plantgemeenschapsspecifieke bodemgeschiedenis (-SH) ontbrak. Van elk van de vier kale percelen werden 12 monolieten opgegraven. De twee bodemgeschiedenisbehandelingen (+SH; -SH) werden factorieel gecombineerd met twee plantgeschiedenisbehandelingen door voorgekweekte planten te planten die de plantgemeenschapsspecifieke samenstelling van de TBE weerspiegelden bij een gelijke dichtheid, met individuele planten op een afstand van 6 cm uit elkaar.
De plantengeschiedenis (Figuur 1B) werd vastgesteld aan de hand van twee verschillende zaadbronnen voor elk van de geselecteerde plantensoorten uit de soortenpool van het Jena Experiment: De eerste bron bestond uit zaden die waren verzameld van planten die sinds 2010 een gemeenschapsspecifieke geschiedenis hadden doorgemaakt, wat overeenkomt met de exacte Trait-Based Experiment (TBE) -percelen waaruit de bodemmonolieten werden opgegraven (+PH). Deze zaden werden verzameld van mei tot september 2019, afhankelijk van de bloeifenologie van de soort, zodat er minimaal vijf individuen per soort en perceel werden bemonsterd. Na het verzamelen werden de zaden gereinigd en bewaard bij -20°C tot de start van het JenaTron-experiment. De tweede zaadbron bestond uit zaden die waren verkregen van een commerciële zaadleverancier die zaden van regionale herkomst produceerde. Deze zaden werden gebruikt om de TBE-percelen in 2010 aan te leggen, waardoor planten werden vertegenwoordigd zonder een gemeenschapsspecifieke selectiegeschiedenis binnen het Jena-experiment (-PH) en werden van 2010 tot de start van het JenaTron-experiment bij -20°C bewaard. Beide geschiedenissen van de zes meerjarige plantensoorten werden van februari tot mei 2022 voorgekweekt in vier kamers van de iDiv-onderzoekskas in Leipzig, Duitsland (51.330°N, 12.393°E, 120 m boven zeeniveau).
De factoriële combinatie van bodemgeschiedenis (SH) en plantgeschiedenis (PH) op elk niveau van plantensoortenrijkdom resulteerde in vier behandelingen binnen elk van de 24 Eco-eenheden: (1) met bodemgeschiedenis, met plantgeschiedenis (+SH/+PH), (2) met bodemgeschiedenis, zonder plantgeschiedenis (+SH/-PH), (3) zonder bodemgeschiedenis, met plantgeschiedenis (-SH/+PH), en (4) zonder bodemgeschiedenis, zonder planthistorie (-SH/-PH; Figuur 1C). Het primaire doel van het JenaTron-experiment is om te onderzoeken of de versterkende relatie tussen biodiversiteit en het functioneren van ecosystemen te wijten is aan bodemgeschiedenis, plantgeschiedenis of een combinatie van beide. Onze hypothese is dat plantengemeenschappen met een gedeelde plant- en bodemgemeenschapspecifieke geschiedenis de sterkste BEF-relatie zullen vertonen, terwijl een experimentele uitsluiting van bodemgeschiedenis, plantgeschiedenis of beide nadelige effecten kan hebben op de positieve relaties van plantendiversiteit en het functioneren van ecosystemen. Uiteindelijk, als de bodem of plantengeschiedenis de relatie tussen de rijkdom aan plantensoorten en het functioneren van het ecosysteem zou veranderen, zou dit een belangrijke overweging zijn voor het behoud en de monitoring van lokaal bewaarde en nieuw herstelde gemeenschappen.
Protocol
NOTITIE: Zorg ervoor dat de juiste persoonlijke beschermingsmiddelen (bijv. helmen, handschoenen, vesten, veiligheidsschoenen, enz.) bij alle protocolstappen aanwezig zijn.
1. Bodems: Voorbereiding, uitgraving, installatie
- Bodembronnen, perceelkeuze en voorbereiding (februari 2022)
- Selecteer twee grondbronnen uit het veld van het Jena Experiment:
- Selecteer 23 TBE-percelen die gedurende 12 jaar een perceelspecifieke gemeenschap hebben gekoesterd om een plantendiversiteitsgradiënt van 1, 2, 3 en 6 soorten te dekken. Wijs deze percelen aan als JenaTron Experiment-behandeling "met plantgemeenschapspecifieke bodemgeschiedenis" (+SH).
- Selecteer 4 kale grondpercelen met dezelfde bodemeigenschappen als de TBE-percelen (pH, zandgehalte, enz.), maar zonder begroeiing sinds 2002. Wijs deze percelen aan als JenaTron Experiment-behandelingen "zonder een plantgemeenschap-specifieke geschiedenis" (-SH).
- Verwijder voorzichtig de bovenste 5 cm grond van alle geselecteerde percelen met behulp van een minigraafmachine om de omstandigheden in de bodemgeschiedenisbehandelingen gelijk te trekken.
- Selecteer twee grondbronnen uit het veld van het Jena Experiment:
- Opgraving van de bodemmonoliet (maart 2022)
- Plaats de monolietafzuiginrichting op elk perceel, monteer een snijsysteem op een lege stalen cilinder en plaats deze in de afzuiginrichting (Afbeelding 2A).
- Schakel het apparaat in en het snijsysteem draait rond de buitenste cilinderwand. Het systeem snijdt een inkeping in de grond waarin de afzuiginrichting tegelijkertijd de stalen cilinder drukt. Gebruik tegelijkertijd een minigraafmachine om een put aan de zijkant van de stalen cilinder uit te graven (Figuur 2B).
- Zodra de stalen cilinder volledig in de grond is ingebed, klimt u in de zijput en klikt u de monoliet aan de onderkant van de stalen cilinder vast door een tijdelijke bodemplaat te monteren en gebruikt u de monolietafzuiging om deze uit de graafput te tillen (Figuur 2C).
- Demonteer het snijsysteem van de stalen cilinder, monteer een tijdelijke bovenplaat op de stalen cilinder, til de monoliet op met behulp van een ophanging die aan de minigraver is bevestigd en draai hem ondersteboven.
- Installatie van het waterafzuigsysteem (maart 2022)
- Demonteer de bodemplaat, verwijder ongeveer 5 cm grondlaag met een troffel en bewaar deze voor later gebruik.
- Veranker een ring van waterzuigsondes (8 kaarsen verbonden met polyvinylchloride [PVC] slangen) in kwartspoeder, bevochtig het met gedemineraliseerd water (VE) en vul de stalen cilinderbodem opnieuw met de eerder verwijderde grond.
- Sluit het PVC-eindstuk van de wateraanzuigsondering aan op de bodemplaat en schroef deze vervolgens vast.
- Draai de stalen cilinder met de ophanging van de minigraafmachine weer rechtop, label deze afzonderlijk, dicht de openingen in de cilinderwanden af met plakband en wikkel de cilinder in plasticfolie ter bescherming tijdens transport.
- Vervoer de bodemmonolieten met een vrachtwagen naar de iDiv Ecotron, gelegen bij het experimentele veldstation van het Helmholtz Center for Environmental Research (UFZ) in Bad Lauchstädt, Duitsland (51.392°N, 11.876°E, 116 m boven zeeniveau).
- Installatie van bodemsensoren (april 2022)
- Snijd na het uitpakken met een op maat gemaakt stalen mes precies passende gaten voor de sensoren horizontaal in de grondmonoliet met behulp van de openingen in de cilinderwand op drie verschillende dieptes (9,5 cm, 21,5 cm en 43,5 cm).
- Plaats de grondsensoren in de gaten, gebruik een houten blok om ze in de juiste positie te brengen en schroef de openingen vast met op maat gemaakte afdichtingspluggen.
- Installatie van de bodemmonolieten in de EcoUnits (april 2022)
- Til het technische en bovenste deel van elke EcoUnit voorzichtig uit het onderste deel (Figuur 2G). Transporteer het onderste deel naar de stalen cilinders met de intacte grondmonolieten die zijn uitgerust met bodemsensoren.
- Bevestig elke stalen cilinder aan een ophanging, til deze op met een vorkheftruck en monteer een connector op de zuigkaarsring die is aangesloten op de bodemplaat.
- Til vier grondmonolieten in de onderste container van elk van de 24 EcoUnits (Figuur 2F), waarvan er twee dezelfde plantgemeenschapspecifieke bodemgeschiedenis (+SH) hebben en twee zonder plantgemeenschapsspecifieke bodemgeschiedenis (-SH). Leid de kabels van de grondsensoren door de openingen van de grondcontainer.
- Bevestig de stalen cilinders met schroeven aan het onderste deel en sluit vervolgens de wateraanzuigkaarsringen van elke cilinder aan op het wateraanzuigsysteem van de EcoUnit via de eerder geïnstalleerde connector.
- Gebruik de vorkheftruck om de container uitgerust met de grondmonolieten naar een hal (24 m x 24 m) te vervoeren.
- Plaats de technische en bovenste delen (met binnenwanden tussen subeenheden [Figuur 2K]) van elke EcoUnit voorzichtig terug op het onderste deel.
- Plaats alle 24 EcoUnits in drie rijen, elk bestaande uit twee groepen van vier EcoUnits, die in totaal zes blokken vormen. Zorg voor een hart-op-hart afstand van 6 m tussen blokken binnen elke rij en 8,2 m tussen de rijen. Wijs in elk blok willekeurig de vier plantendiversiteitsniveaus (1, 2, 3 en 6) toe aan de vier Eco-eenheden, waarbij waar mogelijk wordt gezorgd voor een gelijkmatige verdeling van de soorten over alle eco-eenheden.
2. Planten: Voorbereiding en teeltinstallatie
- Selectie van soorten en zaadmateriaal
- Selecteer de volgende zes plantensoorten uit de soortenpool van het Jena Experiment: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) en Ranunculus acris L. (Ranunculaceae).
- Selecteer voor elke soort zaadmateriaal dat afkomstig is van twee verschillende zaadbronnen:
- Gebruik zaden van planten die sinds 2010 op de TBE-percelen van het Jena-experiment groeiden (met plantgeschiedenis, +PH).
- Gebruik het originele zaadmateriaal dat is gebruikt om de TBE in 2010 te starten, afkomstig van een regionale zaadproducent (zonder plantgeschiedenis, -PH).
- Voorbereiding van de ondergrond (februari 2022)
- Verzamel perceelspecifieke grond van elk van de geselecteerde percelen op de veldlocatie van het Jena Experiment. Vul de grond in plastic dozen van 20 L en bewaar deze bij 4 °C tot ze worden gebruikt voor de plantenteelt.
- Zeef elke perceelspecifieke grond door een maaswijdte van 4 mm. Meng de grond van de vier kale grondpercelen voor het zeven.
- Om ongewenste biota te verwijderen, brengt u kwartszand over in roestvrijstalen containers en verwarmt u deze gedurende 4 uur in een droogoven bij 200 °C.
- Meng perceelspecifieke grond en kwartszand per volume in een verhouding van 3:1 en vul het grond-zandmengsel met een plastic schop in multipotplaten (totaal n = 152).
- Label elke multipotplaat afzonderlijk en plaats ze in een kas met een dag-nachtcyclus van 16 uur/18 °C en 8 uur/12 °C, met behoud van een matige luchtvochtigheid van 60%-70% relatieve vochtigheid (RV).
- Geef de platen op verzoek water en houd ze twee weken kaal om de zaadbanken in de grond te laten ontkiemen. Onkruid alle platen twee keer om ongewenste zaailingen te verwijderen.
- Zaaicampagne (maart-april 2022)
- Bepaal de zaaivolgorde op basis van soortspecifieke kiemtijd als volgt:
- Zaai R. acris 2 weken voor andere kruiden
- Zaai P. lanceolata en L. vulgare 1 week eerder dan de grassen A. odoratum, D. glomerata en H. lanatus.
- Zaai alle soorten, behalve R. acris, rechtstreeks in het perceelspecifieke grond-zandsubstraat (3:1) in multipotplaten met twee of drie zaden per pot. Na succesvolle ontkieming dun je alle soorten uit tot enkele zaailingen met behulp van een pincet van verenstaal.
- Behandel R. acris-zaden in petrischaaltjes op filtreerpapier bevochtigd met een gibberellinezuuroplossing (1000 mg. L−1) om de kiemrust te doorbreken (Figuur 2D). Incubeer de zaden gedurende 24 uur.
- Breng de R. acris-zaden over op filtreerpapier dat is bevochtigd met gedemineraliseerd water (VE) tot het ontkiemt. Zodra de zaden het kiemwortelstadium hebben bereikt, prikt u de zaailingen met een pincet van verenstaal in het perceelspecifieke grondzandsubstraat (3:1) in de voorbereide multipotplaten.
- Geef alle plantindividuen op verzoek water met gedeïoniseerd water en houd ze in de kas tot transport naar de iDiv Ecotron (Figuur 2E-H)
- Bepaal de zaaivolgorde op basis van soortspecifieke kiemtijd als volgt:
- Plantactie (mei 2022)
- Ontwerp individuele plantschema's voor alle bodemmonolieten met de volgende kenmerken:
- Zorg voor een evenwichtig aantal individuen per soort binnen de plantengemeenschappen.
- Houd een afstand van 6 cm aan tussen elke plant afzonderlijk en zijn buurman.
- Verdeel het plantpatroon willekeurig over EcoUnits, maar houd het constant binnen subeenheden.
- Gebruik een op maat gemaakt plantsjabloon om de exacte positie van elke plant afzonderlijk op de grondmonolieten te markeren. Gebruik verschillende gekleurde plastic tandenstokers voor het markeren en wijs aan elke soort een specifieke kleur toe. Verwijder na het markeren het stencil (Figuur 2I).
- Plant de voorgekweekte planten binnen een week op alle grondmonolieten met behulp van bollenplanters met een diameter van 4 cm (5280 totale plantindividuen; Figuur 2J).
- Ontwerp individuele plantschema's voor alle bodemmonolieten met de volgende kenmerken:
3. Verloop van het experiment
- Oprichtingsfase van drie weken (mei 2022):
- Vervang alle individuen die de plantcampagne niet hebben overleefd binnen 2 weken na de eerste aanplant (n = 124 [2,35%]).
- Doe de lichten aan en stel het verlichtingsregime in op een dag-nachtcyclus van 16/8 uur. Om de regionale daglengte in het late voorjaar en de zomer aan het begin van het experiment na te bootsen, simuleert u de schemering door de lichten gedurende een uur te dimmen van 100% naar 75% intensiteit en vervolgens naar 0% gedurende het volgende uur (100% intensiteit: ~370 μmol/(m²·s)). Simuleer de dageraad door dit dimpatroon om te keren.
- Egaliseer het bovenste bodemvocht tot 20% (± 3%) per volume met behulp van een bodemvochtmeetkit.
- Stel de initiële irrigatie in op 450 ml elke 12 uur voor elke subeenheid.
- Sluit lucht- en bodemsensoren aan om de temperatuur en vochtigheid tijdens het experiment te bewaken.
- Experimentele fase (juni-oktober 2022)
- Afhankelijk van de natuurlijke seizoensgebondenheid kunt u de daglengte van augustus tot oktober elke 2 weken met een heel uur verkorten om rekening te houden met de regionale daglengtes van de nazomer tot de herfst.
- Verhoog de initiële irrigatie tot 650 ml elke 12 uur in juli en 750 ml elke 12 uur in augustus, aangepast aan de waterbehoefte van de plant.
- Verwijder voortdurend ongewenste zaailingen in het zaadlobstadium met behulp van een pincet om de plantdichtheid te behouden en tegelijkertijd de verstoring van de bodemstructuur tot een minimum te beperken.
- In overeenstemming met het standaardbeheer voor extensief beheerde weiden, voert u twee oogsten van bovengrondse biomassa uit en knipt u de planten 3 cm boven het grondoppervlak met een schaar.
Resultaten
Om een eerste inzicht te krijgen in de effectiviteit van deze aanpak bij het testen van de onafhankelijke en interactieve effecten van plant- en bodemgeschiedenis op de relaties tussen biodiversiteit en ecosysteem, hebben we eerst foto's geëvalueerd van twee representatieve Eco-eenheden na de 3 weken durende oprichtingsfase van het JenaTron-experiment, waar behandelingseffecten snel zichtbaar werden (Figuur 3). Naast behandelingsspecifieke verschillen in hoogte en kleur van de plantgemeenschap (Figuur 3A), herkenden we ook behandelingsspecifieke verschillen in de bloeitijd van R. acris. In het bijzonder leken planten gekweekt uit zaden zonder plantgeschiedenis een eerder begin van de bloem te hebben dan planten gekweekt uit zaden met de gemeenschapsspecifieke plantgeschiedenis van het Jena-experiment (Figuur 3B).
Om te evalueren of de nieuw opgerichte gemeenschappen in de iDiv Ecotron een nauwkeurige afspiegeling zijn van de oorspronkelijke veldgemeenschappen, werd een vergelijkende analyse van de soortspecifieke vegetatieve planthoogte uitgevoerd als indicator voor de uiteindelijke plantontwikkeling tussen het JenaTron-experiment en de TBE-percelen. In het JenaTron-experiment werd de planthoogte bepaald als de gemiddelde waarde van het hoogste vegetatieve blad van drie individuen per plantsoort in elk van de 24 gemeenschappen en behandelingscombinaties vlak voor het eerste oogstseizoen eind juli 2022. In de TBE werd de vegetatieve planthoogte bepaald als de gemiddelde waarde van het hoogste vegetatieve blad van drie individuen per plantsoort en perceel in juli 2012. Metingen van de planthoogte van de iDiv Ecotron vertonen een sterke correlatie met die van de veldpercelen van het Jena-experiment (aanvullende figuur 1).
Om verder een casestudy te bieden voor data-analyse, werd de hoogte van de vegetatieve plant in de iDiv Ecotron in meer detail onderzocht. We richtten ons op analyses op soort- en gemeenschapsniveau en testten of plantgeschiedenis, bodemgeschiedenis en plantdiversiteit de vegetatieve plantengroei beïnvloeden. Hiervoor hebben we lineaire mixed-effects modellen (LMM) gebruikt en de resultaten samengevat via ANOVA (type-I som van kwadraten; voor gedetailleerde ANOVA-resultaten, zie aanvullende tabel 1). Op perceelniveau waren de responsvariabelen de gemiddelde vegetatieve hoogte van de plant en de variatiecoëfficiënt van de planthoogte (CV = sd/gemiddelde 100). Vaste effecten waren onder meer plantdiversiteit (numeriek), plant- en bodemgeschiedenisbehandelingen en hun interacties. Willekeurige effecten waren inclusief EcoUnit, genest in het Ecotron-hallenblok. Op soortniveau hebben we ook soorten en hun interactie met plantendiversiteit en geschiedenisbehandelingen in vaste termen opgenomen. Gegevenstransformaties (log voor planthoogte en vierkantswortel voor hoogte (CV) zorgden ervoor dat aan de modelaannames werd voldaan. Analyses werden uitgevoerd met behulp van R (versie 4.3.1)42 en het nlme-pakket voor LMM's43. De resultaten toonden significante verschillen in soortverschillen in planthoogte, met grassen die hoger waren dan forbs (Figuur 4, Aanvullende Figuur 2). Voor alle soorten had de bodemgeschiedenis een positief effect op de planthoogte (F(1,66) = 11,11, P = 0,001), terwijl de plantgeschiedenis en diversiteit geen significante invloed hadden (F(1,66) = 0,22, P = 0,64 en F(1,17) = 1,52, P = 0,23, respectievelijk; Figuur 4). Op gemeenschapsniveau had plantendiversiteit geen effect op de hoogte (F(1,17) = 0,01, P = 0,91; Figuur 5A) maar significant verhoogde de planthoogte CV binnen gemeenschappen (F(1,17) = 14,29, P = 0,002; Figuur 5B). Er werden geen significante effecten van plant- of bodemgeschiedenis gevonden op de planthoogte CV (F(1,68) = 0,55; P = 0,46; F(1,68) = 0,09, P = 0,76; Figuur 5). We hebben de gegevens en het R-script geüpload naar de Jena Experiment-database (https://doi.org/10.25829/QN9R-J839).

Figuur 1: Opzet van het JenaTron-experiment. (A) De bodemgeschiedenis (SH) werd vastgesteld door 96 intacte grondmonolieten uit het Jena-experiment (JE) op te graven, waarvan de helft (n = 48) werd verkregen uit 23 percelen die gedurende 12 jaar een perceelspecifieke gemeenschap herbergden (+SH), terwijl de andere helft (n = 48) werd verkregen uit vier kale grondpercelen die sinds het begin van het Jena-experiment in 2002 vegetatievrij werden gehouden (-SH). (B) De plantengeschiedenis (PH) werd vastgesteld aan de hand van twee zaadbronnen voor elk van de zes plantensoorten: zaden verzameld van planten die sinds 2010 op dezelfde percelen zijn gekweekt, waar de monolieten werden opgegraven in het Jena-experiment (+ PH), en de oorspronkelijke zaden zoals gebruikt om deze gemeenschappen in het veld te zaaien in 2010 (-PH). (C) Plantgeschiedenis en bodemgeschiedenis werden onafhankelijk gekruist voor elke samenstelling op verschillende plantdiversiteitsniveaus (1, 2, 3 en 6), wat resulteerde in vier behandelingen in elke Eco-eenheid van de iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH en (4) -SH/-PH. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: De iDiv Ecotron op het onderzoeksstation van het Helmholtz-Centre for Environmental Research (UFZ) in Bad Lauchstädt, Duitsland. (A) Grondmonolietuitgravingsapparatuur in het veld, (B) Grondmonolietuitgraving in het veld, (C) Graafkuil in het veld, (D) Bereiding van Ranunculus acris zaadmateriaal in petrischaaltjes op filterpapier bevochtigd met gibberellinezuuroplossing in de kas, (E) Voorteelt van planten met perceelspecifiek grondsubstraat in multipotplaten in de kas, (F) EcoUnits in de iDiv Ecotron-hal, (G) Schematische weergave van één experimentele eenheid ("EcoUnit") met technische apparatuur (aangepast van Eisenhauer et al. (2019)23 en Schmidt et al. (2021)38), (H) Platen met alle individuen die in het JenaTron-experiment moeten worden geplant) na transport naar de iDiv Ecotron, (I) Soortspecifieke markering van de plantposities voor alle plantindividuen op een grondmonoliet gemaakt met een plantsjabloon, (J) Het planten van plantindividuen op een bodemmonoliet met behulp van bollenplanters, (K) Vier lysimeters in een Eco-Unit met binnenwanden. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Twee vertegenwoordigers van de 24 Eco-eenheden, die elk één gemeenschap herbergen in alle behandelingscombinaties van plant- en bodemgeschiedenis. (A) Eco-eenheid met een mengsel van 3 soorten (A. odoratum, H. lanatus en P. lanceolata) met behandelingsspecifieke verschillen in hoogte en kleur van de gemeenschapsvegetatie. (B) Eco-eenheid met een monocultuur van R. acris, die de verschillen in bloeitijd aangeeft die afhankelijk zijn van de plantgeschiedenis. Klik hier om een grotere versie van deze figuur te bekijken.
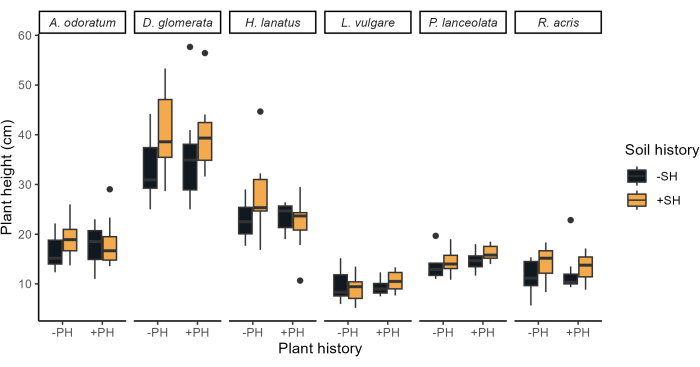
Figuur 4: Effecten van plant- en bodemgeschiedenis op de vegetatieve planthoogte (cm) van de zes graslandplantensoorten vóór de eerste oogst in juli 2022. Soorten zijn alfabetisch gerangschikt binnen functionele groepen (grassen gevolgd door forbs). Plantgeschiedenisbehandelingen (+PH/-PH) staan op de x-as en bodemgeschiedenis (+SH/-SH) heeft een kleurcode (geel/zwart) in de boxplots. Klik hier om een grotere versie van deze figuur te bekijken.
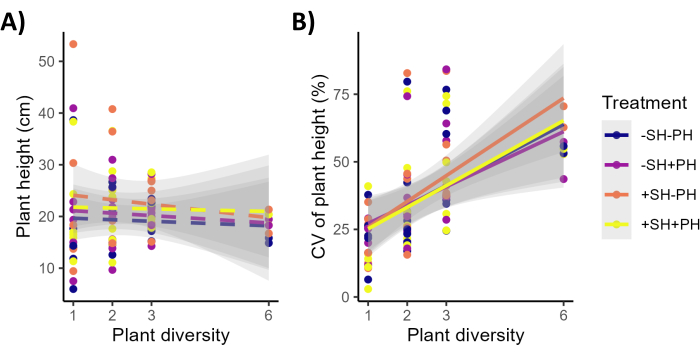
Figuur 5: Effecten van soortenrijkdom op het gemeenschapsgemiddelde en variatie in vegetatieve planthoogte. (A) Gemeenschapsgemiddelde. (B) Variatie in vegetatieve planthoogte. (+PH/-PH) voor plantgeschiedenis, (+SH/-SH) voor bodemgeschiedenis. Planthoogtevariatie (CV) wordt per subeenheid weergegeven. Stippellijnen vertegenwoordigen niet-significante, ononderbroken lijnen vertegenwoordigen significante effecten op de plantendiversiteit. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1 Plantengemeenschappen in het JenaTron Experiment. Monoculturen van alle geselecteerde plantensoorten (n = 6); mengsels van 2 soorten (n = 9); mengsels van 3 soorten (n = 7), alle met verschillende samenstellingen; en twee identieke replicaten van het mengsel van 6 soorten (n = 2). Klik hier om deze tabel te downloaden.
Aanvullende figuur 1: Gemiddelde planthoogte van de soort. Gemiddelde planthoogte van de soorten in de (A) JenaTron Experiment-percelen (juli 2022) en in het veld (B) TBE-percelen (juli 2012). Alleen gegevens van de behandeling met planthistorie en bodemhistorie zijn opgenomen in paneel A. Er is een significante correlatie tussen de planthoogte in het JenaTron-experiment en de veldpercelen (Pearson-correlatie r(49) = 0,45, p = 0,0008). Klik hier om dit bestand te downloaden.
Aanvullende figuur 2: Effecten van plant- en bodemgeschiedenisbehandelingen op de vegetatieve planthoogte (cm) van de zes plantensoorten op verschillende niveaus van plantendiversiteit (SR). Legendasymbolen +PH en -PH staan voor behandelingen met en zonder plantgeschiedenis, terwijl +SH en -SH respectievelijk behandelingen met en zonder bodemgeschiedenis aanduiden. Klik hier om dit bestand te downloaden.
Aanvullende tabel 1: ANOVA is het resultaat van lineaire modellen met gemengde effecten die de effecten van plantendiversiteit (soortenrijkdom, SR), bodemgeschiedenis (SH) en plantgeschiedenis (PH) op planthoogte op zowel soortniveau als perceelniveau beoordelen. F-waarden en p-waarden worden voor elke term gerapporteerd. Opmerking: numDF en denDF vertegenwoordigen de teller en de noemersgraden van vrijheid voor elke modelterm. P-waarden < 0,05 suggereren een statistisch significant effect op de planthoogte. Klik hier om dit bestand te downloaden.
Aanvullende tabel 2: Boven- en ondergrondse metingen, responsvariabelen en methoden. Een spectrum van boven- en ondergrondse metingen, responsvariabelen en methoden uitgevoerd in het JenaTron-experiment om de onafhankelijke en interactieve effecten van plantengeschiedenis en bodemgeschiedenis op BEF-relaties voor ecosystemen als geheel te bestuderen. Klik hier om dit bestand te downloaden.
Discussie
Met het JenaTron-experiment bieden we een complementaire experimentele benadering van de veldsitevan het Jena-experiment 32,33 om ons mechanistisch begrip van BEF-relaties te vergroten. Het veldexperiment stelt ons in staat om de langetermijneffecten van bodemgeschiedenis en plantengeschiedenis op het functioneren van ecosystemen onder realistische omgevingsomstandigheden te bestuderen, met grote, ongestoorde percelen die herhaalde metingen gedurende vele jaren mogelijk maken. De willekeurig geselecteerde combinaties van plantensoorten uit een grote soortenpool langs een gevestigde plantendiversiteitsgradiënt van monoculturen tot 60 soorten helpen om diversiteitseffecten te identificeren door soortspecifieke effecten zoveel mogelijk uit te sluiten32,33. Het veldexperiment, waarbij hier expliciet wordt verwezen naar het 'ΔBEF-experiment' als onderdeel van het Jena-experiment (voor meer details, zie Vogel et al. (2019)29), is echter beperkt tot het onderzoeken van bodemgeschiedenis en plantgeschiedenis die volledig onafhankelijk zijn van elkaar en van mogelijke invloeden van verschillende externe factoren, zoals weersschommelingen, natuurlijke verstoringen en interacties met andere organismen29. Op dit punt komt de complementaire benadering van het gebruik van Ecotron-experimenten in het vizier van BEF-onderzoek. Ecotron-experimenten vormen een belangrijke schakel tussen kleinschalige, kortlopende microkosmosexperimenten, die slechts enkele of zelfs slechts één soort bestuderen en zo de hoge complexiteit van veldexperimenten of zelfs de echte wereld verminderen34,38. Het belangrijkste doel van Ecotron-experimenten is dan ook niet om de volledige complexiteit van de natuur na te bootsen, maar om vereenvoudigde maar biologisch betekenisvolle ecosystemen te creëren. Dit maakt het mogelijk om veel, maar natuurlijk niet alle, biologische processen en interacties die in de echte wereld plaatsvinden beter te begrijpen34,37. Bovendien maken de gesloten systemen van een Ecotron het mogelijk om fluxen en processen te bestuderen, die vaak niet gemakkelijk in het veld kunnen worden bestudeerd35.
In eerdere studies zijn verschillende aanpassingen van de experimentele techniek gebruikt, wat het aanzienlijke aanpassingsvermogen van de iDiv Ecotron-faciliteit onderstreept. Het "Insect Armageddon"-experiment44, uitgevoerd in 2018, omvatte bijvoorbeeld een herconfiguratie van de EcoUnits door de bovengrondse binnenmuren en ondergrondse dissectie met stalen cilinders te verwijderen. In plaats daarvan werden de ondergrondse containers volledig gevuld met een grond-zandmengsel, waardoor graslandgemeenschappen met 12 Europese plantensoorten konden ontstaan op een bodemoppervlak van 1,5m2 per EcoUnit. Dit experimentele ontwerp maakte de introductie mogelijk van twee verschillende abundantieniveaus van bovengrondse ongewervelde dieren, waardoor onderzoekers de effecten van de achteruitgang van de biomassa van ongewervelde dieren op ecosysteemfuncties en -diensten binnen Centraal-Europese graslandecosystemen konden onderzoeken. Een ander illustratief voorbeeld is het "EcoLux"-experiment, uitgevoerd in 2020, dat een wijziging in het lichtregime aantoonde om de effecten van lichtvervuiling 's nachts op de diversiteit en prestaties van plantente onderzoeken 45 , evenals de invloed ervan op bodemgemeenschappen en -functies46. Vooruitkijkend blijft het potentieel voor verdere aanpassingen aanzienlijk. Het komende "ResCUE"-experiment, gepland voor 2026, heeft tot doel de relaties tussen plantendiversiteit en ecosysteemstabiliteit onder klimatologische extremente onderzoeken 26. Dit experiment zal een gestandaardiseerde hete droogte implementeren, een milieutoestand die moeilijk te repliceren is in natuurlijke omgevingen, door verminderde neerslag te simuleren naast verhoogde temperaturen over een gradiënt van graslandplantendiversiteit die is vastgesteld in de iDiv Ecotron. De studie zal zich richten op het beoordelen van de weerstand en het herstel van meerdere ecosysteemfuncties als reactie op de gecontroleerde extreme klimatologische gebeurtenis26.
Het gebruik van Ecotron-faciliteiten om veldexperimenten en kleinschalige microkosmosexperimenten te overbruggen, brengt echter ook beperkingen met zich mee, zoals meestal een nog relatief kleine ruimtelijke schaal, een laag aantal replicaten, een lagere biologische complexiteit en het gebrek aan representatie van natuurlijke klimatologische variabiliteit37. Bovendien kan de iDiv Ecotron-faciliteit niet allerlei klimatologische scenario's simuleren, zoals winters, waardoor het vermogen om individuele planten te bestuderen in een realistische jaarlijkse cyclus over meerdere generaties wordt beperkt. Daarom is het, zoals eerder vermeld, erg belangrijk om Ecotron-studies te beschouwen als complementaire onderzoeksbenaderingen die uiteindelijk moeten worden beschouwd in combinatie met resultaten van andere experimentele benaderingen37. Niettemin biedt de iDiv Ecotron-faciliteit ons de unieke mogelijkheid om intacte bodemmonolieten onder gecontroleerde omgevingsomstandigheden te bestuderen, om planten met verschillende plantgemeenschapsspecifieke geschiedenissen orthogonaal te kruisen met bodems met verschillende plantgemeenschapsspecifieke geschiedenissen en om hun effecten op het functioneren van ecosystemen te bestuderen langs een plantendiversiteitsgradiënt, die moeilijk te bereiken is onder veldomstandigheden23, 35. okt. Bovendien maakt de techniek het mogelijk om planten als geheel te bestuderen, zowel boven- als ondergronds, onder gecontroleerde omgevingsomstandigheden, wat in het veld niet gemakkelijk te realiseren is. Ten slotte werden in het JenaTron-experiment de geplante (in plaats van gezaaide) plantengemeenschappen opgericht om gelijke totale plantdichtheden te garanderen, waarbij elke soort in gelijke verhoudingen vertegenwoordigd was. Daarentegen vestigen soorten zich in gezaaide gemeenschappen vaak in verschillende snelheden, en sommige doelsoorten kunnen zich volledig niet vestigen of kunnen in zeer lage aantallen blijven.
Om de reproduceerbaarheid van het gepresenteerde protocol te garanderen, moeten tijdens de uitvoering verschillende kritieke stappen zorgvuldig worden overwogen: (1) Uitgraving van grondmonolieten: Een belangrijk voordeel van de iDiv Ecotron-faciliteit is het vermogen om een aanzienlijk aantal replicaten van intacte bodemmonolieten vast te stellen onder gecontroleerde omgevingsomstandigheden. Om de integriteit van de bodemmonolieten te waarborgen, is het essentieel om optimale veldomstandigheden te handhaven voor de extractie van bodemmonolieten. In het bijzonder kan overmatig bodemvocht leiden tot verdichting van de bodemkolom, terwijl te droge of bevroren bodems kunnen leiden tot de vorming van scheuren. In gevallen waarin de monoliet door deze factoren wordt aangetast, moet deze worden weggegooid, waardoor een herhaling van het opgravingsproces nodig is. (2) Soortenselectie: Het beschreven protocol maakt gebruik van zes graslandplantensoorten van de TBE, die werden geselecteerd op basis van overlap met het hoofdexperiment, een evenwichtige vertegenwoordiging van grassen en forbs, en de mogelijkheid om verschillende strategieën voor het gebruik van hulpbronnen te bestuderen (bijv. plantenfenologie)41. Voor een biodiversiteitsexperiment zijn zes soorten een laag aantal soorten, en de selectie van andere soorten met andere eigenschappencombinaties kan leiden tot verschillende experimentele resultaten en moet zorgvuldig worden overwogen. (3) Plantdichtheid en gelijke verhoudingen van alle soorten: Een opmerkelijk voordeel van de opzet van het JenaTron-experiment is dat plantengemeenschappen worden gevestigd met gelijke totale plantdichtheden en dat elke soort wordt vertegenwoordigd met hetzelfde aantal individuen. Het waarborgen van een consistente plantdichtheid en gelijke plantverhoudingen is cruciaal voor experimentele reproduceerbaarheid, omdat het verstorende effecten voorkomt die gepaard gaan met een differentiële vestiging van individuele soorten. Daarom is een nauwkeurige regeling van de plantdichtheid essentieel om het experimentele ontwerp te behouden en betrouwbare resultaten te garanderen.
Na het starten van het JenaTron-experiment volgens het protocol met speciale nadruk op het overwegen van de genoemde meest kritieke stappen, kwamen er snel waarneembare behandelingseffecten op de hoogte, kleur en bloeitijd van de plantengemeenschap naar voren. Latere vergelijkende analyses van soortspecifieke vegetatieve planthoogtes tussen JenaTron en TBE bevestigden duidelijk dat de gemeenschappen die in de iDiv Ecotron zijn gevestigd, inderdaad lijken op de oorspronkelijke gemeenschappen in het veld. Om verder een casestudy voor data-analyse te bieden, hebben we de vegetatieve planthoogte in het JenaTron-experiment in meer detail geanalyseerd. Analyses van soortspecifieke vegetatieve planthoogtes in de JenaTron bevestigden de succesvolle vestiging van alle doelsoorten en brachten significante verschillen tussen soorten en functionele groepen aan het licht. Dit resultaat is te verwachten, aangezien bekend is dat grassen groter worden dan andere functionele groepen in het Jena Experiment47. Een significant positief effect van de bodemgeschiedenis werd gedetecteerd bij alle soorten, wat aangeeft dat eerdere bodemgesteldheid de plantengroei in de Ecotron vormgeeft, mogelijk gedreven door positieve feedbackeffecten van bodems die voorheen een plantengemeenschap herbergden (onafhankelijk van het diversiteitsniveau) en negatieve feedback van bodems die vegetatievrij werden gehouden. De biotische en abiotische eigenschappen van bodemgeschiedenissen lijken te verschillen, waardoor planten in bodems met een plantgemeenschapspecifieke geschiedenis een voordeel hebben ten opzichte van planten in bodems zonder deze respectieve geschiedenis, aangezien planthoogte een belangrijke rol speelt in hun vermogen om te concurreren om licht en dus een essentiële eigenschap is voor koolstofwinst48. Daarentegen werd geen significant effect gevonden van plantgemeenschapspecifieke plantgeschiedenis op de gemiddelde vegetatieve hoogte, wat impliceert dat bodemeigenschappen een sterkere invloed kunnen hebben dan de zaadbronnen onder de milieuomstandigheden van de Ecotron. Deze hypothese moet echter op een holistische manier worden getest door de veelheid aan ecosysteemfuncties te onderzoeken die in het JenaTron-experiment zijn gemeten.
Noch soort- noch gemeenschapsspecifieke analyses leverden bewijs dat soortenrijkdom de gemiddelde vegetatieve planthoogte beïnvloedt, in tegenstelling tot eerdere bevindingen van het veldexperiment, waar de planthoogte toenam met hogere soorten49, waarschijnlijk als gevolg van sterkere lichtconcurrentie47,50. Een grotere complementariteit tussen soorten in meer diverse gemeenschappen kan leiden tot hogere plantdichtheden51, waardoor de groei van de planthoogte mogelijk ook wordt verbeterd52. Het gebrek aan effecten van plantendiversiteit op de planthoogte in het JenaTron-experiment zou dus te wijten kunnen zijn aan de afwezigheid van biodiversiteitsafhankelijke variatie in plantdichtheid, wat wijst op het potentiële belang van dit mechanisme voor diversiteitsafhankelijke individuele plantprestaties in de echte wereld52. Desalniettemin had soortenrijkdom een significant effect op de hoogte van de plant CV, wat suggereert dat plantendiversiteit de structurele complexiteit van de vegetatie verhoogt, in overeenstemming met studies die diversiteit koppelen aan complexere bovengrondse luifels 49,50,52,53,54.
Alles bij elkaar bevestigen de resultaten de succesvolle vaststelling van de doelbehandelingen van het JenaTron-experiment, die de eerste inzichten verschaffen in de effectiviteit van onze aanpak door de snelle manifestatie van significante behandelingseffecten (Figuur 3, Figuur 4 en Figuur 5). Bovendien geeft een vergelijkende analyse van de soortspecifieke vegetatieve planthoogte aan dat de nieuw opgerichte gemeenschappen in de iDiv Ecotron inderdaad lijken op de oorspronkelijke veldwaarnemingen. De gedetailleerde analyse van de vegetatieve planthoogte dient als casestudy voor data-analyse en visualisatie van enkelvoudige responsvariabelen. Deze casestudy benadrukt echter de beperkingen van het focussen op een enkele responsvariabele bij het holistisch aanpakken van de overkoepelende hypothese, of de versterkende relatie tussen biodiversiteit en het functioneren van ecosystemen in de loop van de tijd te wijten is aan bodemgeschiedenis, plantgeschiedenis of een combinatie van beide. Dit onderstreept het belang van onze zeer collaboratieve aanpak bij het onderzoeken van de onafhankelijke en interactieve effecten van plantgeschiedenis en bodemgeschiedenis op BEF-relaties23. Elf subprojecten van de Jena Experimental Research Unit (FOR 5000) werkten nauw samen in het JenaTron-experiment, waarbij een breed scala aan responsvariabelen werd gemeten in verschillende onderzoeksgebieden, zoals microbiologie, chemische ecologie, fenologie, proximale detectie, genetica, epigenetica, bodemecologie en voedselwebmodellering. Deze integratieve inspanning heeft tot doel (1) planthistorische effecten te scheiden van bodemhistorische effecten op meerdere trofische niveaus en ecosysteemfuncties, (2) plantsoortspecifieke en interactiespecifieke effecten op alle niveaus van plantensoortenrijkdom te onderzoeken, en (3) de onderliggende mechanismen van BEF-relaties te verkennen23 (Aanvullende Tabel 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Uitzonderlijke dank gaat uit naar L. Boockmann, T. Meier, N. Naderi en L.-M. Walter voor hun ondersteuning als onderzoeksassistenten gedurende de gehele duur van het JenaTron-experiment. Veel dank aan alle medewerkers van de Umwelt-Geräte-Technik GmbH (UGT) voor hun professionele en warme samenwerking tijdens de uitgraving van de grondmonoliet in het Jena-experiment. Graag willen wij ook C. Lauterwasser, H.-C. bedanken. Schulz en R. Widuwils voor het ondersteunen van UGT bij het uitgraven van grondmonolieten. Veel dank gaat uit naar de technische medewerkers van het Jena Experiment S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze en H. Scheffler voor hun steun in het veld en hun ijverige hulp tijdens de plantcampagne bij de iDiv Ecotron. Wij zijn I. Merbach en de technische medewerkers van het onderzoeksstation van het Helmholtz Centre for Environmental Research (UFZ) in Bad Lauchstädt, in het bijzonder O. Bednorz en K. Kirsch, dankbaar voor hun onmisbare steun. We willen A.Q. Barth en R. Altmann bedanken voor hun uitstekende samenwerking in de iDiv-kas. Veel dank aan S. Haenzel, A. Lochner en A. Zeuner voor hun onmisbare hulp bij administratie, organisatie en laboratoriumwerk. We danken de Mercator Fellows J. Cavender-Bares, F. Isbell, L. Mommer en K. Mueller, evenals de naaste medewerkers B. Schmid en de hoofdonderzoekers U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth en J. Wolf voor hun belangrijke bijdrage aan het concept, het ontwerp en de realisatie van het JenaTron-experiment. Tot slot danken we de Duitse Onderzoeksstichting (DFG) voor financiële steun (FOR 5000) en het Duitse Centrum voor Integratief Biodiversiteitsonderzoek (iDiv, gefinancierd door de Duitse Onderzoeksstichting [DFG-FZT 118, 202548816]), de Universiteit van Leipzig, de Friedrich Schiller Universiteit Jena en het Max Planck Instituut voor Biogeochemie Jena voor financiële en logistieke steun.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bloemenbolletjeplanter (4 cm diameter) | Kent & Stowe | bouwmarkt | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883&gad_ source=1&gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| Connector zuignaald | Umwelt Geräte Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Kweekbakje (zonder afvoer) | Bonsai-shopping | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Ontmineraliseerd water (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Duct tape | T-Rex | bouwmarkt | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930&gad_source=1&gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a. | https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html |
| Kunststof kisten (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1&gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Filterpapier (150 mm diameter) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Vorklift | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Gibberellinezuur (90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Meetkannen (3000 mL) | Hünersdorff | bouwmarkt | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| Meetkannen (5000 mL) | Hünersdorff | bouwmarkt | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| Metaal zeef (4 mm mazengrootte) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Mini-graafmachine | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler-/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Mortelvaten (90 L) | Gripline | bouwmarkt | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Multipot platen (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Petrischalen (150 mm diameter) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Plantsjabloon (op maat) | UFZ | n.a. | Plantsjabloon vervaardigd door de werkplaats van het Helmholtz Centre for Environmental Research (UFZ), Leipzig, Duitsland, specifiek voor het planten van de iDiv Ecotron metaalcilinders. |
| Kunststof folie | Cargo Point | bouwmarkt | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Kunststof scheppen | Hünersdorff | bouwmarkt | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Spuitbus (1500 mL) | Bürkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Kwarts poeder | Quarzsande | n.a. | https://quarzsand |
Referenties
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Herprints en machtigingen
