Strongyloides ratti is een parasitaire nematode die voorbijgaande infecties veroorzaakt bij laboratoriummuizen, die weefselmigrerende en darmlevensstadia vertonen. Hier presenteren we een protocol voor het in stand houden van de parasietcyclus bij ratten en experimentele infectie van muizen, inclusief kwantificering van parasieten in het hoofd, de longen en de darmen.
Methodenartikel
Experimentele infectie van muizen met de parasitaire nematode Strongyloides ratti
In dit artikel
Samenvatting
Samenvatting
Strongyloides ratti is een parasitaire nematode die van nature wilde ratten infecteert. De meeste laboratoriumstammen van ratten en muizen zijn echter volledig vatbaar voor infecties. Immunocompetente BALB/c- en C57BL/6-muizen beëindigen S. ratti-infecties binnen een maand in de context van een canonieke type 2-immuunrespons en blijven semi-resistent tegen een herinfectie. Het verloop van de infectie kan worden onderverdeeld in drie fasen: (a) de weefselmigratiefase van de infectieuze larven van het derde stadium gedurende de eerste twee dagen; b) de vroege darmfase, met inbegrip van de vervelling van de volwassen parasieten en de inbedding in het slijmvlies van de darm op de dagen 3 tot en met 6 na de infectie, met voortplanting vanaf dag 5 tot en met 6 na de infectie; c) de latere darmfase die eindigt met de volledige verwijdering van de parasieten. Experimentele infecties van muizen met S. ratti maken het mogelijk om de interacties tussen gastheer en parasiet gedurende de hele levenscyclus op de verschillende infectieplaatsen nauwkeurig te bestuderen, evenals immuunontwijkingsstrategieën die door de parasiet worden gebruikt. Het hier gepresenteerde protocol beschrijft het onderhoud van de parasiet bij Wistar-ratten, de infectie van laboratoriummuizen en de detectie en kwantificering van S. ratti-parasieten in de weefselmigratiefase en tijdens de darmfase.
Inleiding
De door de bodem overgedragen worm Strongyloides stercoralis veroorzaakt Strongyloidiasis, een ziekte die vaak wordt aangeduid als de meest verwaarloosde van de verwaarloosde tropische ziekten1. Schattingen uit 2020 suggereren 600 miljoen infecties met S. stercoralis wereldwijd2. Hypothese-gedreven laboratoriumonderzoek naar S. stercoralis is beperkt omdat de worm zich niet voorbij de larven van het derde stadium (L3) kan ontwikkelen bij muizen 3,4. Vandaar dat de knaagdierspecifieke nematode Strongyloides ratti vaak wordt gebruikt voor in vivo infectiestudies bij laboratoriummuizen 5,6. S. ratti is een natuurlijke parasiet van wilde ratten, maar de meeste muizenstammen in het laboratorium zijn volledig vatbaar voor infectie7. Dit maakt de studie mogelijk van de interactie tussen gastheer en pathogeen en immuunresponsen in verschillende weefsels en levende stadia van de worm.
De laboratoriumcyclus van S. ratti bij muizen kan worden onderverdeeld in drie hoofdfasen. Na subcutane injectie van een bepaald aantal infectieuze larven van het derde stadium (iL3), meestal 1000 tot 2000, migreert de meerderheid (ongeveer 90%) van de overlevende L3 naar de kop van de muizen tijdens de eerste twee dagen van infectie, en slechts een zeer klein deel (ongeveer 10%) wordt teruggevonden in delongen 8. S. ratti dringt actief door in de huid van zijn knaagdiergastheer. Het is mogelijk om deze natuurlijke infectieroute in het laboratorium na te bootsen door een druppel water met iL3 op de huid van muizen te plaatsen en actieve percutane infectie9 mogelijk te maken. De werkzaamheid van de infectie is echter veel lager en controle van de exacte infectiedosis is niet mogelijk. De exacte migratieroute die S. ratti iL3 heeft afgelegd, hetzij na percutane of subcutane (s.c.) infectie, blijft onbekend. Omdat er echter geen S. ratti-DNA kan worden gedetecteerd in het bloed of organen die goed van bloed zijn voorzien, zoals de nieren van geïnfecteerde muizen8, omvat de primaire migratieroute mogelijk niet de bloedbaan. Toch migreert S. ratti niet willekeurig door de weefsels. Integendeel, verschillende studies met histologie bij muizen 3,10 en ratten11 of kwantificering van levensvatbaar L3- en S. ratti-afgeleid DNA afkomstig uit verschillende weefsels8 leveren bewijs dat S. ratti L3 migreert van de plaats van infectie rechtstreeks via huid- en spierweefsel, voornamelijk naar het nasofrontale gebied van het hoofd.
Ongeveer 10% van de geïnjecteerde larven overleeft de weefselmigratie en bereikt de kop bij C57BL/6- en BALB/c-muizen die vergelijkbare L3-nummers vertonen in het kopweefsel12. Aangenomen wordt dat larven worden ingeslikt om de darm te bereiken op dag 3 na infectie (pi). Ze nestelen zich in het slijmvlies van de dunne darm, vervellen tot volwassen vrouwelijke parasieten en beginnen zich voort te planten door parthenogenese op dag 5 tot dag 6 p.i.13. Eieren, maar meestal reeds uitgekomen larven van het eerste stadium (L1), worden vrijgegeven in de darm en worden uitgescheiden met uitwerpselen. De piek van het aantal volwassen vrouwtjes wordt bereikt rond dag 6 p.i.14. Interessant is dat C57BL/6-muizen een 2- tot 5-voudige hogere darmparasietenbelasting vertonen dan BALB/c-muizen, ondanks vergelijkbare aantallen weefselmigrerende L3 in het hoofd in beide muizenstammen12. Tijdens de eerste week is de intestinale parasietbelasting in immunocompetente C57BL/6-muizen en RAG1 knock-out (KO) muizen zonder B- en T-cellen gelijk, wat suggereert dat vroege parasitaire controle wordt gemedieerd door aangeboren immuniteit12,15. In de laatste fase worden de parasieten bij immunocompetente muizen binnen 2 tot 4 weken p.i. uit de darm verdreven (beoordeeld in6). RAG1 KO-muizen zijn niet in staat om de infectie te verwijderen en bevatten tot 1 jaar lang een laag aantal levensvatbare en zich voortplantende vrouwelijke volwassenen in de dunne darm12.
Na een verdwenen eerste infectie of immunisatie met bestraald L3 zijn immunocompetente C57BL/6- en BALB/c-muizen semi-resistent tegen herinfectie. Slechts 1% van de aanvankelijk geënte iL3 bereikt de kop en bij een tweede infectie kunnen slechts ongeveer 1-5 volwassen parasieten uit de darm worden gehaald8. Het gebruik van de laboratoriuminfectie van muizen met S. ratti biedt dus een hulpmiddel om de impact van zowel het aangeboren als het adaptieve immuunsysteem te bestuderen tijdens de volledige levenscyclus van een darmnematode met weefselmigratiefasen.
In dit manuscript geven we een gedetailleerde beschrijving van het behoud van de levenscyclus van S. ratti bij Wistar-ratten, evenals experimentele infectie van muizen en kwantificering van de parasietbelasting op de verschillende infectieplaatsen. Door de exacte kwantificering van de S. ratti-parasietbelasting in het hoofd- en longweefsel en in de darm van experimentele muizen, is het mogelijk om de rol van bepaalde immuuneffectoren tegen zowel de weefselmigrerende als de darmlevensfase van deze parasitaire nematode te ontleden. Immuunresponsen bij wildtype muizen en muizen zonder specifieke immuuneffectorcellen, receptoren of mediatoren van belang kunnen worden vergeleken zoals in detail wordt uitgelegd in de discussie 5,6.
Protocol
Dierproeven werden uitgevoerd in overeenstemming met de Duitse dierenwelzijnswet en experimentele protocollen werden goedgekeurd door de Duitse autoriteit (Behörde für Gesundheit und Verbraucherschutz) van de deelstaat Hamburg. Figuur 1 geeft een overzicht van het behoud van de levenscyclus van S. ratti bij Wistar-ratten en de productie van iL3 voor infectie van experimentele muizen of ratten.
1. Voorbereiding van infectieuze larven
- Bereid het Baermann-apparaat voor zoals weergegeven in afbeelding 1. Sluit de onderkant van de slang met een klem in een schuine hoek en plaats een tissuedoekje in de zeef. Vul met lauw water (ongeveer 35-37 °C) tot de zeef onder water staat.
- Vul de zeef met het mengsel van uitwerpselen en houtskool, bereid zoals hieronder beschreven (stap 6). Het mengsel moet volledig onder water staan.
- Schakel de lamp direct achter het Baermann-apparaat in. Levensvatbare iL3 zal actief migreren door het doekje.
- Na 30 minuten zijn de larven boven de klem uitgekomen, verzamel ze in een buis van 50 ml door de klem kort te openen. Verzamel de hele pellet, maar zorg ervoor dat het volume zo klein mogelijk is.
- Vul de tube van 50 ml met PBS met 1% penicilline-streptomycine (PBS/Pen-Streptophyline) en laat de larven zich gedurende 30 minuten door de zwaartekracht bij 4 °C op de bodem van de tube nestelen. Verwijder het bovenstaande voorzichtig met een pipet en herhaal de wasstap 3x.
- Na de derde wasstap suspendeert u de pellet in 30 tot 50 ml PBS/Pen-Streptokokken, afhankelijk van de korrelgrootte. Breng 1 μL druppels van de oplossing over op een microscopisch objectglaasje. Schud de oplossing direct voor het pipetteren, omdat de iL3 snel tot rust komt.
- Inspecteer de druppels onder een omgekeerde microscoop met een vergroting van 40x. De iL3 zou levendig moeten bewegen. Tel de iL3 per druppel van 1 μL in 5 tot 10 replicaten en bereken het gemiddelde per μL.
2. Infectie van muizen
OPMERKING: Bereide iL3 kan worden bewaard in PBS/Pen-Strep bij 4 °C in een tube van 50 ml die horizontaal moet worden bewaard om beschadiging van de iL3 te voorkomen. De levensvatbaarheid in vitro , aangegeven door de levendige beweging van iL3, is tot 1 week onveranderd in onze handen. Omdat er geen systematische vergelijking is van de besmettelijkheid van L3 na verschillende bewaartijden, gebruiken we vers bereide iL3 en bewaarde iL3 maximaal 24 uur na bereiding als interne standaard. Infecties met oudere iL3-batches zijn mogelijk. Het is echter verplicht om dezelfde iL3-batch te gebruiken voor infectie van verschillende groepen binnen één experiment. Infecties van muizen moeten bij voorkeur door twee personen worden uitgevoerd, waarbij één persoon de muis vasthoudt en een andere de injectie uitvoert.
- Bereid een centrifugeerbuis van 1.5 ml per muis voor met in totaal 1000 iL3 (C57BL/6) of 2000 iL3 (BALB/c), geteld zoals hierboven beschreven in stap 1.7 in PBS/Pen-Streptokokken die zijn bereid met behulp van het Baermann-apparaat zoals hierboven uitgelegd (stap 1). Schud grondig tussen de pipetteerstappen door terwijl de iL3 snel tot rust komt.
- Laat de iL3 20-30 minuten bij kamertemperatuur (RT) door de zwaartekracht bezinken en zuig het bovenstaande zo volledig mogelijk op met een spuit van 0,5 ml, waarbij er ongeveer 30 μl iL3-suspensie in de buis overblijft. Resuspendeer de iL3 met een spuit van 0,5 ml (28G) of door de slang aan te tikken en de resterende suspensie aan te zuigen.
OPMERKING: De iL3 blijft minder snel aan nat plastic plakken dan de droge spuit. Daarom is het voordelig om dezelfde spuit te gebruiken om de supernatant te verwijderen. - Muizen hoeven niet verdoofd te worden voor infectie. Pak de muizen met het nekvel op en pak een achtervoet van de muizen vast. Gebruik vrouwelijke en mannelijke C57BL/6 van meer dan 8 weken oud en ten minste 20 g gewicht. Injecteer de volledige oplossing met de iL3 subcutaan in het voetkussen in een vlakke hoek. Trek de spuit langzaam terug om te voorkomen dat er larvenuspensie van de prikplaats terechtkomt. Er zal zich een heel klein koepeltje vormen met de vloeistof. Dit wordt vanzelf opgenomen.
OPMERKING: Onderhuidse infectie in de voetzool in plaats van in de flank of nek van de nek bootst de natuurlijke infectie door iL3 na, die leeft in vochtige aarde bemest met uitwerpselen en actief de intacte huid binnendringt. Ook wordt de eerste drainerende lymfeklier (LN) gedefinieerd als de popliteale LN. Deze LN kan worden gebruikt voor de analyse van vroege (d.w.z. dag 2 p.i.) immunologische veranderingen, bijvoorbeeld expansie van Foxp3+ regulerende T-cellen als reactie op infectie, zoals aangetoond in16.
3. Telling van iL3 in het hoofd en de long van geïnfecteerde muizen
- Voor analyse van de larvenbelasting in het weefsel, offert u de muizen op dag 1-3 p.i. omdat de piek van de larvenlast op dag 2 p.i.8,12 is. Voer euthanasie uit door middel van een overdosis CO2 -narcose. Na de afwezigheid van hoornvlies en interdigitale reflexen, voer cervicale dislocatie uit.
- Spuit de buik en nek in met een in de handel verkrijgbaar ontsmettingsmiddel en knip de huid over de buik met een schaar. Trek de huid naar achteren om de voorste buikwand te onthullen en snijd langs de middellijn om de peritoneale holte te openen. Snijd het middenrif door en snijd de ribben aan beide kanten open om de long in de pleuraholte bloot te leggen.
- Verzamel de longlobben in een plaat met 24 putjes, gescheiden door lijnen met 1 ml kraanwater. Teken of print de lijnen op de plaat op een afstand van ongeveer 4 mm. De afstand tussen de lijnen moet het mogelijk maken om beide lijnen tegelijkertijd te zien bij een vergroting van 40x.
- Snijd de hele long in zes stukken van ongeveer 0,75 cm x 0,75 cm.
- Knip het hoofd af met een botschaar. Verwijder de huid en vacht met de vingers. Probeer zo min mogelijk spierweefsel te verwijderen.
- Ontleed het hele hoofd (inclusief hersenen en botten) in vier kwartalen achter de ogen en in de lengterichting door het midden van het hoofd (zie figuur 2C). Plaats de voorste en achterste kwadranten in een kuiltje van een plaat met 6 putjes, gemarkeerd door lijnen met 2 ml kraanwater. Plaats de tissue met de sneden naar beneden in het water.
OPMERKING: Meestal geeft deze benadering een exacte registratie van het aantal larven die kopweefsel migreren. Als een afzonderlijke analyse van L3-getallen in de hersenen nodig is, kan stap 3.7 worden opgenomen. - Als een afzonderlijke analyse van de hersenen gewenst is, verwijder dan de huid van het hoofd met behulp van de vingers. Gebruik vervolgens een schaar om door het kalotje tussen de ogen te boren. Open vanaf deze incisie de bovenkant van de schedel sagittaal met een ongebruikte of grondig gereinigde schaar. Om de hersenen bloot te leggen, opent u de rechter en linker kalotjes met een pincet. Gebruik een spatel om de hersenen van de voorste kant naar boven te tillen en de zenuwkoorden worden met een schone schaar doorgeknipt. Verwijder de hersenen en breng deze over naar een plaat met 24 putjes, gemarkeerd door lijnen met kraanwater.
- Plaats de platen in een broedmachine bij 37 °C. Incubeer gedurende 3 uur terwijl je de platen elk uur (h) 10x ronddraait. Draai na de incubatie nog een laatste keer rond, verwijder de resterende weefseldelen met een tang uit de putjes en gooi het weefsel weg.
- Tel alle larven in het resterende water in de putten volledig onder een omgekeerde microscoop met een vergroting van 40x door langs de lijnen te bewegen die op de putbodems zijn getekend. Tel de weefselmigrerende larven op dezelfde dag om de betrouwbaarheid van de resultaten te vergroten.
4. Tellen van S. ratti-parasieten in de darm van geïnfecteerde muizen
- Voor analyse van de parasitaire belasting in de darm offeren de muizen op de dag p.i. van belang, gebruik dag 3-21 p.i. voor een volledige kinetiek. De piek van de parasietbelasting in C57BL/6 en BALB/c muizen in de dunne darm is op dag 6 p.i.14. Voer euthanasie uit door middel van een overdosis CO2 -narcose. Na de afwezigheid van hoornvlies en interdigitale reflexen, voer een cervicale dislocatie uit.
- Week de buikstreek van de muizen in een ontsmettingsmiddel en snijd de huid over de buik. Trek de huid naar achteren om de voorste buikwand te onthullen en snijd langs de middellijn om de peritoneale holte te openen.
- Verwijder de gehele darm door te snijden tussen de maag en de proximale twaalfvingerige darm, evenals tussen de dikke darm en de anus (zie figuur 3B). Trek de darm voorzichtig met de vingers naar buiten en plaats deze in een petrischaaltje met kraanwater.
- Snijd de darm in de lengterichting open en spoel de ontlasting en het slijm eruit door krachtig te schudden in kraanwater gedurende ten minste 10 seconden. Een klein deel van de volwassen parasieten en sommige L1 wordt weggespoeld, maar levensvatbare L4- en volwassen S. ratti-parasieten zijn ingebed in het slijmvlies van de darm bij wildtype (WT) muizen en zullen niet worden verwijderd door deze wasstap.
- Indien van belang, verdeel de darm dan verder zoals hieronder beschreven.
- Isoleer de twaalfvingerige darm door een incisie na de tweede Peyer-pleister (ongeveer 2-3 cm). Isoleer het ileum door twee incisies, één bij de eerste en de andere bij de tweede Peyer's patch (ongeveer 1-2 cm). Isoleer het jejunum na isolatie van de twaalfvingerige darm en het ileum, aangezien dit het resterende deel is.
- Verdeel het jejunum in drie gelijke secties om een zeer exacte definitie van parasitaire lokalisatie mogelijk te maken. Isoleer het blindecum tussen het ileum en de dikke darm. Isoleer de dikke darm door na de blindedarm te snijden. De meeste volwassen parasieten zijn te vinden in het eerste derde deel van de dunne darm (zie figuur 3B).
- Breng de gereinigde darmdelen over in buisjes van 50 ml met 20 ml kraanwater. Plaats horizontaal in de broedstoof van 37 °C gedurende 3 uur. Schud elk uur 10 s zeer krachtig.
- Verwijder na 3 uur incubatie het weefsel uit het water. Plaats de buisjes verticaal bij RT en de parasieten bezinken door de zwaartekracht in 30 minuten.
- Verwijder het bovenstaande middel totdat er ongeveer 5 ml water overblijft. Vul tot 25 ml met kraanwater om de wasstap te herhalen. Voor analyse van de dunne darm herhaalt u deze wasstap nog een keer om goed zicht onder de microscoop te hebben.
- Wanneer een goed zicht is bereikt, zuigt u het bovenstaande op totdat er ongeveer 5 ml water over is en brengt u de vloeistof over in twee putjes per muizendarm in een plaat met 6 putjes gemarkeerd door lijnen, zoals uitgelegd voor het tellen van larven in de kop.
- Tel de volwassen vrouwelijke parasieten onder een omgekeerde microscoop met een vergroting van 40x door langs de lijnen te bewegen die op de putbodems zijn getekend. Tel parasieten op de dag van offering. Tel de parasieten zo snel mogelijk, want langdurige incubatie in water zal leiden tot hun dood en desintegratie.
LET OP: Naast larven in het vierde stadium en volwassen parasieten is hier ook L1 te detecteren vanaf ongeveer dag 5 p.i. Deze zijn veel kleiner en veel overvloediger dan L4 en volwassen parasieten en moeten gemakkelijk worden onderscheiden.
5. S. ratti onderhoud bij Wistar-ratten
OPMERKING: Ratteninfecties moeten bij voorkeur door twee personen worden gedaan, waarbij één persoon de ratten vasthoudt en een andere de injectie uitvoert. Om de parasietcyclus in stand te houden, worden 4-8 weken oude Wistar-ratten geïnfecteerd.
- Bereid een centrifugeerbuis van 1,5 ml per rat voor met 2500 iL3 in PBS/Pen-Streptokokken met behulp van het Baermann-apparaat, zoals eerder uitgelegd. Schud grondig tussen de pipetteerstappen door terwijl de larven zich snel nestelen.
- Laat de larven 20-30 minuten (RT) door de zwaartekracht bezinken en zuig het bovenstaande op in een spuit van 0,5 ml (28 G) totdat er ongeveer 200 μl larvenuspensie overblijft.
- Plaats bij infecties de ratten in de armholte van één persoon en bevestig daar het hoofd voorzichtig en voorzichtig. De andere persoon pakt voorzichtig de flank van de rat vast en injecteert de geresuspendeerde iL3-suspensie subcutaan in de nekplooi.
6. Houtskool cultuur
- Houd geïnfecteerde ratten in kooien met meerdere lagen cellulose en minder strooisel vanaf dag 5 en 12 na de infectie. Deze uitwisseling van zwerfvuil voor meerdere lagen cellulose wordt gedaan om het verzamelen van uitwerpselen gemakkelijker te maken in vergelijking met het verzamelen van uitwerpselen uit zwerfvuil
- Op dag 6-8 en 13-15 p.i., breng de ratten over in een nieuwe kooi en verzamel alle uitwerpselen uit de oude kooi door de uitwerpselenkorrels uit de kooien op te rapen nadat de ratten naar nieuwe kooien zijn overgebracht en ze van de ene kooi in een buis van 50 ml te poolen. Verzamel ontlasting gedurende 2 weken p.i. voordat de immuunrespons tot stand wordt gebracht, waardoor de larvale belasting in de ontlasting wordt verminderd. Na 2 weken p.i. worden de ratten geëuthanaseerd via CO2 overdosis narcose. Na de afwezigheid van hoornvlies en interdigitale reflexen, voer een cervicale dislocatie uit.
OPMERKING: Immuungecompromitteerde ratten en Mongoolse gerbils houden S. ratti-infecties gedurende langere periodenin stand 17,18. Bij het bestuderen van immuunrespons en immunomodulatie tijdens S. ratti-infectie, hebben we besloten om de cyclus in immunocompetente gastheren te handhaven om de selectiedruk van intacte gastheerimmuniteit te behouden. - Gebruik de verzamelde ontlastingsmonsters om houtskoolculturen te bereiden, waardoor de ontwikkeling van iL3 uit de L1 in de ontlasting mogelijk wordt.
- Week de houtskool voor met kraanwater. Voordat u houtskool voor culturen gebruikt, vult u het in een zeef en wast u het onder stromend kraanwater tot het water helder is. Houd de houtskool te allen tijde vochtig. Week de houtskool minimaal 24 uur voor gebruik.
- Meng de ontlasting met voorgeweekte actieve kool tot een verhouding van ongeveer 1:1. Schik het mengsel diagonaal met een helling en bedek het met nog een laag actieve kool in een platte glazen beker om een uiteindelijke verhouding van 1:2 te bereiken.
OPMERKING: Incubatie van de ontlasting met voorgeweekte actieve kool bootst de vochtige grond na waarin iL3 zich in de natuur ontwikkelt, terwijl overmatige schimmelbesmetting wordt voorkomen. - Bedek het glazen vat met een transparante film. Zorg ervoor dat er enkele luchtgaten zijn om luchtcirculatie mogelijk te maken.
- Incubeer gedurende 6-7 dagen bij 25 °C bij een luchtvochtigheid van ongeveer 90 % zonder CO2. Zorg ervoor dat de incubator een watervat bevat om de culturen vochtig te houden. Bewaar de culturen indien nodig maximaal 14 dagen bij 25 °C. iL3 zal zich direct of indirect ontwikkelen19 en in het iL3-stadium gestopt blijven tot infectie.
Resultaten
S. ratti migreert van de plaats van infectie voornamelijk naar het hoofd en later naar de darm via een route die niet precies is gedefinieerd. Om de exacte lokalisatie in het hoofdweefsel en de darm te onderzoeken, werden C57BL/6-muizen geïnfecteerd met 1000 iL3 in het linker achtervoetkussen. Muizen werden gedood op dag 1 tot dag 14 p.i. en S. ratti-parasieten werden gekwantificeerd in de voorste en achterste kop, hersenen en long (Figuur 2), evenals in de twaalfvingerige darm, het jejunum, het ileum, de blindedarm en de dikke darm (Figuur 3).
Op dag 1 p.i. bereikte de eerste L3 de kop, wat een uniforme verdeling vertoonde (Figuur 2A). Bovendien werd op dag 1 p.i. een klein deel van de larven in de longen opgehaald (Figuur 2B). Het aantal L3's nam op dag 2 ± 's avonds aanzienlijk toe tot een gemiddelde van 174 L3 ± 13 in het hoofd en een gemiddelde van 17 1,7 in de longen. Het grootste deel van L3 (ongeveer 90%) wordt dus uit het hoofd gehaald en slechts ongeveer 10% uit de longen. De meeste L3 (gemiddeld 93 ± 13,3) waren gelokaliseerd in de voorste kant van het hoofd, maar ook rond de 41 ± 4,7 L3-larven waren gelokaliseerd in de achterkant van het hoofd en ongeveer 39 ± 5,8 in de hersenen. In overeenstemming met deze waarneming werd de aanwezigheid van L3 in de hersenen en het hersenvocht gerapporteerd om 24 uur p.i. en met een maximum om 48 uur p.i. bij C57BL/6-muizen na percutane infectie20. Een duidelijke afname van het totale aantal L3's werd waargenomen op dag 3 p.i. in vergelijking met de larvenlast op dag 2 p.i. en er werden geen L3 opgehaald uit het hoofdweefsel op dag 4 p.i. (Figuur 2A). Dienovereenkomstig werd de aankomst van S. ratti-parasieten in de darm gedetecteerd op dag 4 p.i. (Figuur 3A). Om een nauwkeurige definitie van de lokalisatie van parasieten mogelijk te maken, werd de darm onderverdeeld in verschillende segmenten, d.w.z. twaalfvingerige darm, jejunum, ileum, blindedarm en dikke darm (Figuur 3B). Op dag 4, p.i., waren de meeste S. ratti-parasieten gelokaliseerd in de twaalfvingerige darm en het eerste tweederde deel van het jejunum (Figuur 3A). Deze lokalisatie was consistent tot dag 6 uur 's avonds. Vanaf dag 7 p.i. was de meerderheid van de volwassen S. ratti gelokaliseerd in de blindedarm, waar ze aanhielden tot dag 9 p.i. (Figuur 3A). Het aantal parasieten in het caecum daalde op dag 11 p.i. tot ongeveer 20 en op dag 14 p.i. tot 0. We hebben op geen enkel geanalyseerd tijdstip significante aantallen parasieten uit de resterende dikke darm gehaald, behalve ongeveer 5-11 parasieten op dag 11 p.i. Terwijl de lokalisatie van S. ratti-parasieten veranderde van dag 4 naar dag 9 p.i. en de meerderheid van de volwassenen na dag 7 p.i. uit de dunne darm werd uitgestoten, bleef het totale aantal dat uit de hele darm werd gehaald constant tot dag 9. Levensvatbare L1 werd niet gekwantificeerd, maar is detecteerbaar van dag 4 tot dag 11, met piek op dag 6 (gegevens niet weergegeven).

Figuur 1: Behoud van de levenscyclus van S. ratti bij ratten en muizen. Wistar-ratten worden s.c. in de nekplooi geïnjecteerd met 2500 iL3. Na 6-15 dagen worden p.i. hun uitwerpselen verzameld, gemengd met in water gedrenkte actieve kool, gerangschikt met een gradiënt en bedekt met een transparante film, inclusief luchtgaten. Deze cultuur wordt 6-7 dagen geïncubeerd bij 25 °C en een luchtvochtigheid van 90%. De iL3 worden geïsoleerd met behulp van het Baermann-apparaat en 3x gewassen met PBS/Pen-Strep. Experimentele muizen worden met 1000 iL3 subcutaan in de achterste voetzool geïnjecteerd. Gemaakt met BioRender.com. Figuur 1 is gemaakt in BioRender. Linnemann, L. (2024) https://BioRender.com/g80l370. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Kwantificering van S. ratti in het long- en kopweefsel in de loop van de tijd. C57BL/6 muizen werden s.c. geïnjecteerd met 1000 iL3 in het achtervoetkussen. Muizen werden op de aangegeven tijdstippen geofferd en S. ratti-parasieten in (A) hoofd en (B) long werden geteld. Elk symbool vertegenwoordigt de L3-tellingen van een individuele muis; het staafdiagram toont de gemiddelde waarde en foutbalken geven SEM aan. De grafieken tonen gecombineerde gegevens van individuele experimenten. Dag 1: twee onafhankelijke experimenten met n=4 per tijdstip en experiment; Dag 2: Vier onafhankelijke experimenten met n=4, n=4, n=6 en n=3; Dag 3: Twee onafhankelijke experimenten met n=4 en n=3; Dag 4: Eén experiment met n=5. (C) Schematische cartoon met de afzonderlijke delen van het hoofd die voor isolatie zijn gebruikt. De rode stippellijn geeft het incisiepad aan. Figuur 2C is gemaakt in BioRender. Linnemann, L. (2024) https://BioRender.com/t83e660. Klik hier om een grotere versie van deze figuur te bekijken.
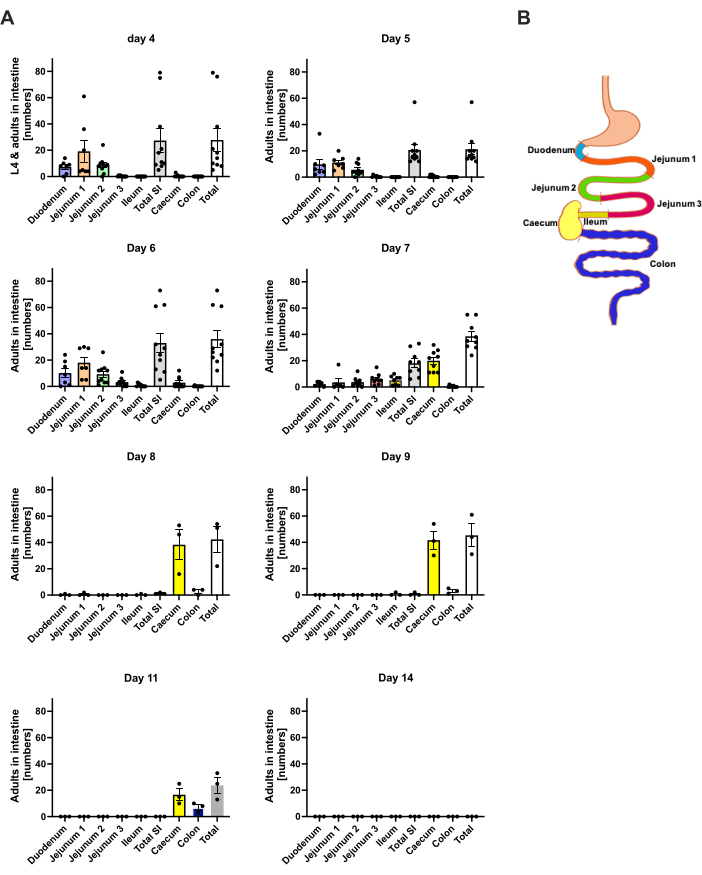
Figuur 3: Kwantificering van S. ratti in de darmregio's in de tijd. Mannelijke C57BL/6 muizen werden s.c. geïnjecteerd met 1000 iL3 in de achtervoetzool. (A) Muizen werden gedood op de aangegeven tijdstippen, en S. ratti-parasieten behalve L1 werden geteld in de volgende regio's: twaalfvingerige darm, jejunum 1-3, ileum, blindedarm en dikke darm. (B) Schematisch overzicht van de verschillende darmgebieden. Elk symbool vertegenwoordigt het aantal parasieten van een individuele muis; Het staafdiagram geeft het gemiddelde weer en foutbalken geven SEM aan. Weergegeven zijn gecombineerde gegevens van individuele experimenten. Dag 4: twee onafhankelijke experimenten met n=4 en n=6 muizen; Dag 5: twee onafhankelijke experimenten met n=4 en n=6; Dag 6: twee onafhankelijke experimenten met n=4 en n=6; Dag 7: twee onafhankelijke experimenten met n=6 en n=3; Dag 8 t/m 14: één experiment met n=3. SI: dunne darm. Figuur 3B is gemaakt in BioRender. Linnemann, L. (2024) https://BioRender.com/h27y297. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De infectie van experimentele muizen met S. ratti is een uitstekend model om de aard van beschermende immuunresponsen op worminfecties op meerdere plaatsen en stadia van immuniteit te bestuderen. Met behulp van verschillende KO-muislijnen en cel- of cytokinedepletiemodellen kan de rol van specifieke immuuncellen, mediatoren of receptoren worden bestudeerd in een acuut worminfectiemodel. De mogelijkheid om de parasietbelasting in zowel het hoofd als in de darm te kwantificeren, biedt de mogelijkheid om de rol van immuuncellen en effectoren in verschillende weefsels en fasen tijdens de levenscyclus van de parasiet te differentiëren. Depletie van specifieke celtypen door middel van injecties van antilichamen maakt het mogelijk hun rol te bestuderen, met name tijdens de intestinale immuunrespons als de uitputtingsbehandeling begint nadat de weefselmigratiefase is voltooid. Indien gewenst kan de darm verder worden onderverdeeld in twaalfvingerige darm, jejunum, ileum, blindedarm en dikke darm om zelfs kleine verschuivingen in de lokalisatie van de parasiet of klaringskinetiek te detecteren. Opgemerkt moet worden dat de inter- en intra-experimentele variatie in deze infectie-experimenten, zelfs bij ingeteelde muizen, vrij hoog is, wat een weerspiegeling is van de variatie die wordt geïntroduceerd door de interactie van parasiet en gastheer, evenals verschillende batches van S. ratti L3 die verschillende infectie-efficiëntie vertonen (zie Figuur 2 en Figuur 3). Om de variabiliteit te verminderen, moeten de leeftijd en het geslacht van de experimentele muizen vergelijkbaar zijn. Bovendien, als KO- en WT-muizen worden vergeleken, is het ten zeerste aan te raden om nestgenootcontroles te gebruiken in plaats van WT-muizen die afkomstig zijn van een onafhankelijke fokkolonie. Desalniettemin is het, als er voldoende steekproefgroottes worden gebruikt, mogelijk om betrouwbare resultaten te genereren bij muizen die deficiënt of competent zijn voor bepaalde effectoren, wat leidt tot een duidelijk beeld van immuuneffectoren die betrokken zijn bij de beschermende immuunrespons op S. ratti (besproken in 6).
Een belangrijk onderscheidend kenmerk van S. ratti in vergelijking met andere nematodeninfectiemodellen, zoals de nauw verwante S. venezuelensis of N. brasiliensis, is de unieke migratieroute van de larven binnen de gastheer. In tegenstelling tot N. brasiliensis en S. venezuelensis, waarvan de levenscycli beide een longfase bevatten21,22,23 S. ratti omzeilt voornamelijk de long en migreert via de spier en het huidweefsel naar het hoofd 8,12. Slechts ongeveer 10% van de overlevende parasieten op dag 2 p.i. wordt in de longen aangetroffen. Ondertussen richt de locatie van S. ratti in het hoofd zich op het nasofrontale gebied, in lijn met eerdere studies8. Deze kenmerken maken S. ratti tot een waardevol model voor het bestuderen van de interacties tussen gastheer en parasiet, met name in huid- en spierweefsel en in de weefselafvoerende lymfeklieren, en maakt onderzoek mogelijk naar de immuunresponsen die kunnen worden verdoezeld of gecompliceerd door een uitgebreide longbetrokkenheid zoals in andere nematodeninfectiemodellen. Opvallend is dat S. ratti L3 ook wordt gewonnen uit het hersenvocht20 en de hersenen (Figuur 2A), hoewel infectie-geïnduceerde neurologische symptomen of overlijden relatief zeldzaam zijn en nooit zijn waargenomen in onze dierenfaciliteit. Toekomstig onderzoek kan ophelderen of deze hersengelokaliseerde parasieten gevangen zitten of dat er een pad naar de darm bestaat.
Het geslacht Strongyloides heeft ook het unieke vermogen om vrijlevende generaties te vormen tussen de parasitaire generaties24. Dit vrijlevende stadium van S. ratti, evenals de reproductie ervan door pathogenese, vergemakkelijkt bovendien de vorming van transgene larven. Het gebruik van micro-injecties in vrijlevende vrouwtjes maakte het mogelijk om larven te genereren die modelantigenen zoals 2W1S tot expressie brachten, gefuseerd met een groen fluorescerend eiwit. Hoewel de expressie van het epitoop verloren ging tijdens de vervelling naar volwassenen, maakte het de tracking en karakterisering mogelijk van S. ratti-specifieke CD4+ T-cellen in de long- en longafvoerende mediastinale lymfeklieren25. Deze benadering biedt een uitstekend hulpmiddel voor het bestuderen van CD4+ T-celbiologie in de context van worminfecties en de ontwikkeling van anti-wormvaccins.
S. ratti is een veelzijdig modelorganisme voor immunologisch onderzoek van wormparasieten die weefselmigratie vertonen en darmlevensstadia in het algemeen. Menselijke S. stercoralis-infecties worden gekenmerkt door extreme chroniciteit als gevolg van de optredende auto-infectie, die ook kan leiden tot hyperinfectiesyndroom bij gastheren met immunosuppressie, meestal patiënten die na transplantatie glucocorticoïdtherapie krijgen26. Opgemerkt moet worden dat dit aspect van auto-infectie en hyperinfectie moeilijk te modelleren is bij muizen. Noch S. ratti-geïnfecteerde RAG1 KO, noch naakte muizen 5,27 zijn vatbaar voor hyperinfectie. Merk op dat één muizenmodel van hyperinfectie met S. stercoralis werd vastgesteld met behulp van met glucocorticosteroïden behandelde ernstig immuungecompromitteerde muizen (NOD.Cg-PrkdcscidIl2rgtm1Wjl/SzJ), wat de analyse van ten minste aspecten van het hyperinfectiesyndroom bij muizen mogelijk kan maken, uiteindelijk28.
Desalniettemin toonden studies met S. ratti-infectie bij muizen aan dat eosinofielen en neutrofielen een niet-redundante rol spelen bij het uitroeien van weefselmigrerende larven. De uitputting of afwezigheid bij genetisch gemodificeerde muizen resulteerde in verhoogde L3-getallen in het hoofd8. Hoewel mestcellen en basofiele granulocyten overbodig waren tijdens de weefselmigratiefase, droegen zowel mestcellen als basofielen bij aan het beheersen van de darmparasietbelasting. Hun afwezigheid had geen invloed op het L3-aantal in het weefsel, maar verhoogde het aantal volwassen S. ratti-parasieten in de darm op dag 6 p.i.12,29. Verdere analyse toonde aan dat de afwezigheid van basofielen of selectief bindweefselmestcellen het mogelijk maakte om de infectie te beëindigen met WT-kinetiek. Daarentegen bleven muizen zonder bindweefsel en slijmvliescellen 20 weken geïnfecteerd12. Deze bevindingen onthulden een cruciale rol voor mucosale mestcellen bij de uiteindelijke beëindiging van de infectie, wat de waarde van dit infectiemodel onderstreept bij het ophelderen van de functie van mucosale mestcellen tijdens worminfectie. De verdere definitie van mogelijke veranderingen in de darmlokalisatie van S. ratti-parasieten in afwezigheid van bepaalde immunologische effectorcellen zal helpen om hun functie in anti-wormimmuniteit nog nauwkeuriger te definiëren.
Bovendien kunnen immuunontwijkende mechanismen die door wormen worden gebruikt om hun overleving te vergemakkelijken, in dit systeem worden bestudeerd. Er werd aangetoond dat uitputting van Foxp3+ regulerende T-cellen of deletie van een regulerende receptor op effector-T-cellen, die beide werden geïnduceerd tijdens S. ratti-infectie, de parasietlast op dag 6 p.i. en de larvale output tijdens infectie verminderde 15,16,30,31. Bovendien was het mogelijk om de darm te definiëren als het weefsel dat het doelwit was van immuunontwijking en IL-9-gemedieerde mestcelactivering terwijl de immuunroute werd onderdrukt. Ten slotte kan het mechanisme van ILC2-gemedieerde initiatie van type 2-immuniteit door weefsel-afgeleide alarminecytokines zoals IL-33 worden bestudeerd met behulp van suppressoren en enhancers van endogene IL-3332.
De isolatie van grote aantallen iL3 via de Baermann biedt de mogelijkheid voor verdere in vitro studies. Co-culturen van L3 met immuuncellen of potentiële kandidaat-geneesmiddelen maken direct onderzoek mogelijk naar de effecten op de levensvatbaarheid en beweeglijkheid van L3. Ex vivo restimulatie van cellen geïsoleerd uit geïnfecteerde muizen met S. ratti-antigeenlysaat of levensvatbaar L3 biedt een platform om de cytokineproductie in verschillende celtypen te bestuderen. Ten slotte kunnen eiwit- en lipidefracties van L3 worden gebruikt voor de identificatie van van S. ratti-afgeleide pathogeen-geassocieerde moleculaire patronen of immunomodulerende effectormoleculen
Aangezien worminfecties wereldwijd nog steeds een grote gezondheidslast vormen, blijft onderzoek naar het verder ophelderen van de immuunresponsen die worden veroorzaakt door wormen en het ontwijkingsmechanisme dat door de parasieten wordt gebruikt, cruciaal voor het verbeteren van behandelingsopties en het ontwikkelen van preventieve strategieën zoals vaccinaties. S. ratti-infectie bij muizen biedt een veelzijdig model voor onderzoek naar worm-gastheerinteracties tijdens een acuut infectiemodel.
Openbaarmakingen
De auteurs hebben geen belangenconflict. Het taalmodel Perplexity AI 2024 werd gebruikt om tekstconcepten te herzien en formuleringen te verbeteren.
Dankbetuigingen
Dit werk werd ondersteund door de Jürgen Manchot Foundation en de Duitse Onderzoeksvereniging (Grant BRE 3754/6-1 en BRE 3754/10-1). Figuren 1, 2C en 3B zijn gemaakt in BioRender.com.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 50 ml buizen | Sarstedt, N mbrecht, DE | 6,25,47,254 | 50 ml https://www.sarstedt.com/produkte/labor/reagenz-zentrifugenroehren/roehren/produkt/62.547.254/ |
| BD Micro-Fine U100 Insulin 0.5 ml | BD Bioscience | 7468077 | 0.5 ml https://www.bestimed.de/bd-micro-fine-insulinspritze-05-ml-u100-8-mm-100x05ml-324825.html |
| centrifugebuizen | Sarstedt, Nümbrecht, DE | 72,706 | 1.5 ml https://www.sarstedt.com/produkte/labor/mikro-schraubroehren-reagiergefaesse/reagiergefaesse/produkt/72.706/ |
| Koolzuur | Roth | 0998.3 | 5 kg https://www.carlroth.com/de/de/aktivkohle/aktivkohle/p/0998.3 |
| Falcon 6-well Clear Flat Bottom, niet-behandelde cell multiwell cultuurplaat, met deksel, sterieel | Corning | 351146 | 6-well https://www.corning.com/emea/de/search.html?_cookie=false &searchText=351146&search-initialcatalog =Corporate+Communications& initialResultType=products |
| Vriezer & Koelkast | Liebherr-Hausgeräte, Rostock, DE | ||
| Greiner Bio-One 24-Well-Plates voor celculturen uit polystyreen | Fisher Scientific | 10177380 | 24-well https://www.fishersci.de/shop/products/polystyrene-24-well-cell-culture-multiwell-plate/10177380#?keyword=24-well |
| Incidin Premium Wipes | Ecolab Healthcare | 100 10 279 | https://www.ecolabhealthcare.de/website/seiten/produkte/flaechendesinfektion/tuecher/incidin_premium_wipes.php |
| Incubator 25°C | Heraeus Instruments, Hanau, DE | ||
| Incubator 37°C | Heraeus Instruments, Hanau, DE | ||
| Microscoop | Helmut Hund, Wetzlar, DE | 4 x objectieflens, 10 x oculaire lens | |
| Parafilm M | Parafilm | 11772644 | 4 in. X 125 ft. https://www.fishersci.de/shop/products/parafilm-m-laboratory-wrapping-film-2/11772644 |
| Penicilline/Streptomycine (Pen-Strep) | Capricorn | PS-B | 100x https://www.capricorn-scientific.com/en/shop/penicillin-streptomycin-pen-strep-100x~p1205 |
| ROTI Fair 10x PBS 7.4 | Roth | 1105.1 | https://www.carlroth.com/de/de/fertigloesungen-tabletten-portionsbeutel/rotifair-10x-pbs-7-4/p/1105.1 |
Referenties
- Olsen, A., et al. Strongyloidiasis - the most neglected of the neglected tropical diseases. Trans Royal Soc Tropical Med Hygiene. 103 (10), 967-972 (2009).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Dawkins, H. J. S., Grove, D. I. Attempts to establish infections with Strongyloides stercoralis in mice and other laboratory animals. J Helminthol. 56 (1), 23-26 (1982).
- Abraham, D., et al. Strongyloides stercoralis: protective immunity to third-stage larvae inBALB/cByJ mice. Exp Parasitol. 80 (2), 297-307 (1995).
- Breloer, M., Abraham, D. Strongyloides infection in rodents: immune response and immune regulation. Parasitology. 144 (3), 295-315 (2017).
- Breloer, M., Linnemann, L. Strongyloides ratti infection in mice: immune response and immune modulation. Philosophical Trans Royal Society B. 379 (1894), 20220440(2024).
- Dawkins, H. J. S., Grove, D. I., Dunsmore, J. D., Mitchell, G. F. Strongyloides ratti: Susceptibility to infection and resistance to reinfection in inbred strains of mice as assessed by excretion of larvae. Int J Parasitol. 10 (2), 125-129 (1980).
- Ehrens, A., et al. Eosinophils and neutrophils eliminate migrating Strongyloides ratti larvae at the site of infection in the context of extracellular DNA trap formation. Front Immunol. 12, 715766(2021).
- Eschbach, M. L., et al. Strongyloides ratti infection induces transient nematode-specific Th2 response and reciprocal suppression of IFN-γ production in mice. Parasite Immunol. 32 (5), 370-383 (2010).
- Dawkins, H., Muir, G., Grove, D. Histopathological appearances in primary and secondary infections with Strongyloides ratti in mice. Int J Parasitol. 11 (1), 97-103 (1981).
- Tada, I., Mimori, T., Nakai, M. Migration route of Strongyloides ratti in albino rats. Jap J Parasit. 28 (4), 219-227 (1979).
- Reitz, M., et al. Mucosal mast cells are indispensable for the timely termination of Strongyloides ratti infection. Mucosal Immunol. 10 (2), 481-492 (2017).
- Viney, M. E., Lok, J. B. The biology of Strongyloides spp. WormBook. , 1-17 (2018).
- Reitz, M., et al. Interleukin-9 promotes early mast cell-mediated expulsion of Strongyloides ratti but is dispensable for generation of protective memory. Sci Rep. 8 (1), 8636(2018).
- Breloer, M., et al. Cutting edge: The BTLA-HVEM regulatory pathway interferes with protective immunity to intestinal Helminth infection. J Immunol. 194 (4), 1413-1416 (2015).
- Blankenhaus, B., et al. Foxp3+ regulatory T cells delay expulsion of intestinal nematodes by suppression of IL-9-driven mast cell activation in BALB/c but not in C57BL/6 mice. PLoS Pathogens. 10 (2), e1003913(2014).
- Niamatali, S., Nolan, T. J., Schad, G. A. Can Autoinfection be Provoked in the Strongyloides ratt/-infected Gerbil, Meriones unguiculatus. 59 (2), 149-152 (1992).
- Gardner, M. P., Gems, D., Viney, M. E. Extraordinary plasticity in aging in Strongyloides ratti implies a gene-regulatory mechanism of lifespan evolution. Aging Cell. 5 (4), 315-323 (2006).
- Viney, M. E. Developmental switching in the parasitic nematode Strongyloides ratti. Proc Biol Sci. 263 (1367), 201-208 (1996).
- Dawkins, H. J., Thomason, H. J., Grove, D. I. The occurrence of Strongyloides ratti in the tissues of mice after percutaneous infection. J Helminthol. 56 (1), 45-50 (1982).
- Takamure, A. Migration route of Strongyloides venezuelensis in rodents. Int J Parasitol. 25 (8), 907-911 (1995).
- Filbey, K., Bouchery, T., Le Gros, G. The role of ILC 2 in hookworm infection. Parasite Immunol. 40 (2), e12429(2018).
- Allen, J. E., Sutherland, T. E. Host protective roles of type 2 immunity: Parasite killing and tissue repair, flip sides of the same coin. Semin Immunol. 26 (4), 329-340 (2014).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Exp Parasitol. 168, 25-30 (2016).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLOS Pathogens. 17 (7), e1009709(2021).
- Vadlamudi, R. S., Chi, D. S., Krishnaswamy, G. Intestinal strongyloidiasis and hyperinfection syndrome. Clin Mol Allergy. 4 (1), 8(2006).
- Viney, M., Kikuchi, T. Strongyloides ratti and S. venezuelensis- rodent models of Strongyloides infection. Parasitology. 144 (3), 285-294 (2017).
- Patton, J. B., et al. Methylprednisolone acetate induces, and Δ7-dafachronic acid suppresses, Strongyloides stercoralis hyperinfection in NSG mice. Proc Natl Acad Sci. 115 (1), 204-209 (2018).
- Reitz, M., Brunn, M. L., Voehringer, D., Breloer, M. Basophils are dispensable for the establishment of protective adaptive immunity against primary and challenge infection with the intestinal helminth parasite Strongyloides ratti. PLOS Neglected Trop Dis. 12 (11), e000699(2018).
- Blankenhaus, B., et al. Strongyloides ratti infection induces expansion of Foxp3+ regulatory T cells that interfere with immune response and parasite clearance in BALB/c Mice. J Immunol. 186 (7), 4295-4305 (2011).
- Hartmann, W., Blankenhaus, B., Brunn, M. L., Meiners, J., Breloer, M. Elucidating different pattern of immunoregulation in BALB/c and C57BL/6 mice and their F1 progeny. Sci Rep. 11 (1), 1536(2021).
- Meiners, J., et al. IL-33 facilitates rapid expulsion of the parasitic nematode Strongyloides ratti from the intestine via ILC2- and IL-9-driven mast cell activation. PLOS Pathogens. 16 (12), e1009121(2020).
Herprints en machtigingen
