Hier presenteren we een protocol voor het opzetten van een door okadaïnezuur geïnduceerd cellulair model van de ziekte van Alzheimer in SH-SY5Y-cellen en het evalueren van de neuroprotectieve effecten van gastrodin via oxidatieve stress en AKT/GSK-3β-routeanalyse.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Onderzoeksartikel
Gastrodin verlicht de tau-hyperfosforylering die geassocieerd is met veranderingen in de signalering van AKT/GSK-3β in een Alzheimer-celmodel
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De ziekte van Alzheimer (AD) is een veelvoorkomende neurodegeneratieve ziekte waarvoor momenteel slechts beperkte effectieve medicijnen bestaan. Als het belangrijkste bioactieve bestanddeel afkomstig van Gastrodia elata, heeft Gastrodin (GAS) duidelijk therapeutisch potentieel getoond voor de behandeling van AD; het moleculaire mechanisme van zijn werking moet echter nog worden opgehelderd. In deze studie willen we het mechanisme van het effect van GAS op AD-modelcellen onderzoeken. Netwerkfarmacologie wordt gebruikt om de doelwitten en signaalroutes te analyseren die door GAS in AD worden beïnvloed. Een AD-celmodel wordt opgebouwd door humane neuroblastoom SH-SY5Y-cellen te induceren met okadaïnezuur (OA). De cellevensvatbaarheid werd beoordeeld met behulp van de CCK-8 assay, terwijl de niveaus van SOD, MDA en T-AOC werden gemeten. Apoptosesnelheid werd bepaald door middel van Annexin V-FITC/PI dubbele kleuring, en expressie van apoptose-gerelateerde factoren, evenals AKT, GSK-3β, p-Tau (Ser396) en p-Tau (Thr181), werd geanalyseerd met RT-qPCR en Western blotting-technieken. Netwerkfarmacologische analyse suggereert dat GAS het potentieel heeft om cellulaire apoptose en bijbehorende signaalroutes, waaronder PI3K/AKT, te reguleren. Onze experimenten tonen aan dat GAS MDA-niveaus kan remmen, T-AOC en SOD in de AD-modelcellen kan verhogen en celapoptose kan verminderen. Western-blottingresultaten geven aan dat GAS de remmende effecten van OA op de expressie van p-AKT (Ser473) en p-GSK-3β (Ser9) verminderen. Daarnaast dempt het de overexpressie van p-Tau (Ser396) en p-Tau (Thr181), onderdrukt het de expressie van Bax en versterkt het de expressie van Bcl-2. GAS toont het vermogen aan om oxidatieve stressschade veroorzaakt door OA te verzachten en apoptose te verminderen. GAS kan Tau-hyperfosforylering onderdrukken, wat geassocieerd is met veranderingen in de AKT/GSK-3β signaalroute, en zo potentiële neuroprotectieve effecten uitoefenen.
Inleiding
De ziekte van Alzheimer (AD) is een progressieve neurodegeneratieve aandoening die voornamelijk wordt gekenmerkt door geheugenverlies en cognitieve stoornissen, en vertegenwoordigt wereldwijd de meest voorkomende vorm van dementie, goed voor ongeveer 60% tot 80% van de gevallen1. De onderliggende pathogenese van AD blijft complex en nog niet volledig opgehelderd2. Belangrijke pathologische kenmerken die in klinische AD-gevallen zijn waargenomen, zijn de ophoping van seniele plaques (SP) en neurofibrillaire tangles (NFT's) in de hersenen 3,4. Het is algemeen bekend dat de twee kernpathologische gebeurtenissen bij AD de extracellulaire afzetting van β-amyloïde-eiwit (Aβ) zijn om seniele plaques te vormen en intracellulaire aggregatie van hyperfosforyleerd Tau-eiwit om neurofibrillaire tangleste vormen 5,6,7. Daarnaast zijn oxidatieve stress en neuro-inflammatie aanvullende factoren die kunnen bijdragen aan de verergering van AD 8,9,10,11.
Naarmate de wereldwijde trend van veroudering in de bevolking toeneemt, is het aantal dementiepatiënten aanzienlijk gestegenmet 12,13. De behandelingsmogelijkheden voor AD blijven echter beperkt en bestaan voornamelijk uit single-target geneesmiddelen zoals memantine, donepezil en galantamine14. Hun therapeutische effecten zijn echter voornamelijk palliatief in plaats van ziekte-modificerend, en bepaalde bijwerkingen zoals gastro-intestinale stoornissen, duizeligheid en bradycardie zijn gerapporteerd. Daarom blijft de ontwikkeling van veiligere en effectievere therapeutische strategieën een belangrijke onderzoeksprioriteit15,16. Recent gelanceerde monoklonale geneesmiddelen, zoals Lecanemab, hebben nieuwe hoop gebracht voor patiënten met milde antidepressie. Toch voldoen hun hoge kosten en beperkingen niet aan de aanzienlijke therapeutische vraag. De preventie en behandeling van antidezuis blijven een aanzienlijke uitdaging17,18. De bevindingen uit verschillende studies hebben aangetoond dat medicinale planten, met name traditionele Chinese medicijnen, multicomponent-effecten vertonen die meerdere routes aanpakken die betrokken zijn bij neurodegeneratieve aandoeningen zoals AD. Studies hebben aangetoond dat actieve verbindingen van Ganoderma lucidum oxidatieve schade in het hersenweefsel van AD-muizen kunnen verlichten, apoptose kunnen remmen, necrose van hippocampusneuronen kunnen verminderen en cognitieve achteruitgang kunnen verbeteren.. In AD-onderzoek gebruikten Bao et al. netwerkfarmacologie om belangrijke doelwitten van Astragaloside IV te identificeren bij AD-gerelateerde ontstekingen. Hun bevindingen toonden aan dat epidermale groeifactorreceptor (EGFR) en interleukine-1β (IL-1β) cruciale doelwitten zijn, die potentiële therapeutische kandidaten en ziektedoelen bieden voor de klinische behandeling van neurodegeneratieve ziekten20. Dartigues et al.21 analyseerden Ginkgo biloba-extract en toonden aan dat het gunstige effecten heeft op het verminderen van het risico op dementie en sterfte bij ouderen. Patiënten behandeld met Ginkgo biloba-extract vertoonden een lager sterftecijfer:22.
Gastrodia elata, behorend tot de familie Orchidaceae, is een traditioneel Chinees kruid, eetbaar en medicinaal. De rhizoom van Gastrodia elata is rijk aan Gastrodin (GAS), gastrodia-polysacchariden en alkaloïden. Recent farmacologisch onderzoek heeft aangetoond dat deze actieve verbindingen geheugenverbeterende en cognitieve verbeteringen hebben, evenals neuroprotectieve eigenschappen en effectiviteit bij de behandeling van slapeloosheid en duizeligheid23. De belangrijkste bioactieve verbinding van Gastrodia elata is GAS, dat uit de knol wordt gewonnen en medicinale eigenschappen heeft. GAS, ook bekend als 4-hydroxybenzylalcohol 4-O-β-d-glucoside, behoort tot de klasse fenolglycosiden24. De chemische structuur van GAS is geïllustreerd in Figuur 1, met een molecuulgewicht van 286,278. De relatief lage molecuulmassa van glycosiden en monoglycosiden faciliteert hun efficiënte penetratie door de bloed-hersenbarrière, en vormt zo een fundamentele basis voor de neuroprotectieve rolvan GAS 25. Bovendien verhoogt hun hoge absorptievermogen hun effectiviteit verder26. In de afgelopen jaren hebben talrijke studies het potentieel van GAS aangetoond bij de behandeling van diverse hersenaandoeningen, waaronder AD 27,28,29,30, de ziekte van Parkinson (PD)31 en cerebrale ischemie 32. GAS vertoont een breed scala aan farmacologische eigenschappen, waaronder antioxidatieve, hypolipidemische, ontstekingsremmende en anti-verouderingseffecten33,34. Het werkingsmechanisme omvat meerdere signaalroutes zoals Nrf2, NF-κB en AMPK35. GAS oefent neuroprotectieve effecten uit in een muismodel van door Pb geïnduceerde neurologische schade door het Wnt/Nrf2-pad36 te moduleren, en vertoont ook een anti-apoptotisch effect bij de behandeling van neurodegeneratieve aandoeningen door regulatie van het Nrf2-signaalpad37. GAS had ook een gunstig effect op AD door de hippocampale BACE1-expressie te onderdrukken via de eiwitkinase/eukaryote initiatiefactor-2α (PKR/eIF2α) signaalweg38. Bovendien vertoonde GAS remmende effecten op TCDD-geïnduceerde NF-κB-signaalactivatie, waardoor de apoptose van PC12-neuronen en astrocytenactivatie39 werd verminderd.
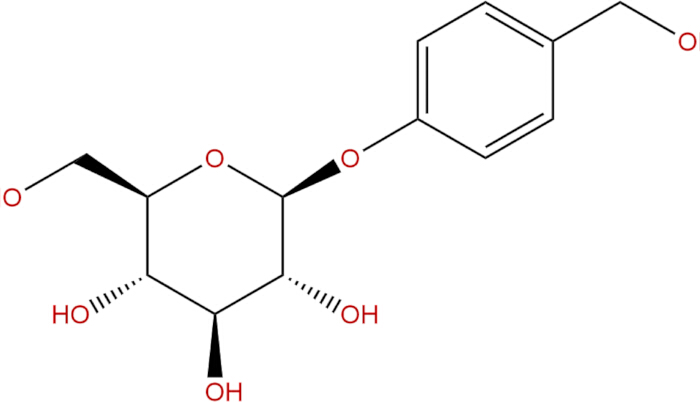
Figuur 1: Chemische structurele formule van GAS. Klik hier om een grotere versie van deze figuur te bekijken.
OA, afgeleid van de zwarte spons van het geslacht Halichondria, behoort tot een klasse van langeketenvetzuren en dient als het belangrijkste bestanddeel van Diarretisch Schelpdiervergif (DSP). Het remt effectief de activiteiten van eiwitfosfatasen, met name PP1A en PP2A, wat leidt tot cellulaire hyperfosforylering en verstoring van de cellulaire homeostase40,41. Deze eigenschap maakt het een waardevol hulpmiddel voor het onderzoeken van ziekten die samenhangen met eiwitfosforylering. Daarom maakt het gebruik van OA het mogelijk om AD-celmodellen te bouwen die veranderingen in de fosforylering van Tau-eiwitten bevatten. Deze studie heeft als doel de impact en het mechanisme van GAS, het primaire actieve bestanddeel van Gastrodia elata, op het door OA geïnduceerde AD-celmodel te onderzoeken en het neuroprotectieve effect op AD-modelcellen te verduidelijken door zich te richten op de AKT/GSK-3β signaalroute.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle netwerkfarmacologieactiviteiten werden uitgevoerd in overeenstemming met de Richtlijnen voor Netwerkfarmacologische Evaluatiemethoden. Alle experimentele procedures werden uitgevoerd in overeenstemming met de regelgeving van het laboratoriumbeheer van de Zhejiang Sci-Tech University.
Netwerkfarmacologie
Voorspelling van potentiële doelen van GAS: De canonieke SMILES of GAS (PubChem CID: 1150) werd gehaald uit de PubChem-database42. De SMILES-structuur werd geüpload naar de SwissTargetPrediction-database (http://www.swisstargetprediction.ch/)43. De soortparameter werd ingesteld op Homo sapiens. Voorspelde doelen met een kanswaarde > 0,1 werden behouden om vals-positieve voorspellingen te verminderen. Alle voorspelde eiwitdoelen werden gestandaardiseerd naar officiële gensymbolen met behulp van de UniProt-database43 (soorten beperkt tot Homo sapiens), en dubbele vermeldingen werden verwijderd.
AD-gerelateerde genen werden verzameld uit de GeneCards-database (https://www.genecards.org/)44,45 en de OIM-database (https://www.omim.org/)46, waarbij "Alzheimer's disease" als zoekterm werd gebruikt. In GeneCards werden genen met een Relevance Score > 10 geselecteerd. Doelen verkregen van GeneCards en OMIM werden samengevoegd, duplicaten verwijderd en gennamen werden gestandaardiseerd met UniProt.
De voorspelde GAS-doelen en AD-gerelateerde genen werden geïmporteerd in het online platform Venny 2.1 om overlappende doelen te verkrijgen. In totaal werden 52 kruisende genen (zie aanvullende tabel 1) geïdentificeerd als potentiële therapeutische doelwitten van GAS bij AD.
De 52 kruisende doelen werden geüpload naar de STRING-database (https://string-db.org/)47 voor PPI-analyse. De soort werd ingesteld op Homo sapiens, en de minimaal vereiste interactiescore werd ingesteld op 0,4 (medium vertrouwen). Losgekoppelde knooppunten waren verborgen. De resulterende interactiegegevens werden geëxporteerd en gevisualiseerd met Cytoscape-software (versie 3.9.1).
GO- en KEGG-verrijkingsanalyse: De 52 overlappende doelen werden geüpload naar de Metascape-database (https://metascape.org/)48 voor Gene Ontology (GO) en Kyoto Encyclopedia of Genes and Genomes (KEGG) verrijkingsanalyses. De soort werd ingesteld op Homo sapiens. De verrijkingscriteria werden gedefinieerd als p-waarde < 0,01, minimale overlap ≥ 3, en verrijkingsfactor > 1,5. KEGG-paden werden gerangschikt op p-waarde en de top 20 significant verrijkte routes werden geselecteerd voor visualisatie. Verrijkingsresultaten werden gevisualiseerd met behulp van een online bioinformaticaplatform.
Het eiwitstructuurbestand van GSK-3β is verkregen uit de RCSB PDB-database. Het structuurbestand van GAS in SDF-formaat werd gedownload uit de PubChem-database en vervolgens omgezet naar Mol2-formaat met behulp van de Open Babel GUI-software. De hierboven genoemde bestanden werden verwerkt met AutoDock-software om waterstofatomen toe te voegen, watermoleculen te verwijderen en ladingen toe te wijzen. De verwerkte bestanden werden vervolgens opgeslagen in het PDBQT-formaat. Na het detecteren en verwerken van torsiebindingen in de ligandmoleculen werden de bestanden vervolgens opgeslagen in PDBQT-formaat. De laagste bindingsenergie tussen de twee moleculen werd verkregen door moleculaire koppeling met AutoDock Vina-software. Vervolgens werden de koppelingsresultaten gevisualiseerd en geanalyseerd met behulp van PyMOL.
Bereiding van de voorraadoplossing
Het OA-poeder (25 μg) was volledig opgelost in 1200 μL 10% dimethylsulfoxide (DMSO), bereid met steriele fosfaatgebufferde zoutoplossing (PBS) om een 25 μM voorraadoplossing te genereren. De voorraadoplossing werd gealiquoteerd en opgeslagen bij -80 °C. Voor elk experiment werd OA vers verdund met complete Dulbecco's Modified Eagle Medium (DMEM) (zie Materiaaltabel) tot de gewenste werksconcentraties. GAS-poeder (20 mg) werd opgelost in 1,4 mL steriele PBS, gefilterd door een 0,22 μm membraan voor sterilisatie en bereid als een 50 mM voorraadoplossing, die werd opgeslagen bij -20 °C. Voorafgaand aan gebruik werd de voorraadoplossing verdund met volledige DMEM tot de aangegeven werksconcentraties.
Constructie van het AD-celmodel
Humane neuroblastoom SH-SY5Y-cellen werden verkregen en gebruikt in deze studie (zie Materiaaloverzicht). SH-SY5Y-cellen werden geïnduceerd met gradiëntconcentraties van OA (0, 10, 20, 40, 80, 160 nM) gedurende respectievelijk 12, 24 en 36 uur om het AD-celmodel te vestigen.
Cellevensvatbaarheidstest
Om de optimale concentratie en inductieduur van OA voor het opzetten van het AD-celmodel te bepalen, werden SH-SY5Y-cellen behandeld met gradiëntconcentraties van OA (0, 10, 20, 40, 80 en 160 nM) voor verschillende tijdsperioden (12, 24 en 36 uur), en werd de cellevensvatbaarheid geëvalueerd met behulp van CCK-8 assay49. SH-SY5Y-cellen werden in 96-wellplaten geplaatst met een dichtheid van 7,5 × 10 3-cellen per put in 100 μL volledige DMEM. Platen werden 24 uur geïncubeerd bij 37 °C in een bevochtigde broedmachine met 5% CO₂ om celhechting mogelijk te maken. Na 24 uur aanhechting werd 100 μL OA-werkoplossing aan elke put toegevoegd om uiteindelijke concentraties van 0, 10, 20, 40, 80 en 160 nM te bereiken in een totaal volume van 200 μL per put. De controlegroep (CON) ontving een gelijk volume volledige DMEM zonder OA, terwijl de OA-groep OA ontving bij de aangegeven concentraties. Cellen werden 12 uur, 24 uur of 36 uur geïncubeerd onder standaard kweekomstandigheden. Elke concentratie en tijdstip werd ingesteld met zes replicatieputten. Drie lege putten (alleen medium) werden opgenomen voor achtergrondcorrectie.
Bepaling van de cellulaire oxidatieve stressindex
De SH-SY5Y-cellen in de logaritmische groeifase werden in een 6-wellplaat gezaaid. Na celbehandeling werd het vorige medium uit de putten verwijderd. Vervolgens werden de putten drie keer gewassen met voorgekoelde PBS op 4 °C. Daarna werd een cellysebuffer toegevoegd en werden de cellen op ijs gelyseerd met de juiste methode zoals door de kit aangegeven. Het eiwitgehalte van de monsters werd gekwantificeerd met behulp van de BCA-eiwittestkit (zie Materiaaltabel). De activiteiten van T-AOC, SOD en MDA werden bepaald volgens de instructies die bij de respectievelijke assay kits werden geleverd (zie Materiaaltabel).
Celapoptosedetectie
Celapoptose werd geëvalueerd met een Annexin V-FITC/PI dubbelkleuringsset (zie Materiaaltabel) volgens de instructies van de fabrikant. Kort gezegd werden zowel zwevende als hechtende cellen verzameld. Adherente cellen werden verteerd met trypsine zonder EDTA om schade aan kunstmatige membraan te voorkomen en gecombineerd met zwevende cellen. Cellen werden twee keer gewassen met koud PBS en opnieuw gesuspendeerd in 500 μL van 1× Binding Buffer met een dichtheid van 0,5–1 × 10⁶cellen .
Vervolgens werden 5 μL Annexine V-FITC en 5 μL propidiumjodide (PI) aan elk monster toegevoegd, zachtjes gemengd en 10–20 minuten op kamertemperatuur in het donker geïncubeerd. Monsters werden op ijs gelegd en binnen 1 uur geanalyseerd met een flowcytometer.
Voor flowcytometrische analyse werden ongekleurde controles en enkelkleurige controles (alleen Annexin V-FITC en alleen PI) gebruikt om compensatieparameters en kwadrantpoorten in te stellen. Forward and side scatter (FSC/SSC) gating werd voor het eerst toegepast om puin en celaggregaten uit te sluiten. Er werden minimaal 10.000 gebeurtenissen per monster verkregen. De gegevens werden geanalyseerd met behulp van FlowJo-software.
Realtime kwantitatieve PCR-analyse (RT-qPCR)
Volgens de instructies van de AG-reverse transcriptiekit werd het geëxtraheerde RNA onderworpen aan reverse transcriptie om complementair DNA (cDNA) te genereren, dat vervolgens 10 keer werd verdund met steriel water om als sjabloon te dienen. Het RT-qPCR reactiesysteem werd voorbereid volgens het protocol van de Green Master Mix (No Rox) kit, en de analyse werd uitgevoerd met een fluorescerend kwantitatieve PCR-instrument (zie Materiaaltabel). De verkregen Ct-waarden werden verwerkt en geanalyseerd, en de expressieniveaus van doelgenen werden berekend met de 2-ΔΔCt-methode, waarbij ΔCt het verschil tussen Ct-waarden in de behandelgroep en GAPDH vertegenwoordigt, en ΔΔCt het verschil tussen ΔCt-waarden in de behandelgroep en controlegroep. De lijst met primers is te vinden in Aanvullende Tabel 2.
Westelijke blottinganalyse
De cellysebuffer, samen met een proteaseremmer en een fosfataseremmer, werd gecombineerd in een verhouding van 100:1:1. De cellen werden gelyseerd om cellulaire eiwitten te extraheren. De eiwitconcentratie werd bepaald met behulp van de BCA-assaykit. Eiwitten (20–30 μg per baan) werden gescheiden op 10% SDS-PAGE gels bij 80 V voor de stapelgel en 120 V voor de oplossende gel. Eiwitten werden 90 minuten lang overgebracht naar PVDF-membranen (0,45 μm) bij 300 mA met behulp van natte transfer. Het membraan werd 2 uur lang geblokkeerd met 5% magere melk bij kamertemperatuur, gevolgd door nachtelijke incubatie met primaire antistoffen (zie Materiaaltabel) bij 4 °C. Na 1 uur te hebben geëcubeerd met het secundaire antilichaam op kamertemperatuur, werd het membraan vier keer gewassen met TBST gedurende 5 minuten. De banden werden gevisualiseerd met behulp van verbeterde chemiluminescentie (ECL) detectiereagentia (zie Materiaaltabel), en de detectie werd uitgevoerd met een gelbeeldvormingssysteem. De grijswaardenwaarden werden geanalyseerd met ImageJ-software voor data-inzichten.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
GAS-gerelateerde doelscreening voor AD-behandeling
De identificatie van de doelen van GAS voor de behandeling van AD omvatte databasezoekopdrachten en softwareanalyse. De Swiss Target Prediction-database leverde 100 potentiële doelen op, terwijl OMIM en GeneCards (met een Relevance-score > 10) werden geraadpleegd op AD-gerelateerde doelen, wat resulteerde in een totaal van 2376 potentiële doelen. Vervolgens maakte het gebruik van het Venny 2.1 online platform het moge...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
In de afgelopen jaren is er wereldwijd een toename geweest in de prevalentie van AD. Deze aandoening wordt gekenmerkt door een chronisch verloop, onomkeerbare aard, invaliditeit en verhoogde sterftecijfers, waardoor het een aanzienlijke uitdaging vormt in de context van een vergrijzende wereldbevolking. Ondanks zijn prominente rol is de etiologie van AD ingewikkeld, en de pathogenese ervan is nog onvolledig begrepen51.
Traditionele Chin...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit onderzoek werd ondersteund door het Open Fund van de Zhejiang Sci-Tech University, Shaoxing Academy of Biomedicine (SXAB202007).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 7500 Real-Time PCR System | APExBIO | S0080 | Wordt gebruikt voor het detecteren van apoptotische cellen |
| A450 enzym labelapparaat | Proteintech | 50599-2-Ig | WB, verdunning 1:1000 |
| Annexin V-FITC apoptose detectiekit | Proteintech | 60178-1-Ig | WB, verdunning 1:1000 |
| Anti-Bax antilichaam | Proteintech | 10494-1-AP | WB, verdunning 1:1000 |
| Anti-Bcl-2 antilichaam | Abcam | ab32057 | WB, verdunning 1:1000 |
| Anti-GAPDH antilichaam | Proteintech | 28866-1-AP | WB, verdunning 1:1000 |
| Anti-p-Tau (Ser396) antilichaam | Biofroxx | 1172 | Blocking buffer voor WB |
| Anti-p-Tau (Thr181) antilichaam | Vazyme Biotech | A311-01/02 | Wordt gebruikt voor celviabiliteitsassay |
| Biofroxx skimmelkpoeder | Solarbio Science & Technology | D8371 | Oplosmiddel voor verbindingen |
| CCK-8 kit | Wisent Biotechnology | 319-105-CL | Voor celkweek |
| Dimethylsulfoxide (DMSO) | APExBIO (USA) | K1231 | WB detectie reagens |
| DMEM hoog-glucose medium | Aladdin Biochemical Technology | G111309 | Actieve verbinding |
| ECL chemiluminescentie reagens | Promega | A6101 | Voor qPCR amplificatie |
| Flow cytometer | Solarbio Science & Technology | BC6410 | Lipide peroxidatie assay |
| Gastrodine (GAS) poeder, zuiverheid ≥98% | MedChemExpress | HY-N6785 | Inductor van tau hyperfosforylering |
| Gel beeldvormingssysteem | Beyotime Biotechnology | C0221A | Was de cellen |
| GoTaq qPCR Master Mix | Proteintech | SA00001-1 | WB, verdunning 1:5000 |
| MDA assay kit (malondialdehyde) | Proteintech | SA00001-2 | WB, verdunning 1:5000 |
| Okadaazuur (OA) | ATCC | CRL-2266 | Cel |
| PBS | Beyotime Biotechnology | S0101M | Voor oxidatieve stress assay |
| Secundair antilichaam (Geit anti-muis IgG, HRP-geconjugeerd) | Solarbio Science & Technology | BC1315 | Antioxidant capaciteitsdetectie |
| Secundair antilichaam (Geit anti-konijn IgG, HRP-geconjugeerd) | Beyotime Biotechnology | R0016 | RNA extractie |
| SH-SY5Y | Sigma-Aldrich | 9002-07-7 | Celdigestie |
| SOD assay kit (totale superoxide dismutase) | Thermo Fisher Scientific | A45072 | Multifunctionele microplaatlezer voor absorptiedetectie |
| Totale antioxidant capaciteit (T-AOC) kit | Becton, Dickinson and Company | 661310 | Voor multi-parameter single-celanalyse en celsortering. |
| Trizol reagens | Thermo Fisher Scientific | 4351104 | genexpressieanalyse |
| Trypsine | Bio Rad | 1708195 | DNA/RNA/eiwit gel beeldvorming |
Referenties
- Hu, X., Wang, T., Jin, F. Alzheimer's disease and gut microbiota. Sci China Life Sci. 59 (10), 1006-1023 (2016).
- Qiu, C., Du, Y. A call for action to strengthen research on population interventions against Alzheimer's disease and senile dementia. J Shandong Univ Health Sci. 55 (10), 1-6 (2017).
- Livingston, G., et al. Dementia prevention, intervention,and care: 2020 report of the Lancet Commission. Lancet. 396 (10248), 413-446 (2020).
- Li, T. F., Guo, Z. Q., Wang, Y. Abnormal ß-amyloid metabolism and Alzheimer disease. J Neurosci Ment Health. 22 (12), 904-908 (2022).
- Zheng, J., et al. Oral administration of a fusion protein between the cholera toxin B subunit and the 42-amino acid isoform of amyloid-β peptide produced in silkworm pupae protects against Alzheimer's disease in mice. PLoS One. 9 (12), e113585(2014).
- La Spada, A. R., et al. A Becn1 mutation mediates hyperactive autophagic sequestration of amyloid oligomers and improved cognition in Alzheimer's disease. PLoS Genet. 13 (8), e1006962(2017).
- Aboelwafa, H. R., El-Kott, A. F., Abd-Ella, E. M., Yousef, H. N. The possible neuroprotective effect of silymarin against aluminum chloride-prompted Alzheimer's-like disease in rats. Brain Sci. 10 (9), 628(2020).
- Tobore, T. O. On the central role of mitochondria dysfunction and oxidative stress in Alzheimer's disease. Neurol Sci. 40 (8), 1527-1540 (2019).
- Kawamoto, E. M., et al. Oxidative state in platelets and erythrocytes in aging and Alzheimer's disease. Neurobiol Aging. 26 (6), 857-864 (2005).
- Stancu, I. C., et al. Aggregated Tau activates NLRP3–ASC inflammasome exacerbating exogenously seeded and non-exogenously seeded Tau pathology in vivo. Acta Neuropathol. 137 (4), 599-617 (2019).
- Connolly, K., et al. Potential role of chitinase-3-like protein 1 (CHI3L1/YKL-40) in neurodegeneration and Alzheimer's disease. Alzheimers Dement. 19 (1), 9-24 (2022).
- Yingquan, W., Jing-Hong, L., Ruixia, J. Alzheimer disease in China (2015-2050) estimated using the 1% population sampling survey in 2015. China J Alzheimers Dis Relat Disord. 2 (1), 289-298 (2019).
- Amat-Ur-Rasool, H., Ahmed, M., Hasnain, S., Carter, W. G. Anti-cholinesterase combination drug therapy as a potential treatment for Alzheimer's disease. Brain Sci. 11 (2), 184(2021).
- Cummings, J., Lee, G., Mortsdorf, T., Ritter, A., Zhong, K. Alzheimer's disease drug development pipeline: 2017. Alzheimers Dement (N Y). 3 (3), 367-384 (2017).
- Birks, J. S., Harvey, R. J. Donepezil for dementia due to Alzheimer's disease. Cochrane Database Syst Rev. 6 (6), CD001190(2018).
- Knopman, D. S., et al. Alzheimer's disease. Nat Rev Dis Primers. 7 (1), 33(2021).
- Silva, T., Reis, J., Teixeira, J., Borges, F. Alzheimer's disease, enzyme targets and drug discovery struggles: from natural products to drug prototypes. Ageing Res Rev. 15, 116-145 (2014).
- Liu, X., Yi, W., Xi, B., Dai, Q., Lu, L. Identification of drug-disease associations using a random walk with restart method and supervised learning. Comput Math Methods Med. 2022 (1), 7035634(2022).
- Yu, N., et al. Ganoderma lucidum triterpenoids (GLTs) reduce neuronal apoptosis via inhibition of ROCK signal pathway in APP/PS1 transgenic Alzheimer's disease mice. Oxid Med Cell Longev. 2020 (1), 1-11 (2020).
- Bao, M., et al. Astragaloside IV against Alzheimer's disease via microglia-mediated neuroinflammation using network pharmacology and experimental validation. Eur J Pharmacol. 957, 175992(2023).
- Dartigues, J. F., et al. Ginkgo biloba extract consumption and long-term occurrence of death and dementia. J Prev Alzheimers Dis. 4 (1), 16-20 (2017).
- Savaskan, E., Mueller, H., Hoerr, R., von Gunten, A., Gauthier, S. Treatment effects of Ginkgo biloba extract EGb 761® on the spectrum of behavioral and psychological symptoms of dementia: meta-analysis of randomized controlled trials. Int Psychogeriatr. 30 (3), 285-293 (2017).
- Wang, D., Liu, W., Lu, M., Xu, Q. Neuropharmacological effects of Gastrodia elata Blume and its active ingredients. Front Neurol. 16, 1574277(2025).
- El Menyiy, N., et al. Chemistry, biological activities,and pharmacological properties of gastrodin: mechanism insights. Chem Biodivers. 21 (6), e202400402(2024).
- Yu, H., et al. Research progress on classification of chemical constituents from Gastrodia elata and their pharmacological effects. Chin Tradit Herbal Drugs. 53, 5553-5562 (2022).
- Tang, C., et al. Comparative pharmacokinetics of gastrodin in rats after intragastric administration of free gastrodin, parishin and Gastrodia elata extract. J Ethnopharmacol. 176, 49-54 (2015).
- Fu, X., et al. Antioxidation effects and mechanism of gastrodin in AD rat models. Acta Anat Sin. 41 (4), 485-490 (2010).
- Shi, R., et al. Gastrodin alleviates vascular dementia in a 2-VO vascular dementia rat model by altering amyloid and Tau levels. Pharmacology. 105 (7-8), 386-396 (2020).
- Fasina, O. B., et al. Gastrodin from Gastrodia elata enhances cognitive function and neuroprotection of AD mice via the regulation of gut microbiota composition and inhibition of neuron inflammation. Front Pharmacol. 13, 814271(2022).
- Zheng, Q., et al. MicroRNA-452 promotes tumorigenesis in hepatocellular carcinoma by targeting cyclin-dependent kinase inhibitor 1B. Mol Cell Biochem. 389 (1-2), 187-195 (2014).
- Yan, J., Yang, Z., Zhao, N., Li, Z., Cao, X. Gastrodin protects dopaminergic neurons via insulin-like pathway in a Parkinson's disease model. BMC Neurosci. 20 (1), 31(2019).
- Xiao, H., et al. Gastrodin promotes hippocampal neurogenesis via PDE9-cGMP-PKG pathway in mice following cerebral ischemia. Neurochem Int. 150, 105171(2021).
- Liu, Y., et al. A review on central nervous system effects of gastrodin. Front Pharmacol. 9, 24(2018).
- Fu, J., et al. Gastrodia elata specific miRNA attenuates neuroinflammation via modulating NF-κB signaling pathway. Int J Neurosci. 134 (12), 1652-1662 (2023).
- Wang, Y., et al. Gastrodin: a comprehensive pharmacological review. Naunyn Schmiedebergs Arch Pharmacol. 397 (6), 3781-3802 (2024).
- Liu, C. M., et al. Effects of gastrodin against lead-induced brain injury in mice associated with the Wnt/Nrf2 pathway. Nutrients. 12 (6), 1805(2020).
- De Oliveira, M. R., Brasil, F. B., Fürstenau, C. R. Nrf2 mediates the anti-apoptotic and anti-inflammatory effects induced by gastrodin in hydrogen peroxide-treated SH-SY5Y cells. J Mol Neurosci. 69 (1), 115-122 (2019).
- Zhang, J. S., et al. Gastrodin suppresses BACE1 expression under oxidative stress condition via inhibition of the PKR/eIF2α pathway in Alzheimer's disease. Neuroscience. 325, 1-9 (2016).
- Jiao, M., et al. Effect of the SSeCKS–TRAF6 interaction on gastrodin-mediated protection against 2,3,7,8-tetrachlorodibenzo-p-dioxin-induced astrocyte activation and neuronal death. Chemosphere. 226, 678-686 (2019).
- Cohen, P., Holmes, C. F., Tsukitani, Y. Okadaic acid: a new probe for the study of cellular regulation. Trends Biochem Sci. 15 (3), 98-102 (1990).
- Qin, Y., et al. Okadaic acid detection through a rapid and sensitive amplified luminescent proximity homogeneous assay. Toxins (Basel). 15 (8), 501(2023).
- Kim, S., et al. PubChem 2023 update. Nucleic Acids Res. 51 (D1), D1373-D1380 (2022).
- Daina, A., Michielin, O., Zoete, V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 47 (W1), W357-W364 (2019).
- Stelzer, G., et al. The GeneCards suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54 (1), 1.30.31-1.30.33 (2016).
- Safran, M., et al. Practical guide to life science databases. , Springer Nature. Singapore. (2021).
- Amberger, J. S., Bocchini, C. A., Schiettecatte, F., Scott, A. F., Hamosh, A. OMIM.org: Online Mendelian Inheritance in Man (OMIM®), an online catalog of human genes and genetic disorders. Nucleic Acids Res. 43 (D1), D789-D798 (2014).
- Szklarczyk, D., et al. The STRING database in 2021: customizable protein–protein networks,and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 49 (D1), D605-D612 (2020).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Tominaga, H., et al. A water-soluble tetrazolium salt useful for colorimetric cell viability assay. Anal Commun. 36 (2), 47-50 (1999).
- Ton, A. M. M., et al. Oxidative stress and dementia in Alzheimer's patients: effects of synbiotic supplementation. Oxid Med Cell Longev. 2020 (1), 2638703(2020).
- Roth, K. A. Caspases, apoptosis,and Alzheimer disease: causation,correlation,and confusion. J Neuropathol Exp Neurol. 60 (9), 829-838 (2001).
- Cheng, M., et al. The effects of Porphyromonas gingivalis on the apoptosis of hippocampal cells in Sprague-Dawley rats and its underlying mechanisms. Int J Clin Exp Med. 13 (1), 300-309 (2020).
- Liu, H., et al. Development of chemical fingerprints for quality control of Xiong Ma Tang and its related preparations by high-performance liquid chromatography. J Chromatogr Sci. 54 (2), 206-215 (2016).
- Liu, S. J., et al. Gastrodin attenuates microglia activation through renin-angiotensin system and Sirtuin3 pathway. Neurochem Int. 120, 49-63 (2018).
- Hu, Y., Li, C., Shen, W. Gastrodin alleviates memory deficits and reduces neuropathology in a mouse model of Alzheimer's disease. Neuropathology. 34 (4), 370-377 (2014).
- Liu, J., et al. Systems pharmacology uncovers the multiple mechanisms of Xijiao Dihuang decoction for the treatment of viral hemorrhagic fever. Evid Based Complement Alternat Med. 2016 (1), 9025036(2016).
- Ran, B., et al. Drug-drug interactions prediction using fingerprint only. Comput Math Methods Med. 2022 (1), 7818480(2022).
- Sharma, V. K., Singh, T. G., Singh, S., Garg, N., Dhiman, S. Apoptotic pathways and Alzheimer's disease: probing therapeutic potential. Neurochem Res. 46 (12), 3103-3122 (2021).
- Zhou, W., Gao, Y., Xu, S., Yang, Z., Xu, T. Purification of a mannose-binding lectin Pinellia ternata agglutinin and its induction of apoptosis in Bel-7404 cells. Protein Expr Purif. 93, 11-17 (2014).
- Goedert, M., Spillantini, M. G., Jakes, R., Rutherford, D., Crowther, R. Multiple isoforms of human microtubule-associated protein tau: sequences and localization in neurofibrillary tangles of Alzheimer's disease. Neuron. 3 (4), 519-526 (1989).
- Hernández, F., Gómez De Barreda, E., Fuster-Matanzo, A., Lucas, J. J., Avila, J. GSK3: a possible link between beta amyloid peptide and tau protein. Exp Neurol. 223 (2), 322-325 (2010).
- Lu, Z., et al. Neuroprotection and mechanism of Gas-miR36-5p from Gastrodia elata in an Alzheimer's disease model by regulating glycogen synthase kinase-3β. Int J Mol Sci. 24 (24), 17295(2023).
- Vossel, K. A., et al. Tau reduction prevents Aβ-induced axonal transport deficits by blocking activation of GSK3β. J Cell Biol. 209 (3), 419-433 (2015).
- Singh, A. K., et al. Berberine: a plant-derived alkaloid with therapeutic potential to combat Alzheimer's disease. CNS Agents Med Chem. 19 (3), 154-170 (2019).
- Belsare, K. D., et al. Soluble TREM2 inhibits secondary nucleation of Aβ fibrillization and enhances cellular uptake of fibrillar Aβ. Proc Natl Acad Sci U S A. 119 (5), e2114486119(2022).
- Matsuda, S., et al. Roles of PI3K/AKT/GSK3 pathway involved in psychiatric illnesses. Diseases. 7 (1), 22(2019).
- Pan, S., et al. Oleanolic acid derivatives induce apoptosis in human leukemia K562 cell involved in inhibition of both Akt1 translocation and pAkt1 expression. Cytotechnology. 67 (5), 821-829 (2014).
- Zhou, F., et al. Network pharmacology-based strategy to investigate pharmacological mechanisms of Tinospora sinensis for treatment of Alzheimer's disease. J Ethnopharmacol. 259, 112940(2020).
- Liu, Z., Wang, Z. Protein tyrosine kinase 2 regulates tau phosphorylation through PI3K/AKT/Gsk3β signaling pathway. Labeled Immunoassays Clin Med. 29 (3), 464-470 (2022).
- Cope, P. J., Ourradi, K., Li, Y., Sharif, M. Models of osteoarthritis: the good, the bad and the promising. Osteoarthritis Cartilage. 27 (2), 230-239 (2019).
- Wang, X., Blanchard, J., Tung, Y. C., Grundke-Iqbal, I., Iqbal, K. Inhibition of protein phosphatase-2A (PP2A) by I1PP2A leads to hyperphosphorylation of tau, neurodegeneration,and cognitive impairment in rats. J Alzheimers Dis. 45 (2), 423-435 (2015).
- Liu, T. T., et al. Gastrodin alleviates Aβ25-35-induced glycolytic dysfunction via activating PI3K/AKT/BACH1 signaling in Alzheimer's disease models. Exp Neurol. 389, 115225(2025).
- Zuo, H. J., et al. Gastrodin regulates PI3K/AKT-Sirt3 signaling pathway and proinflammatory mediators in activated microglia. Mol Neurobiol. 61 (5), 2728-2744 (2024).
- Wang, Y. P., Mandelkow, E. Tau in physiology and pathology. Nat Rev Neurosci. 17, 22-35 (2015).
- Pardridge, W. M. Drug transport across the blood–brain barrier. J Cereb Blood Flow Metab. 32 (11), 1959-1972 (2012).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.