Dit protocol biedt een uitgebreide beschrijving van een methode voor het gelijktijdig registreren van calciumsignalen van neuronen en astrocyten over meerdere geheugengerelateerde hersengebieden en demonstreert de toepassing ervan tijdens een leer- en geheugengedragsparadigma.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Een tweekleurige vezelfotometriemethode voor het registreren van activiteit van astrocytenneuronen over meerdere hersengebieden tijdens leer- en geheugengedrag
In dit artikel
Samenvatting
Samenvatting
Leren en geheugen zijn cruciaal afhankelijk van de coördinatie tussen neuronen en astrocyten over verspreide hersengebieden. Astrocyten moduleren synaptische transmissie en neuronale prikkelbaarheid, en dragen zo bij aan het coderen en consolideren van informatie binnen geheugengerelateerde circuits. De intra- en interregionale correlaties tussen astrocyten en neuronen zijn cruciaal voor het begrijpen van geheugen- en cognitieve stoornissen. Echter, gelijktijdige monitoring van astrocytische en neuronale activiteit over meerdere regio's tijdens geheugengedrag blijft technisch uitdagend. Hier wordt een methode gepresenteerd die het gelijktijdige opnemen van deze calciumsignalen van astrocyten en neuronen in verschillende geheugengerelateerde gebieden faciliteert. Deze strategie combineert celtype-specifieke tweekleurige genetisch gecodeerde calciumindicatoren (GECI's), een multikanaals vezelfotometriesysteem en gesynchroniseerde gedragstracking om realtime monitoring te bereiken van neuronale en astrocytische activiteit in de mediale prefrontale cortex (mPFC), hippocampale CA1-regio en mediale entorhinale cortex (MEC). Representatieve resultaten tonen gecoördineerde calciumdynamica aan tussen regio's en celtypen tijdens de objectherkenningstaak. Deze methode biedt een reproduceerbaar en efficiënt experimenteel kader voor het onderzoeken van astrocyt-neuroninteracties die ten grondslag liggen aan leer- en geheugenprocessen.
Inleiding
Leren en geheugen zijn fundamentele cognitieve processen die het verwerven, opslaan en ophalen van informatie omvatten, wat cruciaal is voor de vorming van adaptief gedrag. Deze processen vormen de basis voor een verscheidenheid aan complexe functies, zoals ruimtelijke navigatie, objectherkenning, contextuele associatie en besluitvorming. Daarnaast vertonen cognitieve disfunctionele ziekten, waaronder de ziekte van Alzheimer, leeftijdsgerelateerde cognitieve ziekten en traumatisch hersenletsel, afwijkingen in geheugenvorming 1,2,3. Daarom vereist een volledig begrip van de neurale basis van leren en geheugen het verduidelijken van de dynamische wisselwerking tussen verschillende celtypen. Deze wisselwerking vindt plaats binnen en tussen deze regio's tijdens het coderen en ophalen van informatie.
Traditioneel werd gedacht dat geheugenvorming voornamelijk werd bepaald door neuronale activiteit. Uitgebreid onderzoek heeft echter aangetoond dat astrocyten informatiecodering, consolidatie en opvraging aanzienlijk reguleren. Ze bereiken dit door synaptische transmissie te moduleren, neuronale prikkelbaarheid te reguleren, gliotransmitters vrij te geven en metabole ondersteuningte bieden 4,5,6,7,8. Astrocyten interageren dynamisch met neuronen, en de bidirectionele communicatie wordt gezamenlijk aangeduid als het "astrocyt-neuron netwerk"9,10,11. Daarom is het begrijpen van de gecoördineerde interacties tussen astrocyten en neuronen cruciaal om de cellulaire en netwerkmechanismen van leren en geheugen te begrijpen.
Leren en geheugen zijn afhankelijk van de dynamische integratie van informatie over meerdere hersengebieden. De interacties tussen astrocyten en neuronen zijn niet beperkt tot lokale microcircuits, maar strekken zich uit over verspreide hersengebieden die betrokken zijn bij het geheugen, waaronder de mediale prefrontale cortex (mPFC), de hippocampusale CA1-regio en de mediale entorhinale cortex (MEC). De mPFC is betrokken bij geheugenconsolidatie en regulatie van het langetermijngeheugen; CA1 is centraal voor het coderen en heractiveren van episodisch geheugen; en MEC dient als een knooppunt voor ruimtelijke en multimodale informatie-integratie, en levert essentiële input aan het hippocampale–corticale circuit 12,13,14,15,16. Steeds meer bewijs suggereert dat astrocyten in deze regio's deelnemen aan gecoördineerde cross-regionale dynamiek met neuronen, en een sleutelrol spelen in informatiestroom en toestandsovergangen tijdens leren en geheugen17,18.
Hoewel het herkennen van de synergetische functie van astrocyten en neuronen in geheugenverwerking is toegenomen, blijft er een belangrijke technische uitdaging bestaan in het gelijktijdig monitoren van calciumactiviteit in zowel astrocyten als neuronen over meerdere geheugen-geassocieerde hersengebieden tijdens het gedrag van vrij bewegende dieren. Twee-fotonbeeldvorming biedt beeldvorming met hoge ruimtelijke resolutie, maar wordt beperkt door diepte en kopfixatie19,20; Multikanaals elektrofysiologie maakt opnames met hoge temporele resolutie mogelijk, maar mist celtypespecificiteit en kan astrocytische calciumsignalen niet onderscheiden. Daarom werd een methode ontwikkeld die gelijktijdige opname van astrocytische en neuronale calciumsignalen mogelijk maakt over meerdere geheugengerelateerde hersengebieden in vrij bewegende muizen. Genetisch gecodeerde calciumindicatoren (GECI's) rapporteren intracellulaire Ca2+-dynamiek via Ca2+-afhankelijke conformationele veranderingen in CaM/M13 die de fluorescentie van genetisch gecodeerde fluoroforen moduleren. Tweekleurige GECI-benaderingen maken gebruik van spectraal scheidbare indicatoren, zoals groene en rode calciumsensoren, samen met celtype-specifieke promotoren om gelijktijdige registratie van astrocytische en neuronale Ca2+-activiteit binnen hetzelfde hersengebied mogelijk te maken. Door celtype-specifieke tweekleurige GECI's (GCaMP6f en jRGECO1a) en een multikanaals vezelfotometriesysteem te combineren, is realtime monitoring van calciumactiviteit in neuronen en astrocyten in mPFC, CA1 en MEC bereikt. Bovendien zijn, als voorbeeld van de nieuwe objectherkenningstaak (NOR), gecoördineerde calciumdynamiek tussen hersengebieden en celtypen in leertaken aangetoond. Deze methode is een reproduceerbaar, betrouwbaar en schaalbaar protocol voor het onderzoeken van astrocyt-neuron ensemble-activiteit over hersengebieden tijdens leren en geheugen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle dierproeven werden goedgekeurd door de Commissie voor Dierenverzorging en Gebruik van de Derde Militaire Medische Universiteit (Animal Ethics Approval Nr.: AMUWEC20230126) en werden uitgevoerd in overeenstemming met de Derde Militaire Medische Universiteit Gids voor de Verzorging en het Gebruik van Laboratoriumdieren om de ethische behandeling van dieren te waarborgen. De reagentia en de gebruikte apparatuur worden vermeld in de Materiaaltabel.
Om de veiligheid van de onderzoeker te waarborgen, werden alle experimentele procedures met levende dieren en virale vectoren uitgevoerd terwijl ze beschermende kleding, steriele handschoenen en een masker droegen. Alle instrumenten werden grondig gesteriliseerd voor gebruik, en experimentele oppervlakken werden voor en na elk experiment met 70% ethanol gereinigd. De resterende materialen werden afgevoerd volgens de institutionele afvalverwerkingsregels. Alle reagentia en apparatuur werden gebruikt om direct contact met huid of ogen te vermijden.
1. Diervoorbereiding en virale omgang
- Huisvest 4 maanden oude C57BL/6 muizen (beide geslachten) in een licht/donker cyclus van 12 uur met ad libitum toegang tot voedsel en water.
- Ontdooi-aliquoten van AAV5-GfaABC1D-GCaMP6f of AAV9-hSyn-jRGECO1a op ijs bij 0–4 °C direct voor gebruik.
- Verbind een getrokken glazen micropipet (tipdiameter 15–25 μm) op een spuit en monteer deze op een microinjectiepomp.
- Plaats de muis op een steriel chirurgisch platform en desinfecteer alle instrumenten met 70% ethanol.
2. Stereotaxische virale injectie
OPMERKING: In deze studie werd een tweestapsstrategie voor virusinjectie gebruikt. Onder de huidige experimentele omstandigheden kan deze strategie betrouwbaar en stabiel worden toegepast, en het resulterende expressiepatroon is consistent met het verwachte celtype-specifieke promotorprofiel.
- Eerste operatie: AAV5-GfaABC1D-GCaMP6f (Titer: 7 × 10¹² vg/mL) injectie voor astrocyten
- Induceer anesthesie met 3% isofluraan in een kamer, en handhaaf daarna de anesthesie met 0,8%–1,2% isofluraan via een neuskegel (volgens institutioneel goedgekeurde protocollen).
- Houd de lichaamstemperatuur op 37–38 °C met een warmtekussen en breng oogzalf aan om uitdroging van het hoornvlies te voorkomen.
- Verwijder het hoofdhaarhaar en desinfecteer de huid grondig. Maak een middenlijnincisie om het schedeloppervlak te onthullen.
- Plaats het hoofd in het stereotaxische instrument, stel de bregma- en lambda-hechtingen aan op hetzelfde horizontale vlak en pas het frame verder aan zodat de punten 2 mm lateraal ten opzichte van de bregma aan beide zijden waterpas zijn.
- Identificeer stereotaxische coördinaten met behulp van een muishersenatlas, met bregma als referentiepunt.
mPFC: AP +1,8 mm, ML +0,3 mm, DV −3,0 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,2 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −2,0 mm - Boor een cirkelvormige craniotomie van 0,6 mm (diameter) boven elke plek, houd de dura mater vochtig en intact nadat je de schedel hebt geopend.
- Vul het GCaMP6f-virus in de spuit met 5 nL/s en plaats de spuit in de stereotaxische arm.
- Laat de pipet langzaam zakken, injecteer 150 nL bij 0,6 nL/s, houd het 8 minuten vast en trek dan terug bij 0,1 mm/s. Herhaal deze procedure voor alle regio's.
- Sluit de incisie af met weefsellijm en laat 2 weken de viale expressie toe.
- Secundaire chirurgie: AAV9-hSyn-jRGECO1a (Titer: 1 × 10¹³ vg/mL) injectie voor neuronen.
OPMERKING: De operatie werd 14 dagen na de eerste virusinjectie uitgevoerd.- Induceer en handhaaf de anesthesie zoals hierboven beschreven (Stap 2.1.1).
- Houd de lichaamstemperatuur en bescherm de ogen.
- Open de hoofdhuid opnieuw langs de middenlijn en maak de schedel gelijk.
OPMERKING: De schedel werd waterpas gemaakt door de bregma en lambda in hetzelfde horizontale vlak uit te lijnen. - Verwijder weefselresten op dezelfde plekken als de craniotomievensters van de eerste operatie, waardoor de dura mater intact blootligt.
- Pas coördinaten aan met bregma als referentiepunt, voer injecties strikt uit op dezelfde coördinaten en dieptes als eerder beschreven.
- Vul het jRGECO1a-virus op 5 nL/s en plaats de spuit.
- Injecteer 150 nL bij 0,6 nL/s, houd het 8 minuten vast en trek langzaam terug. Herhaal deze procedure voor alle regio's en laat 3 weken de tijd voor virale expressie.
3. Multi-site vezelfotometrie-probe implantatie
OPMERKING: Voer direct na de injectie uit na jRGECO1a.
- Installeer de optische vezelferrule in een stereotaxische houder.
- Plaats de vezel (1,25 mm ferrule, 200 μm kern, NA 0,39) 100–150 μm boven de virale injectiediepte:
mPFC: AP +1,8 mm, ML +0,3 mm, DV −2,9 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,1 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −1,9 mm - Sluit de craniotomie af met weefsellijm en bevestig de ferrule met tandcement.
4. Multikanaals vezelfotometrie-opname
OPMERKING: Om een stabiele en volledige expressie van de twee calciumindicatoren te waarborgen, werd drie weken na de tweede virusinjectie multikanaals glasvezelfotometrie uitgevoerd voor opname.
- Wenne de muizen aan het vezelsysteem en de arena één keer per dag gedurende drie dagen.
- Na 3 weken virale expressie verdoof je de muis kort met 3% isofluran.
- Verbind één uiteinde van de gebundelde optische vezel met het vezelfotometrie-acquisitiesysteem.
- Stel het excitatielicht in op twee golflengten: 470 nm en 560 nm.
- Stel de acquisitiefrequentie in op 30 Hz.
- Verbind de drie takken aan het andere uiteinde van de gebundelde vezel met drie hersengebieden: Kanaal 1 naar mPFC, Kanaal 2 naar CA1, Kanaal 3 naar MEC.
- Plaats de muizen in een open ruimte met een zijlengte van 50 cm en laat vrije verkenning toe.
- Na 10 minuten koppel je de vezel los en breng je de muizen terug naar hun huiskooien.
- Vezelfotometrie-opname tijdens de Nieuwe Objectherkenningstaak
OPMERKING: Maak het platform en de objecten schoon met 75% ethanol voor elke proef.- Plaats twee identieke objecten in diagonaal tegenovergestelde kwadranten.
- Verbind de vezelbundel in een licht verdoofde toestand.
- Laat de muizen 10 minuten voorwerpen verkennen en zet ze daarna terug in huiskooien zonder de vezels te verwijderen.
- Voer vezelfotometrie-opname uit tijdens de nieuwe objectherkenningstest bij muizen.
OPMERKING: Sluit de proef uit als de bewegingsartefacten te veel zijn voor stabiele opnamegegevens.- Stel stimulatielasers aan:
470 nm voor GCaMP6f (astrocyten)
560 nm voor jRGECO1a (neuronen) - Neem calciumsignalen op bij 30 Hz, gesynchroniseerd met videotracking bij 30 Hz. Plaats een laserdiode binnen het videoframe (buiten het gezichtsveld van de muis) bij het starten van de opname om als temporele marker te dienen.
- Tien minuten na de leerfase vervang je één object door een nieuw object en plaats je de muis terug voor 10 minuten verkennen tijdens het opnemen.
- Koppel de vezel los met keramische ferrule en breng de muizen terug naar de kooien.
- Stel stimulatielasers aan:
5. Gegevensverwerking en analyse
OPMERKING: Classificeer een Ca2⁺ transiënt in vezelfotometrie-opnames als een echt signaal alleen als de amplitude drie keer de standaardafwijking van de ruisband 21,22,23 overschrijdt. Novel Object Recognition Test (NORT) Protocol24:D efine objectinteracties als gebeurtenissen waarbij muizen fysiek contact maken met het object, hetzij door erin te prikken of eraan te snuffelen met hun neus. Voor signaalkwantificatie definieer je de basislijn als het gemiddelde signaal tijdens het -2 tot -1 s-venster (relatief tot het begin van de interactie bij t=0). Stel het peri-event analysevenster in op 2 seconden voor tot 4 seconden na het starten van elke objectinteractie, volgens vastgestelde protocollen.
- Importeer fluorescentiesporen in analysesoftware.
OPMERKING: Fluorescentiesignaalverwerking werd uitgevoerd met behulp van gepatenteerde analysesoftware volgens standaard vezelfotometrieworkflows. De software zelf is niet open source en kan niet gedeeld worden. Voor algemene methodologische overwegingen met betrekking tot signaalverwerking van vezelfotometrie, zie recente methodologierapporten25. - Voer baselinecorrectie uit en lijn calciumsignalen uit op het begin van de NOR-taak met behulp van gesynchroniseerde video.
- Zet ΔF/F om naar Z-scores voor interregionale en dubbelkleurvergelijkingen9:
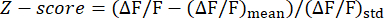
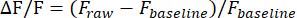
OPMERKING:
(ΔF/F)gemiddelde: gemiddelde van ΔF/F.
(ΔF/F)STD: standaarddeviatie van ΔF/F.
Fraw: rauwe fluorescentie-intensiteit.
Fbaseline: baseline fluorescentieintensiteit (gemiddelde over vooraf gedefinieerde baselineperiode). - Kwantificeer metrieken zoals oppervlakte onder de kromme (AUC) voor astrocyten- en neuronale calciumresponsen tijdens nieuwe versus vertrouwde objectverkenning.
6. Histologische verificatie na registratie
- Verdoof de muis met een overdosis pentobarbital totdat volledig verlies van reflexen is bevestigd.
- Voer transcardiale perfusie uit met normale zoutoplossing, gevolgd door 4% paraformaldehyde (PFA).
- Ontleed de hersenen zorgvuldig en fixeer deze na de opname van 4% PFA bij 4 °C gedurende 12–24 uur.
- Breng de hersenen over naar 30% sucrose in PBS bij 4 °C totdat het weefsel zinkt voor cryobescherming.
- Inbed de hersenen in een optimale snijtemperatuurverbinding, vries het in en snijd coronale secties (40 μm dikte) met een cryostaat.
- Voer immunofluorescentiekleuring uit om de virale expressie en de plaatsing van de vezels te verifiëren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Op basis van het hierboven beschreven protocol werd dual-color multi-site fiberopname uitgevoerd gericht op de mPFC, CA1 en MEC van 4 maanden oude C57-muizen. In deze studie hebben we een tweestapsstrategie voor virale injectie geïmplementeerd om de twee indicatoren sequentieel te introduceren. Onder onze experimentele omstandigheden kan deze strategie betrouwbaar en stabiel worden toegepast, en het resulterende expressiepatroon is consistent met het verwachte celtype-specifieke promotor...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
In deze studie werd een methode ontwikkeld voor het gelijktijdig registreren van astrocytische en neuronale calciumactiviteit in meerdere geheugenrelevante hersengebieden van muizen tijdens leer- en geheugengerelateerd gedrag. In tegenstelling tot single-region imaging28 of elektrofysiologische technieken, legt multiregio synchrone opname gecoördineerde dynamiek vast over gedistribueerde geheugennetwerken, waarmee het een krachtig hulpmiddel is voor het onderzoeke...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Er worden geen belangenconflicten, financieel of anderszins, door de auteurs verklaard.
Dankbetuigingen
Mevrouw Jia Lou wordt erkend voor technische assistentie, en Sai Te Xin Si (AI-tool) wordt erkend voor taalbewerking. Dit werk kreeg steun van de National Natural Science Foundation of China (subsidie nr. 82371485, 82588301, 32400932) en de Natural Science Foundation van Chongqing, China (subsidie nr. CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Verbindt met micropipette voor virale injectie |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Astrocyten-specifieke GCaMP6f expressie |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Neuron-specifieke roodverschoven calciumindicator |
| Bepanthen Eye and Nasal Ointment | Bepanthen | MA0008 | Voorkomt droging van het hoornvlies |
| Gebundelde optische vezels met keramische hulzen | Inper | BFO-1x3-W1.25 | Verbindt geïmplanteerde vezels met het fotometriesysteem |
| Camera | Mind Vision | MV-SUA502C-T | Gedragsvideo's gesynchroniseerd met calciumsignalen |
| Tandcement | NISSIN | Super-Bond C&B | Wordt gebruikt om ferrules op de schedel te bevestigen |
| Ferrulehouder | Inper | SCH-1.25 | Houdt de keramische ferrule stevig vast tijdens implantatie |
| Isofluraannyalveer & Anesthesiesysteem | RWD Life Science | R510-29 | Voor anesthesie-inductie en onderhoud |
| Multikanaals fiberfotometriesysteem | RWD Life Science | R821 | Voor opname in twee kleuren |
| OFRS-software | RWD Life Science | Analyseert opgenomen calciumsignalen | |
| Optische vezels | RWD Life Science | R-FOC-BL200C-39N | Geïmplanteerd in het doelbreingebied |
| Stereotactisch instrument | RWD Life Science | 68801 | Gebruikt voor nauwkeurige virale injectie en vezelimplantatie |
| Spuitpomp | KD Scientific | 788130 | Brengt virus aan met gecontroleerde snelheden |
| Weefsellijm | 3M Animal Care Products | 1469SB Vetbond | Voor het sluiten van incisies |
Referenties
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
