Dit protocol biedt een gestandaardiseerde, high-throughput verbindingsscreeningsmethode waarbij in vivo zebravissen worden gebruikt om dopaminerge neuronverlies en bewegingsgedragsproblemen te kwantificeren, waardoor efficiënte screening van neuroprotectieve verbindingen mogelijk is.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
In vivo fenotypering van dopaminerge neurodegeneratie in zebravislarven met behulp van gedragsanalyse en beeldvorming met hoge inhoud
In dit artikel
Samenvatting
Samenvatting
Onderzoek naar geneesmiddelenontdekking in neurodegeneratie wordt beperkt door de hoge kosten en lage doorvoer van traditionele zoogdiermodellen. Deze bottleneck wordt vooral waargenomen in onderzoek naar de ziekte van Parkinson, waar rigoureuze en schaalbare dopaminerge (DA) neurodegeneratiestudies traag en resource-intensief zijn. Om deze kloof te dichten, presenteren we een gestandaardiseerde, high-throughput fenotyperingspijplijn met een transgeen zebravismodel dat nitroreductase expressie in DA-neuronen gebruikt om het verlies van DA-neuronen binnen vijf dagen na bevruchting te bestuderen. Zebravissen bieden belangrijke voordelen voor translationele neurowetenschap, waaronder snelle larvale ontwikkeling, optische transparantie die in vivo beeldvorming van de hele hersenen mogelijk maakt, sterke conservatie van genen en routes die relevant zijn voor de ziekte van Parkinson, en intacte neurale circuits die niet toegankelijk zijn in celkweekmodellen. Ons protocol integreert chemogenetische ablatie en beeldvorming met hoge inhoud om snelle datasets voor screening te genereren. DA-neuronen worden selectief geableerd met metronidazol (MTZ), wat specifieke en afstelbare neurodegeneratie produceert. MTZ-behandeling zorgt voor dosisafhankelijke verminderingen in voortbeweging die overeenkomt met bradykinesie-achtige fenotypes, wat een robuust gedragscorrelatie biedt met verlies van DA-cellen. Omdat de ziekte van Parkinson in wezen een motorische aandoening is, koppelen we anatomische metingen aan functionele gedragsmetingen. Locomotorische activiteit wordt direct in een plaat geregistreerd en gekwantificeerd met behulp van geautomatiseerde tracking, waarbij metrieken worden afgelegd zoals totale afstand, frequentie van zwempartijen en burst-initiatie. Zebravissen bieden een efficiënt en schaalbaar modelsysteem waarin honderden larven gelijktijdig kunnen worden getest met minimale behandeling. We hebben een high-throughput, plat-gebaseerd medicijnscreeningsprotocol geoptimaliseerd om experimentele variantie in undergraduate onderzoek te minimaliseren. Dit gestandaardiseerde, plaatgebaseerde formaat voor het screenen van kandidaatverbindingen voor neuroprotectie of functionele redding zorgt ervoor dat gegevens die door verschillende onderzoekers worden verzameld statistisch vergelijkbaar en effectief blijven bij het identificeren van neuroprotectieve kandidaten, wat de reproduceerbaarheid verbetert. Samen biedt deze methodologie een robuust, schaalbaar kader voor neurodegeneratieonderzoek.
Inleiding
Onderzoek naar geneesmiddelenontwikkeling in neurodegeneratie kent een aanzienlijke efficiëntiebottleneck vanwege de hoge kosten en lage doorvoer van traditionele zoogdiermodellen 1,2, wat zorgvuldige experimentele planning en het gebruik van een grote beroepsbevolking vereist. Het algemene doel van deze methode is het bieden van een gestandaardiseerde, doorvoerbenadering met behulp van de Tg(th:Gal4; UAS:NTR-mCherry) transgeen zebravismodel waarin nitroreductase-mCherry specifiek tot expressie komt in dopaminerge (DA) neuronen om verlies van DA-neuronen en voortbewegingstekorten te bestuderen. De reden voor het gebruik van deze techniek komt voort uit de behoefte aan rigoureuze, schaalbare en economisch haalbare in vivo modellen voor neurodegeneratieonderzoek 3,4,5. Hoewel in vitro celculturen snelle geneesmiddelscreening mogelijk maken, missen ze de intacte neurale circuits en de context van het hele organisme die essentieel zijn voor translationele relevantie6. Daarentegen bieden knaagdiermodellen uitstekende fysiologische context, maar zijn ze duur en tijdrovend voor de initiële high-throughput screening van neuroprotectieve verbindingen 7,8.
Zebravissen beschikken over een snelle larvale ontwikkeling, optische transparantie die in vivo volledige hersenbeeldvorming mogelijk maakt, en sterke genetische conservatie van ziekte-relevante routes, met name gerelateerd aan neurodegeneratie 9,10,11. Het protocol integreert specifiek gestandaardiseerde verzorging, chemogenetische ablatie via metronidazol (MTZ) en beeldvorming met een hoog gehalte in combinatie met functionele gedragstracking. Het direct meten van de locomotorische activiteit biedt een robuust gedragscorrelatie met DA-neuronale verlies, aangezien dopamineneuronverlies gekoppeld is aan gedragsafwijkingen 12,13,14. Het gestandaardiseerde, plaatgebaseerde formaat minimaliseert de experimentele variatie tussen de operators, en de hoge doorvoer van het zebravislarvalsysteem maakt grote steekproefgroottes mogelijk, wat samen voldoende statistische kracht biedt om neuroprotectieve effecten te detecteren. Dit maakt het protocol zeer geschikt voor toepassingen die schaalbare en reproduceerbare screening vereisen, inclusief situaties waar de ervaring van onderzoekers kan variëren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle methoden waarbij gewervelde proefpersonen werden gebruikt, zijn uitgevoerd in overeenstemming met de richtlijnen van de Institutional Animal Care and Use Committee (IACUC-goedkeuring AUP-25-098).
1. Zebravishouderij
- Handhaaf de condities van het aquatische systeem
- Houd het circulerende aquatische systeem op 28,5°C (acceptabel bereik: 26°C–30°C), pH 7,1–7,8 en geleidbaarheid 600–700 μS/cm. Houd volwassen zebravissen in een uitzettingsdichtheid van ongeveer 5 vissen per liter in eigen aquaria.
- Controleer dagelijks ammoniak-, nitriet- en nitraatniveaus met een colorimetrische aquariettestkit voor waterkwaliteit volgens de instructies van de fabrikant. Houd ammoniak en nitriet op 0 ppm en nitraat tussen 10–20 ppm.
- Voer waterverversingen uit wanneer ammoniak of nitriet meer dan 0 ppm is, nitraat meer dan 20 ppm, zichtbare troebelheid of puin aanwezig is, of pH/geleidbaarheidswaarden buiten de streefwaarden vallen zoals beschreven in stap 1.1.1. Blijf uitwisselen totdat ammoniak en nitriet weer 0 ppm bereiken, nitraat terugkeert naar 10–20 ppm en pH/geleidbaarheidswaarden zijn hersteld tot het streefgebied.
- Houd een licht:10 uur donkercyclus aan om het circadiane ritme en de voortplanting te synchroniseren.
- Zebravissen voeren in verschillende ontwikkelingsstadia
- Voer volwassen vissen twee keer per dag 0,5 mm langzaam zinkende pellets. Standaardiseer het voeden op basis van de tijd tot consumptie en geef alleen de hoeveelheid die binnen 3–5 minuten wordt geconsumeerd. Gebruik consequent dezelfde korrelgrootte en dieettype in experimentele cohorten.
- Voer larvale vissen Gemma Micro 75 ZF, of een gelijk larvale zebravisvoeding met een deeltjesgrootte van ongeveer 75 μm, drie keer per dag. Voer jonge vissen (1 maand) met Gemma Micro 150 ZF, of een gelijkwaardige zebravisvoeding met een deeltjesgrootte van ongeveer 150 μm, drie keer per dag.
- Vervang gelijkwaardige diëten alleen als ze zijn opgesteld voor zebravislarven of juvenielen, vergelijkbare deeltjesgrootte bieden en eiwitrijk, voedingsrijk voer leveren dat geschikt is voor de ontwikkelingsfase.
- Vul larvale en juveniele voeding aan met vers uitgekomen levende pekelgarnaal nauplii eenmaal per dag om twaalf uur 's middags op weekdagen. Breng pekelgarnalencysten uit in gelucht zout water gedurende 24–36 uur volgens de instructies van de fabrikant.
- Verzamel actief zwemende nauplii, spoel ze af met systeemwater en geef alleen de hoeveelheid die je binnen 5–10 minuten hebt geconsumeerd.
- Vermijd overvoeding, want overmatig voer verhoogt het ammoniakgehalte.
OPMERKING: Verwijder dagelijks onaangegeten voedsel en zichtbaar vuil door voorzichtig te zuigen. Controleer aquaria op dode of ongezonde vissen en maak oppervlakken of zeven schoon wanneer er puinhoop wordt waargenomen. Houd de dichtheid van het aquarium, voeding, reiniging en waterkwaliteit consequent bij alle experimentele cohorten. Voor meer details over zebravishouderij, ontwikkelingsstaging, pekelgarnaalkweek en langdurig onderhoud van faciliteiten, zie Westerfield15 en Avdesh et al.16.
2. Embryo-verzameling, voorbereiding van reagens en transgene screening
- Zet broedkruisingen op
- Zet kruisende tanks in elkaar met een verdeler in de avond vóór de embryo-verzameling.
- Plaats één mannetje en twee vrouwelijke zebravissen in elk kruisend aquarium, waarbij mannetjes en vrouwtjes 's nachts door de verdelaar gescheiden zijn.
- Verwijder de scheidingswand de volgende ochtend aan het begin van de lichtcyclus en laat het paaien voor een vaste periode van 2 uur toe. Verzamel embryo's direct na het paaivenster om de variabiliteit in het ontwikkelingsstadium te minimaliseren.
- Embryo's verzamelen en uitbroeden.
- Verzamel embryo's door aquariumwater door een 400 μm gaasfilter te gieten. Spoel de embryo's voorzichtig af met systeemwater of blauw eiwater (BEW) om vuil te verwijderen, en plaats vervolgens embryo's over in 100 mm petrischaaltjes met een wegwerp transferpipet. Minimaliseer het hanteren en vermijd het langdurig blootstellen van embryo's aan de lucht.
- Breng embryo's over naar 100 mm petrischaaltjes met 30 mL BEW bij een dichtheid van 50–60 embryo's per schaal. Niet meer dan 60 embryo's per schotel om een consistente ontwikkeling en zuurstofbeschikbaarheid te behouden.
- Breng embryo's uit bij 28,5°C onder een donkere cyclus van 14 uur licht: 10 uur.
- Verwijder dagelijks onbevruchte eicellen en niet-levensvatbare embryo's.
OPMERKING: Bereid BEW voor met 60 mg Instant Ocean zeezout, 50 μL 1% methyleenblauw en 1 L gedeïoniseerd water17.
- Bereid en breng 1-fenyl-2-thiourea (PTU) oplossing voor en breng het aan
- Bereid een 100 mM PTU-voorraadoplossing voor in dimethylsulfoxide (DMSO).
- Bewaar de PTU-kolvoplossing op 4°C en beschermd tegen licht.
- Voeg 24–36 uur na bemesting (HPF) 60 μL PTU-bouillonoplossing toe aan elke schaal met 30 mL BEW om een uiteindelijke concentratie van 200 μM te bereiken.
- Meng PTU door de Petrischaal zachtjes 5–10 keer in een cirkelvormige beweging te draaien. Vermijd het direct op embryo's pipetteren om mechanische stress te minimaliseren.
VOORZICHTIG: PTU kan ademhalings- en huidirritatie veroorzaken. Hanteer met handschoenen en bereid je goed in een goed geventileerde ruimte.
- Bereid tricaïne-anestheticum voor
- Los 400 mg tricaïne methanesulfonaat op in 97,9 mL Milli-Q water.
- Voeg 2,1 mL van 1 M Tris-basis (pH 9) toe aan de oplossing.
- Stel de oplossing aan op pH 7,0 met 0,1 M natriumhydroxide of zoutzuur.
- Aliquot de oplossing in gelabelde buizen en bewaar bij 4°C.
- Verdun de voorraadoplossing 1:25 om een werkconcentratie van 160 μg/mL te verkrijgen of verdun 1:100 om 40 μg/mL te verkrijgen voor laagdosistoepassingen18.
VOORZICHTIG: Tricaïnemethanesulfonaat is een chemisch anestheticum. Gebruik geschikte persoonlijke beschermingsmiddelen.
- Voer uitkruising uit
- Outcross homozygoot Tg(th:Gal4; UAS:NTR-mCherry) volwassen exemplaren met AB wildtype zebravissen door één homozygote transgene volwassen en één AB wildtype volwassen vogel van het andere geslacht 's nachts in een kruisingsaquarium met een scheidingswand te plaatsen. Verwijder de scheidingswand aan het begin van de lichtcyclus en verzamel embryo's na een vast spawnvenster van 2 uur.
- Screentransgene larven
- Drie dagen na bevruchting (dpf) verdoof je larven met tricaïne in een uiteindelijke concentratie van 160 μg/mL.
- Observeer larven onder een fluorescentie-stereomicroscoop met behulp van de mCherry-filterset (excitatie ~587 nm, emissie ~610 nm). Gebruik dezelfde screening-instellingen voor alle larven binnen een experiment, inclusief objectiefvergroting, belichtingstijd, versterking en lichtintensiteit.
- Stel exposure en gain in met een bekende positieve transgene larve zodat de fluorescentie van de DA-neuron duidelijk zichtbaar is zonder verzadiging, en houd deze instellingen vervolgens aan voor alle overgebleven larven in het experiment.
- Bevestig de aanwezigheid van een mCherry-positief signaal gelokaliseerd aan DA-neuronclusters in het ventrale diencephalon tussen de ogen en iets ventraal ten opzichte van de middenlijn (Figuur 1A).
- Identificeer positieve larven als die welke duidelijk detecteerbare mCherry-fluorescentie vertonen in de verwachte DA-neuronclusters van de ventrale diencephalon. Classificeer larven als negatief als er geen mCherry-signaal boven de achtergrond zichtbaar is onder de vaste screeninginstellingen, met niet-transgene of bekende negatieve larven als achtergrondcontrole.
OPMERKING: 3 dpf is het vroegste stadium waarin DA-neuronen in het ventrale diencephalon een betrouwbaar fluorescerend signaal produceren voor kwantificatie.
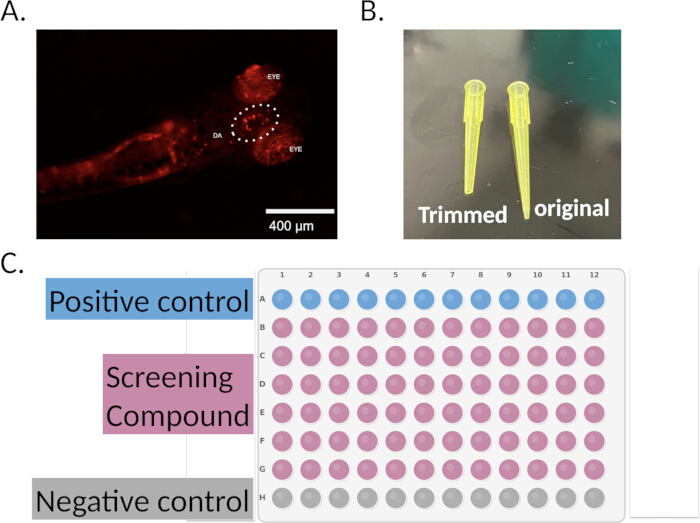
Figuur 1: Transgene screening, larvale inbedding en plaatontwerp. (A) Fluorescentiebeeld (mCherry-kanaal, 4× objectief) van een transgene zebravislarve die nitroreductase (NTR) tot expressie brengt in dopaminerge (DA) neuronen, met DA-neuronclusters in het ventrale diencephalon tussen de ogen. (B) Aangepaste P200-pipetpunten, getrimd tot ongeveer 1,5 mm openingen, gebruikt voor het overbrengen van larven tijdens het inbedden van agarose. (C) Vertegenwoordigende 96-put plaatindeling voor high-throughput geneesmiddelscreening, inclusief voertuigcontrole, metronidazol (MTZ)-behandelde putten en screeningscondities van verbindingen. Klik hier om een grotere versie van deze figuur te bekijken.
3. Chemogenetische ablatie en fluorescentiebeeldvorming
- Bereid agarose-inbeddingsmedium voor
- Bereid op de dag van inbedding bij 4 dpf 1,2% agarose (LMA) met een laag smeltpunt voor in Milli-Q water.
- Verhit de agarose-oplossing in een magnetron in korte intervallen van 5–10 seconden, waarbij je zachtjes tussen intervallen draait totdat de agarose volledig is opgelost en de oplossing helder is. Vermijd overkoken of langdurige verhitting, omdat dit de uiteindelijke agaroseconcentratie door verdamping kan veranderen.
- Aliquot de agarose in 1,5 mL microcentrifugebuizen.
- Smelt aliquots bij 70°C en breng ze in evenwicht in een 42°C warmteblok voordat je ze gebruikt.
- Voeg 20 μL tricaïnevoorraadoplossing (4 mg/mL) toe aan elke agarose-aliquot om een werkconcentratie van ongeveer 40 μg/mL te bereiken.
- Meng tricaine door de gesmolten agarose door voorzichtig 5–10 keer op en neer te pipetteren met een P200-pipet. Vermijd vortexen of het introduceren van bellen, omdat bellen de positie en beeldvorming van de larven kunnen verstoren.
- Narcoderen en inbouwen larven
- Voeg tricaïnebouillonoplossing toe aan de petrischaal met 4 dpf-larven om een uiteindelijke concentratie van 160 μg/mL te bereiken.
- Bred larven ongeveer 5 minuten uit in tricaïne, of totdat ze spontaan zwemmen verliezen en geen reactie meer hebben op zachte aanraking met een sonde. Ga pas door met embedding nadat dit anesthesie-eindpunt is bereikt.
- Knip het distale uiteinde van een P200-pipettip af met een schone schaar of een steriel mesje om een opening van ongeveer 1,5 mm te creëren. Controleer de openingsgrootte met een liniaal of gekalibreerde schaal onder een stereomicroscoop voordat je het gebruikt. Gooi tips met ruwe randen of openingen weg die te smal zijn voor larven om zonder contact doorheen te gaan (Figuur 1B).
- Aspireer een enkele larve in minimale vloeistof met behulp van de aangepaste pipetpunt.
- Dompel de pipettip onder in de agarose aliquot.
- Doseer 40 μL agarose met één larve in één put van een platbodemplaat met 96 putten. Gebruik hetzelfde agarosevolume voor alle putten binnen een experiment. Als een ander plaattype wordt gebruikt, optimaliseer dan het agarosevolume voordat het experiment begint en behoud het geselecteerde volume over alle putten.
OPMERKING: Gebruik platplaten met platte bodems om consistente beeldvorming te garanderen. Optimaliseer het agarosevolume op basis van plaatgeometrie.
- Oriënteerde en inbeddinglarven
- Plaats de plaat onder een stereomicroscoop (dissectiemicroscoop).
- Gebruik een fijnpuntige tang of een 0,25 mm sonde om de larve zo te oriënteren dat het ventrale diencephalon naar het objectief is gericht.
- Plaats de larven met de rugzijde naar beneden voor omgekeerde microscopen of de rugzijde omhoog voor rechtopstaande microscopen.
- Volledige oriëntatie binnen 1–2 minuten voordat agarose verhardt.
- Sluit één larve per put in volgens een vooraf gedefinieerde plattekaart met 96 putjes. Reserveer rij A voor voertuigcontroles, rij H voor alleen MTZ-controles, en wijs rijen B–G toe aan kandidaat-verbindingen of dosis-responsgroepen. Randomiseer de samengestelde plaatsing binnen rijen B–G waar mogelijk om positionele bias te verminderen. Gebruik dezelfde plaatkaart voor basis- en nabehandelingsbeeldvorming.
- Na agarose-solidificatie voeg je BEW zonder tricaine toe aan elke put om het uiteindelijke putvolume precies op 200 μL te brengen. Gebruik hetzelfde eindvolume voor alle putten binnen de plaat om consistente diffusie en behandelingsblootstelling te behouden.
- Bereid MTZ-behandelingsoplossingen voor
- Bereid MTZ-werkoplossingen voor in BEW, aangevuld met 1% DMSO en 200 μM PTU. Voeg MTZ-poeder toe aan de oplossing en vortex totdat er geen zichtbare deeltjes meer overblijven. Meng op een tuimelaar of buisrotator die 15–30 minuten bij kamertemperatuur beschermd is tegen licht. Controleer of de oplossing helder en vrij is van zichtbare neerslag voordat je het gebruikt.
- Bereid concentraties van 3, 4,5 en 9 mM voor voor dosis-responsoptimalisatie.
- Bereid een voertuigbesturing voor met 1% DMSO in BEW met 200 μM PTU.
- Bereid alleen de gevalideerde MTZ-concentratie voor voor routinematige screening na optimalisatie.
VOORZICHTIG: MTZ is lichtgevoelig. Bereid oplossingen vers voor elk experiment, bescherm tegen licht met folie en hergebruik geen overgebleven oplossingen.
OPMERKING: Houd dezelfde uiteindelijke DMSO-concentraties aan bij alle behandel- en controlegroepen. Vervang alternatieve MTZ-formuleringen niet.
- Verkrijg fluorescentiebeelden vóór de behandeling
- Bij 4 dpf, na inbedding, neem je baseline fluorescentiebeelden met een fluorescentiemicroscoop met een 20× objectief (Figuur 2).
- Maak een beeld van elke put met behulp van het mCherry-kanaal (excitatie ~587 nm, emissie ~610 nm).
- Gebruik identieke beeldinstellingen voor alle putten binnen een experiment. Stel de belichtingstijd, verlichtingsintensiteit en detectorversterking in met een voertuigcontrolelarve zodat de helderste DA-neuronpixels ongeveer 70%–80% van het detectordynamisch bereik bereiken zonder verzadiging. Noteer de uiteindelijke belichtingstijd, verlichtingsintensiteit, detectorversterking, objectief en verwervingsprofiel, en behoud deze instellingen voor alle basis- en nabehandelingsbeelden.
- Verzamel alle beelden binnen één sessie waar mogelijk om variabiliteit in lampintensiteit of detectorgevoeligheid over tijdstippen te minimaliseren. Voor systemen met geautomatiseerde stage-control gebruik je multiposition acquisitie om identieke coördinaten te behouden over beeldvormingssessies.
- Bewaar het acquisitieprofiel voor hergebruik tijdens de beeldvorming na de behandeling (Stap 3.7) en in latere experimenten.
OPMERKING: Een 20× objectief biedt een balans tussen gezichtsveld en resolutie voor het beelden van het diencefale DA-neuroncluster.
- Pas MTZ-behandeling toe na de basisbeeldvorming
- Onmiddellijk na de baseline-imaging bij 4 dpf voeg je MTZ-houdende oplossing of voertuigoplossing direct aan elke put toe om het uiteindelijke putvolume op 200 μL te brengen.
- Voor provinciale screeningsexperimenten voeg je kandidaatverbindingen toe aan MTZ in deze stap, zodat larven tijdens dezelfde 24 uur behandelperiode aan MTZ ± verbinding worden blootgesteld.
- Incubeer platen bij 28,5°C onder een licht:10 uur donkercyclus van 14 uur gedurende 24 uur, van 4 dpf tot 5 dpf.
- Vermijd het verstoren van de platen tijdens de incubatie.
OPMERKING: Voor dosis-respons experimenten wordt extra incubatietijden geëvalueerd (bijv. 12 en 48 uur) om de behandelomstandigheden te optimaliseren.
PAUZEPUNT: Platen kunnen onder incubatieomstandigheden worden onderhouden voor de vastgestelde behandelingsduur voordat ze overgaan tot beeldvorming.
- Verwijder fluorescentiebeelden na de behandeling
- Bij 5 dpf maakt u nabehandelingsbeelden met dezelfde microscoopinstellingen die worden gebruikt voor baselinebeeldvorming bij 4 dpf, inclusief belichtingstijd, verlichtingsintensiteit, detectorversterking, objectief en verwervingsprofiel (Figuur 2).
- Pas de belichtingstijd, detectorversterking, verlichtingsintensiteit, focus, objectie of acquisitie-instellingen niet aan tussen putten of tussen voor- en nabehandelingsbeeldsessies.
- Als de microscoop tussen sessies is uitgeschakeld, laad dan het opgeslagen acquisitieprofiel opnieuw en controleer alle instellingen aan de hand van de opgenomen parameters vóór de beeldvorming.
- Beeldwells in dezelfde volgorde die wordt gebruikt tijdens baseline imaging indien mogelijk en nemen alle beelden na de behandeling binnen dezelfde beeldvormingssessie op.
- Deze combinatie van voorbehandelings- en nabehandelingsbeeldvormingsontwerpen controleert interindividuele variabiliteit in de fluorescentie van de basisneuronen van DA en zorgt ervoor dat veranderingen in het signaal aan behandeling te wijten zijn in plaats van aan acquisitieverschillen.
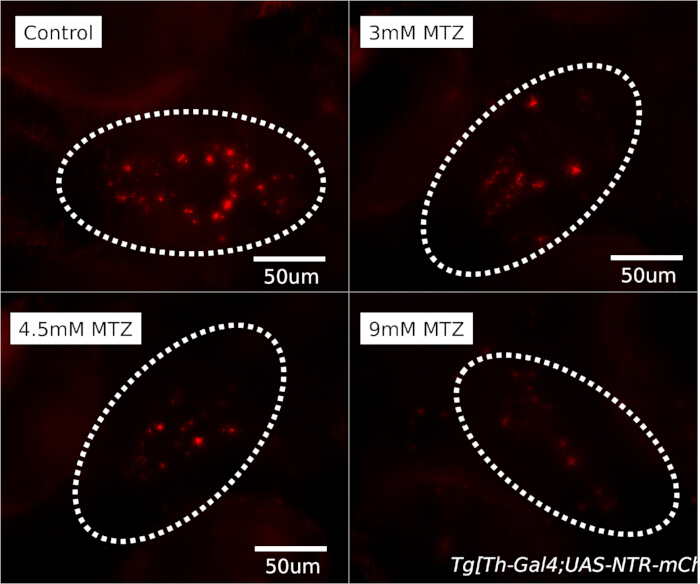
Figuur 2: Dosisafhankelijke vermindering van de fluorescentie van DA-neuronen na metronidazolbehandeling. Representatieve fluorescentiebeelden (mCherry-kanaal, 20× objectief) van transgene zebravislarven die diencefale DA-neuronen tonen na 24 uur behandeling met wisselende concentraties MTZ. De fluorescentieintensiteit neemt dosisafhankelijk af, wat wijst op succesvolle chemogenetische ablatie van NTR-expressieve neuronen. Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
4. Hoog-doorvoer platengebaseerde drugsscreening
- Genereer en screen transgene larven
- Genereer een nieuwe cohort van homozygote transgene larven.
- Verzamel embryo's en kweek ze in BEW.
- Behandel embryo's met 200 μM PTU 24–36 uur na bevruchting (HPF) zoals beschreven in stap 2.3.
- Bij 3 dpf screenen de larven met het mCherry-kanaal en vaste microscoopinstellingen voor alle larven binnen het experiment. Stel de belichtingstijd, detectorversterking en verlichtingsintensiteit in met een bekende positieve larve om DA-neuronfluorescentie duidelijk te detecteren zonder verzadiging, en laat deze instellingen tijdens de screening ongewijzigd.
- Classificeer larven als positief als duidelijke mCherry-fluorescentie zichtbaar is in de verwachte DA-neuronclusters van het ventrale diencephalon onder vaste screeningsinstellingen. Verwijder larven zonder signaal boven de achtergrond in dit gebied of met zwakke, diffuse of ectopische fluorescentie.
- Inbed larven en maak basisbeelden
- Bij 4 dpf bed de larven in een 96-put plaat zoals beschreven in stappen 3.2–3.3, met één larve per put.
- Maak pre-behandeling basislijnfluorescentiebeelden zoals beschreven in stap 3.5.
- Pas MTZ en kandidaatverbindingen toe
- Na het verkrijgen van basisfluorescentiebeelden bij 4 dpf voeg je behandelingsoplossingen direct toe aan putten volgens de plaatkaart (Figuur 1C).
- Voor voertuigcontroleputten voeg je BEW toe die dezelfde uiteindelijke DMSO-concentratie bevat als in compound-treated wells.
- Voor MTZ-only controleputten, voeg MTZ-oplossing toe zonder kandidaatverbinding.
- Voor compound-screening wells wordt MTZ en kandidaatverbinding gecombineerd zodat larven tijdens dezelfde 24 uur behandelperiode aan beide worden blootgesteld.
- Voor de eerste screening wordt een enkele stofconcentratie gebruikt, zoals 10 μM, tenzij verbindingsspecifieke oplosbaarheid, toxiciteit of eerdere dosisresponsgegevens aangeven dat een andere concentratie moet worden gebruikt.
- Stel elke put aan op een eindvolume van 200 μL. Houd dezelfde eindconcentraties DMSO in alle putten, inclusief voertuigcontrole, MTZ-only controle en MTZ plus compoundputten.
- Incubeer platen bij 28,5°C onder een licht:10 uur donkercyclus van 14 uur gedurende 24 uur, van 4 dpf tot 5 dpf.
OPMERKING: Dit protocol omvat geen verwijdering of washout van MTZ vóór blootstelling aan verbindingen. Kandidaatverbindingen worden direct na de basisbeeldvorming gelijktijdig met MTZ toegepast.
- Maak beelden na de behandeling en bereken fluorescentieretentie
- Bij 5 dpf wordt na behandeling fluorescentiebeelden gemaakt met dezelfde acquisitie-instellingen als voor baselinebeeldvorming bij 4 dpf.
- Beeldputten in dezelfde volgorde die wanneer mogelijk worden gebruikt tijdens baseline imaging gebruikt.
- Bereken de fluorescentieretentie voor elke larve als:
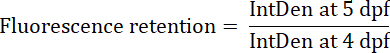
- Normaliseer fluorescentieretentiewaarden naar de gemiddelde voertuigcontrolewaarde van dezelfde plaat.
- Identificeer kandidaat-beschermende verbindingen als die met fluorescentieretentiewaarden die significant hoger zijn dan de MTZ-only controle.
- Identificeer getroffen verbindingen
- Identificeer getroffen verbindingen als die met fluorescentieretentieverhoudingen die significant hoger zijn dan de negatieve controle (alleen MTZ).
- Voer statistische analyses uit met behulp van Welch's t-test om MTZ-only controles te vergelijken met MTZ plus samengestelde behandelingsgroepen.
- Valideer trefferverbindingen met onafhankelijke biologische replicaten en dosis-respons assays. Bevestig hits als verbindingen die reproduceerbaar de fluorescentieretentie verhogen ten opzichte van de MTZ-only controle, met p < 0,05 en geen zichtbare larvale toxiciteit of abnormale morfologie.
- Geavanceerde gevalideerde treffers op secundaire assays zoals bewegingsgedragsanalyse, dosis-responsvalidatie of onafhankelijke biologische replicatatietests.
OPMERKING: Voor samengestelde bibliotheekschermen bereken je de Z-factor voor elke plaat met behulp van positieve en negatieve regelingen. Een Z-factor > 0,5 duidt op een robuuste assay die geschikt is voor trefferidentificatie.
5. Locomotorische Gedragsbeoordeling
- Wijs larven toe aan behandelgroepen
- Bij 4 dpf verdeel je larven van elk genotype in drie behandelgroepen met minstens 10 larven per groep: alleen BEW, DMSO-voertuigcontrole en MTZ-behandeling.
- Ken groepen toe als volgt: (1) alleen BEW (onbehandelde basislijn), (2) 1% DMSO-voertuigcontrole, en (3) geoptimaliseerde MTZ-concentratie (4,5 mM in 1% DMSO/BEW met 200 μM PTU).
- Neem AB wildtype-larven op die onder identieke omstandigheden met voertuig of MTZ zijn behandeld. Bevestig NTR-afhankelijke effecten als MTZ de voortbeweging in Tg(th:Gal4; UAS:NTR-mCherry) larven, maar niet in AB wildtype larven.
- Voer behandeling uit en plat larven
- Behandel larven 24 uur bij 28,5°C volgens de voorwaarden gedefinieerd in stap 5.1.2: alleen BEW, 1% DMSO-voertuigcontrole, of 4,5 mM MTZ in 1% DMSO/BEW met 200 μM PTU.
- Breng vijf larven over in elke put van een 6-put plaat met 2,5 mL verse BEW met een breed-boring transferpipet. Minimaliseer het overlapvolume en behandel larven voorzichtig om stress of letsel te voorkomen.
OPMERKING: Het gebruik van vijf larven per put balanceert de dataopbrengst en minimaliseert overbevolking. Hogere dichtheden vergroten padkruisingen en introduceren trackingfouten in gedragsanalyse.
- Stel verlichtingsomstandigheden in
- Plaats de 6-well plaat op een wit LED-lichtpaneel met een uniforme diffuse verlichting op 25°C–28°C. Gebruik hetzelfde lichtmatje, helderheidsinstelling en plaatpositie voor alle opnames binnen een experiment (Figuur 3A).
- Verlicht de plaat zowel van onderen als van boven met behulp van diffuse lichtbronnen om schaduwen, schittering en reflecties te minimaliseren.
- Configureer de video-opname-installatie
- Plaats een camera met hoge resolutie in een vaste top-down richting boven de plaat met een stabiele steun (bijv. statief of armbevestiging) (Figuur 3B).
- Plaats een liniaal naast de plaat binnen het gezichtsveld voor ruimtelijke kalibratie.
- Zorg ervoor dat de camera loodrecht op het plaatoppervlak staat om parallaxevervorming te minimaliseren.
- Geregistreerde locomotorische activiteit
- Voer opnames uit tijdens de lichtfase van de 14 uur licht:10 uur donkercyclus om de circadiane variabiliteit te minimaliseren.
- Laat de larven 1 uur acclimatiseren voordat ze worden opgenomen.
- Registreer de bewegingsactiviteit van 60 minuten.
- Verstoor de installatie niet tijdens het opnemen.
OPMERKING: Voer opnames uit op hetzelfde tijdstip van de dag in experimenten om de circadiane variabiliteit te minimaliseren.
- Configureer gedragsvolgsoftware
- Importeer de opgenomen video in EthoVision XT (gedragsvolgsoftware) (Figuur 3C).
- Configureer de volgende instellingen: 6 arena's, 5 onderwerpen per arena, center-point detectie, afstand in millimeters en tijd in seconden.
- Kalibreer de ruimtelijke schaal met de liniaal die in het videoframe aanwezig is.
- Definieer de grenzen van de arena voor elke put, zodat elke arena het binnenste van de put volledig omvat zonder verder te reiken dan de randen van de put.
- Optimaliseer detectie-instellingen
- Genereer een referentieafbeelding met behulp van de softwareinterface (detectie-instellingen → referentieafbeelding → begin met leren).
- Pas de detectiedrempel aan om nauwkeurige tracking van alle larven te garanderen zonder valse detecties.
- Voer een korte testverwerving uit (~2 min).
- Inspecteer de gevolgde paden visueel voordat je overgaat tot volledige analyse. Bevestig dat alle larven worden gedetecteerd en dat bellen, puin, reflecties of putranden niet ten onrechte als larven worden geïdentificeerd.
OPMERKING: Veelvoorkomende artefacten zijn randtracking veroorzaakt door te grote arena's, valse detecties van bellen of puin, en verlies van tracking tijdens langdurige inactiviteit. - Sluit putten uit van analyse als aanhoudende tracking failure, overmatig padkruising, zichtbaar puin of bellen, dode larven, abnormale morfologie of larven die aan de rand van de put vastzitten betrouwbare kwantificering verhindert.
- Pas dezelfde exclusiecriteria toe op alle behandelgroepen vóór statistische analyse.
- Voer volledige analyse uit en exporteer gegevens
- Voer de volledige overname uit.
- Genereer trackvisualisaties en heatmaps (analyse → resultaten → tracks en heatmaps).
- Exporteer de ruwe dataspreadsheet met metrieken per onderwerp, waaronder totale afgelegde afstand (mm), gemiddelde snelheid (mm/s) en aantal bewegingsmomenten.
- Gebruik de totale afstand van meer dan 60 minuten als het primaire eindpunt van de motor (Figuur 3D).
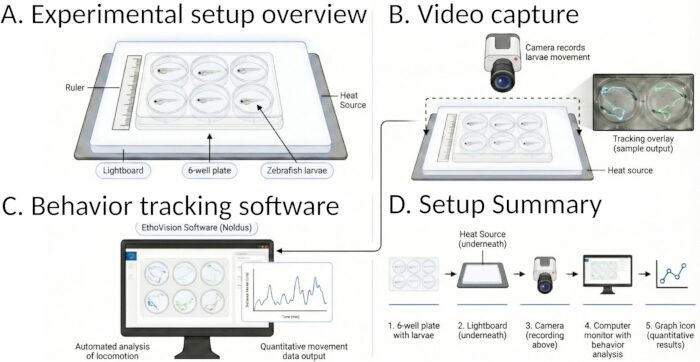
Figuur 3: Opstelling en analyseworkflow van het gedrag van de beweging van de motor. (A) Experimentele opstelling met een 6-put plaat met zebravislarven op een lichtpad met een liniaal voor ruimtelijke kalibratie en een temperatuurgecontroleerde warmtebron voor het handhaven van experimentele omstandigheden. (B) Video-opname opstelling met een top-down camera die wordt gebruikt om larvale bewegingen vast te leggen, met een representatieve tracking-overlay. (C) Gedragstracking uitgevoerd met EthoVision XT (gedragsvolgsoftware), waarbij geautomatiseerde detectie en tracking van larvale bewegingen worden getoond. (D) Workflow-samenvatting waarin de stappen van video-acquisitie tot kwantitatieve analyse van locomotorisch gedrag worden beschreven. Klik hier om een grotere versie van deze figuur te bekijken.
6. Data-analyse
- Bereid beelden voor voor analyse
- Open pre-treatment en post-treatment beeldparen in Fiji (ImageJ, beeldanalysesoftware).
- Als beelden als Z-stacks worden verkregen, genereer dan projecties met maximale intensiteit (Image → Stacks → Z Project → Max Intensity).
- Pas helderheid/contrast aan met identieke vaste beeldinstellingen voor alle afbeeldingen binnen een dataset. Gebruik geen auto-scaling voor kwantitatieve metingen en voer fluorescentiekwantificering uit op de originele niet-aangepaste beelden.
- Definieer interessegebieden (ROI)
- Gebruik het polygonselectie-instrument om een ROI te tekenen rond het diencephalische DA-neuroncluster in de pre-behandelingsafbeelding. Definieer de ROI-grens met behulp van anatomische herkenningspunten die zichtbaar zijn in het fluorescentiebeeld, waaronder de mediale randen van de ogen en de ventrale middenlijn van het diencephalon (Figuur 2). Zorg ervoor dat de ROI het gehele DA-neuroncluster omvat zonder zich uit te breiden naar aangrenzende fluorescerende structuren. Voor consistentie tussen operators, sla een representatieve ROI-sjabloon op en verspreid deze aan alle teamleden als ruimtelijke referentie.
- Druk op "t" om de ROI toe te voegen aan de ROI Manager.
- Lijn de beelden van vóór en na de behandeling uit met behulp van anatomische herkenningspunten, waaronder de ogen en de ventrale diencephalon, voordat de ROI wordt toegepast. Pas dezelfde ROI toe op de overeenkomende afbeelding na de behandeling nadat je de uitlijning hebt bevestigd.
- Sla alle ROI's voor elke plaat op om reproduceerbaarheid en heranalyse mogelijk te maken.
- Kwantificeer fluorescentieintensiteit
- Configureer meetinstellingen (Analyseer → Set Metingen) en selecteer "Gebied" en "Gemiddelde grijswaarde."
- Meet elke afbeelding (Analyseren → Meet).
- Meet achtergrondfluorescentie van een aangrenzend niet-neuronaal gebied binnen hetzelfde beeld en trek dit af van de ROI-meting van de DA-neuron. Bereken achtergrondgecorrigeerde geïntegreerde dichtheid als: gecorrigeerde IntDen = IntDenROI − (areaROI × gemiddelde achtergrond).
- Bereken de fluorescentieretentieverhouding voor elke larve als IntDen (na behandeling) / IntDen (voor behandeling).
- Normaliseer de fluorescentieretentieverhoudingen met de gemiddelde voertuigcontrolewaarde van dezelfde plaat. Bereken het voertuigcontrolegemiddelde afzonderlijk voor elke plaat voordat behandelingsgroepen19 worden vergeleken.
OPMERKING: Voor hogere-throughput analyse voer dezelfde kwantificatie uit met CellProfiler (beeldanalysesoftware) met geautomatiseerde ROI-detectie20.
- Voer paargewijze statistische analyse uit
- Voor vergelijkingen tussen één behandelgroep en één controlegroep voer je een ongepaarde tweezijdige Welch's t-test uit, die geen gelijke variantie tussen groepen aanneemt.
- Gebruik deze test wanneer de variantie tussen groepen verschilt.
- Voer multi-groep statistische analyse uit
- Voer eenrichtings-ANOVA uit voor experimenten met meerdere behandelgroepen.
- Pas Dunnetts post hoc-test toe om elke behandelgroep te vergelijken met de controlegroep met behulp van GraphPad Prism of vergelijkbare statistische software.
- Rapporteer statistische resultaten
- Stel de significantiedrempel in op α = 0,05.
- Rapporteer exacte p-waarden in plaats van categorische drempels.
- Presenteer gegevens als gemiddelde ± standaardfout van het gemiddelde (SEM) met individuele datapunten overgelegd als spreidingsdiagrammen met behulp van GraphPad Prism of vergelijkbare grafieksoftware.
- Rapporteer steekproefgrootte (n), statistische test, teststatistiek, vrijheidsgraden en exacte p-waarde in de figuurlegendes. Voor grote datasets kun je volledige statistische output opnemen in een aanvullende tabel.
OPMERKING: Voor screening-assays bereken je de Z-factor voor elke plaat als Z = 1 − [3(σp + σn)/|μp − μn|], waarbij σp en μp de standaarddeviatie en het gemiddelde van de voertuigcontrolegroep zijn, en σn en μn de standaarddeviatie en het gemiddelde van de MTZ-only controlegroep. Een Z-factor > 0,5 wordt als acceptabel beschouwd voor screening.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
MTZ-behandeling veroorzaakt dosisafhankelijke verlies van dopaminerge neuronen en lacomotorische stoornis
Om de optimale parameters voor MTZ-gemedieerde ablatie van DA-neuronen te bepalen, werden fluorescentie-intensiteit, gebruikt als proxy voor de overleving van DA-neuronen, en de locomotorische afstand geëxevalueerd over MTZ-concentraties van 3, 4,5 en 9 mM na 24 uur behandeling. Elke behandelgroep bestond uit n = 10 individuele Tg(th:Gal4;...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit protocol biedt een schaalbare, in vivo pijplijn voor het kwantificeren van DA-neuronale verliezen en het screenen van neuroprotectieve verbindingen met behulp van het NTR–MTZ chemogenetisch systeem bij transgene zebravissen. De gestandaardiseerde, op platen gebaseerde workflow is specifiek ontwikkeld voor onderzoeksteams van bachelorstudenten, waar het personeelsverloop hoog is en de ervaring van onderzoekers varieert tussen academische periodes. Elke stap van de workflow is zo gestr...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs geven geen financiële belangenconflicten aan.
Dankbetuigingen
Wij danken Dr. Su Guo (University of California, San Francisco) voor het leveren van de transgene zebravis, en Dr. Daeseok Eom, Dr. Michael Parsons en Eddie Hallo (University of California, Irvine) voor het leveren van wildtype-embryo's en begeleiding over het verzorgen van zebravissen en het onderhoud van visfaciliteiten. We danken ook de medewerkers van het Robert A. Mah Molecular Innovation Center en het Falling Leaves Innovation Building (University of California, Irvine) voor het bieden van infrastructuur voor de aquatische faciliteit.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Adult zebrafish diet, 0.5 mm pellets | Zeigler | AH271 | Gebazig voor het voeren van volwassen zebravissen tijdens routinematig onderhoud |
| Agarose, laag smeltpunt (LMA) | Sigma-Aldrich | A9414-10G | Gebazig voor het insluiten van larven in putjes voor stabiele positionering tijdens beeldvorming |
| Aluminiumfolie | ULINE | S-20197 | Gebazig om lichtgevoelige reagentia zoals MTZ te beschermen tijdens voorbereiding en incubatie |
| CellProfiler | Broad Institute | RRID: SCR_007358 | Gebazig voor optionele geautomatiseerde fluorescentie beeldanalyse |
| Kegelbuisjes, 15 mL | Corning | 352097 | Gebazig voor reagentia voorbereiding en monsterbehandeling |
| Kegelbuisjes, 50 mL | Corning | 352070 | Gebazig voor reagentia voorbereiding en oplossingsopslag |
| Kruisingstanks (1,0 L) | Aquaneering | ZHCT100 | Gebazig voor gecontroleerde zebravis kweek en embryo verzameling |
| Danio rerio (AB wild type) | — | — | Non-transgene controlelijn gebruikt om de specificiteit van nitroreductase-afhankelijke effecten te valideren |
| Danio rerio (Tg(th:Gal4; UAS:NTR-mCherry)) | — | — | Transgene zebravislijn die nitroreductase-mCherry tot expressie brengt in dopaminerge neuronen voor gerichte chemogenetische ablatie |
| Dimethylsulfoxide (DMSO), watervrij (≥99,9%) | Sigma-Aldrich | 472301-500ML | Solvent voor PTU, MTZ en screeningsverbindingen |
| EthoVision XT | Noldus | RRID: SCR_000441 | Gedragstracking software gebruikt om larvale locomotie te kwantificeren |
| Fiji (ImageJ) | NIH | RRID: SCR_003070 | Beeldanalysesoftware gebruikt voor fluorescentie kwantificering |
| Fijne pincet of 0,25 mm sonde | World Precision Instruments | WPI0118 | Gebazig om larven te oriënteren tijdens agarose insluiting |
| Fluorescentiemicroscoop | Zeiss | 11845460 | Gebazig om dopaminerge neuronen via mCherry fluorescentie te beeldvormen |
| Gemma Micro 150 ZF (juveniele dieet, 100–200 μm) | Skretting | 10818945 | Gebazig om juveniele zebravissen te voeren |
| Gemma Micro 75 ZF (larvale dieet, 50–100 μm) | Skretting | 10818935 | Gebazig om larvale zebravissen te voeren |
| GraphPad Prism | GraphPad | RRID: SCR_002798 | Statistische analysesoftware gebruikt voor gegevensanalyse en plotten |
| Hitteblok (42°C en 70°C capabel) | Thermo Fisher | 88870001 | Gebazig om agarose te smelten en op gecontroleerde temperaturen te houden |
| Hoge resolutie camera (bovenaf montage compatibel) | Basler | 88-327 | Gebazig om larvale locomotorische activiteit op te nemen |
| Zoutzuur (HCl), 0,1 M | Fisher Scientific | SA48-500 | Gebazig om pH aan te passen tijdens tricaine voorbereiding |
| Incubator (28,5°C, 14 u licht:10 u donker fotoperiode) | Millipore | Z763314 | Onderhoudt gecontroleerde omgevingscondities voor zebravis ontwikkeling |
| Instant Ocean zee zout | Instant Ocean | SS15-10 | Gebazig om blauw eiwater (BEW) voor te bereiden |
| Lichtverspreider (of equivalent) | Edmund Optics | 27-103 | Gebazig om uniforme verlichting te bieden en verblinding tijdens gedragsregistratie te minimaliseren |
| Lichtpad | Lightcraft | LC2004LED | Biedt onderverlichting tijdens locomotorische tracking |
| Metronidazol (MTZ) | Sigma-Aldrich | M3761-100G | Gebazig voor chemogenetische ablatie van dopaminerge neuronen |
| Methyleenblauw, 1% waterige oplossing | Sigma-Aldrich | M9140 | Toegevoegd aan BEW om microbiële groei in embryo's te voorkomen |
| Microcentrifugebuisjes, 1,5 mL | Eppendorf | 22363204 | Gebazig voor reagentia aliquotering en opslag |
| Micropipet, P200 | Gilson | FP10005S | Gebazig voor het hanteren van larven en het voorbereiden van oplossingen |
| Petrischalen, 100 mm | Corning | CLS430167 | Gebazig voor embryo verzameling en incubatie |
| Pipetpunten, 200 μL | RAININ | 30389188 | Gebazig met micropipetten voor vloeistofverwerking en larvale overdracht |
| Natriumchloride (NaCl), ≥99,0% | Sigma-Aldrich | S9888-500G | Gebazig voor het bereiden van buffer en waterige oplossingen |
| Natriumhydroxide (NaOH), 0,1 M | Fisher Scientific | SS256-500 | Gebazig om pH aan te passen tijdens tricaine voorbereiding |
| Stereomicroscoop | Nikon | SMZ-745 | Gebazig voor larvale manipulatie en oriëntatie tijdens insluiting |
| Temperatuur gecontroleerde warmtemat (25°C–28°C) | Vivosun | V-SHMDT | Onderhoudt stabiele temperatuur tijdens gedragsregistratie |
| Tricaine methaansulfonaat (MS-222) | Sigma-Aldrich | E10521-10G | Gebazig als verdovingsmiddel voor zebravislarven |
| Tris base | Fisher Scientific | BP152-1 | Gebazig bij de bereiding van gebufferde tricaine oplossing |
| Waterzuiveringssysteem | Millipore | ZIQ7003T0 | Gebazig om gedeïoniseerd water te genereren voor oplossingsvoorbereiding |
| Zebravishoudtanks | Aquaneering | ZS560 | Gebazig voor het onderhouden van volwassen zebravis populaties |
| 1-Phenyl-2-thioureum (PTU) | Sigma-Aldrich | P7629-10G | Gebazig om melanogenese te remmen |
Referenties
- Haynes, E. M., Ulland, T. K., Eliceiri, K. W. A model of discovery: the role of imaging established and emerging non-mammalian models in neuroscience. Front Mol Neurosci. 15, 867010 (2022).
- Yang, W., Chen, X., Li, S., Li, X. J. Genetically modified large animal models for investigating neurodegenerative diseases. Cell Biosci. 11 (1), 218 (2021).
- Dodiya, R., et al. Zebrafish-based Parkinson’s disease models: unveiling genetic mechanisms and therapeutic pathways. CNS Neurol Disord Drug Targets. 24 (12), 900-920 (2025).
- Wasel, O., Freeman, J. L. Chemical and genetic zebrafish models to define mechanisms of and treatments for dopaminergic neurodegeneration. Int J Mol Sci. 21 (17), (2020).
- Kozol, R. A., et al. Function over form: modeling groups of inherited neurological conditions in zebrafish. Front Mol Neurosci. 9, 55 (2016).
- Jang, H., Kim, S. H., Koh, Y., Yoon, K. J. Engineering brain organoids: toward mature neural circuitry with an intact cytoarchitecture. Int J Stem Cells. 15 (1), 41-59 (2022).
- Vandamme, T. F. Use of rodents as models of human diseases. J Pharm Bioallied Sci. 6 (1), 2-9 (2014).
- Malik, N., et al. Compounds with species and cell type specific toxicity identified in a 2000 compound drug screen of neural stem cells and rat mixed cortical neurons. Neurotoxicology. 45, 192-200 (2014).
- Hasani, H., et al. Whole-brain imaging of freely-moving zebrafish. Front Neurosci. 17, 1127574 (2023).
- Mattern, K., von Trotha, J. W., Erfle, P., Köster, R. W., Dietzel, A. NeuroExaminer: an all-glass microfluidic device for whole-brain in vivo imaging in zebrafish. Commun Biol. 3 (1), 311 (2020).
- Panier, T., et al. Fast functional imaging of multiple brain regions in intact zebrafish larvae using selective plane illumination microscopy. Front Neural Circuits. 7, 65 (2013).
- Noda, S., et al. Aging-related motor function and dopaminergic neuronal loss in C57BL/6 mice. Mol Brain. 13 (1), 46 (2020).
- Godoy, R., et al. Chemogenetic ablation of dopaminergic neurons leads to transient locomotor impairments in zebrafish larvae. J Neurochem. 135 (2), 249-260 (2015).
- Schallert, T., Tillerson, J. L. Intervention strategies for degeneration of dopamine neurons in parkinsonism: optimizing behavioral assessment of outcome. Cent Nerv Syst Dis. , 131-151 (2000).
- Westerfield, M. . The zebrafish book: a guide for the laboratory use of zebrafish (Danio rerio). , (2007).
- Avdesh, A., et al. Regular care and maintenance of a zebrafish (Danio rerio) laboratory: an introduction. J Vis Exp. (69), e4196 (2012).
- Nipu, N., et al. Methylene blue at recommended concentrations alters metabolism in early zebrafish development. Commun Biol. 8 (1), 120 (2025).
- Ohnesorge, N., et al. Assessment of the effect of tricaine (MS-222)-induced anesthesia on brain-wide neuronal activity of zebrafish larvae. Front Neurosci. 18, 1456322 (2024).
- Schroeder, A. B., et al. The ImageJ ecosystem: open-source software for image visualization, processing, and analysis. Protein Sci. 30 (1), 234-249 (2021).
- Stirling, D. R., et al. CellProfiler 4: improvements in speed, utility and usability. BMC Bioinformatics. 22 (1), 433 (2021).
- Kim, G. H. J., et al. A zebrafish screen reveals renin-angiotensin system inhibitors as neuroprotective via mitochondrial restoration in dopamine neurons. eLife. 10, (2021).
- Kim, G. H. J., et al. In vivo dopamine neuron imaging-based small molecule screen identifies novel neuroprotective compounds and targets. Front Pharmacol. 13, 837756 (2022).
- Aponte, P. M., Gutierrez-Reinoso, M. A., Garcia-Herreros, M. Bridging the gap: animal models in next-generation reproductive technologies for male fertility preservation. Life (Basel). 14 (1), (2023).
- Fen, W., et al. A review for cell-based screening methods in drug discovery. Biophys Rep. 7 (6), 504-516 (2021).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
