Dit protocol biedt een reproduceerbare methode voor het genereren van integratievrije aneuploïde menselijke iPSCs uit primaire vruchtwatercellen via episomale plasmid-electroporatie. Het optimaliseert de afleverings- en kweekcondities om chromosomale afwijkingen te stabiliseren, wat een praktisch platform biedt voor het creëren van ziekte-specifieke modellen voor downstream onderzoek en klinische toepassingen.
Methodenartikel
Genereren van aneuploïde menselijke geïnduceerde pluripotente stamcellen uit primaire vruchtwatercellen via episomale plasmide-elektroporatie
In dit artikel
Samenvatting
Samenvatting
De generatie van patiëntspecifieke geïnduceerde pluripotente stamcellen (iPSCs) uit cellen uit het vruchtwater (AFCs) met gedefinieerde chromosomale aneuploïdieën biedt een krachtig platform voor het modelleren van genetische aandoeningen. Het opzetten van een betrouwbare en reproduceerbare herprogrammeringspipeline voor aneuploïde AFCs blijft echter technisch uitdagend vanwege de intrinsieke genomische instabiliteit en de variabele proliferatiecapaciteit van deze cellen. Hier presenteren wij een uitgebreide, niet-integrerende methode voor het genereren van aneuploïde menselijke iPSCs uit primaire AFCs met behulp van episomale plasmide-electroporatie. Dit protocol beschrijft de volledige workflow, bestaande uit het ontdooien en expanderen van cellen met een geleidelijke media-adaptatiestrategie, geoptimaliseerde plasmide-aflevering via een electroporatiesysteem, sequentiële post-electroporatie kweek met media-wijzigingen gericht op de mesenchymale-naar-epitheliale transitie (MET), en mechanische colony picking op basis van gedefinieerde morfologische criteria. We beschrijven verder validatieprocedures, waaronder immunofluorescentiekleuring voor kernmarkers van pluripotentie, G-banding karyotype-analyse om het behoud van het aneuploïde karyotype te bevestigen en PCR-gebaseerde verificatie van de klaring van de episomale vector. Dit feeder-vrije, integratie-vrije protocol levert aneuploïde iPSC-lijnen op die geschikt zijn voor ziektemodellering, drugscreening en studies naar chromosoombiologie.
Inleiding
De komst van de technologie voor geïnduceerde pluripotente stamcellen heeft de regeneratieve geneeskunde, ziektemodellering en geneesmiddelenontwikkeling getransformeerd door het mogelijk maken van de generatie van patiëntspecifieke pluripotente cellen zonder de ethische zorgen die verbonden zijn aan menselijke embryonale stamcellen (hESCs). De conceptuele basis van cellulaire herprogrammering vindt zijn oorsprong in de demonstratie van Gurdon van somatische celkernoverdracht1, gevolgd door de vestiging van embryonale stamcellen2,3,4 en uiteindelijk de ontwikkeling van geïnduceerde pluripotentie5 via ectopische expressie van OCT4, SOX2, KLF4 en c-MYC. Sindsdien is iPSC-technologie een onmisbaar platform geworden voor het onderzoeken van de menselijke ontwikkeling, genetische aandoeningen en precisiegeneeskunde. Vroege herprogrammeringsmethoden maakten gebruik van retrovirale of lentivirale vectoren, maar de risico's gerelateerd aan integratie beperkten de klinische toepassing. Bijgevolg werd de ontwikkeling van integratievrije herprogrammeringsmethoden een prioriteit voor klinische translatie. Deze omvatten het gebruik van het Sendai-virus6, synthetisch mRNA7, episomale vectoren gebaseerd op het oriP/EBNA1 (Epstein-Barr nuclear antigen-1) mechanisme8 en chemische herprogrammering9,10,11,12 met uitsluitend kleine molecuulverbindingen.
Aneuploïdie is de belangrijkste oorzaak van miskramen en congenitale geboorteafwijkingen bij mensen. Het begrijpen van de cellulaire en moleculaire mechanismen die ten grondslag liggen aan aneuploïdie-gerelateerde ontwikkelingsstoornissen vereist geschikte cellulaire modellen die de genetische achtergrond van deze aandoeningen getrouw reproduceren. Amniotische vloeistofcellen (AFCs) vormen een aantrekkelijk en efficiënt startmateriaal voor de generatie van patiëntspecifieke iPSCs13,14,15, met name in de context van prenataal gediagnosticeerde genetische stoornissen16,17. Residuele amniotische vloeistof verkregen tijdens routineuze amniocentese biedt toegang tot cellen van foetale oorsprong zonder dat hiervoor na de geboorte een aanvullende invasieve weefselbiopsie vereist is. Vergeleken met somatische cellen van volwassenen vertonen AFCs over het algemeen een hogere proliferatiecapaciteit, langere telomeren, een lagere cumulatieve omgevingsmutatiebelasting en een grotere ontwikkelingsplasticiteit, wat allemaal de cellulaire herprogrammering vergemakkelijkt18,19. Belangrijk is dat AFCs de chromosomale constitutie van de zich ontwikkelende foetus getrouw behouden, waardoor ze een ideale bron zijn voor het vaststellen van ziekte-specifieke iPSC-modellen van chromosomale afwijkingen, waaronder trisomie 2120, trisomie 1821, het Turner-syndroom en het Klinefelter-syndroom22.
Dit protocol biedt een uitgebreide handleiding voor het genereren van integratievrije iPSC's uit aneuploïde vruchtwatercellen met behulp van episomale vectoren. De methode omvat gedetailleerde procedures voor celisolatie, herprogrammering, kloonselectie en karakterisering. Vergeleken met andere integratievrije herprogrammeringsmethoden biedt het episomale plasmidensysteem een praktisch evenwicht tussen genomische veiligheid, technische eenvoud en kostenefficiëntie, waardoor het bijzonder geschikt is voor routinematig laboratoriumgebruik en grootschalige biobanking-toepassingen. Het protocol is toepasbaar op zowel cryobewaarde AFC's uit bestaande biobanken als op verse resterende vruchtwatermonsters verkregen tijdens routinematige prenatale diagnostiek. Hoewel de gerapporteerde efficiëntie van episomale herprogrammering voor AFC's relatief laag is, en er spontane chromosoomredding kan optreden tijdens de herprogrammering of langdurige kweek, met name bij bepaalde aneuploïdieën, is de workflow direct toepasbaar op de oprichting van ziekte-specifieke iPSC-biobanken, studies naar chromosoombiologie en vroege menselijke ontwikkeling, en downstream differentiatie naar lineage-specifieke celtypen. Deze aanpak is bijzonder geschikt voor het genereren van integratievrije, klinisch relevante iPSC-lijnen uit prenatale monsters voor ziekte-modellering en mechanistische studies naar chromosomale afwijkingen.
Protocol
Alle procedures met menselijke vruchtwatermonsters werden uitgevoerd in overeenstemming met de Verklaring van Helsinki en zijn goedgekeurd door de Institutional Review Board (IRB)/Human Research Ethics Committee van het Peking University Third Hospital (Protocol nr. M2023406). De aneuploïde monsters zijn afkomstig uit de Biobank van het Center for Reproductive Medicine aan het Peking University Third Hospital, een door de staat gecertificeerde klinische opslagplaats gespecialiseerd in menselijke ontwikkelings- en reproductieve bronnen. Deze specimens bestaan uit resterend vruchtwater dat oorspronkelijk is verzameld tijdens routinematige amniocentese voor klinische prenatale diagnostiek, en dat anders zou zijn weggegooid. Van alle donoren is voorafgaand aan de collectie schriftelijke geïnformeerde toestemming verkregen, waarbij expliciet toestemming is gegeven voor de opslag van resterende monsters in de Biobank en het daaropvolgende gebruik hiervan voor onderzoek. Alle monsters zijn strikt geanonimiseerd om de privacy van de patiënten te beschermen. Monsters met bevestigde aneuploïde karyotypes, geïdentificeerd via klinische G-bandanalyse, waaronder Trisomie 21 (syndroom van Down, N = 2), Trisomie 18 (syndroom van Edwards, N = 1), Monosomie X (syndroom van Turner, N = 1) en het syndroom van Klinefelter (N = 2), zijn geselecteerd voor de inductie van iPSCs. Gedetailleerde informatie over de aneuploïde cellijnen die zijn gebruikt bij de herprogrammering is samengevat in Tabel 1.
1. Ontdooien en primaire kweek van in de biobank bewaarde vruchtwatercellen
OPMERKING: Deze sectie beschrijft de gestandaardiseerde procedure voor het ophalen en herstellen van aneuploïde AFC's uit de biobank. De gekweekte cellen worden uitgebreid om voldoende populaties te verkrijgen voor daaropvolgende episomale herprogrammering.
- Gestandaardiseerde ontdooiprocedure
- Equaliseren van medium: Warm het complete AmnioType-1-medium op tot 37 °C vóór gebruik.
- Monsteropvraag: Haal een cryovial met ongeveer 300.000 AFC's, cryopreserveerd in celvriesmedium, uit de vloeibare stikstofopslag. Verplaats de vial onmiddellijk op droogijs naar het laboratorium om voortijdig ontdooien te voorkomen.
- Snel ontdooien: Dompel de onderste helft van het cryovial onder in een 37 °C in een waterbad plaatsen en voorzichtig schudden. Stop het ontdooiproces wanneer er nog slechts een klein, zichtbaar ijskristal over is.
OPMERKING: Vermijd volledig ontdooien. Dit voorkomt dat de cellen worden blootgesteld aan de toxische effecten van warm DMSO. - Verdunning: Breng de cel-suspensie in een laminaire flowkast druppelsgewijs over in een conische buis van 15 mL met 4 mL voorverwarmd AmnioType-1 medium.
- Centrifugatie: Centrifugeer de suspensie bij 300 × g gedurende 5 min bij kamertemperatuur.
- Uitzaaien: Zuig het supernatant af en resuspendeer het celpellet voorzichtig in 2 mL vers AmnioType-1 medium. Breng de cellen over naar de 6-well plaat of T25-fles, vooraf gecoat met 0,1% gelatine, bij een dichtheid van 30.000–50.000 cellen/cm²².
- Initiële incubatie: Plaats de cellen in een bevochtigde incubator bij 37 °C en 5% $\text{CO}_2$2Inspecteer de kolven op dag 3 na het uitplaten onder een inverted fasecontrastmicroscoop om de initiële celadhesie te bevestigen.
- Expansie en mediumovergang van primaire AFC's
- Bereiding van medium voor fibroblastkweek (FC): Om 100 mL zelfgemaakt medium voor fibroblastkweek te bereiden, mengt u 82 mL high-glucose DMEM met 15 mL foetaal runderserum (FBS). Voeg 1 mL van 100× GlutaMAX, 1 mL van 100× niet-essentiële aminozuren (NEAA) en 1 mL penicilline-streptomycine (P/S). Filtreer het medium door een 0.22 µm vacuümffiltratiesysteem in een steriele omgeving.
- Verander tijdens de expansie elke 3 dagen geleidelijk het medium van de AFC, van gespecialiseerd klinisch medium (AmnioType-1) naar een gestandaardiseerd fibroblast-kulturesysteem (FC-medium, zelfgemaakt), om de metabole stabiliteit vóór electroporatie te waarborgen.
- Voer een geleidelijke mediumovergang uit:
- Dag 3 (75% AmnioType-1: 25% FC): Aspireer het bestaande AmnioType-1 medium. Voeg een mengmedium toe bestaande uit 75% AmnioType-1 en 25% FC-medium.
- Dag 6 (50% AmnioType-1: 50% FC): Aspireer en vervang door een 1:1 ratio van AmnioType-1 en FC-medium.
- Dag 9 (25% AmnioType-1: 75% FC): Zuig het medium af en vervang dit door een mengsel van 25% AmnioType-1 en 75% FC-medium.
- Dag 12 (100% FC): Aspireer en schakel over naar 100% FC-medium.
OPMERKING: Deze geleidelijke adaptatie vermindert cellulaire shock en voorkomt het loslaten van gevoelige aneuploïde klonen.
- Voer een geleidelijke mediumovergang uit:
- Observeer dagelijks de morfologie van de kolonies. Vruchtwater bevat een heterogene populatie cellen. Identificeer onder fasecontrastmicroscopie de twee primaire typen: F-type (fibroblastachtig, spoelvormig) en E-type (epitheelachtig, afgerond). De fibroblastachtige mesenchymale subpopulatie is optimaal voor herprogrammering.
OPMERKING: Monitor de cellen nauwgezet op tekenen van senescentie.
- Passageren van primaire AFC's
- Zodra de cellen een confluentie van 80%–90% bereiken (doorgaans dag 10–14), wordt het medium uit de kolf geaspireerd en wordt de kolf één keer voorzichtig gewassen met 2 mL Dulbecco's fosfaatgebufferde zoutoplossing (DPBS) zonder Ca2+²⁺/Mg²⁺.
- Voeg 1 mL toe van 0,25% Trypsine-EDTA-oplossing voor één putje van een 6-wells plaat om de cellaag te bedekken.
- Incubeer bij 37 °C gedurende 4–5 min totdat de cellen volledig loslaten.
- Neutraliseer het dissociatiereagens door 3 ml FC-medium toe te voegen. Draag de suspensie over naar een conische buis van 15 ml.
- Centrifugeer bij 300 × g gedurende 5 min bij kamertemperatuur.
- Aspireer het supernatant en resuspendeer de celpellet in 1 mL vers FC-medium. Tel de levensvatbare cellen met behulp van een hemocytometer of een automatische celcounter met trypaanblauw-uitsluiting.
- Zaai cellen uit in een nieuwe T25-fles bij een dichtheid van 30.000–50.000 cellen/cm²² in compleet medium (meestal in een verhouding van 1:2 of 1:3).
- Kweek de cellen uit tot passage 3–5 voordat ze worden gebruikt voor herprogrammering. Gebruik geen cellen voorbij passage 6.
OPMERKING: De celkwaliteit op het moment van de elektroporatie is de belangrijkste bepalende factor voor het succes van de herprogrammering. Gebruik uitsluitend gezonde, in de logfase groeiende F-type AFC zonder tekenen van senescentie of abnormale morfologie.
2. Electroporatie van episomale plasmiden in AFC's met behulp van een cel-electroporatiesysteem
- Coat cultuervaten met basaalmembraanmatrix
- Ontdooi de basaalmembraanmatrix (Matrigel) gedurende de nacht bij 4 °C op ijs.
- Koel steriele DPBS of DMEM/F-12 op ijs. Koel pipetpunten en buisjes 30 min vooraf op ijs.
- Verdun de basaalmembraanmatrix 1:200 in ijskoud DMEM/F-12 met behulp van koude tips en buisjes (bijv. 30 µL matrix + 6 mL DMEM/F-12 voor een 6-wells plaat).
- Meng grondig maar voorzichtig door de vloeistof 5–6 keer met de pipet op en neer te zuigen. Voorkom dat er luchtbellen ontstaan.
- Voeg de verdunde coatingoplossing toe aan de kweekvaten in een volume van 1 mL per well voor een 6-wells plaat.
- Incubeer de gecoate vaten bij 37 °C gedurende ten minste 1 uur, of 2 uur bij kamertemperatuur.
- Aspireer de coatingoplossing onmiddellijk voor het uitplaten van de cellen. Voeg 2 mL antibioticumvrij FC-medium toe plus 10 μM Y-27632 (ROCK-remmer) en plaats de plaat terug in een 37 °C incubator. Laat het gecoate oppervlak niet uitdrogen.
OPMERKING: Gecoate platen kunnen worden bewaard bij 4 °C afgesloten met Parafilm gedurende maximaal 7 dagen. Voor gebruik laten acclimatiseren tot kamertemperatuur.
- Ontdooi en bereid episomale reprogrammeringsplasmiden voor
- Plasmidselectie: Gebruik de volgende episomale plasmiden voor herprogrammering: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL en pCXLE-EBNA1.
OPMERKING: (Optioneel) Voor de optimalisatie van de electroporatiecondities kan pCE-GFP parallel onder identieke instellingen worden ge-electroporeerd. GFP-expressie gedurende de eerste 48–72 uur dient als een handige indicator voor de transfectie-efficiëntie, terwijl het geleidelijke verlies van het GFP-signaal tijdens opeenvolgende passages kan worden gebruikt om de transiënte plasmidverdunning te monitoren. - Kwaliteitscontrole (QC): Verifieer de DNA-concentratie en -zuiverheid met behulp van een spectrofotometer. Zorg ervoor dat de A260/280-ratio tussen 1,8 en 1,9 ligt. Zorg ervoor dat de concentratie van elk plasmide groter is dan 1 µg/µL en steriel.
OPMERKING: Het is van cruciaal belang om ervoor te zorgen dat alle plasmiden met endotoxinevrije methoden worden geprepareerd. Residuele endotoxinen kunnen leiden tot een hoge cytotoxiciteit en een significant verminderde herprogrammeringsefficiëntie. Bewaar de plasmiden in kleine aliquots bij -20 °C om herhaalde vries-dooi-cycli te voorkomen. - Voor een 100 µL reactie, voorbereiden 5 µg van het plasmidmengsel (gelijke gewichtsverhouding van pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL en pCXLE-EBNA1).
- Plasmidselectie: Gebruik de volgende episomale plasmiden voor herprogrammering: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL en pCXLE-EBNA1.
- Stel de electroporatieparameters in.
- Initialiseer het electroporatieapparaat. Stel de pulsparameters in op de geoptimaliseerde configuratie voor primaire adherente cellen: Pulsvoltage: 1.200 V; Pulsbreedte: 20 ms; Aantal pulsen: 2.
- Vul het pipetstation met 2 mL Buffer E en zorg ervoor dat de elektrode volledig is ondergedompeld.
OPMERKING: Indien de initiële experimenten een celviabiliteit van minder dan 50% opleveren, overweeg dan het testen van alternatieve parameterinstellingen: 950 V / 20 ms / 2 pulsen (milder). Deze alternatieven leveren een deel van de efficiëntie in ten gunste van een verbeterde overleving.
- Bereid AFC's voor voor elektroporatie
- Stel op dag 0 vast dat de cellen onder de microscoop een gezonde, spoelvormige morfologie vertonen, zonder tekenen van overgroei, senescentie of contaminatie. Zorg ervoor dat de cellen een confluentie van 90% hebben bereikt en zich in de actieve log-fase van groei bevinden.
- Vlak voor de elektroporatieprocedure wordt de Matrigel-coating geaspireerd en vervangen door 2 mL van het voorverwarmde antibiotica-vrije FC medium plus 10 μM Y-27632 (ROCK-remmer). Verwarm dit antibioticumvrije FC-medium voor tot 37 °C in een incubator gedurende ten minste 20 min voordat de cellen worden geoogst voor het electroporatiesysteem.
OPMERKING: Voeg GEEN penicilline-streptomycine (P/S) of andere antibiotica toe aan deze specifieke batch medium. Na elektroporatie blijft het celmembraan tijdelijk permeabel en kwetsbaar. De aanwezigheid van antibiotica kan leiden tot een toename van apoptose. - Aspireer het medium van de AFC's voor elektroporatie en was de monolaag één keer met DPBS zonder Ca²⁺²⁺/Mg²⁺.
- Voeg 2 mL TrypLE Select Enzyme toe (voor T25-fles) en incubeer bij 37 °C gedurende 4–5 min.
- Neutraliseer met 6 mL FC-volledig medium en breng over naar een conische buis van 15 mL. Tel de cellen met een automatische celsteller.
- Centrifugeer bij 300 × g gedurende 5 min bij kamertemperatuur.
- Verwijder het supernatant volledig met een 200 μL pipetpunt, waarbij erop wordt gelet dat het kleine celpellet niet wordt verstoord.
- Resuspendeer de celpellet in Buffer R tot een uiteindelijke dichtheid van 1,0 × 10⁷ naar 1,4 × 10⁷ cellen/ml
OPMERKING: Aspireer het supernatant zo volledig mogelijk om ervoor te zorgen dat de celpellet droog is. Resterend kweekmedium kan de resuspensiebuffer verdunnen, wat de efficiëntie van de elektroporatie kan verminderen. Gebruik Buffer R (voor adherente cellen) voor AFC's. Controleer de bufferkeuze aan de hand van de aanbevelingen van de fabrikant.
- Voer electroporatie uit.
- Aliquoteren 110 μL van de celsuspensie (met 1,0–1,4 × 10⁶ cellen) in een steriele microcentrifugebuis van 1,5 mL.
OPMERKING: Voeg een extra 10 μL voeg Buffer R toe tot het eindvolume om er zeker van te zijn dat er voldoende celresuspensie aanwezig is, wat helpt bij het voorkomen van de introductie van luchtbellen tijdens het aspireren. - Toevoegen 5 μg plasmidmengsel aan de 110 μL celaliquot. Meng door 3 keer voorzichtig te pipetteren.
- Bevestig een steriele 100 μL bevestig de electroporatietip aan de pipet. Zorg ervoor dat de tip stevig vastklikt.
- Laden 100 μL van de cel-/DNA-suspensie, waarbij wordt gecontroleerd of er geen zichtbare luchtbellen aanwezig zijn.
LET OP: Luchtbellen veroorzaken vlambogen tijdens de elektrische puls, wat cellen doodt en de tip beschadigt. Als er bellen zichtbaar zijn, druk het mengsel dan terug in de buis en herhaal de aspiratie langzaam. - Plaats de gevulde pipette verticaal in de bufferbuis in het station tot deze vastklikt. Controleer op het touchscreen of alle parameters correct zijn en druk vervolgens op de Start-knop om de pulsserie uit te voeren.
- Wacht tot het scherm wordt weergegeven "Voltooid" (doorgaans binnen 1–2 s). Verwijder onmiddellijk de pipet uit het station en breng de geëlektroporeerde celsuspensie direct over in 2–3 wells van een gecoate 6-wells plaat met voorverwarmd antibioticumvrij FC-medium + 10 μM Y-27632.
- Gooi de gebruikte tip veilig weg. Herhaal de stappen voor aanvullende wells of replica's indien nodig. Plaats de 6-wells plaat in een 37 °C, 5% CO2₂ bevochtigde incubator gedurende de nacht.
- Aliquoteren 110 μL van de celsuspensie (met 1,0–1,4 × 10⁶ cellen) in een steriele microcentrifugebuis van 1,5 mL.
3. Reprogrammeringscultuur na elektroporatie
OPMERKING: Deze sectie beschrijft de opeenvolgende mediumveranderingen en het bereiken van volledige herprogrammering van AFC's naar iPSC's. De tijdlijn beslaat ongeveer 25 dagen vanaf de elektroporatie tot het plukken van koloniën.
- Zuig ongeveer 16–18 u na electroporatie voorzichtig het medium af zonder overlevende adherente cellen te verplaatsen. Voeg voorzichtig 2 mL voorverwarmd FC-medium (bevattend P/S) toe aan elke well om de cellen de eerste 24 u te laten stabiliseren. Plaats de plaat terug in de incubator.
- Vervang van dag 2 tot en met dag 6 om de dag de helft van het medium: zuig voorzichtig 1 mL verbruikt medium af en voeg 1 mL vers TeSR-E8 (E8)-medium toe.
OPMERKING: Gedeeltelijke mediumvervanging behoudt uitgescheiden autocriene factoren die vroege herprogrammeringsprocessen ondersteunen. Zuig langzaam vanaf de rand van de well af om verstoring van losjes gehechte cellen in transit te minimaliseren. - Voer op dag 7 een volledige mediumvervanging uit met 2 mL E8 om de dag.
- Observeer dagelijks de morfologische veranderingen onder de microscoop. Verwacht dat er rond dag 10–14 gedeeltelijk hergeprogrammeerde, kasseistenen-achtige clusters verschijnen.
OPMERKING: (Optioneel) Vul culturen tussen dag 9–15 aan met 25–100 μM natriumbutyraat als de kolonievorming gering is23. - Vervang het E8-medium vanaf dag 15 dagelijks.
- Inspecteer vanaf ongeveer dag 18 de wells dagelijks op de verschijning van echte iPSC-kolonies. Een volledig tijdlijn van de herprogrammeringsworkflow vanaf dag 0 electroporatie tot het plukken van kolonies wordt weergegeven in Tabel 2.
4. Mechanisch opvissen van iPSC-kolonies en expansie van gevestigde iPSC-lijnen
OPMERKING: Maak onderscheid tussen echte iPSC-kolonies en gereprogrammeerde of niet-gereprogrammeerde cellen op basis van de onderstaande morfologische criteria. Identificeer "ideale" kolonies op basis van de volgende morfologische kenmerken: (1) Afbakening van de rand: Zoek naar een scherpe, gladde en cirkelvormige rand die de kolonie duidelijk scheidt van de omliggende vruchtwatercellen; (2) Celldichtheid: Zorg ervoor dat de cellen binnen de kolonie klein zijn, dicht op elkaar gepakt zitten en een hoge kern-cytoplasmaverhouding hebben met prominente nucleoli; (3) Refractiviteit: Hoogwaardige kolonies zien er helder en sterk refractief uit onder fasecontrast; (4) Vlakheid: De kolonie moet groeien als een platte, tweedimensionale laag in plaats van een driedimensionale "klont". Gedeeltelijk gereprogrammeerde kolonies verschijnen vaak eerder dan echte iPSC-kolonies en hebben de neiging groter, dikker en driedimensionaler te zijn. Deze zullen spontaan differentiëren bij het oppikken en passeren. Pik geen kolonies op die "vacuolen", grillige randen of tekenen van centrale differentiatie vertonen.
- Mechanisch oppikken en overbrengen van iPSC-kolonies
- Bereid een met Matrigel gecoate 24-wells plaat voor met 0,5 mL per well E8-medium aangevuld met 10 μM Y-27632. Bewaar bij 37 °C tot gebruik.
- Plaats de kweekplaat onder een stereomicroscoop in een Klasse II veiligheidskabinet. Steriliseer het objectief en het tafelblad van de stereomicroscoop met 70% ethanol voordat de plaat in het gezichtsveld wordt gebracht.
- Identificeer kolonies die de juiste morfologie vertonen (plat, compact, scherpe randen).
- Gebruik een steriele 10 μL pipetpunt die in een kleine hoek wordt gehouden (ongeveer 30° ten opzichte van de horizontaal) en kras voorzichtig rond de omtrek van een geselecteerde kolonie om de grens te definiëren. Snijd de kolonie in ongeveer 3 fragmenten door parallelle incisies over de diameter te maken. Gebruik dezelfde pipetpunt om de koloniefragmenten voorzichtig van het substraat af te schrapen en op te tillen, en breng de fragmenten over naar één well van de voorbereide 24-wells plaat.
- Herhaal deze stappen voor elke kolonie en plaats de fragmenten in afzonderlijke wells.
- Plaats de 24-wells plaat in de incubator. Laat deze 24 h ongestoord staan om de aanhechting van de fragmenten mogelijk te maken.
- Vervang vanaf Dag 2 na het oppikken dagelijks het medium door E8-medium zonder Y-27632.
- Wanneer de opgepikke kolonies uitbreiden tot 70–80% confluentie (doorgaans 3–6 dagen), moet er worden gepassaged met Accutase.
- Passageren en expansie van gevestigde iPSC-lijnen
- Sluis het medium uit de well met iPSC's af. Voeg Accutase toe om de monolaag te bedekken. Incubeer bij kamertemperatuur gedurende 2–6 min. Observeer de randen van de kolonie onder de microscoop; de cellen moeten uit elkaar beginnen te trekken en er moeten openingen tussen de cellen verschijnen.
- Sluis de Accutase-oplossing volledig af. Voeg 1 mL E8-medium + 10 μM Y-27632 toe. Pipetteer het medium voorzichtig 5–8 keer over het oppervlak van de kolonie met een P1000-pipet om de kolonies te dissociëren in kleine klontjes van 2–8 cellen.
OPMERKING: Vermijd overmatige dissociatie van iPSC's, aangezien dit de overleving drastisch vermindert. Het doel is uniforme kleine klontjes, geen single-cell suspensie. - Breng de klontjes met 1 mL E8-medium + 10 μM Y-27632 gelijkmatig over naar een vers met Matrigel gecoate 12-wells plaat. Plaats de plaat in de incubator.
- Vervang het medium dagelijks met E8-medium (zonder Y-27632 na Dag 1).
- Ga door met passageren elke 3–4 dagen met een split-ratio van 1:2 tot 1:5, afhankelijk van de confluentie.
- Kweek iPSC-lijnen gedurende minimaal 10 passages voordat ze worden gebruikt voor downstream toepassingen om een stabiele episomale klaring te garanderen.
5. Karakterisering van aneuploïde iPSC-lijnen
OPMERKING: Voer de volgende validatie-assays uit op gevestigde iPSC-lijnen (passage 10 of later) om de pluripotentie, karyotype-integriteit en de klaring van episomale vectoren te bevestigen.
- Bevestig de expressie van pluripotentie-markers.
- Valideer de expressie van kern-pluripotentie-markers met behulp van immunofluorescentiekleuring, flowcytometrie, of beide. De verwachte markerprofielen zijn samengevat in Tabel 3.
OPMERKING: Hoewel immunofluorescentiekleuring een eerste bevestiging van pluripotentie biedt, worden RT-qPCR en RNA-seq aanbevolen voor een bredere evaluatie van de expressie van genen geassocieerd met pluripotentie, waaronder LIN28A, DPPA4 en KLF4.
- Valideer de expressie van kern-pluripotentie-markers met behulp van immunofluorescentiekleuring, flowcytometrie, of beide. De verwachte markerprofielen zijn samengevat in Tabel 3.
- Karyotypeanalyse via G-banding
KRITIEK: Herprogrammering kan trisomie-redding induceren in een subset van klonen. Screen meerdere klonen (5–10 per ouderlijn) om zowel aneuploïde-behouden als euploïde-geredde derivaten te identificeren.- Oogst iPSC's bij passage 10–15 bij een confluentie van 70%–80%.
- Voeg 0,1 μg/mL colcemid toe aan het kweekmedium. Incubeer 2–4 u bij 37 °C om cellen in de metafase te arresteren.
OPMERKING: Colcemid is een mitotisch gif. Hanteer dit met handschoenen in een biologische veiligheidskabinet. Voer colcemid-bevattend afval af als gevaarlijk materiaal. - Dissocieer cellen tot een single-cell suspensie met behulp van Accutase of een equivalent. Centrifugeer 5 min bij 300 × g .
- Resuspendeer het pellet in 5 mL voorverwarmde hypotone oplossing (0,075 M kaliumchloride). Incubeer 15–20 min bij 37 °C.
- Voeg 1 mL vers bereid fixeermiddel (methanol: azijnzuur, 3: 1 volumeverhouding) toe aan de buis onder voorzichtig mengen. Centrifugeer 10 min bij 300 × g.
- Aspireren van het supernatant. Voeg 5 mL vers fixeermiddel toe. Meng voorzichtig en incubeer 10 min. Centrifugeer opnieuw.
- Herhaal de fixatiestap (Stap 6) nogmaals voor in totaal 3 fixaties.
- Na de laatste centrifugatie resuspendeert u het pellet in 0,5–1 mL vers fixeermiddel om een passende celdichtheid te bereiken.
- Breng 2–3 druppels van de celsuspensie vanaf een hoogte van ongeveer 30 cm aan op schone, natte glazen objectglazen. Laat aan de lucht drogen.
- Bak de objectglazen 2 u bij 80 °C of overnight bij 65 °C om de chromosomen te laten rijpen.
- Voer G-banding uit: behandel de objectglazen 30–60 s met een 0,025% trypsine-oplossing, spoel af en kleur 1–5 min met een 5% Giemsa-oplossing.
- Analyseer ten minste 20 goed verspreide metafasen per kloon onder een bright-field olie-immersiemicroscoop (100× objectief).
- Documenteer het karyotype met behulp van de ISCN-nomenclatuur (bijv. 47,XX,+21 voor vrouwelijke trisomie 21; 45,X voor syndroom van Turner).
OPMERKING: G-banded karyotypering detecteert grote chromosomale afwijkingen, maar heeft een beperkte resolutie. Complementaire assays, zoals Copy Number Variation (CNV)-analyse, Whole Exome Sequencing (WES) of Whole Genome Sequencing (WGS), worden aanbevolen om submicroscopische genetische veranderingen te identificeren en de genomische integriteit van de iPSC te bevestigen.
- Verifieer de klaring van de episomale vector via PCR.
OPMERKING: Deze stap bevestigt dat alle episomale plasmiden verloren zijn gegaan uit de iPSC-lijn via PCR-amplificatie van vectorspecifieke sequenties.- Extraheer genomisch DNA uit iPSC's (passage ≥ 10) en uit niet-getransfecteerde controle-AFC's met behulp van een standaard kolomgebaseerde extractiekit.
- Stel een PCR-reactie van 25 μL op. Voer de PCR uit met Orip/GAPDH primerparen onder de cycling-condities (94 °C gedurende 2 min; gevolgd door 35 cycli van 94 °C gedurende 30 s, 55 °C gedurende 30 s en 72 °C gedurende 30 s; finale extensie bij 72 °C gedurende 5 min). Neem in elke PCR-run een positieve controle (plasmide template) en een negatieve controle (genomisch DNA van niet-getransfecteerde cellen) op.
- Scheid de PCR-producten op een 2% agarosegel met een passende DNA-ladder.
- Interpreteer de resultaten: iPSC-lijnen met geklaarde episomen vertonen geen amplificatiebanden bij 544 bp. De positieve controle moet banden van de verwachte grootte vertonen. De negatieve controle mag geen banden vertonen.
- Mycoplasma-detectie via PCR
- Verzamel 0,5–1 mL kweeksupernatant na ten minste 24 u incubatie van iPSC-culturen vóór het vervangen van het medium en centrifugeer 5 min bij 12.000 × g om cellulair debris te verwijderen.
- Gebruik het geklaarde supernatant als template voor PCR met de PCR Mycoplasma Detection Kit, volgens de instructies van de fabrikant.
- Scheid de PCR-producten via 2% agarosegelelektroforese. Ga alleen door met downstream experimenten als is bevestigd dat de iPSC-culturen mycoplasma-vrij zijn.
OPMERKING: Indien de ouder-AFC's niet zijn verkregen uit een gecertificeerde biobank met gedocumenteerde steriliteit en mycoplasma-testen, wordt routineuze mycoplasma-screening vóór herprogrammering sterk aanbevolen als initiële kwaliteitscontrolesstap.
- Assay voor trilineage differentiatiepotentieel (Optioneel)
- Bevestig het in vitro differentiatievermogen middels gerichte trilineage differentiatie of de vorming van embryoid bodies (EB), gevolgd door analyse van kiemlaagspecifieke markers. Voer alternatief in vivo teratoomvorming uit in immuundeficiënte muizen voor gouden standaard validatie van de pluripotentie.
OPMERKING: Raadpleeg voor gedetailleerde teratoom-assays of protocollen voor gerichte differentiatie de gepubliceerde standaardprocedures24. Deze assays worden aanbevolen, maar kunnen worden weggelaten als uitgebreide in vitro markeranalyse en functionele differentiatiegegevens worden verstrekt.
- Bevestig het in vitro differentiatievermogen middels gerichte trilineage differentiatie of de vorming van embryoid bodies (EB), gevolgd door analyse van kiemlaagspecifieke markers. Voer alternatief in vivo teratoomvorming uit in immuundeficiënte muizen voor gouden standaard validatie van de pluripotentie.
6. Clonale afleiding en verificatie op enkelcelniveau
OPMERKING: Om ervoor te zorgen dat elke iPSC-lijn afkomstig is van een enkele cel, wordt een tweestaps clonale verificatieprocedure aanbevolen. Na mechanische selectie en expansie wordt een secundaire enting van een enkelcelkloon aanbevolen na de karyotypebevestiging. De verificatie dat elke iPSC-lijn afkomstig is van een enkele cel is een kritische vereiste voor de generatie van iPSC's. Dit garandeert de verwijdering van parentaal somatisch mosaicisme en bevestigt dat de diagnostische aneuploïde signatuur uniform is over de gehele populatie.
- Uitplaten van enkelvoudige cellen
- Dissocieer en resuspendeer karyotype-bevestigde iPSC-kolonies tot een enkelcel-suspensie met Accutase gedurende 2–6 min bij 37 °C.
- Gebruik E8-medium aangevuld met 10 µM Y-27632 om de overleving van geïsoleerde enkelvoudige cellen te maximaliseren. Voer de depositie van enkelvoudige cellen uit met een van de volgende methoden:
- Beperkende verdunning: Verdun de suspensie tot een concentratie van 0,5–1 cel per 100 µL. Plaats 100 µL in elke well van een Matrigel-gecoate 96-well plaat.
- Fluorescence-Activated Cell Sorting (FACS): Sorteer enkelvoudige levensvatbare cellen direct in de wells van de Matrigel-gecoate 96-well plaat.
- Verificatie van monoclonale status en expansie
- Initiële inspectie: Inspecteer elke well 24–48 u na het uitplaten met een hoge-resolutie fasecontrastmicroscoop. Markeer alleen die wells die een enkelvoudige, duidelijk gedefinieerde aanhechting bevatten. Sluit wells met meerdere clusters of geen cellen uit.
- Koloniegroei: Houd de geïdentificeerde enkelvoudige cellen na de eerste 24 u in E8-medium zonder ROCK-inhibitor.
- Sequentiële expansie: Zodra de uit enkelvoudige cellen voortgekomen kolonie een confluentie van 70% bereikt, breid je de cellen sequentieel uit van de 96-well plaat naar 24-well, 12-well en uiteindelijk 6-well formaten.
OPMERKING: Voor onderzoek naar celtherapie is fotografisch bewijs van het enkelcel-stadium (Dag 0 of Dag 1) vaak vereist als onderdeel van het analysecertificaat om de lineage-pure status van de iPSC-lijnen aan te tonen.
Potentiële oorzaken van mislukte herprogrammering, suboptimale kolonievorming en uitdagingen tijdens het vestigen van iPSC-klonen zijn samen met praktische oplossingen samengevat in Tabel 4.
Resultaten
Morfologische progressie tijdens herprogrammering
Primaire vruchtwatercellen vertoonden heterogene morfologieën, waaronder E-type en F-type cellen (Figuur 1A). F-type cellen moeten worden uitgebreid en gebruikt voor herprogrammering. Na elektroporatie van AFC's met Epi5 episomale plasmiden wordt een karakteristieke reeks morfologische veranderingen waargenomen. Op dag 0 vertonen AFC's een typische spoelvormige, fibroblast-achtige morfologie. Tegen dag 3–5 verschijnt het eerste morfologische bewijs van herprogrammering: kleine clusters epitheel-achtige cellen ontstaan binnen de mesenchymale celpopulatie, wat het begin van MET markeert. Deze transitionele cellen zijn kleiner en compacter dan de omliggende mesenchymale cellen. Tussen dag 7–10 vertonen de celclusters een toegenomen compactie, wat duidt op een overgang naar een karakteristieke epitheliale morfologie. Volledig herprogrammeerde iPSC-kolonies beginnen te verschijnen tussen dag 14–16. Tegen dag 21–25 zijn mature iPSC-kolonies klaar om te worden opgepikt (Figuur 1B). Het pCE-GFP plasmid werd parallel aan de herprogrammeringsplasmiden geëlektroporeerd om de efficiëntie van de DNA-afgifte te beoordelen (Figuur 1C). GFP-expressie kan worden gebruikt als visuele indicator voor succesvolle elektroporatie en plasmidpersistentie tijdens de vroege kweek.
Het onderscheiden van volledig gereprogrammeerde iPSC-koloniën van partiële reprogrammering
Een cruciale vaardigheid in dit protocol is het vermogen om volledig gereprogrammeerde iPSC-koloniën te onderscheiden van gedeeltelijk gereprogrammeerde koloniën, aangezien het selecteren van dat laatste leidt tot het mislukken van de vestiging van stabiele iPSC-lijnen. Tabel 5 vat de belangrijkste morfologische en moleculaire verschillen tussen deze twee kolonietypen samen.
Figuur 2 illustreert een zij-aan-zij vergelijking. Gedeeltelijk gereprogrammeerde cellen vormen vaak losse aggregaten die geen duidelijke grenzen hebben. Deze clusters kunnen een zekere mate van compactie vertonen, maar behouden doorgaans mesenchymale kenmerken of vertonen onregelmatige, "wazige" randen, wat duidt op een onvolledige epigenetische reset (Figuur 2, links). Tijdens de primaire reprogrammering kunnen kolonies met een typische iPSC-achtige morfologie gebieden van spontane differentiatie bevatten (Figuur 2, midden). Morfologisch gedefinieerde ongedifferentieerde regio's kunnen handmatig worden geselecteerd en opgepikt voor verdere expansie. Succesvol gevestigde iPSC-lijnen moeten de klassieke compacte pluripotente morfologie vertonen, gekenmerkt door een hoge kern-cytoplasmaverhouding, prominente nucleoli en extreem nauwe cel-celverbindingen (Figuur 2, rechts).
Doorgaans werden er na herprogrammering via elektroporatie met 1–2 × 10⁶ AFC's. Van elke AFC-lijn werden handmatig 24 enkele kolonies opgepikt, wat resulteerde in 1-9 uitbreidbare iPSC-klonen (Tabel 1).
Validatie van pluripotentiemarkers
Gevestigde iPSC-lijnen moeten het volledige complement van pluripotentiemarkers tot expressie brengen. Figuur 3 toont representatieve resultaten van immunofluorescentie en FACS voor een aneuploïde iPSC-lijn met het Klinefelter-syndroom (47,XXY) bij passage 15. De nucleaire markers OCT4, NANOG en SOX2 vertonen een uniforme expressie over de gehele kolonie, terwijl de celoppervlakmarker TRA-1-60 een karakteristieke ringvormige membraankleuring vertoont (Figuur 3A). FACS-analyse kwantificeerde verder hoge expressieniveaus van SSEA-4 en TRA-1-81 (Figuur 3B). Deze expressiepatronen zijn consistent met de vastgestelde criteria voor bona fide pluripotente stamcellen, wat bevestigt dat aneuploïdie de acquisitie van pluripotentie op markerniveau niet belemmert.
Karyotypebevestiging van aneuploïde iPSC's
G-bandingskaryotypeanalyse is essentieel voor elke iPSC-kloon die is afgeleid van aneuploïde vruchtwatercellen. Figuur 4 toont representatieve karyotyperesultaten.
Een positief karyotype-resultaat is de identificatie van iPSC-klonen met het verwachte aneuploïde karyotype, bevestigd in ten minste 20 metafase-spreidingen. Een negatief resultaat is het vinden van uitsluitend euploïde klonen (46,XX of 46,XY) vanuit een aneuploïde bron, wat, hoewel het het succes van het protocol bij het genereren van iPSCs bevestigt, wijst op volledige trisomie-redding en vereist dat de enkelcel-klonale afleiding of herprogrammering wordt herhaald om lijnen te verkrijgen waarin de aneuploïdie behouden is.
Verificatie van de klaring van episomale vectoren
Episomale vectoren worden geleidelijk verdund tijdens het passeren en worden ondetecteerbaar na langdurige kweek in de meeste gevestigde iPSC-lijnen8,25,26,27. De klaring van exogene vectoren is een kenmerk van de niet-integrerende herprogrammeringsmethode. Een positief resultaat (bevestigde episomale klaring) is de afwezigheid van oriP (544 bp) amplificatiebanden bij passage 10 of later. Een negatief resultaat (onvolledige klaring) vertoont aanhoudende banden bij passage 10, wat doorgaans wordt opgelost bij passage 15–20 door verder passeren. GAPDH-amplificatie werd gebruikt als interne controle om de integriteit van het genomisch DNA en een succesvolle PCR-amplificatie te bevestigen (Figuur 5A). Zeldzame gevallen van aanhoudende episomale vectoren voorbij passage 20 kunnen wijzen op genomische integratiegebeurtenissen, wat betekent dat de kloon moet worden weggegooid. Om de biologische veiligheid en experimentele integriteit van de gegenereerde aneuploïde iPSC-lijnen te waarborgen, wordt een PCR-gebaseerde screening op mycoplasmacontaminatie sterk aanbevolen. Celkweeksupernatanten van alle behouden monoclonale lijnen moeten worden verzameld en geanalyseerd via PCR met mycoplasmaspecifieke primers. Alle monoclonale stammen die positief testen (bijv. Kloon #7 en #9) moeten onmiddellijk worden weggegooid (Figuur 5B).
In vitro trilineage differentiatiepotentieel
Bevestiging van het potentieel voor trilineage-differentiatie is een vereiste criterium voor de validatie van iPSC-lijnen. Figuur 6 toont representatieve resultaten van in vitro embryoid body-differentiatie van een trisomie 18 iPSC-lijn. Expressie van PAX6 (ectoderm), T-Brachyury en TBX6 (mesoderm), GATA6 en SOX17 (endoderm) bevestigt het vermogen van aneuploïde iPSC's om te differentiëren tot alle drie de kiemblaadjes (Figuur 6).
Afleiding en verificatie van enkelcelclonen
Om aneuploïde iPSC-modellen met een hoge getrouwheid te vestigen, werd een workflow van twee ronden van single-cell derivatie en verificatie geïmplementeerd om cellulaire heterogeniteit te minimaliseren en potentieel chimerisme uit te sluiten. Na de initiële expansie werden karyotype-normale klonen gedissocieerd en opnieuw gezaaid bij een single-cell densiteit. Microscopische inspectie na 24–48 h bevestigde de aanwezigheid van hechtingsgebeurtenissen afkomstig van een enkele cel, die vervolgens werden geëxpandeerd om gevalideerde monoclonale lijnen te vestigen (Figuur 7A).
Een positief resultaat is de succesvolle expansie van een enkele kolonie uit één cel in een 96-wells plaat, bevestigd door dagelijkse microscopische monitoring waarbij slechts één kolonie per well zichtbaar is (Figuur 7B). Na de expansie moet de herbevestiging van het karyotype en de pluripotentiemarkers overeenkomen met de oorspronkelijke kloon. Een negatief resultaat is de observatie van meerdere koloniën per well of het uitblijven van overleving en expansie van de enkelvoudige cellen.
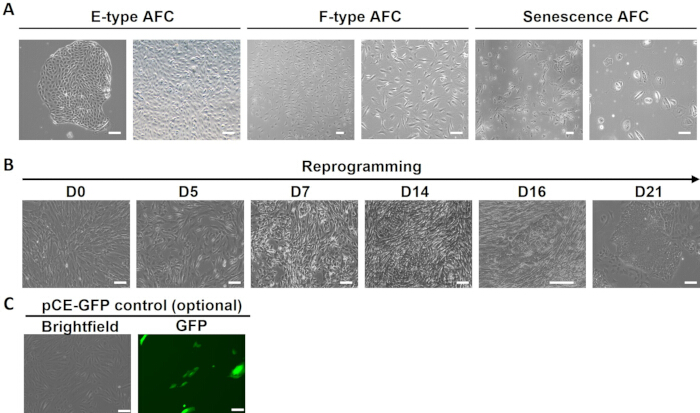
Figuur 1: Morfologische progressie van herprogrammering van vruchtwatercellen met behulp van Epi5 episomale plasmiden. Representatieve afbeeldingen die de morfologie van verschillende typen primaire AFC en de herprogrammeringsprocedure op belangrijke tijdstippen tonen. (A) Fasecontrastbeelden die de drie primaire morfologieën van het startmateriaal tonen: epitheelachtig (E-type), fibroblastachtig (F-type) en senescente AFC's. (B) Representatieve tijdreeksbeelden van het herprogrammeringsproces van dag 0 tot dag 21, die de overgang van primaire AFC's naar het ontstaan van compacte iPSC-achtige kolonies tonen. Dag 0: AF-MSC's vóór elektroporatie, met de typische spoelvormige mesenchymale morfologie. Dag 3–5: Vroege MET-fase; epitheelachtige cellen verschijnen in clusters te midden van resterende mesenchymale cellen. Dag 7–10: Primaire herprogrammeringscellen ontstaan. Dag 14–16: Primaire herprogrammeringskolonies (MET-kolonies) met een kassei-achtige morfologie maar slecht gedefinieerde grenzen. Dag 21–25: Volledig herprogrammeerde iPSC-kolonies die ontstaan met platte, dicht opeengepakte cellen, duidelijke randen, een hoge kern-cytoplasma-ratio en prominente nucleoli. (C) Representatieve fluorescentiebeelden die GFP-expressie tonen na elektroporatie van AFC met pCE-GFP. De schaalbalk staat voor 100 µm. Klik hier om een grotere versie van deze figuur te bekijken.
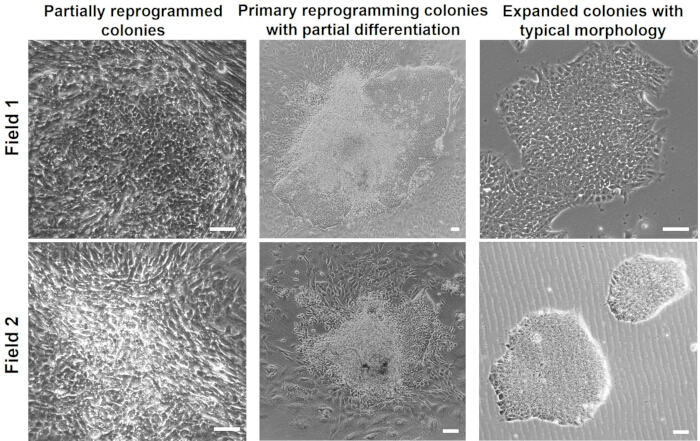
Figuur 2: Vergelijking van volledig herprogrammeerde en gedeeltelijk herprogrammeerde kolonies. Links: Gedeeltelijk herprogrammeerde kolonies die losse aggregaten en onregelmatige randen vertonen. Midden: Primaire herprogrammeringskolonies met typische iPSC-achtige regio's vergezeld van gebieden met spontane differentiatie. Rechts: Uitgebreide kolonies met typische iPSC-morfologie. Schaalbalken, 100 µm. Klik hier om een grotere versie van deze figuur te bekijken.
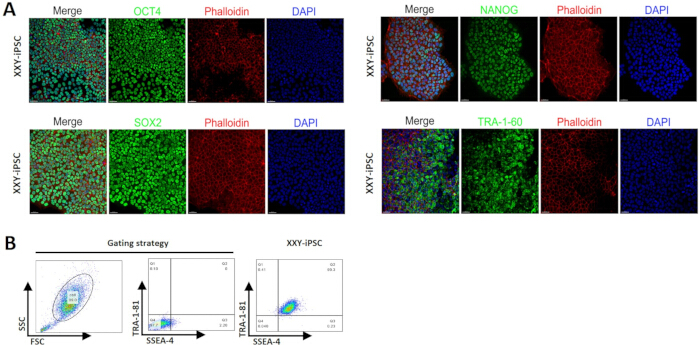
Figuur 3: Immunofluorescentieanalyse van pluripotentiemerkers in aneuploïde iPSC's. (A) Immunofluorescentiekleuring van XXY-iPSC's voor kernpluripotentiemerkers, waaronder OCT4, SOX2, NANOG en TRA-1-60 (groen). De cytoskeletstructuur is gevisualiseerd met Phalloidine (rood) en kernen met DAPI (blauw). De schaalbalk staat voor 50 µm. (B) Flowcytometrieanalyse (FACS) met weergave van de gating-strategie en kwantitatieve expressie van SSEA-4 en TRA-1-81 in de XXY-iPSC-lijn. Klik hier om een grotere versie van deze figuur te bekijken.
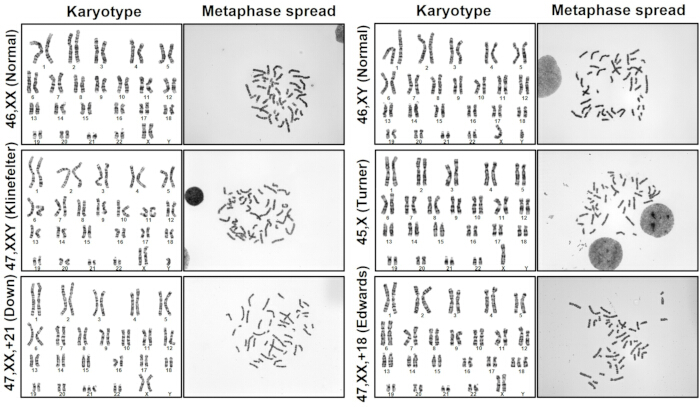
Figuur 4: G-banding karyotype-analyse van aneuploïde iPSC-lijnen. G-gebande karyotype-analyse en overeenkomstige metafase-spreidingen die de stabiele instandhouding van chromosomale abnormaliteiten in de gegenereerde lijnen bevestigen, waaronder 46,XX (normaal vrouwelijk), 46,XY (normaal mannelijk), 47,XXY (syndroom van Klinefelter), 45,X (syndroom van Turner), 47,XX,+21 (syndroom van Down) en 47,XX,+18 (syndroom van Edwards). Klik hier om een grotere versie van deze figuur te bekijken.
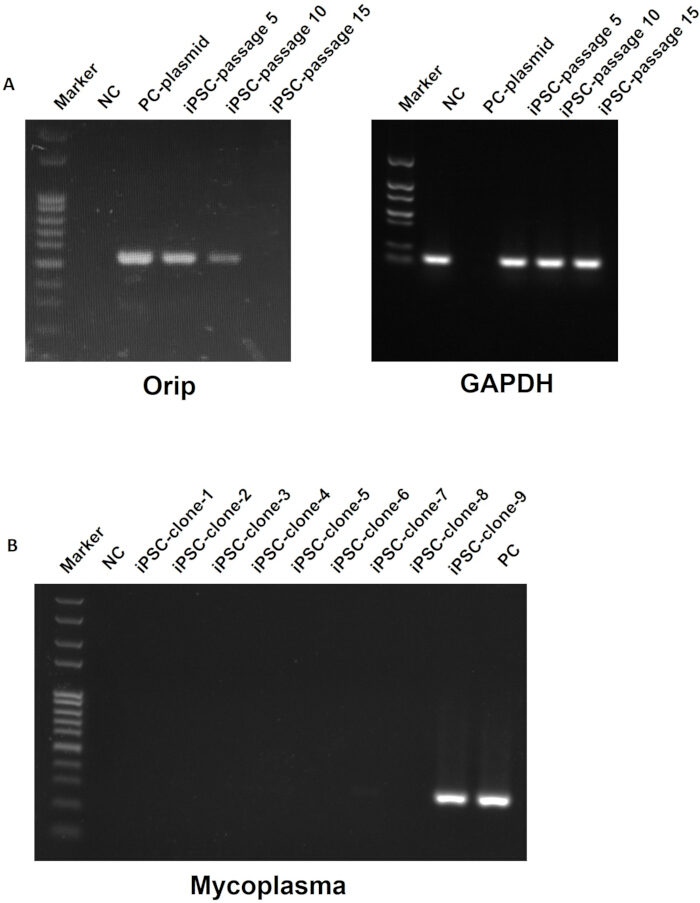
Figuur 5: PCR-gebaseerde detectie van episomale vectorklaring en mycoplasma-test in aneuploïde iPSC-lijnen. Agarosegelelectroforese (2%) van PCR-producten geamplificeerd met oriP/GAPDH of mycoplasma-primerset. (A) Totale vectorklaring in iPSC-kloon bij verschillende passagen. (B) PCR-gebaseerde detectie van mycoplasma-contaminatie in 9 onafhankelijke klonen. Kloon #7 (zwak) en #9 (sterk) vertonen mycoplasma-contaminatie en moeten worden weggegooid. PC, positieve controle; NC, negatieve controle. Klik hier om een grotere versie van deze figuur te bekijken.
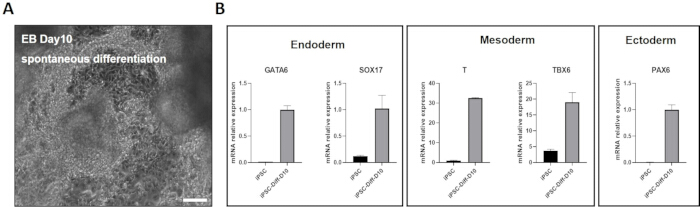
Figuur 6: In vitro trilineage-differentiatie van aneuploïde iPSCs. (A) Fasecontrast-micrografie die de morfologie van embryoid bodies (EB) illustreert op dag 10 tijdens het spontane differentiatieproces na hechting aan een met gelatine gecoat oppervlak. De schaalbalk vertegenwoordigt 100 µm. (B) RT-qPCR-analyse die het verlaten van de pluripotentie en de daaropvolgende lineage-committment kwantificeert. De resultaten tonen een significante toename in de relatieve mRNA-expressie van kenmerkende markers voor de drie embryonale kiemblaadjes op dag 10 vergeleken met ongedifferentieerde iPSCs: endoderm (GATA6, SOX17), mesoderm (T, TBX6) en ectoderm (PAX6). Gegevens worden gepresenteerd als gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
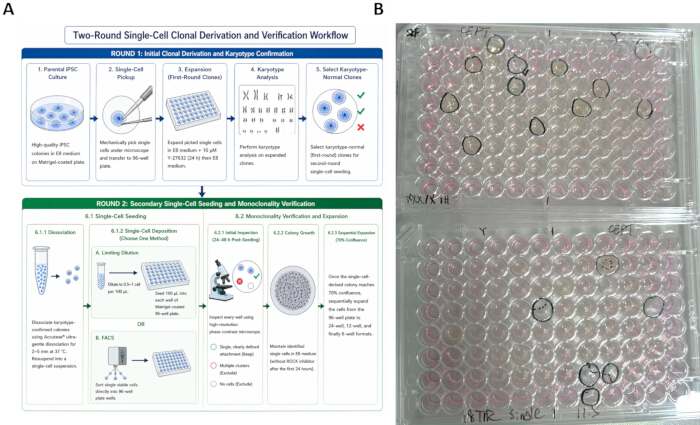
Figuur 7: Workflow voor enkelcel-klonale afleiding van aneuploïde iPSC-lijnen. (A) Schematische workflow die het proces van klonale verificatie illustreert voor Ronde 1 (initiële afleiding en karyotypebevestiging) en Ronde 2 (secundaire enkelcel-uitplating via limiterende verdunning of FACS om monoclonality te waarborgen). Stadium 1: Mechanische pick-up van individuele iPSC-koloniën, expansie naar 6-wells platen en karyotypeverificatie. Stadium 2: Voor karyotype-bevestigde aneuploïde klonen, enkelcel-uitplating door limiterende verdunning of FACS in 96-wells platen om de klonale oorsprong vanuit één enkele cel te waarborgen. Alleen wells met de groei van een enkele kolonie worden geëxpandeerd. (B) Representatieve afbeelding van 96-wells platen tijdens de klonale expansiefase, waarbij succesvol geïdentificeerde koloniën afgeleid van een enkele cel zijn omcirkeld voor sequentiële expansie. Klik hier om een grotere versie van deze figuur te bekijken.
| Genetische achtergrond | Karyotype | Aantal geteste AFC-lijnen | Aantal geplukte enkelvoudige kolonies na herprogrammering | Aantal succesvol gevestigde iPSC-klonen |
| Trisomie 21 | 47,XX,+21 | 2 | 48 | 9 |
| Trisomie 18 | 47,XX,+18 | 1 | 24 | 8 |
| Syndroom van Klinefelter | 47,XXY | 2 | 48 | 6 |
| Monosomie X | 45,X | 1 | 24 | 1 |
| Normaal vrouwelijk | 46,XX | 1 | 24 | 2 |
| Normaal mannelijk | 46,XY | 2 | 48 | 6 |
| Enkelvoudige kolonies werden handmatig geplukt op basis van koloniemorfologie na herprogrammering en uitgebreid voor verdere karakterisering. Het aantal succesvol gevestigde iPSC-klonen geeft de kolonies aan die na het plukken konden worden uitgebreid en in stand gehouden. | ||||
Tabel 1: Details van de AFC-lijnen gebruikt bij somatische celreprogrammering.
| Dag | Samenstelling van het medium | Belangrijke observatie |
| 0 | FC-medium zonder antibioticum + Y27632 | Elektroporatie |
| 1 | FC-medium | Overlevende cellen beginnen aan het herstel |
| 2 – 6 | FC naar E8 (halve mediumwissel) | MET begint; cellen worden compact; kleinere, ronder cellen verschijnen in clusters |
| 7 – 8 | E8 (volledige verversing om de dag) | Vroege kolonievorming |
| 9 – 14 (optioneel) | E8 (+ 25 μM NaB) | Kasseisteenachtige clusters met onduidelijke begrenzingen; variabele groottes |
| 15-18 | E8 (dagelijks) | Echte iPSC-koloniën verschijnen (dag 18–25): platte, dicht opeengepakte koloniën met scherpe randen, hoge kern-cytoplasmaverhouding |
| 19 – 25 | E8 (dagelijks) | Kolonies overschrijden 400 μm in diameter; uniforme platte morfologie; klaar om te plukken |
Tabel 2: Samenvatting van de volledige herprogrammeringstijdlijn van Dag 0 tot het plukken van koloniën.
| Marker | Cellulaire lokalisatie | Detectiemethode |
| OCT4 | Nucleair | Immunofluorescentie / Flowcytometrie |
| NANOG | Nucleair | Immunofluorescentie / Flowcytometrie |
| SOX2 | Nucleair | Immunofluorescentie / Flowcytometrie |
| SSEA-4 | Celoppervlak | Immunofluorescentie / Flowcytometrie |
| TRA-1-60 | Celoppervlak | Flowcytometrie / Live stain |
| TRA-1-81 | Celoppervlak | Flowcytometrie / Live stain |
Tabel 3: Verwachte expressieprofielen van pluripotentiemarkers van gevestigde iPSC-klonen.
| Probleem | Mogelijke oorzaak | Oplossing |
| Lage celviabiliteit (< 40%) na elektroporatie | 1. Pulseparameters te intens voor deze cellijn | 1. Test mildere parameters |
| 2. Cellen waren overconfluent (> 90%) | 2. Zorg voor een confluentie van 75–90% op dag 0 | |
| 3. Luchtbellen veroorzaakten vlambogen | 3. Aspireer langzaam; controleer de tip op luchtbellen voordat u pulseert | |
| 4. Gedegradeerde of incorrecte resuspensiebuffer | 4. Gebruik verse Buffer R uit de kit | |
| 5. Slechte celkwaliteit voorafgaand aan electroporatie | 5. Gebruik uitsluitend P3–P5-cellen met een gezonde morfologie | |
| Geen iPSC-kolonies waargenomen op dag 25 | 1. Het medium was inactief | 1. Gebruik vers bereid E8; voeg NaB toe in een concentratie van 25–100 μM van dag 9 tot dag 14 |
| 2. Plasmid-DNA gedegradeerd of onjuist ontdooid | 2. Verifieer de integriteit van het plasmide op agarosegel | |
| 3. Overgroei van contaminerende gedifferentieerde cellen | 3. Verwijder gedifferentieerde gebieden handmatig voordat ze zich verspreiden; passeer de cellen om de dichtheid te verminderen | |
| 4. Matrixcoating is mislukt of verslechterd | 4. Bereid verse coating; houd op ijs | |
| iPSC-kolonies differentiëren spontaan na het uitplukken | 1. Kolonies zijn te vroeg gepikt (vóór dag 18) | 1. Wacht tot er kolonies zijn gevormd > 400 μm met een volwassen platte morfologie |
| 2. Onvoldoende of gedegradeerde matrixcoating | 2. Zorg voor een verse coating; laat deze niet opdrogen voor gebruik | |
| 3. Gepasseerd als enkelvoudige cellen zonder ROCK-remmer | 3. Gebruik altijd Y-27632 gedurende de eerste 24 uur na het passeren | |
| Karyotype vertoont verlies van de verwachte aneuploïdie (trisomie-redding) | 1. Spontane chromosoomeliminatie intrinsiek aan het herprogrammeringsproces | 1. Screen meerdere klonen (≥ 5–10) per lijn; gereden klonen dienen als isogene euploïde controles |
| 2. Startcellen met een hoog passagenummer zijn vatbaarder voor rescue | 2. Gebruik uitsluitend P3–P5-cellen met een gezonde morfologie | |
| PCR detecteert episomale sequenties bij late passagen (P10+) | 1. Onvoldoende passageren sinds herprogrammering | 1. Ga door met passageren tot P15–P20; test opnieuw via PCR |
| 2. Plasmiden voor persistente instandhouding van EBNA-1-expressie | 2. Verlengde kweek lost dit gewoonlijk op; monitor elke 5 passages | |
| 3. Vals-positieven door residuele plasmidcontaminatie in de preparatie | 3. Neem适当e negatieve controles op; gebruik kolomgebaseerde DNA-zuivering | |
| Vorming van vlambogen/vonken tijdens de electroporatiepuls | 1. Luchtbellen die in de tip zijn opgesloten | 1. Aspireer het mengsel langzaam; tik tegen de buis om luchtbellen te verwijderen vóór het laden |
| 2. Hoge zoutconcentratie in DNA-monster | 2. Gebruik een endotoxinevrije plasmidpreparatie | |
| 3. Cellulaire debris die de opening van de tip verstopt | 3. Filtreer de celsuspensie door 40 μm celzeef | |
| 4. Tip beschadigd of hergebruikt boven de limiet | 4. Gebruik elke tip maximaal 2 keer; controleer op beschadigingen |
Tabel 4: Gids voor het oplossen van problemen bij veelvoorkomende complicaties tijdens AFC-herprogrammering en de vestiging van iPSC-klonen.
| Kenmerk | Gedeeltelijk gereprogrammeerde kolonies | Volledig gereprogrammeerde iPSC-koloniën |
| Tijdstip van uitkomen | Verschijnt vroeg (dag 7–10) | Variabel, verschijnt gewoonlijk later (dag 14–18) |
| Kolonierand | Onregelmatige randen | Scherpe, duidelijk gedefinieerde randen |
| Celmorfologie | Grotere cellen, heterogeen | Klein, uniform, hoge kern-cytoplasmaverhouding |
| Celpakking | Losjes gevuld | Dicht opeengepakt, kasseistenenpatroon |
| Nucleoli | Onopvallend | Prominente nucleoli |
| Pluripotentiemarkers | Negatief of zwak/focaal | Sterk, uniform |
| Koloniestabiliteit | Degenereren of differentiëren bij passage | Stabiel, uitbreidbaar |
Tabel 5: Onderscheidende kenmerken van volledig herprogrammeerde vs. gedeeltelijk herprogrammeerde kolonies.
Discussie
Dit protocol beschrijft een niet-integrerende, feeder-vrije methode voor het genereren van aneuploïde menselijke iPSCs uit vruchtwatercellen met behulp van episomale plasmiden die via elektroporatie worden toegediend. Verschillende kritische stappen bepalen het succes van de herprogrammering. Ten eerste is de kwaliteit van de beginpopulatie AFC's van essentieel belang. In klinische cytogenetica-laboratoria worden AFC's doorgaans uitgebreid in media die erop gericht zijn de celproliferatie te versnellen voor prenatale karyotype-analyse in plaats van voor langdurige cultivering. De impact op de daaropvolgende efficiëntie van iPSC-generatie is nog onvoldoende begrepen. Daarom moet de samenstelling van het cultuurmedium tijdens de monstervoorbereiding in overweging worden genomen, en laag-passage, sterk prolifererende AFC-populaties moeten na het ontdooien worden verrijkt om een optimale celkwaliteit vóór elektroporatie te garanderen. Ten tweede moeten de elektroporatiecondities worden geoptimaliseerd om de DNA-afgifte te maximaliseren terwijl de celviabiliteit behouden blijft. In het huidige protocol produceerde elektroporatie bij 1200 V, 20 ms en 2 pulsen consistent een bevredigende transfectie-efficiëntie en reproduceerbare kolonievorming. Incidenteel kan een kleine optimalisatie nodig zijn voor individuele donor-monsters. Overmatige celdood tijdens de eerste 24–48 u na elektroporatie is vaak geassocieerd met een slechte startkwaliteit van de cellen, onvolledige verwijdering van resterend cultuurmedium vóór resuspensie in de elektroporatiebuffer, of langdurige behandeling tijdens de elektroporatie. Ten derde is de timing van het plukken van koloniën kritisch: koloniën die vóór dag 14 verschijnen, zijn doorgaans gedeeltelijk herprogrammeerd, terwijl echte iPSC-koloniën ontstaan tussen dag 15 en 25 en de karakteristieke platte, compacte morfologie met duidelijk gedefinieerde randen vertonen. Spontane differentiatie na het verschijnen van koloniën wordt gewoonlijk veroorzaakt door voortijdig plukken van koloniën, vertraagde vervanging van het medium of een te hoge koloniedichtheid; tijdige selectie van koloniën helpt de kwaliteit van de kolonie te behouden. Daarnaast kan natriumbutyraat worden toegevoegd als optionele optimalisatie tussen dag 9 en 15 voor AFC-lijnen die een relatief slechte herprogrammeringsprestatie vertonen23. Ten slotte is single-cell klonen via beperkende verdunning of FACS in 96-well platen noodzakelijk na de initiële karyotype-verificatie om de clonale oorsprong te garanderen.
De rol van p53 bij herprogrammering is afhankelijk van de gebruikte methodologie. Bij episomale herprogrammering op basis van OSKM verbetert tijdelijke onderdrukking van p53 de celoverleving tijdens de initiële stressrespons en faciliteert het MET27, terwijl p53 fungeert als een genomische bewaker bij chemische herprogrammering28. Gezien de efficiëntie van electroporatie-gebaseerde OSKM-herprogrammering voor zeldzame klinische monsters, blijft deze benadering waardevol. Om potentiële genomische risico's te minimaliseren, zouden gevestigde iPSC-lijnen routinematig moeten worden onderworpen aan karyotypering en, indien passend, CNV-analyse en WES/WGS vóór downstream toepassingen.
Een bijzonder belangrijke beperking bij het genereren van aneuploïde iPSC's is het fenomeen van trisomie-rescue tijdens herprogrammering. Akutsu et al.29 toonden aan dat de rescue-frequentie sterk varieert per chromosoomtype. Deze variabiliteit betekent dat voor bepaalde aneuploïdieën een groot aantal klonen via karyotypering gescreend moet worden om die te identificeren die de oorspronkelijke chromosomale abnormaliteit hebben behouden. Omgekeerd kan hetzelfde fenomeen worden benut om isogene euploïde controlelijnen te genereren uit hetzelfde herprogrammeringsexperiment, wat een krachtige interne controle biedt voor het bestuderen van aneuploïdie-specifieke fenotypes.
Het hier beschreven protocol biedt een robuust en reproduceerbaar platform voor het vestigen van patiëntspecifieke aneuploïde iPSC-lijnen uit resterende prenatale diagnostische monsters. Deze cellijnen kunnen worden toegepast in studies naar chromosoombiologie, ontwikkelingsmechanismen, ziektemodellering, functionele genomica, genoomredigering en high-throughput drug screening na gerichte differentiatie naar ziekterelevante celtypen. In de regeneratieve geneeskunde voldoen de transgene-vrije iPSC's aan de veiligheidseisen voor potentiële toekomstige klinische vertaling. Dit protocol faciliteert, door het bieden van een gestandaardiseerde en reproduceerbare workflow, een bredere adoptie van aneuploïde iPSC-technologie binnen deze diverse toepassingen.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende financiële belangen hebben. De schematische illustratie in Figuur 7A is gegenereerd met behulp van AI-ondersteunende tools en vervolgens door de auteurs beoordeeld en gewijzigd.
Dankbetuigingen
Dit werk werd ondersteund door het National Key Research and Development Program of China (subsidienummer 2022YFA0913300) en het Peking University Third Hospital Clinical Key Project (subsidienummer BYSY2022054) aan Jianying Guo.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,25% Trypsin-EDTA | Thermo Fisher (Gibco) | 25200056 | Celdissociatie voor AFC-passaging |
| 100bp Plus II DNA Ladder | TransGen Biotech | BM321-01 | DNA-ladder |
| -80 °C vriezer | Thermo Fisher | FDE60086fv | Langetermijnopslag van plasmide-DNA en monsters |
| Accutase Cell Detachment Solution | StemCell Technologies | 07920 | Zachte iPSC-dissociatie tot kleine klontjes |
| Azijnzuur (geconcentreerd) | Sigma-Aldrich | 338826 | Fixatiecomponent voor karyotypering (MeOH:AcOH 3:1) |
| Agarose | Sigma-Aldrich | A9539 | Gelelektroforese voor PCR-producten (2%) |
| AmnioType-1 Medium | VivaCell BIOSCIENCES | C3620-0100 | Primair AFC-kweekmedium |
| Automatische celteller / Hemocytometer | Countstar | TC20 | Telling van levensvatbare cellen met trypanblauw-uitsluiting |
| Bright-Field microscoop (100x olie) | Zeiss | Axiovert5 | Metafase-spreidingsanalyse voor karyotypering |
| Centrifuge (swing-bucket rotor) | Eppendorf | 5810R | Cellen pelleten bij 300 ×g |
| Klasse II biologische veiligheidskabinet | ESCO | AC2-4S8-CN | Steriele werkruimte voor alle celkweekoperaties |
| CO2-incubator (bevochtigd) | There scientific | 3131 | Handhaven van 37 °C, 5% CO2-omgeving |
| Colcemid (10 µg/mL) | Capricorn scientific | COL-H | Metafase-stop voor karyotypering (0,1 µg/mL, 2-4 u) |
| CryoStor CS10 Cell Freezing Medium | STEMCELL Technologies | 07959 | Celvriesmedium |
| DAPI | Merck Millipor | 10236276001 | Kernkleuring |
| DMEM (hoog glucose) | Thermo Fisher (Gibco) | 11965092 | Basis voor fibroblastkweek (FC) medium |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | Matrigel verdunningsbuffer (1:200) |
| DPBS zonder Ca2+/Mg2+ | Thermo Fisher (Gibco) | 14190250 | Wasbuffer |
| Episomaal plasmide (pCE-GFP) | Addgene | #41858 | Niet-integrerende herprogrammeringsvector (GFP-controle) |
| Episomaal plasmide (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | Niet-integrerende herprogrammeringsvector (OCT4 + shp53) |
| Episomaal plasmide (pCXLE-hSK) | Addgene | #27078 | Niet-integrerende herprogrammeringsvector (SOX2 + KLF4) |
| Episomaal plasmide (pCXLE-hUL) | Addgene | #27080 | Niet-integrerende herprogrammeringsvector (L-MYC + LIN28) |
| Foetaal kalfsserum | HyClone | SH30071.03 | Serumsupplement voor AFC-expansie (FC-medium, 15%) |
| Fluorescentiemicroscoop | Leica | Sp8 | TRA-1-60/81 live-kleuring en IF-visualisatie |
| Gelelektroforese-systeem | Bio-Rad | 164-5056 | Agarosegelanalyse van PCR-producten |
| Gelatine (0,1%) | Sigma-Aldrich | G1393 | Coating van kweekvaten voor AFC-aanhechting |
| Genomisch DNA-extractiekit | TIANGEN | 4992199 | Isolatie van DNA met PCR-kwaliteit uit iPSCs |
| Giemsa-kleuringsoplossing | Sigma-Aldrich | GS500 | Chromosoom G-banding kleuring (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | Supplement voor FC-medium |
| Omgekeerde fasecontrastmicroscoop | Zeiss | Axiovert5 | Dagelijkse monitoring van kweek- en koloniemorfologie |
| Vloeibare stikstofopslagtank | Thermo Scientific | CY50985 | Cryopreservatie van cellen |
| Matrigel Basement Membrane Matrix | Corning | 354230 | Coating van kweekvaten voor iPSC-aanhechting |
| Methanol (anhydrisch) | Sigma-Aldrich | 34860 | Fixatiecomponent voor karyotypering (MeOH:AcOH 3:1) |
| NANOG-antilichaam (konijn) | Abcam | ab109250 | Immunofluorescentie; nucleaire pluripotentiteitsmarker |
| Neon NxT electroporatiekit (100 µL) | Thermo Fisher (Invitrogen) | N10025 | Electroporatie; bevat buffers R, T, E en 100 µL tips |
| Neon NxT electroporatiesysteem | Thermo Fisher (Invitrogen) | NEON18S | Aflevering van episomale plasmiden via electroporatie |
| Niet-essentiële aminozuren (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | Supplement voor FC-medium |
| OCT4-antilichaam (konijn) | Abclonal | A7920 | Immunofluorescentie; nucleaire pluripotentiteitsmarker |
| PCR Master Mix (high fidelity) | TIANGEN | 4992920 | Verificatie van episomale klaring via PCR |
| pCXWB-EBNA1 | Addgene | #37624 | Niet-replicerende episomale expressie van EBNA1 |
| PE anti-humaan TRA-1-81 antilichaam | BioLegend | 330708 | Pluripotentiteitskleuring |
| Penicilline-streptomycine (100x) | Thermo Fisher (Gibco) | 15140122 | Antibioticasupplement (NIET gebruikt na electroporatie) |
| Phalloidine-iFluor 647 reagens | Abcam | ab176759 | F-actine (actinefilamenten) labeling |
| Kaliumchloride (KCl) | Sigma-Aldrich | P5405 | Hypotone oplossing voor karyotypering (0,075 M) |
| Real-time PCR-systeem | Thermo Fisher Scientific | QuantStudio3 | qPCR voor verificatie van markergenen |
| Natriumbutyraat (NaB) | Sigma-Aldrich | B5887 | HDAC-remmer; 25-100 µM voor het verbeteren van herprogrammering |
| SOX2-antilichaam (muis) | R&D Systems | MAB2018 | Immunofluorescentie; nucleaire pluripotentiteitsmarker |
| SSEA-4-antilichaam | BioLegend | 330408 | Immunofluorescentie; celoppervlak pluripotentiteitsmarker |
| Stereomicroscoop | Nikon | SMZ745 | Mechanisch plukken van kolonies onder vergroting |
| TeSR-E8 | STEMCELL Technologies | 05990 | Feeder-vrij iPSC-onderhoudsmedium |
| TRA-1-60-antilichaam | Merck Millipor | MAB4360 | Pluripotentiteitskleuring |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | DNA-ladder |
| TransDetect PCR Mycoplasma Detectiekit | TransGen Biotech | FM311-01 | Mycoplasmatest |
| TrypLE Select enzym (1x) | Thermo Fisher (Gibco) | 12563011 | Zachte celdissociatie voor adherente AFC's |
| Trypsine (0,025%) | Sigma-Aldrich | T4799 | G-banding voorbehandeling van slides (30-60 s) |
| VeritiPro 96-well thermocycler | Thermo Fisher Scientific | A48141 | PCR voor verificatie van episomale klaring |
| Waterbad (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | Ontdooien van media en reagentia |
| Y-27632 dihydrochloride (ROCK-remmer) | Tocris | 1254 | Verbetert iPSC-overleving na dissociatie (10 µM) |
Referenties
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar