Deze studie evalueert de expressie van miR-21-5p, de associatie ervan met cell adhesion molecule 1, en de relaties met migratie, proliferatie, de expressie van ontstekingsmarkers en overleving in niet-kleincellige longkankerverweefsels en cellijnen.
Onderzoeksartikel
De miR-21-5p-celadhesiemolecuul 1-as in de progressie en prognose van niet-kleincellig longcarcinoom
28 weergaven
⸱
11 september 2026
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Bewijs wijst erop dat miR-21-5p een belangrijke moleculaire regulator is bij niet-kleincellige longkanker (NSCLC). Celadhesiemolecuul 1 (CADM1) is een potentiële tumorsuppressor, maar de regulerende relatie tussen miR-21-5p en CADM1 bij de progressie van NSCLC blijft onduidelijk. Kwantitatieve reverse-transcriptie PCR (qRT-PCR) werd gebruikt om de expressie van miR-21-5p en CADM1 in NSCLC-weefsels en cellen te detecteren; de doelwitbinding van miR-21-5p en CADM1 werd geverifieerd via een duale luciferase reportergen-assay; het celmigratievermogen werd gedetecteerd met de Transwell-assay; clinicopathologische gegevens en overlevingsanalyses werden gecombineerd om de klinische significantie van miR-21-5p te onderzoeken; de functionele verrijking van miR-21-5p-doelwitgenen werd geanalyseerd via bio-informatica. De expressie van miR-21-5p in NSCLC-weefsels was significant hoger dan in aangrenzende normale weefsels, en patiënten met een hoge miR-21-5p-expressie hadden een kortere algehele overleving. Een hoge expressie van miR-21-5p is een onafhankelijke risicofactor voor de overleving van NSCLC-patiënten; overexpressie van miR-21-5p bevorderde celmigratie in NSCLC-cellen en reguleerde de expressie van ontstekingsfactoren naar boven; de duale luciferase reportergen-assay bevestigde dat miR-21-5p direct CADM1 target; overexpressie van CADM1 remde celmigratie in NSCLC-cellen en reguleerde de expressie van ontstekingsfactoren naar beneden; bio-informatica-analyse toonde aan dat miR-21-5p-doelwitgenen verrijkt waren in meerdere signaleringspaden die gerelateerd zijn aan het ontstaan en de ontwikkeling van tumoren. miR-21-5p bevordert de progressie van NSCLC door CADM1 te targeten en te remmen, en kan dienen als prognostische biomarker en therapeutisch doelwit.
Inleiding
Wereldwijd staat longkanker bovenaan als een van de belangrijkste oorzaken van kankergerelateerde sterfte, waarbij de incidentie gestaag stijgt1,2. Onder Oost-Aziatische populaties bedragen de incidentie en sterfte aan longkanker respectievelijk 222,1 en 155,5 per 100.000 mannen, tegenover 158,1 en 87,3 per 100.000 vrouwen. Niet-kleincellig longcarcinoom (NSCLC) is verantwoordelijk voor ~80% van alle longmaligniteiten en omvat drie belangrijke histologische subtypen3. In vergelijking met het zeer agressieve kleincellig longcarcinoom (SCLC) progrideert en metastaseert NSCLC langzamer; echter zorgen vage vroege klinische symptomen ervoor dat meer dan 75% van de patiënten pas in intermediaire of gevorderde stadia wordt gediagnosticeerd, wat bijdraagt aan een aanhoudend slechte 5-jaars overleving4. Longtumorigenese wordt gedreven door oncogene activatie en silencing van tumorsuppressorgenen5, wat de dringende noodzaak onderstreept om de moleculaire basis van NSCLC te ontleden om nieuwe therapeutische middelen te ontwikkelen6.
MicroRNA's (miRNA's, 18–25 nucleotiden lang) bemiddelen post-transcriptionele genrepressie door te binden aan de 3′-onvertaalde regio (3′-UTR) van doel-mRNA's, wat translationele onderdrukking of mRNA-degradatie induceert7. De biogenese van miRNA's begint met RNA-polymerase II-transcriptie om primaire miRNA-transcripten te genereren, die vervolgens worden gesplitst door RNase III-enzymen om haarspeldvormige precursor-miRNA's (pre-miRNA's) te vormen8. Hoewel de meeste miRNA's genexpressie onderdrukken via gedeeltelijke of volledige sequentiecomplementariteit met mRNA 3′-UTR's, kunnen bepaalde miRNA's de mRNA-translatie stimuleren onder specifieke celcycluscontexten9. Tot op heden zijn honderden menselijke miRNA's geïdentificeerd, die kernbiologische processen reguleren, waaronder celproliferatie, differentiatie en apoptose10. Voorheen bleef de detectie van aberrant tot expressie gekomen miRNA's technisch uitdagend; de komst van high-throughput sequencing heeft snelle, onbevooroordeelde profilering van gedereguleerde miRNA's in weefsels met ziekten mogelijk gemaakt11. Hier richten we ons op miR-21-5p, een van de vroegst gekarakteriseerde door RNA-polymerase II getranscribeerde miRNA's, waarvan de oncogene regulatoire functies intensief worden onderzocht12.
miR-21-5p wordt gecodeerd binnen een intron van het TMEM49-gen en is consistent overexpressie in meerdere menselijke maligniteiten, waaronder slokdarm-, colorectale en longkankers13. Bestaande preklinische NSCLC-gegevens bevestigen de oncogene activiteit ervan: verhoogde miR-21-5p versnelt tumorproliferatie, epitheliale-mesenchymale transitie (EMT) en distantmetastase door het uitschakelen van anti-oncogene doelwitten zoals PTEN en PDCD414. Desondanks richt voorgaand werk zich grotendeels op miR-21-gestuurde apoptotische en proliferatieve signalering, en weinig rapporten onderzoeken systematisch de miR-21-5p/CADM1 regulatieve as in NSCLC15. Celadhesiemolecuul 1 (CADM1) is een goed gevestigde tumorsuppressor in epitheliale kankers16; het behoudt de intercellulaire adhesie om loskoppeling van tumorcellen en metastatische verspreiding te blokkeren, en de downregulatie ervan correleert met een geavanceerd tumorstadium en een slechtere overleving in NSCLC-patiëntcohorten. Mechanistisch gezien remt CADM1 ook pro-tumorale nucleaire factor kappa B (NF-κB) inflammatoire signalering, die metastase aanjaagt door de secretie van pro-inflammatoire cytokinen te induceren en de tumormicro-omgeving te remodelleren17. Ondanks afzonderlijke documentatie van de oncogeniciteit van miR-21-5p en de tumorsuppressieve effecten van CADM1, blijven er drie kritische kennisleemtes bestaan voor de miR-21-5p/CADM1 as in NSCLC: ten eerste ontbreekt experimentele validatie van directe binding en repressie van CADM1 door miR-21-5p in longkankercellen; ten tweede blijft onduidelijk of deze as maligne fenotypes aanstuurt via downstream inflammatoire paden; ten derde is de prognostische voorspellende capaciteit van gecombineerde miR-21-5p/CADM1 expressiesignaturen niet beoordeeld in klinische NSCLC-monsters.
Op basis van deze onbeantwoorde vragen stellen wij een centrale mechanistische hypothese voor: upregulatie van miR-21-5p in NSCLC bindt direct aan de 3′-UTR van CADM1 om de expressie van CADM1 te onderdrukken, waardoor metastatic inflammatoire signalering die door CADM1 wordt geremd, wordt gedereprimeerd, wat de migratie van NSCLC versnelt en leidt tot een slechtere klinische prognose. Deze studie streeft drie vooraf gedefinieerde onderzoeksdoelen na: (1) Het verifiëren van de directe moleculaire targeting van CADM1 door miR-21-5p en het evalueren van de migratie in de NSCLC-cellijnen A549 en H1299; (2) Het verduidelijken of de miR-21-5p/CADM1-cascade het metastatische potentieel moduleert via inflammatoire signaaltransductie; (3) Het evalueren van de klinische prognostische waarde van de miR-21-5p/CADM1-expressiesignatuur om nieuwe diagnostische biomarkers en therapeutische kandidaten voor metastatische NSCLC te identificeren.
Protocol
Deze retrospectieve studie is beoordeeld en goedgekeurd door de ethische commissie van het Quzhou Hospital of Traditional Chinese Medicine (goedkeuringsnummer 202402208). Voorafgaand aan de monstername is van elke deelnemende patiënt of een wettelijke voogd schriftelijke geïnformeerde toestemming verkregen.
Monsterverzameling
Primaire NSCLC-tumorgeweefsels werden chirurgisch weggenomen bij de deelnemende patiënten, terwijl hun bijbehorende aangrenzende normale longeweefsels retrospectief werden verzameld vanuit het National Engineering Research Center for Clinical Biopsy (Quzhou City, provincie Zhejiang, China). In totaal werden 157 opeenvolgend ingeschreven NSCLC-patiëntmonsters tussen januari 2019 en december 2024 opgenomen in deze cohortstudie. De steekproefomvang van 157 gepaarde monsters werd statistisch gerechtvaardigd op basis van eerder gepubliceerde prognostische NSCLC miRNA-onderzoeken: uitgaande van een matige effectgrootte van 0,5, α = 0,05 en een statistische power van 80%, werd de minimale vereiste steekproefomvang berekend op 122 gevallen. Rekening houdend met potentieel monsterverlies, ernstige weefselnecrose en patiënten die verloren gingen tijdens de follow-up, hebben we tussen januari 2019 en december 2024 opeenvolgend 157 geschikte patiënten geïncludeerd om voldoende statistische power te garanderen. Alle tumor- en bijbehorende aangrenzende normale longeweefsels werden bij dezelfde patiënt weggenomen tijdens chirurgische resectie, waardoor gepaarde monsters ontstonden voor daaropvolgende vergelijkende analyses.
De inclusiecriteria waren: (1) Patiënten bij wie primair NSCLC pathologisch was bevestigd via een postoperatieve biopsie; (2) Volledige klinische nulmeting, histopathologische stadiëring en overlevingsgegevens van de langetermijnfollow-up; (3) Geen voorafgaande radiotherapie, chemotherapie of doelgerichte therapie vóór de weefselafname; (4) Beschikbaarheid van volledige gepaarde tumor- en paracancerous weefselmonsters.
De exclusiecriteria waren: (1) Gecombineerde secundaire maligne tumoren in andere organen; (2) Patiënten die binnen 3 maanden na de operatie verloren gingen voor follow-up; (3) Specimina met ernstige necrose of onvoldoende weefselvolume voor daaropvolgende moleculaire detectie.
Alle verse weefselmonsters werden binnen 15 min na chirurgische resectie in vloeibare stikstof geplaatst, overgebracht naar een ultralage-temperatuurvriezer en op −80 °C bewaard voor RNA- en eiwitextractie. De klinische follow-up werd regelmatig uitgevoerd en de totale overleving werd gemeten in maanden vanaf de pathologische diagnose tot aan het overlijden of de laatste follow-up deadline.
Stratificatie van het expressieniveau van miR-21-5p
De relatieve expressiewaarden van miR-21-5p van alle 157 patiënten werden in oplopende volgorde gesorteerd, waarna de cohorte werd gestratificeerd op basis van de mediaan als afkapwaarde. Vanwege meerdere gelijke waarden rond de mediaan werden patiënten met een expressie onder de mediaan toegewezen aan de groep met lage expressie (n = 61); patiënten met een expressie gelijk aan of hoger dan de mediaan, inclusief alle gelijke waarden op de mediaan, werden ingedeeld in de groep met hoge expressie (n = 96). Deze regel voor de toewijzing van gelijke waarden was vooraf bepaald vóór de groepering om dubbele mediaanmetingen op te lossen, en het resultaat van de groepering werd kruiselings geverifieerd met de ruwe qRT-PCR-kwantificatiegegevens.
Celkweek
De menselijke NSCLC-cellijnen A549 en H1299 werden verkregen van een commerciële leverancier (zie Materialentabel). A549-cellen werden onderhouden in RPMI-1640-medium en H1299-cellen werden gekweekt in DMEM. Beide celkweekmedia waren verrijkt met 10% hitte-inactiverd foetaal runderserum (FBS), penicilline (100 U/mL) en streptomycine (100 µg/mL). Cellen werden gekweekt onder standaardcondities bij 37 °C in een bevochtigde incubator voorzien van 5% CO₂.
Short tandem repeat (STR)-profilering werd uitgevoerd om de identiteit van de A549- en H1299-cellijnen te authenticeren voorafgaand aan alle functionele experimenten. Maandelijks werd er getest op mycoplasma-contaminatie met behulp van een commerciële PCR-gebaseerde mycoplasma-detectiekit, en alleen mycoplasma-negatieve cellen werden gebruikt voor daaropvolgende assays.
Cellen in de logaritmische groeifase met een intacte morfologie werden geoogst voor transiënte transfectie. Een lipide-gebaseerd transfectiereagens (zie Tabel met materialen) werd gebruikt volgens de instructies van de fabrikant. Vervolgstappen voor cellulaire assays werden uitgevoerd 50 h na transfectie.
Celtransfectie
Voor de transfectie werden cellen in de logaritmische groeifase met een intacte morfologie 24 uur vooraf uitgezaaid in kweekplaten om een confluentie van 60%–70% te bereiken. De transfectie werd uitgevoerd met een lipide-gebaseerd transfectiereagens (zie Tabel met materialen>) volgens de instructies van de fabrikant. Er werden vier experimentele groepen gebruikt: mimic negatieve controle (mimic-NC), miR-21-5p mimic, inhibitor negatieve controle (inhibitor-NC) en miR-21-5p inhibitor. De nucleotidevolgordes zijn opgenomen in Aanvullend bestand 1.
Totaal RNA werd 50 u na transfectie geëxtraheerd, en er werd kwantitatieve reverse-transcriptie PCR (qRT-PCR) uitgevoerd om de relatieve expressie van miR-21-5p te meten en de transfectie-efficiëntie te verifiëren. Cellulaire migratie-assays werden 50 u na transfectie uitgevoerd. Voor transiënte transfectie werden de cellen behandeld met de miR-21-5p mimic of mimic negatieve controle (mimic-NC) bij een uiteindelijke concentratie van 50 nM, terwijl de miR-21-5p inhibitor en inhibitor negatieve controle (inhibitor-NC) werden geïntroduceerd bij 100 nM. Om storende effecten als gevolg van verschillen in de hoeveelheid toegevoegde nucleïnezuren te voorkomen, werd de totale hoeveelheid getransfecteerde nucleïnezuren in alle vier de behandelingsgroepen gelijk gehouden.
Celproliferatie werd geëvalueerd met behulp van de Cell Counting Kit-8 (CCK-8) assay. Stabiel getransfecteerde cellen werden uitgeplaat in 96-wells platen met 3 × 10³ cellen/well, waarbij voor elke groep zes technische replica's werden vastgesteld. Op 24, 48 en 72 u na het uitplaten werd 10 µL CCK-8 reagens aan elke well toegevoegd, gevolgd door incubatie bij 37 °C gedurende 2 u. De celproliferatie werd gekwantificeerd door de absorbantie bij 450 nm te meten met een microplaatlezer.
Alle experimenten voor transiënte transfectie, CCK-8 en migratie werden uitgevoerd met minimaal drie onafhankelijke biologische replica's, waarbij elke biologische replica 3–6 technische replica's bevatte zoals hierboven beschreven.
Kwantitatieve reverse-transcriptie PCR
Totaal RNA uit NSCLC-cellen en gepaarde klinische tumor- en aangrenzende normaalweefsels werd geïsoleerd met een RNA-extractiereagens op basis van fenol/guanidine (zie Tabel met Materialen). RNA-zuiverheid en -concentratie werden bepaald via ultraviolette spectrofotometrie; alleen monsters met optische dichtheidsverhoudingen (OD) 260/280 en OD 260/230 van 1,8–2,1 werden onderworpen aan reverse transcriptie. De primersequenties zijn opgenomen in Aanvullend Bestand 1. Het reverse transcriptiesysteem bevatte 500 ng totaal RNA, 2 µL reverse transcriptiebuffer, 1 µL dNTP-mengsel, 0,5 µL reverse transcriptase, 1 µL specifieke stem-loop primer voor miRNA of oligo(dT) primer voor mRNA, en RNase-vrij water tot een totaal volume van 20 µL. Het qRT-PCR amplificatiesysteem (20 µL totaal volume) bestond uit 10 µL SYBR Green qPCR master mix, 0,4 µL forward primer (10 µM), 0,4 µL reverse primer (10 µM), 2 µL verdunde cDNA-template en 7,2 µL RNase-vrij water.
Boodschapper-RNA voor CADM1 en GAPDH werd reverse-getranscribeerd met een reverse-transcriptiekit, terwijl miR-21-5p werd reverse-getranscribeerd met stem-loop-primers en exogeen cel-miR-39 als spike-in controle. De exogene cel-miR-39 spike-in werd aan elk RNA-monster toegevoegd direct na de isolatie van totaal RNA en vóór de reverse transcriptie. Als synthetisch C. elegans microRNA zonder homologe sequentie in menselijke transcripten kan cel-miR-39 de afwijking corrigeren die wordt veroorzaakt door differentiële RNA-extractie-efficiëntie, verlies door RNA-degradatie en variatie in reverse-transcriptie-efficiëntie tussen verschillende klinische weefselmonsters, waardoor het dient als een exogene universele normalisatiecontrole voor miRNA-kwantificatie. qRT-PCR werd uitgevoerd met een op een fluorescente DNA-bindende kleurstof gebaseerde mastermix op een real-time PCR-systeem (zie Tabel met Materialen): 95 °C gedurende 3 min, gevolgd door 40 cycli van 95 °C gedurende 10 s, 60 °C gedurende 30 s en 72 °C gedurende 20 s, met een smeltcurve-analyse om specifieke amplificatie te bevestigen. Elk monster had drie biologische replica's met elk drie technische replica's, en de relatieve expressie werd berekend met de 2⁻ΔΔCt methode. Volledige primersequenties voor de amplificatie van CRP, TNF-α en IL-6 mRNA zijn opgenomen in Aanvullend Bestand 1, samen met de primersequenties voor CADM1, GAPDH en miR-21-5p.
Vestiging van lentivirus-gemedieerde stabiele miR-21-5p expressie
Commerciële lentivirale vectoren LV-miR-21-5p en de lege controle LV-NC werden verpakt in 293T-cellen. De miR-21-5p precursorsequentie werd ingevoegd in een lentivirale backbone die puromycineresistentie en GFP-reportergenen bevat. Lentivirale supernatanten werden verzameld op 48 u en 72 u na transfectie, geconcentreerd en gezuiverd voor celinfectie.
A549- en H1299-cellen werden 24 u vóór infectie gezaaid om een confluentie van 50–60% te bereiken. De cellen werden geïnfecteerd bij MOI = 10 (A549) en MOI = 15 (H1299) met 5 µg/mL polybrene om de transfectie-efficiëntie te verbeteren. Het medium werd 24 u na infectie vervangen en de cellen werden nogmaals 48 u gekweekt voorafgaand aan de puromycine-selectie.
De selectie van stabiele cellen werd uitgevoerd met 5 µg/mL puromycine gedurende 10 opeenvolgende dagen; niet-geïnfecteerde blanco cellen werden gebruikt om de volledige eliminatie van niet-getransduceerde cellen binnen 7 dagen te verifiëren. Enkele GFP-positieve klonen werden geïsoleerd en uitgebreid om de stabiele monoclonale cellijnen LV-21 en LV-NC te genereren.
Voor CADM1 rescue-assays werden commerciële LV-CADM1 overexpressie- en sh-CADM1 knockdown-lentivirussen voorbereid. Er werden vier experimentele groepen vastgesteld: LV-NC, LV-miR-21-5p, LV-CADM1 en de LV-miR-21-5p + LV-CADM1 rescue-groep. CADM1 lentivirussen werden geïnfecteerd bij dezelfde MOI en puromycinescreeningscondities als de miR-21-5p-vectoren. Alle rescue-experimenten voor proliferatie en migratie werden herhaald met drie onafhankelijke biologische replica's.
Validatie van stabiele miR-21-5p overexpressie
Totaal RNA werd geëxtraheerd uit geoogste LV-21 en LV-NC stabiele celklonen. qRT-PCR werd uitgevoerd om het relatieve expressieniveau van hsa-miR-21-5p te detecteren, met cel-miR-39 als exogene referentie. Celklonen met een meer dan 8-voudige upregulatie van miR-21-5p ten opzichte van de LV-NC groep werden behouden voor alle daaropvolgende functionele assays, wat de succesvolle constructie van miR-21-5p-stabiel overexpressieve cellijnen bevestigde.
Dual-luciferase reporter-assay
Wildtype CADM1 3'-UTR reporterplasmid (WT-CADM1) bevattend de voorspelde miR-21-5p-bindingssequentie en mutant CADM1 3'-UTR reporterplasmid (MUT-CADM1) met een gemuteerde bindingsseedregio werden geconstrueerd. A549-cellen werden 24 uur vóór transfectie in 24-wells platen gezaaid om een confluentie van 60%–70% te bereiken. Elke well werd gecotransfecteerd met 500 ng WT/MUT-reporterplasmid, 50 nM miR-21-5p-mimic of mimic-NC, en een Renilla-luciferase-intern referentieplasmid in een vaste massaverhouding. Na een incubatieperiode van 48 uur na transfectie werden de cellen volledig gelyseerd en werden de luminescentiesignalen van firefly- en Renilla-luciferase sequentieel gedetecteerd met behulp van een dual-luciferase-detectiekit. De relatieve luciferase-activiteit werd berekend als de verhouding tussen de firefly-luminescentiewaarde en de Renilla-luminescentiewaarde. Elke experimentele groep bestond uit drie onafhankelijke biologische replica's, met drie technische replica's per biologische replica, en een tweegroepen-onafhankelijke steekproef Het lijkt erop dat er geen brontekst is meegeleverd om te vertalen. Voer alstublieft de tekst in die u vertaald wilt hebben.De t-toets werd gebruikt voor de statistische vergelijking van de relatieve luciferase-activiteit tussen de mimic-NC- en miR-21-5p mimic-groepen.
Transwell-migratieassay
Voor de Transwell-migratieassay werden stabiel getransfecteerde cellen gesuspendeerd in serumvrij medium en geplaatst in de bovenste inserts met 4 × 10⁴ cellen per well. De onderste kamers werden gevuld met volledig kweekmedium aangevuld met 10% FBS om een chemotactische gradiënt te creëren. Na incubatie gedurende 48 h bij 37 °C in een bevochtigde atmosfeer met 5% CO₂, werden de cellen die op het bovenste oppervlak van het membraan waren gebleven, voorzichtig verwijderd. Cellen die naar de onderzijde van het membraan waren gemigreerd, werden gefixeerd in methanol en gekleurd met kristalviolet. De migratie werd gekwantificeerd door cellen te tellen in vijf willekeurig gekozen microscopische velden per insert. Elk experiment werd uitgevoerd met drie onafhankelijke biologische replica's, waarbij voor elke biologische replica drie technische replica's waren opgenomen.
Statistische analyses
Alle in vitro experimenten werden uitgevoerd met minimaal drie onafhankelijke biologische replica's, elk vergezeld van de overeenkomstige technische replica's. De datadistributie werd eerst geëvalueerd met de Shapiro-Wilk normaliteitstest om de statistische analyse te sturen. Voor gepaarde vergelijkingen tussen tumorweefsel en aangrenzend normaal weefsel werd, afhankelijk van de datadistributie, de gepaarde t-test of de gepaarde Wilcoxon signed-rank test toegepast. Vergelijkingen tussen twee onafhankelijke groepen werden geanalyseerd met behulp van de onafhankelijke t-test of de Mann-Whitney U-test. Verschillen tussen meerdere groepen, inclusief rescue-experimenten, werden beoordeeld via eenweg-variantieanalyse (ANOVA) gevolgd door Bonferroni's post hoc-correctie, terwijl repeated-measures ANOVA werd gebruikt om longitudinale datasets te analyseren, zoals de CCK-8 proliferatie- en wondgenezingsassays. Associaties tussen categorische klinische variabelen werden onderzocht met de χ2 test, en de relatie tussen miR-21-5p en CADM1 expressie werd geëvalueerd via Pearson-correlatieanalyse. De overleving van patiënten werd geanalyseerd met Kaplan-Meier-curves, waarbij vergelijkingen werden uitgevoerd met de log-rank test. Onafhankelijke prognostische factoren werden geïdentificeerd via univariate en multivariate Cox proportional hazards regressieanalyses. Statistische significantie werd gedefinieerd als P < 0,05. Multivariate Cox-regressie werd gecorrigeerd voor leeftijd, geslacht, histologisch type, miR-21-5p niveau en lymfekliersenstatus (referentie: leeftijd ≤ 60, vrouwelijk, plaveiselcelcarcinoom, laag miR-21-5p, lymfekliernegatief); Schoenfeld-residuen werden gebruikt om de proportional hazards-aanname te controleren, variabelen met een univariate P < 0,10 werden opgenomen via enter-selectie.
Resultaten
Correlatie tussen miR-21-5p expressie en clinicopathologische kenmerken van NSCLC-patiënten
In totaal werden 157 NSCLC-tumorstalen gestratificeerd in groepen met een lage miR-21-5p expressie (n = 61) en een hoge miR-21-5p expressie (n = 96) op basis van de mediane miR-21-5p niveaus. Chi-kwadraatanalyses toonden geen significante correlaties aan tussen miR-21-5p expressie en de leeftijd van de patiënt (χ2 = 1.36, P = 0.2435), geslacht (χ2 = 1.06, P = 0.3032), histologisch type (χ2 = 1.09, P = 0.2965) of tumorgrootte (χ2 = 5.623, P = 0.0601), terwijl een hoge miR-21-5p expressie significant geassocieerd was met een gevorderde tumorgraad (χ2 = 16.25, P = 0.00006), positieve lymfekliermetastasen (χ2 = 12.17, P = 0.00049) en een hoger T-stadium (χ2 = 4.30, P = 0.117), wat suggereert dat miR-21-5p oncogene effecten uitoefent die de progressie van NSCLC faciliteren (Tabel 1).
Multivariabele Cox proportional hazards regressieanalyse voor onafhankelijke prognostische factoren van NSCLC
Multivariabele Cox-regressieanalyse waarin leeftijd, geslacht, histologisch type, miR-21-5p-expressie en lymfekliermetastasen waren opgenomen, toonde aan dat een hoge miR-21-5p-expressie (hazard ratio [HR] = 3,066; 95% betrouwbaarheidsinterval [BI]: 1,412–6,659; P = 0,005) en positieve lymfekliermetastasen (HR = 22,295; 95% BI: 3,039–163,588; P = 0,002) onafhankelijke ongunstige prognostische risicofactoren waren voor een slechte algehele overleving van NSCLC-patiënten, terwijl de leeftijd, het geslacht en het histologische subtype van de patiënt geen significante onafhankelijke prognostische effecten vertoonden (alle P > 0,05) (Tabel 2).
Klinische expressiekenmerken van miR-21-5p en de correlatie ervan met CADM1 en ontstekingsfactoren
qRT-PCR-detectie van gepaarde NSCLC-tumorweefsels en aangrenzende normale weefsels toonde significant verhoogde relatieve miR-21-5p-niveaus aan in kankerveefsels vergeleken met normale controles (Figuur 1A, P < 0,001). Kaplan-Meier-overlevingscurves lieten zien dat patiënten met een hoge miR-21-5p-expressie een significant slechtere algehele overleving hadden dan patiënten met een lage miR-21-5p-expressie (Figuur 1B, P = 0,0027). De mRNA-abundanties van de ontstekingsmediatoren C-reactief proteïne (CRP), tumornecrosefactor alfa (TNF-α) en interleukine-6 (IL-6) waren allemaal sterk upgereguleerd in NSCLC-monsters (Figuur 1C, P < 0,01, P < 0,001). Pearson-correlatieanalyse onthulde een sterk significante negatieve correlatie tussen miR-21-5p en CADM1 mRNA-expressie in klinische monsters (r = -0,7773, 95% BI: -0,8325 tot -0,7076, P < 0,0001, Figuur 1D).
Cellulaire functionele validatie van miR-21-5p in NSCLC-cellen
qRT-PCR bevestigde de succesvolle transfectie-efficiëntie van de miR-21-5p-mimic in A549- en H1299-cellen (Figuur 2A). Transwell-assays toonden aan dat overexpressie van miR-21-5p de relatieve migratiecapaciteit en het aantal gemigreerde cellen in beide cellijnen significant verhoogde (Figuur 2B,C). qRT-PCR-detectie van inflammatoire cytokinen onthulde duidelijk verhoogde mRNA-niveaus van CRP, TNF-α en IL-6 na transfectie met de miR-21-5p-mimic, terwijl behandeling met een miR-21-5p-remmer deze upregulatie omkeerde (Figuur 2D). Rescue-experimenten bevestigden dat de miR-21-5p-mimic de transcriptie van CADM1 drastisch onderdrukte, en co-transfectie met LV-CADM1 de mRNA-expressie van CADM1 in A549- en H1299-cellen volledig herstelde (Figuur 2E,F). Samen demonstreerden deze cellulaire gegevens dat miR-21-5p de migratie van NSCLC-cellen en de inflammatoire respons bevordert door CADM1 te onderdrukken.
Effecten van miR-21-5p op de proliferatie van NSCLC-cellen
CCK-8 proliferatiecurves na 24 u, 48 u en 72 u toonden aan dat transfectie met een miR-21-5p mimic de OD-waarden bij 450 nm aanzienlijk verhoogde in zowel A549- als H1299-cellen, terwijl een miR-21-5p inhibitor de celviabiliteit significant onderdrukte, waarbij statistisch significante verschillen werden waargenomen na 72 u (Figuur 3A,B; P < 0,001). Deze gegevens tonen aan dat miR-21-5p een pro-proliferatief effect uitoefent op NSCLC-cellen.
Validatie van CADM1 als direct doelwit van miR-21-5p via bio-informatische voorspelling en dual-luciferase reporterassay
Drie online miRNA-doelwitvoorspellingsdatabases (miRWalk, StarBase, TargetScan) werden gecombineerd om kandidaat-downstreamgenen van miR-21-5p te screenen, waarbij 95 overlappende doelwitgenen werden verkregen (Figuur 4A). Gene Ontology (GO) verrijkingsanalyse gaf aan dat deze kandidaatgenen hoofdzakelijk verrijkt waren in biologische processen, cellulaire componenten en moleculaire functies gerelateerd aan het celmetabolisme, stressrespons en transcriptieregulatie (Figuur 4B). Kyoto Encyclopedia of Genes and Genomes (KEGG) pathway-verrijking onthulde verder een prominente verrijking in tumorspecifieke signaleringscascades, waaronder de mitogen-geactiveerde proteïnekinase (MAPK) en Ras-pathways (Figuur 4C). De dual-luciferase reporterassay demonstreerde dat de miR-21-5p mimic de relatieve luciferase-activiteit van de wild-type CADM1 3'-UTR reporter significant onderdrukte, terwijl er geen inhiberend effect werd waargenomen in de mutante CADM1 3'-UTR groep (Figuur 4D, P < 0,01, ns: niet significant), wat de directe binding tussen miR-21-5p en CADM1 bevestigt.
Bevordering van maligne fenotypes van NSCLC via onderdrukking van CADM1 in rescue-experimenten
qRT-PCR verifieerde de transfectie-efficiëntie van de miR-21-5p mimic en inhibitor in A549- en H1299-cellen (Figuur 5A). Overexpressie van CADM1 (LV-CADM1) reduceerde de mRNA-niveaus van pro-inflammatoire factoren CRP, TNF-α en IL-6, terwijl knockdown van CADM1 met small interfering RNA (si-CADM1) hun expressie aanzienlijk verhoogde (Figuur 5B). Transwell-migratieassays lieten zien dat LV-CADM1-transfectie de migratiecapaciteit van beide NSCLC-cellijnen significant onderdrukte (Figuur 5C,D). CCK-8-proliferatiedetectie demonstreerde verder dat het LV-21-gemedieerde pro-proliferatieve effect volledig werd tenietgedaan door LV-CADM1-co-transfectie, terwijl de door si-CADM1 geïnduceerde versnelling van de celgroei kon worden hersteld door de miR-21-5p inhibitor (Figuur 5E,F). Gezamenlijk valideerden deze rescue-gegevens dat CADM1 fungeert als een functionele downstream-mediator die verantwoordelijk is voor de door miR-21-5p getriggerde proliferatie, migratie en inflammatoire activatie in NSCLC.
BESCHIKBAARHEID VAN GEGEVENS:
De brondata ter ondersteuning van de bevindingen van deze studie zijn opgenomen in Aanvullend Bestand 2 en zijn beschikbaar bij het gepubliceerde artikel.
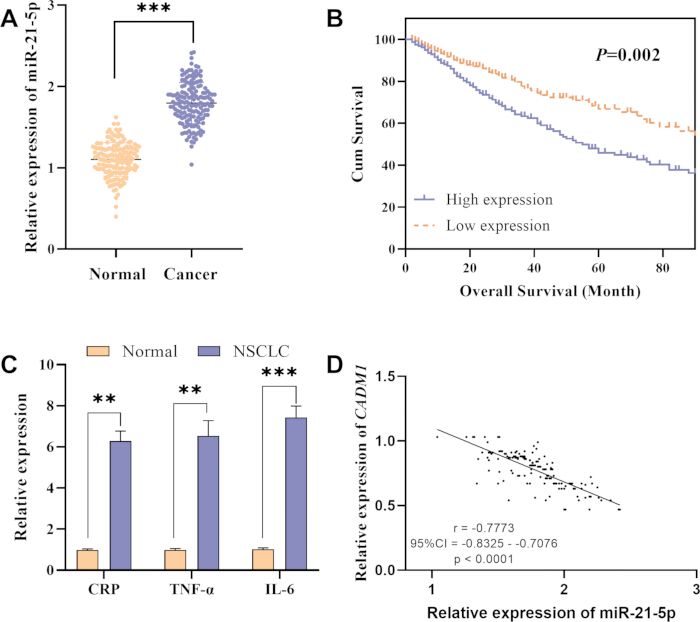
Figuur 1: Expressieprofielen van miR-21-5p, inflammatoire factoren en hun correlatie met CADM1 in klinische NSCLC-monsters. (A) Relatieve expressie van miR-21-5p in normaal longweefsel en NSCLC-tumorweefsels. (B) Kaplan-Meier-curven voor de totale overleving van NSCLC-patiënten, gestratificeerd naar miR-21-5p-expressieniveau. (C) Relatieve mRNA-expressie van de inflammatoire factoren CRP, TNF-α en IL-6 in normaal weefsel en NSCLC-weefsel. (D) Pearson-correlatie scatterplot die de negatieve lineaire correlatie tussen miR-21-5p en CADM1 mRNA-expressie laat zien. **P < 0,01, ***P < 0,001. Voor Paneel C: statistische vergelijkingen zijn uitgevoerd tussen gepaarde tumorweefsels en aangrenzende normale weefsels voor respectievelijk CRP, TNF-α en IL-6; **P < 0,01, ***P < 0,001 duiden op significante verschillen t.o.v. gematchte normale longweefsels. Alle panelen bevatten ≥3 onafhankelijke biologische replicaten; qRT-PCR-gegevens presenteren het gemiddelde ± standaarddeviatie; een gepaarde t-test is gebruikt voor intergroepsvergelijking; de correlatieanalyse van de scatterplot is uitgevoerd met de Pearson-test. Afkortingen: CADM1 = cell adhesion molecule 1; CI = betrouwbaarheidsinterval; CRP = C-reactief proteïne; IL-6 = interleukine-6; NSCLC = niet-kleincellig longcarcinoom; TNF-α = tumornecrosefactor alfa. Klik hier om een grotere versie van deze figuur te bekijken.
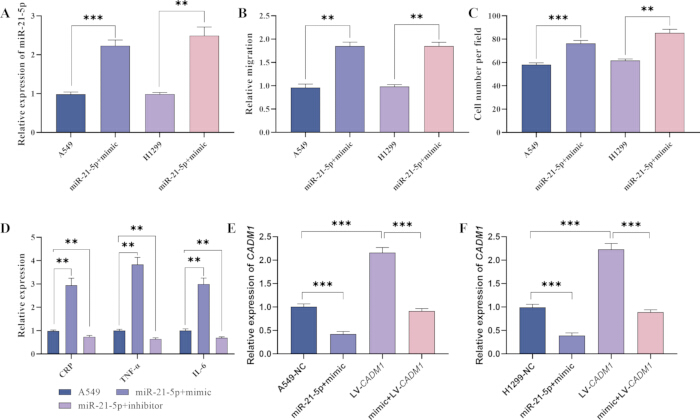
Figuur 2: Cellulaire fenotypes en CADM1-expressie gereguleerd door miR-21-5p in A549 en H1299 NSCLC-cellen. (A) qRT-PCR-detectie van miR-21-5p-expressie na mimic-transfectie. (B) Statistische kwantificering van relatieve celmigratie uit Transwell-assays. (C) Kwantificering van het aantal gemigreerde cellen per microscopisch veld. (D) Relatieve mRNA-expressie van CRP, TNF-α en IL-6 bij miR-21-5p overexpressie of inhibitie. (E) Relatieve CADM1 mRNA-expressie in A549 rescue-groepen (NC, miR-21-5p mimic, LV-CADM1, mimic+LV-CADM1). (F) Relatieve CADM1 mRNA-expressie in H1299 rescue-groepen. **P < 0,01, ***P < 0,001. Alle cellulaire assays zijn herhaald voor drie onafhankelijke biologische replica's met telkens drie technische replica's; foutenbalken representeren gemiddelde ± SD; intergroepvergelijkingen zijn uitgevoerd met eenweg-ANOVA met Bonferroni-correctie; groepslabels komen exact overeen met de transfectiegroepen beschreven in Methoden. Afkortingen: CADM1 = cell adhesion molecule 1; CRP = C-reactief proteïne; IL-6 = interleukine-6; LV = lentivirale vector; NC = negatieve controle; NSCLC = niet-kleincellig longcarcinoom; qRT-PCR = kwantitatieve reverse-transcriptie PCR; TNF-α = tumornecrosefactor alfa. Klik hier om een grotere versie van deze figuur te bekijken.
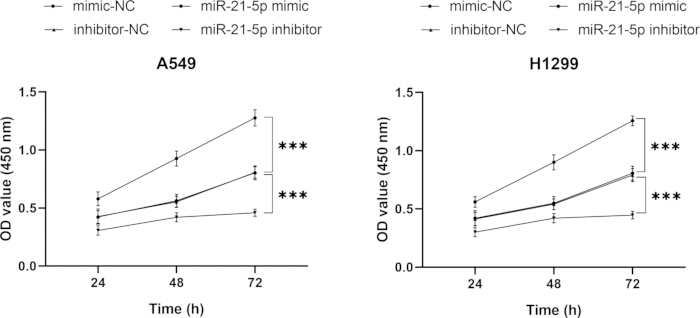
Figuur 3: CCK-8 proliferatiecurves die de cellevensvatbaarheid weerspiegelen na overexpressie of knockdown van miR-21-5p. (A) Tijdgevoelige OD₄₅₀ absorptiecurves van A549-cellen getransfecteerd met mimic-NC, miR-21-5p mimic, inhibitor-NC of miR-21-5p inhibitor. (B) Tijdgevoelige OD₄₅₀ absorptiecurves van H1299-cellen onder de vier transfectiegroepen. ***P < 0,001. CCK-8 assays bevatten zes technische replica's per groep over 3 biologische herhalingen; gegevens worden weergegeven als gemiddelde ± SD; repeated-measures ANOVA werd gebruikt voor vergelijkingen van tijdspunten. Afkortingen: CCK-8 = Cell Counting Kit-8; NC = negatieve controle; OD = optische dichtheid. Klik hier om een grotere versie van deze figuur te bekijken.
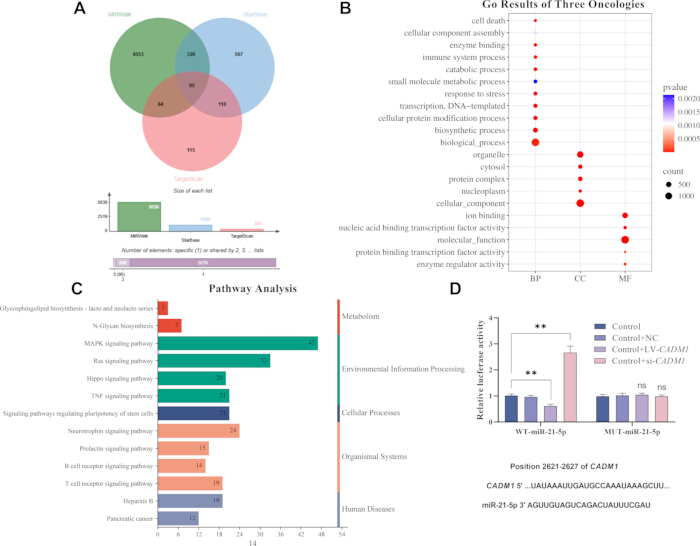
Figuur 4Bio-informatische screening en duale luciferase-assay voor het targetgen van miR-21-5p CADM1. (A) Venn-diagram dat de gemeenschappelijke doelgenen van miR-21-5p illustreert, geïdentificeerd door de predictiedatabases miRWalk, StarBase and TargetScan. (B) Bubble plot van de GO-functionele verrijkingsanalyse voor de overlappende doelgenen. (C) Staafdiagram van de meest verrijkte KEGG-signaleringsroutes. (D) Dual-luciferase reporteractiviteit van wildtype en mutant CADM1 3'-UTR na miR-21-5p-overexpressie. **P < 0,01; ns, geen significantie. Paneel D adopteert uitsluitend WT-CADM1 3'-UTR en MUT-CADM1 3'-UTR co-getransfecteerd met miR-21-5p mimic/mimic-NC voor dual-luciferase detectie; de labels Controle/overexpressie/interferentie die in de ruwe plotconcepten werden getoond, zijn in de definitieve figuren aangepast naar de standaard WT/MUT-groepering. Voor de target-voorspellingsanalyse zijn drie online databases gebruikt; P-waarden voor verrijking zijn gecorrigeerd via de Benjamini-Hochberg FDR-correctie; dual-luciferase experimenten hadden drie biologische replicaten (elk met drie technische replicaten); foutenbalken representeren het gemiddelde ± SD; twee-groepen t-test voor statistische vergelijking. Afkortingen: CADM1 = celadhesiemolecuul 1; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes; MUT = mutant; NC = negatieve controle; ns = niet significant; UTR = niet-vertaalde regio; WT = wildtype. Klik hier om een grotere versie van deze figuur te bekijken.
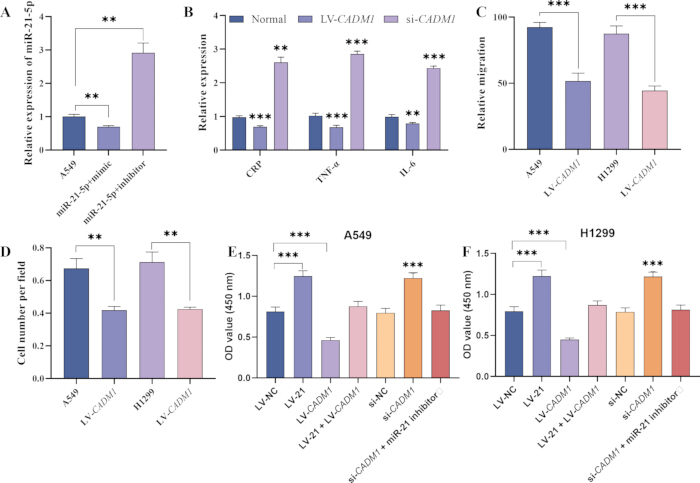
Figuur 5: Functionele rescue-experimenten die de miR-21-5p/CADM1 regulerende as verifiëren in A549- en H1299-cellen. (A) Relatieve miR-21-5p expressie na transfectie met mimic of inhibitor. (B) Relatieve mRNA-expressie van CRP, TNF-α en IL-6 in LV-CADM1- en si-CADM1-groepen. (C) Statistische kwantificering van het relatieve migratievermogen onder CADM1 overexpressie. (D) Kwantificering van het aantal gemigreerde cellen per microscopisch veld in LV-CADM1 -groepen. (E) CCK-8 OD₄₅₀ waarden van A549 rescue-groepen (LV-NC, LV-21, LV-CADM1, LV-21+LV-CADM1, si-NC, si-CADM1, si-CADM1+miR-21 inhibitor). (F) CCK-8 OD₄₅₀ waarden van H1299 rescue-groepen met identieke transfectiebehandelingen. **P < 0.01, ***P < 0.001. Alle rescue-assays bevatten drie onafhankelijke biologische replica's; foutenbalken geven het gemiddelde ± SD aan, eenweg ANOVA met Bonferroni post-hoc test voor vergelijkingen tussen meerdere groepen. Afkortingen: CADM1 = cell adhesion molecule 1; CRP = C-reactief proteïne; IL-6 = interleukine-6; LV = lentivirale vector; NC = negatieve controle; OD = optische dichtheid; qRT-PCR = kwantitatieve reverse-transcriptie PCR; si = small interfering RNA; TNF-α = tumornecrosefactor alfa. Klik hier om een grotere versie van deze figuur te bekijken.
| miR-21-5p expressie | Totaal | x2 | P-waarde | |||
| Laag | Hoog | |||||
| Leeftijd (jaar) | ≤60 | 24 | 29 | 53 | 1.357 | 0.244 |
| ˃60 | 37 | 67 | 104 | |||
| Totaal | 61 | 96 | 157 | |||
| Geslacht | Man | 42 | 73 | 115 | 1.06 | 0.3032 |
| Vrouw | 19 | 23 | 42 | |||
| Totaal | 61 | 96 | 157 | |||
| Histologisch type | Plaveiselcelcarcinoom | 31 | 41 | 72 | 1.09 | 0.2965 |
| Adenocarcinoom | 30 | 55 | 85 | |||
| Totaal | 61 | 96 | 157 | |||
| Tumorgraad | Ⅰ-Ⅱ | 55 | 58 | 113 | 16.25 | 0.00006 |
| Ⅲ | 6 | 38 | 44 | |||
| Totaal | 61 | 96 | 157 | |||
| Lymfekliermetastase | Negatief | 41 | 37 | 78 | 12.17 | 0.00049 |
| Positief | 20 | 59 | 79 | |||
| Totaal | 61 | 96 | 157 | |||
| Tumorgrootte (cm) | ≤3 | 20 | 23 | 43 | 5.623 | 0.0601 |
| 3-7 | 40 | 62 | 102 | |||
| ˃7 | 1 | 11 | 12 | |||
| Totaal | 61 | 96 | 157 | |||
| T-stadium | T1 | 15 | 17 | 32 | 4.295 | 0.117 |
| T2 | 36 | 52 | 88 | |||
| T3 | 10 | 27 | 37 | |||
| Totaal | 61 | 96 | 157 | |||
Tabel 1: Associatie tussen miR-21-5p expressie en clinicopathologische kenmerken bij patiënten met niet-kleincellige longkanker. Waarden zijn patiëntenaantallen. Associaties zijn beoordeeld met de χ2 toets. Afkorting: NSCLC = niet-kleincellige longkanker. Elke χ2 toets is uitgevoerd voor categorische clinicopathologische variabelen; alle analyses maakten gebruik van de volledige 157 patiëntenmonsters.
| n | P waarde | Relatief risico | 95% betrouwbaarheidsinterval | |||
| Verlaag | Bovenste | |||||
| Leeftijd (jaren) | ≤60 | 53 | 0.503 | 1.282 | 0.62 | 2.652 |
| ˃60 | 104 | |||||
| Geslacht | Mannelijk | 115 | 0.339 | 1.418 | 0.693 | 2.901 |
| Vrouwelijk | 42 | |||||
| Histologisch type | Plaveiselcelcarcinoom | 72 | 0.515 | 1.261 | 0.627 | 2.537 |
| Adenocarcinoom | 85 | |||||
| miR-21-5p expressie | Hoog | 96 | 0.005 | 3.066 | 1.412 | 6.659 |
| Laag | 61 | |||||
| Lymfekliermetastase | Negatief | 78 | 0.002 | 22.295 | 3.039 | 163.588 |
| Positief | 79 | |||||
Tabel 2: Multivariabele Cox-proportional-hazardsanalyse van de algehele overleving bij patiënten met niet-kleincellige longkanker.Waarden zijn hazard ratio's met 95% betrouwbaarheidsintervallen. Afkortingen: CI = betrouwbaarheidsinterval; NSCLC = niet-kleincellige longkanker. De multivariabele Cox-regressie werd uitgevoerd op volledige klinische cohortgegevens; HR en 95% CI werden berekend voor onafhankelijke prognostische screening.
Aanvullend bestand 1: Oligonucleotide- en primersequenties gebruikt voor transfectie en kwantitatieve reverse-transcriptie PCR. Het bestand bevat de miR-21-5p mimic en inhibitor, hun respectievelijke negatieve controles en primers voor CADM1, GAPDH, hsa-miR-21-5p en cel-miR-39. Alle sequenties worden weergegeven in de 5′–3′ richting. Afkortingen: CADM1 = cell adhesion molecule 1; cel = Caenorhabditis elegans; GAPDH = glyceraldehyde-3-fosfaatdehydrogenase; hsa = Homo sapiens; miR = microRNA; PCR = polymerasekettingreactie. Klik hier om dit bestand te downloaden.
Aanvullend bestand 2. Brongegevens ter ondersteuning van de figuren. Dit bestand bevat de onderliggende datasets en statistische analyses die zijn gebruikt om de in het manuscript gepresenteerde figuren te genereren, inclusief de klinische kenmerken, expressieanalyses, overlevingsgegevens en bijbehorende statistische resultaten. Deze brongegevens ondersteunen de bevindingen die in de hoofdtekst worden gerapporteerd. Klik hier om dit bestand te downloaden.
Discussie
Deze studie bevestigde systematisch een verhoogde expressie van miR-21-5p in klinische weefsels van NSCLC, wat correleerde met een verhoogde transcriptie van ontstekingsfactoren en een sterker vermogen tot celmigratie en proliferatie; terwijl dual-luciferase, qRT-PCR en rescue-experimenten CADM1 identificeerden als het directe functionele doelwit. Bio-informatische voorspellingen gaven verder aan dat de downstreamdoelwitten van miR-21-5p verrijkt waren in de oncogene MAPK- en Ras-cascades, wat preliminair bewijs levert dat de miR-21-5p/CADM1-as mogelijk betrokken is bij signaleringspaden gerelateerd aan de maligne progressie van tumoren.
Analyse van de klinische cohort onthulde dat een hoge expressie van miR-21-5p nauw geassocieerd was met een gevorderde tumorgraad, lymfekliermetastasen en een kortere algehele overleving. Multivariate Cox-regressie bevestigde miR-21-5p als een onafhankelijke ongunstige prognostische factor, wat suggereert dat miR-21-5p kan dienen als een potentiële biomarker om het progressierisico en de overlevingsuitkomst van NSCLC-patiënten te evalueren.
In vitro functionele assays toonden aan dat overexpressie van miR-21-5p de proliferatie, migratie en inflammatoire respons van NSCLC-cellen faciliteerde, terwijl upregulatie van CADM1 al deze oncogene fenotypen omkeerde; een negatieve expressiecorrelatie tussen miR-21-5p en CADM1 in patiëntenmonsters, samen met cellulaire rescue-data, verhelderde volledig het regulatiemechanisme waarbij miR-21-5p maligne gedragingen van NSCLC stimuleert door CADM1 direct te remmen.
In overeenstemming met eerdere studies die de oncogene rol van miR-21-5p in longcarcinoma rapporteerden, vult dit werk deze bevindingen aan met intacte klinische correlatiegegevens en een volledige rescue-validatie om de tumorbevorderende functie te bevestigen; in tegenstelling tot bestaand onderzoek, dat zich slechts richt op één enkel metastase-fenotype, koppelt de huidige studie miR-21-5p gelijktijdig aan celproliferatie en de inflammatoire tumor-micro-omgeving via het CADM1-doelwit, waardoor het regulatienetwerk van miR-21-5p in NSCLC wordt uitgebreid.
Op basis van het bovenstaande voorlopige bewijs heeft de detectie van de weefselexpressie van miR-21-5p een potentiële aanvullende waarde voor de risicostratificatie en prognostische beoordeling van NSCLC, en de miR-21-5p/CADM1-as kan nieuwe kandidaat moleculaire doelwitten bieden voor de ontwikkeling van interventiestrategieën tegen de progressie van NSCLC, hoewel de klinische therapeutische effectiviteit hiervan nog moet worden geverifieerd.
Deze studie kent verschillende beperkingen. Er is gebruikgemaakt van in vitro celassays en een enkele retrospectieve klinische cohort zonder in vivo xenograft- of onafhankelijke externe-cohortvalidatie. Aanvullende proliferatieassays (bijv. EdU- en kolonievormingsassays), invasie-, apoptose- en celcyclusassays zijn niet uitgevoerd. Testen van perifeer bloed voor non-invasief diagnostisch potentieel, validatie van het CADM1-eiwitniveau, de volledige overlappende lijst met doelgenen en een systematische analyse van het eiwit-eiwitinteractienetwerk (PPI) waren ook niet beschikbaar. Toekomstig onderzoek dient deze beperkingen aan te pakken en de upstream-regulatoren van miR-21-5p en de downstream CADM1-signalering verder te onderzoeken.
Samen leveren deze resultaten preliminair bewijs dat miR-21-5p fungeert als een oncogeen microRNA, dat de proliferatie, migratie en inflammatie van NSCLC versnelt door direct CADM1 te targeten, en dat een hoge expressie hiervan een ongunstige overleving van de patiënt voorspelt.
Openbaarmakingen
De auteurs hebben geen relevante financiële of niet-financiële belangen te melden.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10% neutraal gebufferd formaline | Fisher Scientific (Fisherbrand)™) | SF100-4 (typisch) | Weefselfixatief; weefsels gesneden tot &< 5 mm dikte, gefixeerd bij kamertemperatuur gedurende 14-26 uur |
| Celkweekplaat met 24 putjes | Corning | 3526 | Plaat voor het uitplaten van getransfecteerde cellen en het uitvoeren van een wondgenezings- (scratch-)assay |
| A549-cellijn | ATCC (of Shanghai Resource Center) | CCL-185 | Menselijke niet-kleincellige longkanker-cellijn (NSCLC) (adenocarcinoom) |
| CCK-8 assay kit | Dojindo | CK04 | Detectie van proliferatie |
| Celcultuurmedium (niet gespecificeerd) | Gibco (Thermo Fisher Scientific) | Diverse (bijv. RPMI-1640: 11875093, F-12K: 21127022) | Basaal medium voor NSCLC-cellijnen; exacte samenstelling is afhankelijk van de gebruikte cellijn |
| cel-miR-39 (exogene spike-in controle) | GenePharma (Shanghai, China) | Aangepast (bijv. B010302) | Externe referentie voor normalisatie van miRNA-expressie, toegevoegd tijdens RNA-isolatie |
| CO2 Incubator (bevochtigd) | Thermo Fisher Scientific (Heracell) | Heracell 150i (50116047) | Biedt 37°C, 5% CO22en verzadigde vochtigheid voor celkweek |
| CRP/TNF-α/IL-6 primerparen | Sangon Biotech | maatwerksynthese | Volledige sequenties in Aanvullend Bestand 1 |
| Kristalviolet kleuringsoplossing | Solarbio | G1062 | Kleuring van gemigreerde cellen |
| DMEM-medium | Gibco | 11965092 | Voor H1299/293T-cultuur |
| Dual-luciferase reporter assay kit | Promega | E1910 | Detectie van WT/MUT CADM1 3'UTR |
| Exogeen cel-miR-39 | Qiagen | aangepaste spike-in | Toegevoegd na RNA-isolatie voor normalisatie |
| Foetaal Bovien Serum (FBS) | Gibco (Thermo Fisher Scientific) | 10437028 | Supplement toegevoegd aan het kweekmedium bij een eindconcentratie van 10% om de celgroei te ondersteunen |
| Fijne pipetpunt (bijv. 10 µL tip) | Axygen (Corning) | T-300 | Wordt gebruikt om een monolaag cellen handmatig af te krabben om een "wond" Kloof |
| GAPDH (endogene controle) | Meerdere leveranciers (bijv. Sangon Biotech, RiboBio; custom primers) | Aangepast | mRNA-normalisatiereferentiegen gebruikt in qRT-PCR |
| GO/KEGG (clusterProfiler-annotatie) | Bioconductor | 2026 build | |
| GraphPad Prism | GraphPad-software | v9.5.1 | Grafieken tekenen & in vitro statistiek |
| H1299-cellijn | ATCC (of Shanghai Resource Center) | CRL-5803 | Menselijke niet-kleincellige longkanker (NSCLC)-cellijn afgeleid van lymfekliermetastase |
| Hitte-geïnactiveerd FBS | Gibco | 10099141 | 10% werkconcentratie |
| HEK-293T-cellijn | ATCC | CRL-3216 | RRID:CVCL_0063; maandelijkse STR-analyse, mycoplasma-detectie negatief |
| Lentivirus-packagingsmix | Genecopoeia (of Takara Bio) | HPK-LvT-100 (Genecopoeia) | Levert verpakkingsplasmiden (gag/pol, rev, vsv-g) voor de productie van lentivirus |
| Lentivirus-21-vector (LV-21) | GeneChem (Shanghai, China) of Genecopoeia | Op maat gemaakt | Lentivirale vector met miR-21-5p voor het construeren van stabiele expressie-cellijnen |
| Lentivirus-NC Vector (LV-NC) | GeneChem (Shanghai, China) of Genecopoeia | Aangepast | Negatieve controle lentivirale vector zonder miR-21-5p-insert |
| Lipide transfectiereagens | Thermo Fisher | L3000015 | Voor transiente transfectie |
| Lipofectamine 3000 transfectiereagens | Invitrogen (Thermo Fisher Scientific) | L3000015 of L3000008 | Lipide-gebaseerd transfectiereagens; 50 uur na transfectie voor daaropvolgende experimenten |
| Methanol | Sinopharm | 67-56-1 | Cellfixatie |
| Methanol (Fixeerder/Kleuringsverdunner) | Sigma-Aldrich | 34860 | Gebruikt als fixatief of verdunner voor kristalvioletkleuring |
| miR-21-5p inhibitor/inhibitor-NC | GenePharma | maatwerksynthese | Sequenties in aanvullend bestand 1 |
| miR-21-5p mimic/mimic-NC | GenePharma | maatwerksynthese | Sequenties in aanvullend bestand 1 |
| miRDB | Washington University | v6.0 | |
| miRWalk | Universiteit Heidelberg | v3.0 | |
| Nationaal Centrum voor Biopsie-engineering | Nationaal Centrum voor Biopsie-engineering (China) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voer aub de Engelse tekst in die u vertaald wilt hebben naar het Nederlands. | Institutionele leverancier van longkankerweefselmonsters met geregistreerde klinische gegevens en histopathologische diagnose |
| NSCLC-weefsel (voor primaire kweek) | Shanghai Rui Bao He Biotechnology Co. | Maatwerkbestelling | Weefselbron; gekweekt in medium met 10% FBS bij 37°C; cellen met een goede morfologie in de logaritmische groeifase geselecteerd voor transfectie |
| PCR-instrument | Applied Biosystems (Thermo Fisher Scientific) | 7500 Fast (4406984) | Verkrijg amplificatieproducten voor qRT-PCR |
| Penicilline-streptomycine | Solarbio | P1400 | 100 U/mL penicilline, 100 μg/mL streptomycine |
| Pipetten (enkelkanaals & Multi-kanaals) | Eppendorf | Research Plus-serie | Voor een precieze vloeistofbehandeling in alle experimenten |
| Polybrene | Sigma-Aldrich | H9268 | Definitief 5 μg/mL voor lentivirale infectie |
| Puromycine | InvivoGen | mieren-pr-1 | 5 μg/mL voor screening van stabiele cellijnen |
| Puromycinedihydrochloride | Thermo Fisher Scientific (InvivoGen) | ant-pr-1 (InvivoGen); P7255 (Sigma-Aldrich) | Selectieantibioticum, gebruikt in een concentratie van 5 μg/mL om stabiel getransfecteerde cellijnen vast te stellen |
| R | R Foundation | v4.2.1 | Pakket: clusterProfiler, ggplot2 |
| Reverse transcriptiekit | Takara | RR047 | Stem-loop RT voor miRNA, oligo(dT) voor mRNA |
| RNase-vrije EP-buisjes | Axygen (Corning) | MCT-150-C | 1,5 mL RNase-vrije buisjes voor RNA-opslag en -verwerking |
| RPMI-1640-medium | Gibco | 11875093 | Voor A549-cultuur |
| si-CADM1 | GenePharma | maatwerksynthese | Sequenties in supplementbestand 1 |
| si-NC | GenePharma | maatwerksynthese | Sequenties in aanvullend bestand 1 |
| SPSS | IBM | v26.0 | Klinische/Cox-regressieanalyse |
| SYBR Green qPCR Master Mix | Roche | 4913914001 | qRT-PCR-amplificatie |
| TargetScan | MIT | v8.2 | |
| Reagens voor totale RNA-extractie | Takara | 9109 | Fenol/guanidine-gebaseerde lysis |
| Transwell-kamer | Corning (Costar) | 3422 (24-wells, 8.0 µm) | Voor celtransfectie in medium bij kamertemperatuur; chemische primers toegevoegd en 48 uur geïncubeerd |
| Transwell-migratiekamers | Corning | 3422 | 8 μm poriegrootte |
| TRIzol-reagens | Invitrogen (Thermo Fisher Scientific) | 15596026 | Totale RNA-extractie uit weefselmonsters; RNA-kwaliteit geëvalueerd op basis van OD260/280- en OD260/230-ratio's |
| Trypsine-EDTA (0,25%) | Gibco (Thermo Fisher Scientific) | 25200072 | Voor het losmaken van cellen uit kweekvaten vóór het uitplaatten in 24-wells platen |
Referenties
- Bautista-Sánchez D, et al. The promising role of miR-21 as a cancer biomarker and its importance in RNA-based therapeutics. Mol Ther Nucleic Acids. 2020;20:409-20.
- Zhou J, et al. Global burden of lung cancer in 2022 and projections to 2050: incidence and mortality estimates from GLOBOCAN. Cancer Epidemiol. 2024;93:102693.
- Nicholson AG, et al. The 2021 WHO classification of lung tumors: impact of advances since 2015. J Thorac Oncol. 2022;17(3):362-87.
- The Lancet Regional Health – Europe. NSCLC: bridging the gap between clinical progress and real-world application. Lancet Reg Health Eur. 2024;38:100878.
- Reyes J, et al. Oncogenic and tumor-suppressive forces converge on a progenitor niche at the benign-to-malignant transition. Cell. 2026;189(10):2875-97.e53.
- Yu L, Yang R, Long Z, Tao Q, Liu B. Targeted therapy of non-small cell lung cancer: mechanisms and clinical trials. Front Oncol. 2024;14:1451230.
- O'Brien J, Hayder H, Zayed Y, Peng C. Overview of microRNA biogenesis, mechanisms of actions, and circulation. Front Endocrinol (Lausanne). 2018;9:402.
- Treiber T, Treiber N, Meister G. Regulation of microRNA biogenesis and its crosstalk with other cellular pathways. Nat Rev Mol Cell Biol. 2019;20(1):5-20.
- Ohno S, Kuroda M. Exosome-mediated targeted delivery of miRNAs. Methods Mol Biol. 2016;1448:261-70.
- Ell B, Kang Y. MicroRNAs as regulators of bone homeostasis and bone metastasis. Bonekey Rep. 2014;3:549.
- Dedeoğlu BG. High-throughput approaches for microRNA expression analysis. Methods Mol Biol. 2014;1107:91-103.
- Qu K, et al. Circulating miRNA-21-5p as a diagnostic biomarker for pancreatic cancer: evidence from comprehensive miRNA expression profiling analysis and clinical validation. Sci Rep. 2017;7(1):1692.
- Xu H, et al. Engineered exosomes transporting the lncRNA, SVIL-AS1, inhibit the progression of lung cancer via targeting miR-21-5p. Am J Cancer Res. 2024;14(7):3335-47.
- Chawra HS, et al. MicroRNA-21's role in PTEN suppression and PI3K/AKT activation: implications for cancer biology. Pathol Res Pract. 2024;254:155091.
- Huang Y, Feng G. MiR-423-5p aggravates lung adenocarcinoma via targeting CADM1. Thorac Cancer. 2021;12(2):210-7.
- Hartsough EJ, et al. CADM1 is a TWIST1-regulated suppressor of invasion and survival. Cell Death Dis. 2019;10(4):281.
- Li H, Gao J, Zhang S. Functional and clinical characteristics of cell adhesion molecule CADM1 in cancer. Front Cell Dev Biol. 2021;9:714298.