Hier wordt een protocol gepresenteerd voor het dissekeren van de middendarm, eierstokken en speekselklieren van Aedes albopictus, gevolgd door totale RNA-extractie voor moleculaire karakterisering van vectorenweefsels in studies naar de transmissie van door muggen overgedragen virussen.
Methodenartikel
Dissectie van Aedes albopictus en totale RNA-extractie uit weefsels na dissectie
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
In juli 2025 vond in Foshan, provincie Guangdong, China, een uitbraak van denguekoorts en chikungunya plaats. Ae. albopictus is een belangrijke vector voor deze virussen. Dit protocol beschrijft een eenvoudige, gestandaardiseerde methode voor het dissekeren van de middendarm, speekselklieren en eierstokken van Ae. albopictus en het extraheren van totaal RNA uit de gedissekeerde weefsels. Drie dagen oude, niet-bloedgevoede vrouwelijke muggen werden geanestheseerd door ze 2 min lang bij −20 °C te bevriezen, waarna de doelweefsels werden gedissekeerd. Totaal RNA werd geëxtraheerd met een weefsel-RNA-extractiekit, gekwantificeerd met een microvolume-spectrofotometer en gebruikt voor kwantitatieve real-time polymerasekettingreactie (RT-qPCR) analyse. De resultaten tonen aan dat de dissectiemethode de weefsels snel en volledig scheidt en dat RNA uit de gescheiden weefsels een relatief hoge zuiverheid kan bereiken. RT-qPCR demonstreerde de expressiepatronen en relatieve stabiliteit van drie referentiegenen (GAPDH, β-actin en RPS6). De methode is rechttoe rechtaan, gevalideerd en biedt gestandaardiseerde technische ondersteuning voor onderzoek gerelateerd aan Ae. albopictus.
Inleiding
Aedes albopictus (Ae. albopictus) is een vector voor verschillende pathogenen, waaronder het denguevirus (DENV) en het chikungunya-virus (CHIKV)1,2,3. Het is wijdverspreid en heeft uitbraken van door muggen overgedragen ziekten in vele regio's veroorzaakt4,5. Het vermogen van Ae. albopictus om pathogenen over te dragen, bekend als vectorcompetentie, varieert tussen populaties en is gekoppeld aan specifieke genexpressie in de middendarmen, eierstokken en speekselklieren6. Kennis van de structuur van deze weefsels en het extraheren van hoogwaardig RNA zijn essentieel voor het begrijpen van de replicatie, verspreiding en transmissie van door vectoren overgedragen virussen7.
De detectie van relatieve genexpressie via kwantitatieve real-time PCR (RT-qPCR) is afhankelijk van de precieze dissectie van Ae. albopictus-weefsels en de extractie van hoogwaardig RNA8,9. Tot op heden hebben gepubliceerde videoprotocollen voor de dissectie van de middendarm, eierstokken en speekselklieren zich primair gericht op Aedes aegypti10. Daarom demonstreert dit protocol de dissectie van de middendarm, eierstokken en speekselklieren van Ae. albopictus, waarbij de gedissecteerde weefsels direct in maalkolfjes met een RNA-bewaaroplossing worden geplaatst, waardoor stappen voor weefseloverdracht worden vermeden en overdrachtsverlies wordt geminimaliseerd. Totaal RNA wordt uit de gedissecteerde weefsels geëxtraheerd met behulp van een kolomgebaseerde methode, die minder handelingen en minder tijd vereist dan de conventionele TRIzol-methode11. Deze extractie levert doorgaans 0,1–0,3 µg totaal RNA op uit de speekselklieren van vijf Ae. albopictus, met A260/A280-ratio's van 1,8–2,0, waarmee wordt voldaan aan de zuiverheidseisen voor daaropvolgende RT-qPCR. RT-qPCR wordt uitgevoerd om de expressie van drie referentiegenen in Ae. albopictus-weefsels te meten en zo de kwaliteit van het uit elk weefsel geëxtraheerde RNA te evalueren.
Er moet worden opgemerkt dat dit protocol uitsluitend is gevalideerd voor de middendarm, eierstokken en speekselklieren van 3 dagen oude, niet-bloedgevoede vrouwelijke Ae. albopictus, en niet geschikt is voor RNA-extractie uit het vetlichaam. Het verkrijgen van intacte en individuele weefsels vormt de basis voor daaropvolgende analyses. Door middel van de systematische dissectie van Ae. albopictus-weefsels en RNA-extractie van hoge kwaliteit, biedt dit protocol technische ondersteuning voor daaropvolgende detectie van genexpressie, beoordeling van vectorcompetentie op populatieniveau en controle van de transmissie van arbovirussen.
Protocol
In deze studie werden uitsluitend in het laboratorium gekweekte Ae. albopictus muggen gebruikt. Bijgevolg was voor deze studie geen institutionele ethische goedkeuring vereist. De Ae. albopictus stam die in dit experiment is gebruikt, werd geleverd door het Key Laboratory for Parasitic Disease Control and Prevention of the National Health Commission of China (Jiangsu). Deze kolonie werd oorspronkelijk in de jaren 1980 verzameld in de stad Wuxi en is onder standaardcondities onderhouden in het insectarium van het Jiangsu Institute of Parasitic Diseases . De muggenkolonie werd gehuisvest in een kunstmatige klimaatkamer bij 25 °C ± 1 °C, 75% ± 5% relatieve vochtigheid, met een fotoperiode van 10 h licht en 14 h donker. Larven werden gekweekt in ultrapuur water en gevoed met een mengsel van varkensleverpoeder en gistextract (Shanghai Brewery) in een verhouding van 2:1. Volwassen muggen werden onderhouden op een 5% glucoseoplossing. De gebruikte reagentia en apparatuur staan vermeld in de Tabel met materialen.
1. Voorbereiding van materialen
- Bereiding van oplossingen
- Bereiding van 1x PBS-buffer: Weeg 8,0 g NaCl, 0,2 g KCl, 1,44 g Na2HPO4 en 0,24 g KH2PO4 af. Los dit op in 800 mL ultrapuur water onder stirring. Stel de pH in op 7,4. Vul het uiteindelijke volume aan tot 1 L. Autoclaveer gedurende 20 min bij 121 °C.
- Bereiding van DEPC-oplossing: Voeg 1 mL DEPC-stamoplossing toe aan 1 L ultrapuur water. Roer krachtig op een magnetische roerder gedurende 12–16 u. Autoclaveer gedurende 20 min bij 121 °C.
WAARSCHUWING: DEPC is zeer toxisch en carcinogeen. Draag handschoenen en een veiligheidsbril en werk in een zuurkast.
OPMERKING: Dek het bekerglas af met aluminiumfolie tijdens het krachtig roeren. Verdeel de DEPC-oplossing in aliquots en bewaar deze tot 6 maanden bij -20 °C.
- Voorbereiding van verbruiksartikelen
- Steriliseren van dissectie-instrumenten: Plaats dissectie-naalden van 1 mm en fijnpuntige pincetten in een aluminium bak en autoclaveer gedurende 20 min bij 121 °C.
- Bereid maalbuisjes van 2 mL voor met silica-beads van 0,5–1,0 mm. Plaats deze in een aluminium bak en autoclaveer gedurende 20 min bij 121 °C.
- Voeg 200 µL van de meegeleverde RNA-conserveringsoplossing toe aan elk maalbuisje.
OPMERKING: De RNA-kwaliteit in weefsels neemt significant af binnen 1 min na verwijdering uit het organisme. Bereid de maalbuisjes met conserveringsoplossing vooraf voor.
2. Verzamelen van Ae. albopictus
OPMERKING: Draag witte laboratoriumjassen en handschoenen. Draag geen donkere kleding, aangezien donkere kleuren muggen aantrekken.
- Sluit alle deuren, ramen en ventilatiesystemen in de ruimte waarin de muggenkooi staat om ontsnapping van Ae. albopictus te voorkomen.
- Zet de elektrische aspirator aan en steek deze in de muggenkooi. Richt de aspirator op de Ae. albopictus die op de binnenwanden van de kooi rusten en verzamel de muggen.
- Laat de aspirator draaien terwijl u deze langzaam uit de kooi trekt. Sluit de kooi onmiddellijk af en sluit het deksel van de aspirator.
- Verwijder de opvangkamer en plaats deze 2 min bij -20 °C voor koude immobilisatie van Ae. albopictus.
- Plaats een glazen schaal van 10 cm op ijs voor voorkoeling. Overbreng de geïmmobiliseerde Ae. albopictus van de opvangkamer naar de glazen schaal.
OPMERKING: Controleer de tijd van koude immobilisatie strikt om weefselschade te voorkomen.
3. Identificatie van vrouwelijke Ae. albopictus vóór dissectie
- Selecteer morfologisch intacte, koud-geanestheseerde Ae. albopictus uit de glazen schaal en breng deze over op een glazen objectglas. Onderzoek deze onder een stereomicroscoop bij een vergroting van 80x.
- Identificeer de witte longitudinale streep op het mesonotum.
- Bevestig de witte banden aan de basis van de tarsale segmenten en aan de basis van de abdominale tergieten II-VI12.
- Onderzoek de antennes bij een vergroting van 80x. Maak onderscheid tussen filiforme antennes (vrouwtje) en geveerde antennes (mannetje) om de vrouwtjes te identificeren.
4. Abdominale dissectie van Ae. albopictus
- Plaats drie druppels steriele 1x PBS van links naar rechts op een gesteriliseerde glazen objectglas, waarbij elke druppel ongeveer 20 µL in volume is en ongeveer 5 mm uit elkaar geplaatst is.
OPMERKING: De PBS-druppels moeten groot genoeg zijn om de gehele Ae. albopictus onder te dompelen. - Gebruik een fijne pincet om de vleugels van Ae. albopictus vast te pakken en plaats de mug in de meest linkse PBS-druppel.
- Positioneer de Ae. albopictus met de ventrale zijde naar boven gericht. Gebruik de linkerhand om een dissectienaald vast te houden en druk op het tweede abdominale segment om de Ae. albopictus te immobiliseren.
- Gebruik de rechterhand om een dissectienaald van 1 mm in het midden van het zesde abdominale segment in te brengen. Maak een transversale, halve cirkelvormige incisie om de abdominale holte te openen.
- Beweeg de dissectienaald in de rechterhand ongeveer 2 mm posterieur en druk op de middenregio van de abdominale segmenten VI–VIII om het abdomen te fixeren.
OPMERKING: De ovaria bevinden zich dorsaal binnen de abdominale segmenten II-VI. Beweeg de naald niet willekeurig bij het drukken op segmenten VI-VIII om beschadiging van de intacte morfologie van de ovaria te voorkomen. - Gebruik de linkerhand om het tweede abdominale segment met de dissectienaald vast te pakken en trek voorzichtig naar buiten om het abdomen bij het zesde segment te scheiden. Tijdens de scheiding zullen de voorhoofd, middendarm en Malpighische buisjes volledig worden blootgesteld.
OPMERKING: Malpighische buisjes zijn wit en slank. De middendarm is semi-translucent en fusiform. - Scheid de middendarm van de voor- en achterdarm. Spoel de middendarm twee keer in de centrale PBS-druppel.
- Transfer deze naar een maalkolf met 200 µL RNA-preservatievloeistof die in de commerciële RNA-extractiekit is meegeleverd.
- Druk met de dissectienaald op het midden van het achtste abdominale segment om de gepaarde ovaria aan beide zijden bloot te leggen. Verwijder de ovaria, spoel ze twee keer in de centrale PBS-druppel en transfer ze naar een maalkolf met 200 µL RNA-preservatievloeistof.
OPMERKING: De gepaarde ovaria zijn symmetrisch, rijstkorrelvormig en melkwit. Behandel ze voorzichtig om de structurele integriteit van de ovaria tijdens het bergen te waarborgen.
5. Dissectie van de speekselklieren van Ae. albopictus
- Verhoog de microscoopvergroting naar 400x. Breng het gedissecteerde abdomen over naar Ae. albopictus naar de meest rechtse PBS-druppel.
- Oefen met de dissectienaald in de linkerhand voorzichtig druk uit op het mesothorax tot de kop licht is opgeheven.
- Gebruik de rechterhand om de kop bij de cervix met de dissectie-naald op te tillen en langzaam naar buiten te trekken. Observeer hoe de speekselklieren (trilobulaire structuur) samen met de kop loskomen van de thorax.
OPMERKING: De speekselklieren zijn gelegen in het anterieure thoraxgedeelte en maken verbinding met de kop. via de speekselbuis. Het uitoefenen van een constante druk op de thorax voorkomt ruptuur van de speekselbuis en zorgt ervoor dat de speekselklieren samen met de kop intact loskomen van de thorax. Het beheersen van de kracht bij deze stap vereist herhaalde oefening. - Scheid de speekselklieren van de kop. Spoel ze twee keer in de centrale PBS-druppel en breng ze over naar een voorbereide maalkolf.
OPMERKING: Speekselklieren zijn ongeveer 1 mm groot. Breng ze over naar een maalkolf die bevat 200 µL RNA-conserveersolution en observeer dit tegen een witte lichtbron om de aanwezigheid van kleine witte spikkels die in de oplossing zweven, te bevestigen.
6. RNA-extractie uit Ae. albopictus en de speekselklieren, eierstokken en middendarm daarvan
OPMERKING: Alle stappen voor de RNA-extractie werden uitgevoerd volgens de instructies van de fabrikant van de commerciële kit voor RNA-extractie uit weefsel, zonder aanpassingen.
- Koel de weefselmaler voor tot 4 °C. Stel de parameters in op 30 Hz, 30 s maaltijd, 10 cycli en 8 s pauzetijd.
- Plaats de maalbuisjes met weefselmonsters in de maler en start het programma.
OPMERKING: Controleer na het malen of het weefsel volledig is gedispergeerd in de RNA-preserveringsoplossing. Als het malen onvolledig is, voer dan nog eens 5 cycli uit. - Overbreng het homogenizaat naar een steriele 1,5 mL centrifugebuis. Centrifugeer bij 12.000 x g bij 4 °C gedurende 5 min.
- Overbreng het supernatant naar een nieuwe steriele 1,5 mL centrifugebuis. Voeg 30 µL chloroform toe.
WAARSCHUWING: Chloroform is toxisch en carcinogeen. Draag handschoenen en een veiligheidsbril en werk in een zuurkast. - Vortex krachtig gedurende 20 s. Incubeer bij kamertemperatuur gedurende 15 min en centrifugeer daarna bij 12.000 x g bij 4 °C gedurende 15 min.
OPMERKING: Pipetteer voorzichtig de bovenste waterige fase af en vermijd de middelste witte laag om proteïnecontaminatie te voorkomen. - Overbreng de bovenste waterige fase naar een nieuwe steriele 1,5 mL centrifugebuis. Voeg 75 µL isopropanol toe.
- Meng door te inverteren en overbreng het gehele mengsel naar een silica spincolumn. Centrifugeer bij 12.000 x g gedurende 1 min.
- Voeg 600 µL wasbuffer toe aan de column. Centrifugeer bij 12.000 x g gedurende 30 s. Gooi het doorstroomvolume weg.
- Voeg 600 µL 80% ethanol toe aan de column. Centrifugeer bij 12.000 x g gedurende 30 s. Gooi het doorstroomvolume weg. Herhaal deze wasstap één keer, voor in totaal twee wasbeurten.
- Voeg 30 µL DEPC-water toe aan het midden van het columnmembraan. Incubeer bij kamertemperatuur gedurende 1 min.
- Plaats de column in een steriele 1,5 mL centrifugebuis. Centrifugeer bij 12.000 x g gedurende 1 min om het RNA te elueren.
- Neem 1 µL van het geëlueerde RNA en meet de concentratie en zuiverheid met een microvolume-spectrofotometer.
7. RNA omgekeerde transcriptie
- Voorbereiding van het reactiesysteem
- Ontdooi de 4x reverse transcription master mix, nuclease-vrij water en het RNA-template op ijs.
- Bereid in een 200 µL PCR-buisje een reactiesysteem van 20 µL voor door 5 µL 4x reverse transcription master mix, 10 µL totaal RNA-template en 5 µL nuclease-vrij water toe te voegen.
- Centrifugeer kort gedurende 1 min bij 1.000 x g om het reactiemengsel onderin de buis te verzamelen.
- Plaats het PCR-buisje in een thermocycler en voer het reverse transcription-programma uit: 50 °C gedurende 5 min; 85 °C gedurende 5 s.
OPMERKING: Verdun het reverse transcription-product 20-voudig voor gebruik om het effect van potentiële inhibitoren op RT-qPCR te verminderen.
8. Real-time kwantitatieve PCR (RT-qPCR)
- Voorbereiding van het RT-qPCR-reactiesysteem
- Ontdooi de 2x SYBR Green qPCR-mastermix, het cDNA-sjabloon en de 10 µM forward- en reverse-primers op ijs, waarbij ze gedurende het hele proces tegen licht worden beschermd.
- Bereid in een 96-well PCR-plaat een reactiesysteem van 20 µL per well voor door 10 µL 2x SYBR Green qPCR-mastermix, 0,8 µL van elk van de 10 µM forward- en reverse-primers (eindconcentratie 400 nM), 2 µL van het 20-voudig verdunde cDNA-sjabloon en 6,4 µL nucleasevrij water toe te voegen.
- Sluit de 96-well plaat af met een optische klevende folie en zorg ervoor dat alle wells volledig zijn afgedicht.
- Centrifugeer 1 min bij 1.000 x g om het reactiemengsel op de bodem van de wells te verzamelen.
- Plaats de PCR-plaat in een real-time PCR-detectiesysteem en voer het thermische cyclingsprogramma uit.
OPMERKING: Thermisch cyclingsprogramma: Pre-denaturatie bij 95 °C gedurende 30 s (1 cyclus); amplificatie: 95 °C gedurende 30 s, 60 °C gedurende 30 s (40 cycli); smeltcurve-analyse: 95 °C gedurende 15 s, 60 °C gedurende 1 min, ramp naar 95 °C met 0,15 °C/s. Elke weefsel-RNA-monster wordt in viervoudige technische replica's onderworpen aan qPCR. Elk weefselmonster bestaat uit samengevoegde weefsels van 5 Ae. albopictus. De primersequenties die voor RT-qPCR zijn gebruikt, staan vermeld in Tabel 1.
- Gegevensanalyse
- Inspecteer de smeltcurve voor elk primerpaar om een enkele, goed gedefinieerde dissociatiepiek te bevestigen.
- Exporteer de Ct-waarden vanuit de software van het instrument. Grafische weergave en gegevensanalyse worden uitgevoerd met statistische en grafische software.
| Naam van de primers | Primersequenties (5''-3') |
| Ae. albopictus β-actine forward primer | GGAGAAGATCTGGCATCACA |
| Ae. albopictus β-actine reverse primer | TGTCATCTTCTCGCGGTTAG |
| Ae. albopictus GAPDH forward primer | CTGCCAAGGCTGTCGGTAA |
| Ae. albopictus GAPDH-reverseprimer | TCATAGGAGGCAGGCTTGGA |
| Ae. albopictus RPS6 Forward Primer | ACAAGCTGCGTCACTTCTACGACA |
| Ae. albopictus RPS6 reverse primer | CTTGTCGTTTCCACCGGCAATCTT |
Tabel 1: Primersequenties van Ae. albopictus gebruikt in RT-qPCR.
Resultaten
Deze studie bestaat uit twee delen: de dissectie van Ae. albopictus en RNA-extractie uit weefsels na dissectie. De algemene workflow wordt getoond in Figuur 1, waarbij Figuur 1A de dissectie van Ae. albopictus illustreert en Figuur 1B de RNA-extractie en de daaropvolgende detectie van expressieniveaus van referentiegenen illustreert.
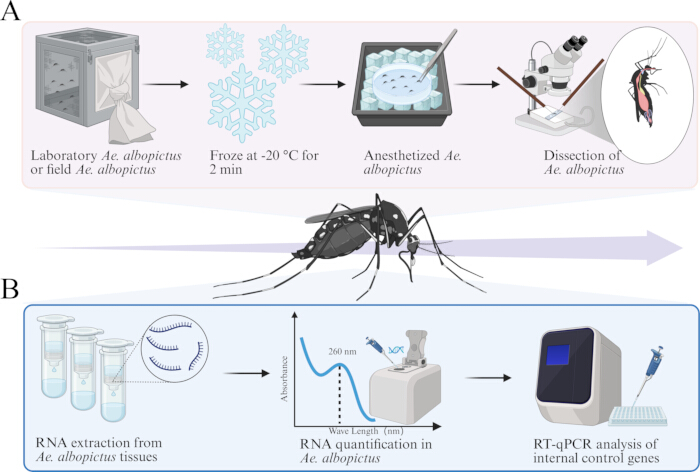
Figuur 1: Schema van de dissectie van Ae. albopictus en totale RNA-extractie uit weefsels na dissectie. (A) Collectie, anesthesie en dissectie van Ae. albopictus. (B) RNA-extractie uit weefsels na dissectie, bepaling van de zuiverheid en detectie van expressieniveaus van referentiegenen. Klik hier om een grotere versie van deze figuur te bekijken.
Vijf in het laboratorium gekweekte Ae. albopictus werden gedissekeerd om de middendarm, speekselklieren en eierstokken te isoleren. Bij een vergroting van 80× waren de transparante voordarm, middendarm en achterdarm van de Ae. albopictus duidelijk zichtbaar, met de korrelachtige eierstokken aan weerszijden, bedekt door de witte Malpighische klierbuisjes (Figuur 2A). Wanneer het gezichtsveld werd aangepast naar 400×, werden de doorschijnende speekselklieren van Ae. albopictus duidelijk waarneembaar (Figuur 2B). Figuur 2C,D illustreren de geïsoleerde middendarm en het eierstokweefsel. De resultaten gaven aan dat de weefsels die via deze dissectiemethode waren geïsoleerd hun structurele integriteit behielden, wat essentieel is voor de daaropvolgende extractie van totaal RNA uit de specimens na dissectie.
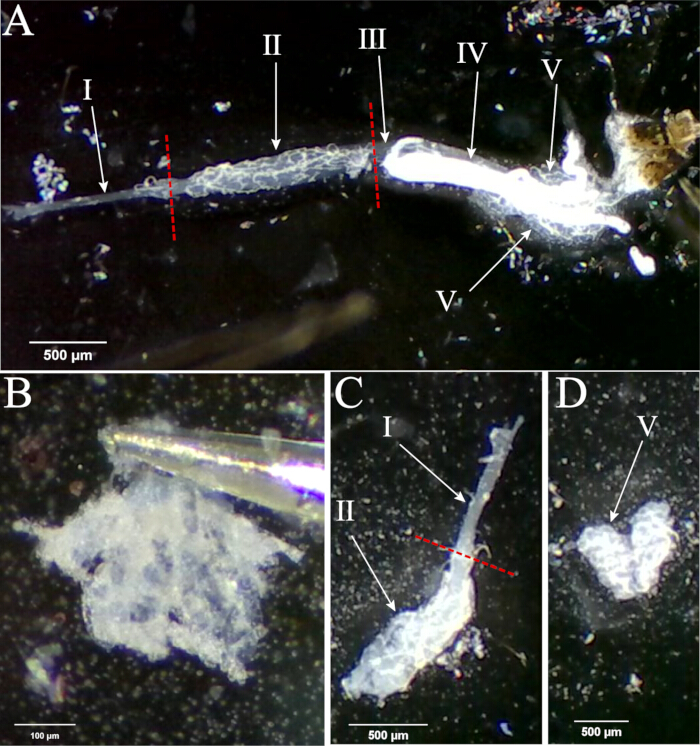
Figuur 2: Analyse na dissectie van Ae. albopictus-weefsels. (A) Weefsels worden geïsoleerd uit het abdomen van Ae. albopictus. (B) Translucente, drielobbige speekselklieren van Ae. albopictus. (C) Voor- en middendarm van Ae. albopictus. (D) Rijstkorrelvormige gepaarde ovaria van Ae. albopictus. I: voordarm; II: middendarm; III: achterdarm; IV: Malpighische buisjes; V: ovaria. Klik hier om een grotere versie van deze figuur te bekijken.
Totaal RNA werd geëxtraheerd uit gedissecteerde weefsels van Ae. albopictusWeefselmonsters (speekselklieren, middendarm en eierstokken) werden volledig vermalen voorafgaand aan de extractie. De RNA-concentraties varieerden per weefseltype: speekselklieren waren 7,8 ng/µL, terwijl middendarm-, eierstok- en hele-lichaamshomogenaten van vrouwelijke Ae. albopictus waren 55,3, 45,7 en 42,7 ng/µLrespectievelijk. Alle monsters vertoonden een hoge zuiverheid, met A260/A280-ratio's van 1,87–2,10 en A260/A230-ratio's van 1,73–2,13 (Tabel 2). De expressieniveaus van drie kandidaat-referentiegenen (GAPDH, β-actine, en RPS6) werden via RT-qPCR in alle weefsels beoordeeld. Hoewel hun expressie enigszins varieerde met de RNA-concentratie, bleven alle drie de genen relatief stabiel over verschillende weefseltypes (Figuur 3). GAPDH, β-actine, en RPS6 geschikt zijn als stabiele referentiegenen voor de normalisatie van genexpressie in verschillende weefsels van Ae. albopictus.
| Weefsel | Aantal monsters | RNA-conc. (ng/μL) | A260/A280 | A260/A230 |
| Speekselklier | 5 | 7.8 | 1.87 | 1.73 |
| Middendarm | 5 | 55.3 | 1.94 | 1.98 |
| Eierstok | 5 | 45.7 | 2.10 | 2.13 |
| Vrouwelijk | 1 | 42.7 | 2.04 | 1.92 |
Tabel 2: RNA-concentratie en zuiverheid van RNA geëxtraheerd uit Ae. albopictus-weefsel.
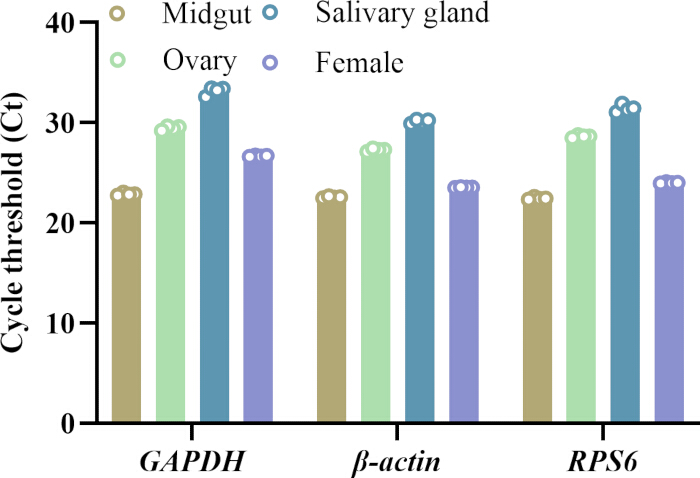
Figuur 3: Ct-waarden van referentiegenen (GAPDH, β-actin, en RPS6) gedetecteerd via RT-qPCR. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Ae. albopictus is wijdverspreid in gematigde, subtropische en tropische regio's op alle continenten, behalve Antarctica13,14. Als belangrijke vector voor arbovirussen zoals het denguevirus (DENV), het zikavirus (ZIKV) en het chikungunya-virus (CHIKV), heeft het herhaaldelijk uitbraken van door muggen overgedragen ziekten veroorzaakt in Guangdong, China15.
Om onderzoek naar virussen gerelateerd aan Ae. albopictus en hun transmissie te ondersteunen, hebben we een eenvoudige methode ontwikkeld voor het dissekeren van Ae. albopictus-weefsels. In conventionele dissectieprotocollen kan, wanneer de kop tijdens de dissectie van de speekselklieren van de thorax wordt gescheiden, de speekselklieren afhankelijk van de uitgeoefende kracht aan ofwel de thorax of de kop blijven zitten; aangezien de speekselklieren slechts ongeveer 1 mm groot zijn, wordt het lokaliseren ervan in de thorax bemoeilijkt16. Deze methode bouwt voort op standaardprotocollen voor de isolatie van mugenorganen en optimaliseert de scheiding van speekselklieren die zich onder de prosternale en mesosternale sternieten bevinden, welke onder 400× vergroting moeten worden waargenomen17. Voor de dissectie wordt de mesothorax voorzichtig met één naald ingedrukt, terwijl met een andere naald druk wordt uitgeoefend om de kop te scheiden, waardoor de speekselklieren intact loslaten. Deze aanpak voorkomt dat er naar de speekselklieren in de thorax gezocht moet worden, voorkomt contaminatie en beschadiging van de klieren en verkort de totale dissectietijd. De ovaria bevinden zich nabij abdominale segmenten VI–VIII en worden behouden door de dissectie te beginnen bij het zesde abdominale segment en de middendarm, de Malpighische buisjes en de ovaria voorzichtig uit het abdomen te extraheren18. Deze methode levert intacte speekselklieren op, ovaria met een typische vorm zonder adhesie en een onbeschadigde middendarm (Figuur 2). Deze dissectietechniek biedt waardevolle richtlijnen voor studies naar Ae. albopictus en de replicatie, disseminatie en transmissie van door vectoren overgedragen virussen.
RNA-extractie uit Ae. albopictus-weefsels is essentieel voor het detecteren van door muggen overgedragen virussen. De conventionele TRIzol-methode is tijdrovend en technisch veeleisend, maar levert doorgaans hoge RNA-opbrengsten op en kan bij correcte uitvoering hoogwaardig RNA produceren. In tegenstelling hiermee biedt de kolomgebaseerde methode een betere reproduceerbaarheid en is deze eenvoudiger uit te voeren, maar dit kan leiden tot een lagere RNA-terugwinning en is minder efficiënt bij toepassing op het vetlichaam19,20. In deze studie werden gedissecteerde weefsels prompt geconserveerd in een nucleïnezuurstabilisator, grondig vermalen en verwerkt via de spin-kolommethode om RNA te extraheren voor cDNA-synthese21. Om een nauwkeurige normalisatie van RT-qPCR-gegevens te waarborgen bij variaties in de cDNA-kwaliteit, zijn stabiele referentiegenen noodzakelijk22. Hoewel referentiegenen zijn vastgesteld voor diverse ontwikkelingsstadia van Ae. albopictus, behoeven weefselspecifieke referentiegenen verdere validatie23,24. RT-qPCR-analyse van reverse-getranscribeerd RNA uit alle gedissecteerde weefsels resulteerde in een consistente amplificatie van GAPDH, β-actin en RPS6, wat bevestigt dat de RNA-kwaliteit die via dit dissectieprotocol is verkregen, voldoende is om daaropvolgende weefselspecifieke genexpressiestudies in Ae. albopictus te ondersteunen.
Tijdens de dissectie van Ae. albopictus-weefsels met dit protocol kan het incidenteel voorkomen dat de speekselklieren niet samen met de kop loslaten. Dit is meestal het gevolg van onvoldoende druk op de thorax in combinatie met een te snelle separatie van de kop. Om dit op te lossen, dient er een constante druk op de mesothorax te worden uitgeoefend terwijl de kop langzaam naar buiten wordt getrokken, zodat de speekselklieren intact met de kop loskomen. Controleer bij het overbrengen van de speekselklieren naar een maalbuisje met RNA-conserveeringsvloeistof de vloeistof zorgvuldig tegen een lichtbron op kleine witte zwevende stipjes. Indien de speekselklieren niet in het buisje kunnen worden gelokaliseerd, dient direct te worden gecontroleerd of ze nog aan de dissectienaald vastzitten. Volg tijdens de RNA-extractie strikt het protocol van de kitfabrikant. Als de verkregen RNA-concentratie laag is, kan een tweede elutie met de elutiebuffer worden uitgevoerd. Bij RT-qPCR kunnen meerdere pieken in de smeltcurve optreden; verifieer in dat geval eerst de primerspecificiteit. Als de Ct-waarden hoog zijn, dient de annealing-temperatuur van het programma te worden aangepast aan de smelttemperatuur van de primer. In het algemeen moet de annealing-temperatuur in het programma 1–2 °C onder de smelttemperatuur van de primer worden ingesteld25.
Deze studie kent enkele beperkingen. De reikwijdte van de monsters is relatief beperkt, aangezien de focus uitsluitend lag op de middendarm, speekselklieren en eierstokweefsels, zonder andere weefsels zoals de Malpighische klieren en het vetlichaam te onderzoeken26. Bovendien was de analyse beperkt tot 3 dagen oude, in het laboratorium gekweekte vrouwelijke muggen, waarbij bloedgevoede en virusgeïnfecteerde individuen werden uitgesloten27. Toekomstige verbeteringen zouden het uitbreiden van de monsterreikwijdte moeten omvatten om weefsels zoals de Malpighische klieren mee op te nemen en het overwegen van Ae. albopictus individuen in verschillende fysiologische toestanden.
Samenvattend biedt de dissectie van de middendarm, eierstokken en speekselklieren van Ae. albopictus, gevolgd door totale RNA-extractie, een technische basis voor daaropvolgende beoordelingen van de vectorefficiëntie en studies naar de transmissie van arbovirussen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 3 mL extra lange Pasteurpipet | WHB | WHB-S4 | 3 mL |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme | Q711-02 | 500 reacties |
| HiScript IV All-in-One Ultra RT SuperMix for qPCR-kit | Vazyme | R433-01 | 100 reacties |
| Micro Total RNA-extractiekit | Medische Technologie | MDT-CFR07 | 100T/doos |
| Micropipetten 0,5-10μL | Eppendorf | 4043444 | |
| Microscoopglasplaatjes | CITOTEST | 80302-2104 | 75 mm×25 mm |
| Microspectrofotometer | KAIAO | K5600C | |
| Extractiebuffer voor nucleïnezuren | MedTech | MDT-TP01 | 100 mL |
| PBS fosfaatgebufferde zoutoplossing (steriel) | Servicebio | G4202 | 500 ml |
| PCR-thermocycler | Eppendorf | Mastercycler X50s | |
| QuantStudioTM 7 Pro Real-Time PCR-systeem | Applied Biosystems | EN61326-1 | |
| Stemi 305 LAB microscoopset | ZEISS | 435063-9010-000 |
Referenties
- Hafsia S et al. Vector competence of Aedes albopictus and Aedes aegypti from the islands of the Southwestern Indian Ocean for epidemic Zika, dengue, and chikungunya viruses. Parasit Vectors. 2025;19(1):34.
- Zhang W, Wang J, Liu Q, Gong Z. A review of pathogens transmitted by the container-inhabiting mosquitoes, Aedes albopictus, a global public health threat. China CDC Wkly. 2023;5(44):984-990.
- Kraemer MUG et al. Past and future spread of the arbovirus vectors Aedes aegypti and Aedes albopictus. Nat Microbiol. 2019;4(5):854-863.
- Zhang M et al. Epidemiological characteristics and transmission dynamics of the early stage Chikungunya fever outbreak in Foshan City, Guangdong Province, China in 2025. Infect Dis Poverty. 2025;14(1):93.
- Meyer AD, Guerrero SM, Dean NE, Anderson KB, Stoddard ST, Perkins TA. Predictability of infectious disease outbreak severity: Chikungunya as a case study. Sci Adv. 2025;11(40):eadt5419.
- Wu Y et al. The making of a dangerous vector: factors shaping the vector competence of Aedes mosquitoes. Front Cell Infect Microbiol. 2025;15:1718737.
- Zhu C et al. Transcriptome analysis of Aedes aegypti midgut and salivary gland post-Zika virus infection. Curr Res Parasitol Vector Borne Dis. 2025;7:100251.
- Liu X, Yang S, Yao Y, Wu S, Wu P, Zhai Z. Opsin1 regulates light-evoked avoidance behavior in Aedes albopictus. BMC Biol. 2022;20(1):110.
- Zhang Y et al. Rapid differential detection of Japanese encephalitis virus and Getah virus in pigs or mosquitos by a duplex TaqMan real-time RT-PCR assay. Front Vet Sci. 2022;9:839443.
- Coleman J, Juhn J, James AA. Dissection of midgut and salivary glands from Ae. aegypti mosquitoes. J Vis Exp. 2007;4(5):228.
- Tesena P, Korchunjit W, Taylor J, Wongtawan T. Comparison of commercial RNA extraction kits and qPCR master mixes for studying gene expression in small biopsy tissue samples from the equine gastric epithelium. J Equine Sci. 2017;28(4):135-141.
- Ramdini C et al. First report of Aedes albopictus in Saint Barthélemy (French West Indies) confirmed by morphological, molecular and MALDI-TOF mass spectrometry approaches. Parasit Vectors. 2025;18(1):258.
- Battaglia V et al. The worldwide spread of Aedes albopictus: new insights from mitogenomes. Front Genet. 2022;13:931163.
- Laporta GZ, Potter AM, Oliveira JFA, Bourke BP, Pecor DB, Linton YM. Global distribution of Aedes aegypti and Aedes albopictus in a climate change scenario of regional rivalry. Insects. 2023;14(1):49.
- Yip SSW, Charm CYC, Ng KS, Lam SC. Chikungunya fever: a re-emerging mosquito-borne threat demanding proactive prevention strategies in Asia. Front Public Health. 2026;14:1745145.
- Tutagata J, Pocquet N, Trouche B, Reveillaud J. Dissection of mosquito ovaries, midgut, and salivary glands for microbiome analyses at the organ level. J Vis Exp. 2024;(212):67128.
- Schmid MA, Kauffman E, Payne A, Harris E, Kramer LD. Preparation of mosquito salivary gland extract and intradermal inoculation of mice. Bio Protoc. 2017;7(14):e2407.
- Airs PM, Nazarchyk MJ, Tucker BJ, Bartholomay LC. Characterizing oogenesis and programmed cell death in the eastern tree hole mosquito Aedes (Protomacleaya) triseriatus. Front Insect Sci. 2022;2:1073308.
- Chomczynski P, Sacchi N. The single-step method of RNA isolation by acid guanidinium thiocyanate-phenol-chloroform extraction: twenty-something years on. Nat Protoc. 2006;1(2):581-585.
- De Azevedo N, Lozano A, Parsons RE, Martin TC. Optimized protocols to extract total transcripts and proteins from lipid-rich tissues. Methods Protoc. 2026;9(2):65.
- García-Longoria L, Ahrén D, Berthomieu A, Kalbskopf V, Rivero A, Hellgren O. Immune gene expression in the mosquito vector Culex quinquefasciatus during an avian malaria infection. Mol Ecol. 2023;32(4):904-919.
- Lü J, Yang C, Zhang Y, Pan H. Selection of reference genes for the normalization of RT-qPCR data in gene expression studies in insects: a systematic review. Front Physiol. 2018;9:1560.
- Dzaki N, Azzam G. Assessment of Aedes albopictus reference genes for quantitative PCR at different stages of development. PLoS One. 2018;13(3):e0194664.
- Vedururu RK et al. RNASeq analysis of Aedes albopictus mosquito midguts after chikungunya virus infection. Viruses. 2019;11(6):513.
- Bustin SA et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634-651.
- Skowronek P, Wójcik Ł, Strachecka A. Fat body-multifunctional insect tissue. Insects. 2021;12(6):547.
- Goldman OV et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti mosquito. Cell. 2025;188(25):7267-90.e26.
Herprints en machtigingen
