We ontwikkelen een primair ratastrocytmodel dat een fysiologisch relevant systeem biedt voor het bestuderen van de ziekte van Alexander (AxD), waardoor onderzoek naar GFAP-aggregatie, pathologische modificatie en astrocytdysfunctie mogelijk wordt. Dit systeem slaat een brug tussen in vitro en in vivo studies en biedt een robuust platform om de AxD-pathologie te onderzoeken en therapeutische doelwitten voor neurodegeneratieve ziekten te identificeren.
Methodenartikel
Cellulaire modellen voor het bestuderen van de ziekte van Alexander: functionele analyse van primaire astrocyten van ratten
In dit artikel
Samenvatting
Samenvatting
Astrocyten spelen een essentiële rol bij het handhaven van de homeostase van het centrale zenuwstelsel, het ondersteunen van de neuronale functie en het reageren op letsel of ziekte. Disfunctie in de astrocytenactiviteit wordt in toenemende mate erkend als een belangrijke bijdrage aan neurodegeneratieve aandoeningen, waaronder de ziekte van Alexander (AxD), een zeldzame en fatale aandoening veroorzaakt door mutaties in het gliale fibrillaire zure eiwit (GFAP). Deze mutaties leiden tot GFAP-aggregatie, de vorming van Rosenthal-vezels en progressieve astrocyten-dysfunctie. Hoewel in vivo diermodellen een complexe cellulaire omgeving bieden, kampen zowel de huidige in vitro als in vivo modellen met beperkingen bij het nauwkeurig repliceren van de complexe cellulaire context en functies van astrocyten. Om dit aan te pakken, hebben we een cellulair model ontwikkeld met primaire rattenastrocyten afgeleid van wild-type (WT) en AxD-modelratten om de functionele effecten van GFAP-mutaties te bestuderen. Dit fysiologisch relevante systeem maakt gedetailleerd onderzoek mogelijk naar astrocyten-specifieke mechanismen, waaronder GFAP-aggregatie, reacties op oxidatieve stress en pathologische modificaties. Voor onderzoekers zonder toegang tot AxD-modelratten biedt lentivirale transductie een alternatieve methode om AxD-geassocieerde GFAP-mutaties te introduceren in astrocyten afgeleid van normale ratten, waardoor de toepasbaarheid van deze aanpak wordt vergroot. In vergelijking met geïmmortaliseerde astrocyten-cellijnen of in vitro studies met recombinant eiwit, behouden primaire astrocyten de natuurlijke cellulaire architectuur en moleculaire profielen beter, wat een robuust platform biedt voor het bestuderen van GFAP-dynamiek, oplosbaarheid en astrocytaire reacties op stressoren zoals oxidatieve schade en pathologische modificaties. Dit cellulaire model slaat de brug tussen moleculaire en systemische studies en biedt een gecontroleerd experimenteel kader om astrocyten-dysfunctie bij AxD te onderzoeken. Door bestaande methodologieën aan te vullen, verbeteren primaire astrocytenkweken ons begrip van de AxD-pathologie en vormen ze een waardevol instrument voor het identificeren van potentiële therapeutische targets voor neurodegeneratieve ziekten.
Inleiding
Astrocyten zijn gespecialiseerde gliacellen die zich door het gehele centrale zenuwstelsel (CZS) uitstrekken en een cruciale rol spelen bij het handhaven van de homeostase in de hersenen, het reguleren van de neuronale activiteit en het reageren op letsel of ziekte1. Hun functies omvatten de klaring en recycling van neurotransmitters, de extracellulaire ionen- en waterhomeostase en ondersteuning van de functie van neurale circuits. Door astrocyten uitgescheiden moleculen zijn essentieel voor de ontwikkeling van synapsen en synaptische plasticiteit in de volwassen hersenen2. Als reactie op letsel of ziekte in het CZS ondergaan astrocyten reactieve veranderingen die pro- of anti-inflammatoire signalering kunnen mediëren, wat neuroprotectieve functies mogelijk maakt, maar afhankelijk van de context potentieel kan bijdragen aan CZS-pathologieën3. Dysregulatie van de astrocytenfunctie wordt in toenemende mate erkend als een sleutelfactor bij de gezondheid en ziekte van het CZS4,5.
Gliaal fibrillair zuur eiwit (GFAP), een type III intermediair filament (IF) proteïne, is een belangrijk cytoskeletcomponent van astrocyten en wordt tot expressie gebracht door de meeste, maar niet alle astrocyten. GFAP wordt opgereguleerd als reactie op letsel aan het centraal zenuwstelsel (CZS) en dient als marker voor de ernst van weefselschade6. Hoewel GFAP traditioneel wordt geassocieerd met structurele rollen7, blijven de functionele implicaties hiervan onderbelicht. Mutaties in GFAP veroorzaken de ziekte van Alexander (AxD)8, een zeldzame neurodegeneratieve aandoening die wordt gekenmerkt door GFAP-aggregatie, de vorming van Rosenthal-fibers en progressieve astrocytenfunctiestoornissen. Hoewel in vitro biochemische studies9,10,11 en in vivo diermodellen12,13 inzicht hebben gegeven in de pathologie van AxD, slagen zij er niet in om de complexe cellulaire context van de astrocytenfunctie vast te leggen14.
Om deze beperkingen te overwinnen, hebben we een cellulair model ontwikkeld met primaire ratastrocyten afgeleid van wild-type (WT) en AxD-modelratten13. Dit systeem behoudt de oorspronkelijke cellulaire architectuur en moleculaire profielen van astrocyten, waardoor de studie van GFAP-aggregatie, oxidatieve stressreacties en pathologische modificaties geassocieerd met AxD mogelijk wordt. Voor onderzoekers zonder toegang tot AxD-modelratten biedt lentivirale transductie een alternatieve methode om AxD-geassocieerde GFAP-mutaties te introduceren in astrocyten afgeleid van normale ratten10.
In vergelijking met geïmmortaliseerde cellijnen behouden primaire astrocyten de heterogeniteit en complexiteit van astrocytenpopulaties in vivo, waardoor ze een fysiologisch relevant platform bieden voor het onderzoeken van astrocytspecifieke mechanismen15. In tegenstelling tot in vitro studies met recombinant eiwit9, brengen primaire astrocyten van nature GFAP en andere astrocytspecifieke markers tot expressie, wat de studie van ziekte-geassocieerde varianten binnen een natuurlijke cellulaire omgeving mogelijk maakt10,16,17. Bovendien faciliteren primaire astrocyten onderzoek naar functionele reacties op stressstimuli, zoals oxidatieve schade18 en ontsteking19, die moeilijk te reproduceren zijn in vereenvoudigde in vitro systemen.
In AxD-onderzoek vullen primaire astrocyten biochemische en in vivo benaderingen aan door de kloof tussen moleculaire en systemische studies te overbruggen. Hoewel biochemische assays zich richten op de moleculaire eigenschappen van GFAP-mutaties, ontbreekt het hen aan cellulaire complexiteit, terwijl in vivo modellen systemische effecten vastleggen maar minder geschikt zijn voor mechanistische cellulaire studies. Primaire astrocyten bieden een intermediair systeem met cellulaire complexiteit en experimentele controle, wat aansluit bij huidige trends in onderzoek naar neurodegeneratieve ziekten die de nadruk leggen op cellulaire modellen om ziekte 않은mechanismen te begrijpen en therapeutische doelwitten te identificeren20.
Dit manuscript presenteert de ontwikkeling en toepassing van primaire ratastrocyten als cellulair model voor AxD-onderzoek. Door een directe vergelijking tussen WT- en AxD-astrocyten mogelijk te maken, pakt deze aanpak belangrijke beperkingen van alternatieve technieken aan en vergroot het de toegankelijkheid via lentivirale transductie. Deze bevindingen dragen bij aan een dieper begrip van astrocytdysfunctie bij AxD en bieden een waardevolle tool voor het bevorderen van therapeutische ontdekkingen bij neurodegeneratieve ziekten.
Protocol
De dieren die in dit protocol zijn gebruikt, werden goedgekeurd door de Institutional Animal Care and Use Committee van het College of Life Sciences and Medicine aan de National Tsing Hua University (NTHU IACUC goedkeuringsnr. 109088 en 111060) en in overeenstemming met de richtlijnen van de Agriculture Guidebook for the Care and Use of Laboratory Animals.
1. Voorbereiding van media, dekglasjes, schaaltjes en platen
- Zorg ervoor dat de volgende oplossingen (Tabel 1) zijn voorbereid en klaar voor gebruik voordat u begint.
- Steriliseer scharen en pincetten door middel van autoclaveren voor gebruik om steriliteit te garanderen.
- Bereid een poly-L-lysine (PLL)-oplossing voor met een concentratie van 0,02 mg/mL in boorzuurbuffer.
- Voeg voldoende PLL-oplossing toe om het oppervlak van het dekglas of de bodem van de kweekschaal/plaat volledig te bedekken. Zorg dat de coating gelijkmatig is.
- Laat de met PLL gecoate dekglazen en schalen een nacht incuberen bij kamertemperatuur in een laminaire flowkast.
- Verwijder de volgende dag voorzichtig de PLL-oplossing. Spoel de gecoate dekglazen of schaal/plaat drie keer met vers steriel water om alle resterende PLL te verwijderen.
OPMERKING: Het is essentieel om de met PLL gecoate kolf/plaat of de dekglazen grondig te spoelen om resterende PLL te verwijderen, aangezien dit de levensvatbaarheid van de cellen negatief kan beïnvloeden.
2. Voorbereiding van de primaire astrocytenkweek
OPMERKING: Een schematisch overzicht wordt getoond in Figuur 1.
- Decapiteer de ratpup van postnatal dag 1–3 na het induceren van hypothermie door de pups op ijs te plaatsen en scheid de kop van het lichaam.
- Plaats de kop in een schaal van 60 mm en zet de zijkanten vast met een pincet. Disseceer voorzichtig de huid op de bovenkant van de kop met een fijne schaar.
- Maak met een fijne schaar een incisie bij de vertex van de kop om de schedel voorzichtig te openen. Scheid en verwijder voorzichtig de twee helften van de schedel.
- Knijp de hersenen met een pincet los van de basis en breng ze over naar een schaal van 60 mm met dissectiemedium.
- Plaats elke hemisfeer met het mediale oppervlak naar boven om de midline-structuren bloot te leggen.
- Verwijder onder een dissectiemicroscoop voorzichtig de weefsels van de middenhersenen en de hersenstam, zodat de hemisferen met de cortex en hippocampus intact blijven.
- Pel de meninges voorzichtig af met een fijn pincet, bij voorkeur als één geheel. Controleer zorgvuldig of er nog meninges in fissuren verborgen zijn en verwijder deze volledig.
- Verplaats het gedisseceerde hersenweefsel naar een laminaire flowkast. Aspireer het dissectiemedium met een 1 mL pipette en voeg vers dissectiemedium toe.
- Hak het weefsel fijn met een steriel scalpelmesje.
- Breng het fijngehakte weefsel over naar 5 mL dissociatiemedium in een 15 mL buis. Incubeer de buis 15 min in een waterbad van 37ºC en schud de buis elke 5 min voorzichtig om een goede interactie tussen enzym en weefsel te waarborgen.
- Laat het weefsel na incubatie bezinken op de bodem van de buis. Aspireer het supernatant en voeg 5 mL dissectiemedium toe.
- Keer de buis 5 keer om om het weefsel te wassen. Laat de buis 3 min staan zodat het weefsel kan bezinken en herhaal het wasproces vervolgens drie keer met vers dissectiemedium.
- Verwijder na de laatste wasbeurt het supernatant en voeg 2,5 mL dissectiemedium en 2,5 mL onderhoudsmedium toe.
- Tritureer het weefsel door de oplossing 10–15 keer op en neer te pipetteren met een 10-mL pipette.
- Laat de buis 3 min staan zodat het weefsel kan bezinken. Breng het supernatant (bevattend de cellen) over naar een nieuwe conische buis van 50 mL.
- Voeg 5 mL MEM-medium toe aan de oorspronkelijke buis met het bezonken weefsel. Tritureer nogmaals 10–15 keer met een 10-mL pipette totdat de meeste klontjes verdwenen zijn.
- Filter de celsuspensie door een steriele cellenze van 40 µm in een schone conische buis van 50 mL met 5 mL onderhoudsmedium.
- Centrifugeer de gefilterde celsuspensie 5 min bij 200 × g bij kamertemperatuur.
- Verwijder het supernatant en maak de celpellet vervolgens voorzichtig los door tegen de buis te tikken.
- Voeg 5 mL MEM-medium toe en pipetteer 10 keer op en neer om de pellet te resuspenderen. Houd de celsuspensie in een waterbad van 37ºC tijdens het tellen van de cellen.
- Verdun 10 μL van de celsuspensie met 90 µL MEM-medium. Meng dit goed met een 200 µL pipetpunt.
- Voeg 20 μL van de verdunde celsuspensie toe aan 20 µL trypaanblauw. Tel de cellen met een hemocytometer.
- Zaai de cellen als volgt uit in kweekvaten: voor een 24-wells plaat 2 × 10⁵ cellen per well; voor een 6-wells plaat 5 × 10⁵ cellen per well; voor een schaal van 6 cm 1 × 10⁶ cellen per schaal.
- Plaats de platen of schalen in een weefselkweekincubator. Vermijd dat de cellen gedurende langere perioden bij kamertemperatuur blijven.
- Inspecteer de cellen 4 u na het uitzaaien onder een microscoop om te controleren of ze aan het substraat zijn gehecht.
- Vervang 24 u na het uitzaaien het kweekmedium door vers onderhoudsmedium.
- Voed de cultuur elke 2–3 dagen door de helft van het medium te vervangen door vers onderhoudsmedium.
- Na 7 dagen moeten de cellen een confluentie van ongeveer 80% hebben bereikt en zijn ze klaar voor experimenten.
OPMERKING: Om optimale condities voor astrocytenkweken te waarborgen, moeten alle stappen in een steriele omgeving worden uitgevoerd, bij voorkeur in een laminaire flowkast, om contaminatie te voorkomen. Zorg er daarnaast voor dat alle reagentia, waar van toepassing, zijn voorverwarmd tot 37°C. Wees nauwkeurig bij het verwijderen van de meninges, aangezien elk overgebleven meningeaal weefsel de kweken kan beïnvloeden. Vermijd bovendien dat de cellen tijdens het uitzaaien en tellen gedurende langere perioden bij kamertemperatuur blijven om de levensvatbaarheid en integriteit van de cellen te behouden.
3. Productie van lentivirale particles en transductie
OPMERKING: Een schematisch overzicht wordt getoond in Figuur 2.
- Zaai HEK293T-cellen uit in een petrischaal van 10 cm2 met vers kweekmedium (Tabel 1).
- Kweek de cellen overnacht in een incubator bij 37ºC tot een confluentie van 50%–60% is bereikt.
- Voeg aan 1 mL Opti-MEM 20 µg lentiviraal plasmide dat GFAP of varianten daarvan codeert, 5,6 µg packaging-vector en 1,8 µg envelope-vector toe.
- Voeg 45 µL transfectiereagens toe aan de DNA-houdende oplossing.
- Meng voorzichtig en incubeer 15 min bij kamertemperatuur.
- Voeg de transfectie-oplossing direct toe aan de HEK293T-cellen en incubeer 4 u in een celkweekincubator bij 37°C.
- Aspireer de transfectie-oplossing en vervang deze door vers kweekmedium.
- Kweek de cellen nog 2 dagen verder.
- Verzamel het supernatant van de celkweek en vervang dit door vers kweekmedium.
- Verzamel de volgende dag het supernatant van de celkweek opnieuw en vervang dit door vers kweekmedium.
- Verzamel de volgende dag het laatste supernatant van de celkweek.
- Combineer de supernatanten uit stappen 3.9–3.11 in een conische buis van 50 mL.
- Filtreer het gecombineerde supernatant door een 0,45 µm filter met een spuit van 60 mL om debris te verwijderen.
- Centrifugeer het gefiltreerde supernatant 5 min bij 1.400 × g bij kamertemperatuur om dode cellen te verwijderen.
- Breng het geklaarde supernatant over in ultracentrifugebuizen.
- Centrifugeer 70 min bij 100.000 × g bij 4°C om de lentivirale deeltjes te pelletteren.
- Verwijder voorzichtig het supernatant zonder de pellet onderin de buis te verstoren.
- Resuspendeer de pellet in 600 µL Opti-MEM-medium door voorzichtig met een pipet op en neer te zuigen.
- Verdeel de geresuspendeerde lentivirale deeltjes in aliquoten van 50 μL en bewaar deze bij -80°C tot gebruik.
- Zaai primaire astrocyten uit in een 6-wells plaat en laat ze een confluentie van 50%–70% bereiken (Sectie 2).
- Ontdooi de benodigde hoeveelheden lentivirale deeltjes op ijs.
- Voeg 50 µL lentivirale deeltjes toe aan elke well, aangevuld met 8 µg/mL Polybrene.
- Schud de plaat voorzichtig rond om een gelijkmatige distributie van het virus en Polybrene te garanderen. Incubeer de cellen 4–8 u in een celkweekincubator bij 37ºC.
- Aspireer het virus-houdende medium voorzichtig om te voorkomen dat de cellen worden verstoord.
- Vervang het medium door vers kweekmedium en kweek de cellen nog 2–3 dagen verder.
- Voer downstream-analyses uit op de getransduceerde cellen met behulp van immunofluorescentiemicroscopie om de vorming van het netwerk van intermediaire filamenten te visualiseren, of immunoblotting om de GFAP-expressie te bepalen.
OPMERKING: Bij het werken met lentivirale deeltjes is het essentieel om geschikte persoonlijke beschermingsmiddelen (PBM) te gebruiken om de veiligheid te waarborgen. Vermijd daarnaast herhaalde vries-dooi-cycli om de integriteit van de virale deeltjes te behouden.
4. Immunofluorescentiemicroscopie
- Aspire voorzichtig het kweekmedium uit de wells die dekglasjes bevatten met geplaatste cellen. Vermijd het verstoren van de cellen.
- Fixeer de cellen door een van de volgende fixeeroplossingen toe te voegen: gebruik voor primaire astrocyten 3,2% (wt/vol) paraformaldehyde; gebruik voor astrocyten-neuronenkweken 3,2% (wt/vol) paraformaldehyde en 4% (wt/vol) sucrose.
- Incubeer de dekglasjes 15 min in het fixeer middel bij kamertemperatuur. Tenzij anders vermeld, worden alle volgende stappen bij kamertemperatuur uitgevoerd.
- Spoel de gefixeerde cellen drie keer af met fosfaatgebufferde zoutoplossing (PBS) om het fixeer middel te verwijderen.
- Permeabiliseer de cellen door ze 15 min te incuberen in 0,2% (vol/vol) Triton X-100 bereid in blokkeringsbuffer (5% (vol/vol) normaal geiten serum in PBS).
- Spoel de permeabiliseerde cellen drie keer af met PBS.
- Bereid de primaire antilichaamoplossing door het antilichaam te verdunnen in blokkeringsbuffer volgens de door de fabrikant aanbevolen concentratie.
- Incubeer de dekglasjes gedurende ten minste 1 h bij kamertemperatuur in de primaire antilichaamoplossing.
- Spoel de dekglasjes drie keer af met PBS om ongebonden primair antilichaam te verwijderen.
- Bereid de secundaire antilichaamoplossing door geiten anti-muis en geiten anti-konijn secundaire antilichamen geconjugeerd aan fluoroforen in blokkeringsbuffer te verdunnen in een verdunning van 1:500.
- Incubeer de dekglasjes 1 h bij kamertemperatuur in de secundaire antilichaamoplossing.
- Spoel de dekglasjes drie keer af met PBS om ongebonden secundair antilichaam te verwijderen.
- Breng de dekglasjes voorzichtig met een pincet over op objectglazen.
- Monteer de dekglasjes met een monteermedium om de fluorescentie te behouden.
- Verzegel voorzichtig de randen van het dekglasje met transparante nagellak om verschuiving en verdamping te voorkomen.
- Laat de nagellak volledig drogen voordat u overgaat tot beeldvorming.
- De bereide preparaten zijn klaar voor beeldvorming met een immunofluorescentie- of confocale microscoop.
OPMERKING: Om het succes van de experimenten te garanderen, moeten alle reagentia, zoals PBS, blokkeringsbuffer en antilichamen, vers worden bereid en moet de steriliteit worden bewaard. Behandel de dekglasjes zorgvuldig om beschadiging van de cellen of krassen op het glasoppervlak te voorkomen. Bescherm de monsters tegen licht tijdens de incubatie van antilichamen en na de montage om fotobleaching van fluorescentiesignalen te voorkomen. Optimaliseer daarnaast de antilichaamconcentraties en incubatietijden volgens de specifieke experimentele opzet.
5. Immunoblotting
- Spoel de astrocyten twee keer met PBS om resterend medium en debris te verwijderen.
- Plaats de plaat of schaal op ijs om proteïnedegradatie te minimaliseren. Aspireer de PBS volledig, waarbij één well per keer wordt behandeld.
- Voeg ijskoud radioimmunoprecipitatie-assay (RIPA) buffer toe die protease- en fosfataseremmers bevat. Voeg voor een 6-wells plaat 250 µL per well toe; voor een schaal van 6 cm 500 µL per schaal.
- Gebruik een celschraper om alle astrocyten grondig in de RIPA buffer te schrapen (50 mM Tris, pH 8.0, 150 mM NaCl, 1% (wt/vol) NP-40, 5 mM ethylenediaminetetraacetic acid (EDTA), 0,5% (wt/vol) natriumdeoxycholaat en 0,1% (wt/vol) SDS, 1 mM phenylmethylsulfonylfluoride [PMSF]).
- Breng de geschrapte cellen over naar een 1-mL Dounce homogenisator die op ijs is geplaatst. Homogeniseer de cellen door ze voorzichtig met de stamper te vermalen.
- Incubeer de gehomogeniseerde cellysaten 10 min op ijs om volledige lyse te garanderen. Bewaar 20 µL van de totale lysaten om de proteïneconcentratie te bepalen via een bicinchoninezuur (BCA) assay.
- Centrifugeer de cellysaten bij 13.500 × g bij 4ºC gedurende 10 min om onoplosbare proteïnen te pelletteren.
- Breng het supernatant voorzichtig over naar een schone buis. Bewaar 20 µL supernatant om de proteïneconcentratie via de BCA assay te bepalen.
- Concentreer het supernatant door middel van methanol/chloroform-precipitatie.
- Resuspendeer het resulterende precipitaat in 0,1 mL Laemmli monsterbuffer (25 mM Tris-HCl (pH 6.8), 1% (w/v) SDS, 12,5% (v/v) glycerol, 0,01% (w/v) bromfenolblauw, 355 mM β-mercaptoethanol).
- Resuspendeer de pellet in Laemmli monsterbuffer en dispergeer deze door sonicatie.
- Voer drie cycli sonicatie uit met pulsen van 0,5 s bij 10% vermogen. Houd de tip van de probe naar de bodem van de buis gericht om schuimvorming te voorkomen.
- Voer een bicinchoninezuur (BCA) proteïne-assay uit op zowel het RIPA-supernatant als de totale cellysaten.
- Laad de proteínemonsters op een 12% of 15% natriumdodecylsulfaat polyacrylamidegelelektroforese (SDS-PAGE) gel. Run de gel bij een constant voltage van 200 V gedurende 45 min.
- Transfer de proteïnen van de gel naar een nitrocellulosemembraan met gebruik van een wet transfer systeem. Volg de instructies van de fabrikant en transfer bij 100 V gedurende 70 min.
- Plaats het membraan in 5% (wt/vol) runderseerumeiwit (BSA) opgelost in Tris-gebufferde zoutoplossing met 0,1% (wt/vol) Tween-20 (TBST). Block gedurende ten minste 1 u bij kamertemperatuur onder voorzichtig schudden.
- Verdun de primaire antilichamen in TBST volgens de instructies van de fabrikant. Incubeer het membraan in de primaire antilichaamoplossing overnight bij 4ºC onder voorzichtig schudden.
- Spoel het membraan drie keer met TBST, waarbij elke wasbeurt 5 min duurt.
- Verdun fluorofoor- of mierikswortelperoxidase (HRP)-geconjugeerde secundaire antilichamen in TBST in een verdunning van 1:500 (of zoals gespecificeerd door de fabrikant).
- Incubeer het membraan in de secundaire antilichaamoplossing gedurende 1 u bij kamertemperatuur onder voorzichtig schudden.
- Spoel het membraan drie keer met TBST, waarbij elke wasbeurt 5 min duurt.
- Ontwikkel het membraan met fluorescentie of verbeterde chemiluminescentie (ECL) volgens de instructies van de fabrikant.
- Visualiseer de proteïnebanden met een imaging-systeem.
OPMERKING: Om proteïnedegradatie te voorkomen, moeten alle stappen op ijs of bij 4ºC worden uitgevoerd, behalve de antilichaamincubatie en de blocking-stappen. Zorg ervoor dat alle buffers, reagentia en apparatuur vooraf zijn gekoeld om lage temperaturen tijdens het gehele proces te behouden. Voorkom overbelading van de gel om vegen (smearing) te vermijden, en optimaliseer de antilichaamconcentraties en incubatietijden passend bij het specifieke experiment.
6. Preparatie van primaire neuronen voor cocultuur
- Euthanaseer de drachtige rat met koolstofdioxide als inhalatieanesthesie. Dissekeer de uterus en plaats deze in een steriele Petrischaal.
- Verwijder de hersenen uit de foetussen en plaats deze in een schaal van 6 cm met dissectie-oplossing. Zorg ervoor dat het weefsel te allen tijde ondergedompeld blijft in de oplossing om uitdroging te voorkomen.
- Dissekeer de cortices en verwijder de meninges zoals beschreven (stap 2.7).
- Verplaats het gedissecteerde weefsel naar een laminaire flowkast.
- Aspireer de dissectie-oplossing met een 1 mL pipette en voeg verse dissectie-oplossing toe aan de schaal.
- Snijd het hersenweefsel in kleine stukjes met een steriel scalpelmesje.
- Overbreng het fijngehakte weefsel naar 5 mL neuronale dissociatiemedium (Tabel 1), voorverwarmd tot 37 ºC in een 15 mL buis.
- Incubeer de buis bij 37°C ºC waterbad gedurende 30 min, waarbij de buis elke 5 min voorzichtig wordt geschud om een goede interactie tussen enzym en weefsel te waarborgen.
- Haal de buis uit het waterbad en laat het weefsel naar de bodem van de buis zakken. Aspireer voorzichtig het supernatant met een 1 mL pipetpunt zonder het weefsel te verstoren.
- Voeg 5 mL voorverwarmde dissectieoplossing toe aan de buis en keer deze 5 keer om om het weefsel te spoelen. Laat de buis 3 min staan zodat het weefsel kan bezinken en herhaal het wasproces vervolgens drie keer, waarbij elke keer verse dissectieoplossing wordt gebruikt.
- Verwijder na de laatste wasbeurt het supernatant en voeg 2,5 mL dissectie-oplossing en 2,5 mL platingmedium toe.
- Tritureer het weefsel door de oplossing 10–15 keer op en neer te pipetteren met een 10-ml pipette.
- Laat de buis 3 minuten staan zodat het weefsel kan bezinken. Breng het supernatant (bevattende cellen) over naar een nieuwe conische buis van 50 mL.
- Voeg 5 mL platingmedium toe aan de oorspronkelijke buis met het bezonken weefsel.
- Tritureer het weefsel opnieuw 10–15 keer met een 10-ml pipet totdat de meeste klompen zijn verdwenen.
- Filter de celсусpensie door een steriele 40 µm celzeef in een schone 50 mL conische buis met 5 mL kweekmedium.
- Centrifugeer de gefilterde celsuspensie bij 200 × gedurende 5 min bij kamertemperatuur.
- Verwijder het supernatant en maak het celpellet vervolgens voorzichtig los door op de buis te tikken. Voeg 5 mL voorverwarmd plaatmedium toe en pipetteer dit 10 keer op en neer om het pellet te resuspenderen.
- Tel de cellen zoals eerder beschreven (stappen 2.21 en 2.22). Bewaar de celsuspensie in een 37°C waterbad tijdens het tellen van cellen.
- Zaai de neuronen als volgt direct bovenop de primaire astrocyten in de kweekvaten: voor een 24-wells plaat, zaai 1,45 × 10⁵ cellen per putje; zaai voor een 6-wells plaat 5 × 10⁵ cellen per well; zaai voor een schaal van 6 cm 1 × 10⁶ cellen per putje.
- Plaats de platen of schalen in een weefselkweekincubator die is ingesteld op 37°C.ºC met 5% CO₂Vermijd het langdurig laten staan van de cellen bij kamertemperatuur om de levensvatbaarheid te behouden.
- Vervang het uitzaaimedium 4 uur na het uitzaaien door neuronaal onderhoudsmedium.
- Vervang elke 3–4 dagen de helft van het medium door vers onderhoudsmedium voor neuronen.
OPMERKING: De gecocultureerde neuronen zullen klaar zijn voor experimenten op 7–10 dagen in vitro (DIV).
Resultaten
Een morfologisch overzicht van primaire astrocytenkweken op verschillende tijdstippen na isolatie wordt gepresenteerd in Figuur 3. Na het uitplaten van de corticale celsuspensie hechten sommige astrocyten binnen de eerste 24 u aan het oppervlak van de kweekschaal (Figuur 3A). Gedurende de eerste 3 tot 5 dagen bevatten de kweken celresten en stervende neuronen (Figuur 3B), aangezien het kweekmedium is geoptimaliseerd om het overleven en de groei van astrocyten te ondersteunen. Tegen 7 dagen na het uitplaten begint er een monolaag van astrocyten te vormen, wat wijst op een succesvolle vestiging van de kweek (Figuur 3C). Gedissocieerde neuronen die in kweek worden gehouden, doorlopen verschillende stadia van differentiatie en ontwikkelen uiteindelijk goed gedefinieerde neurieten (Figuur 3D–F). Deze neuronen kunnen als monolagen op glazen dekglasjes worden gekweekt of bovenop primaire astrocyten worden geplaatst voor co-kweekexperimenten, wat een veelzijdig platform biedt voor het bestuderen van interacties tussen astrocyten en neuronen.
Met gebruik van primaire astrocyten uit normale ratten, geprepareerd volgens dit protocol, hebben we de effecten van AxD-geassocieerde GFAP-mutaties op de vorming van het IF-netwerk onderzocht. Om deze studie te faciliteren, werden WT GFAP (Figuur 4A) en diverse vormen van mutant GFAP, waaronder E373K (Figuur 4B), R376W (Figuur 4C), D395Y (Figuur 4D), D417A (Figuur 4E) en Q426L (Figuur 4F) GFAP, gegenereerd via site-directed mutagenese met WT GFAP in de pLEX-MCS lentivirale vector als template (Aanvullend Bestand 1 en Aanvullende Figuur 1). Vervolgens werden de GFAP-expressieconstructen in primaire astrocyten getransduceerd via lentivirale infectie. Dit infectieproces omvatte het incuberen van de cellen met lentivirussen bij een multiplicity of infection (MOI) van 10, in aanwezigheid van 8 μg/mL polybrene. Onder deze condities toonde immunofluorescentiemicroscopie aan dat ongeveer 70%–80% van de astrocyten succesvol was geïnfecteerd. De distributie van getransduceerd GFAP in relatie tot endogeen rat-GFAP werd geanalyseerd met behulp van dubbele-label immunofluorescentiemicroscopie. Er werd een anti-humaan GFAP monoklonaal antilichaam gebruikt om getransduceerd humaan GFAP te detecteren (Figuur 4A–F, groen kanaal), terwijl een polyklonaal anti-panGFAP antilichaam, dat zowel rat-GFAP als getransduceerd humaan GFAP herkent, werd gebruikt om de algemene GFAP-distributie te visualiseren (Figuur 4A–F, rood kanaal). In astrocyten die WT GFAP tot expressie brachten, waren filamenteuze netwerken verdeeld over het cytoplasma (Figuur 4A). In contrast hiermee vormden GFAP-mutanten (Figuur 4B–F, groen kanaal) voornamelijk cytoplasmatische aggregaten, die vaak de endogene IF-netwerken verstoorden en deden inklappen (Figuur 4B–F, rood kanaal). De relatieve expressieniveaus van WT en mutant GFAP werden bepaald door immunoblotting van de totale cellysaten (Figuur 4G). Transductie van zowel WT (Figuur 4G, baan 2) als mutant (Figuur 4G, banen 3–7) GFAP genereerde eiwitten van de verwachte grootte bij vergelijkbare niveaus. Om te beoordelen of de cytoplasmatische aggregaten gevormd door mutant GFAP veranderde oplosbaarheidseigenschappen vertoonden in vergelijking met het WT-eiwit, werden getransduceerde astrocyten geëxtraheerd met behulp van radioimmunoprecipitatie assay (RIPA) buffer16. Immunoblot-analyse van de supernatant- (Figuur 4H) en pellet-frakties (Figuur 4I) onthulde duidelijke verschillen in oplosbaarheid. In cellen die WT GFAP tot expressie brachten, werd het grootste deel van het eiwit gemakkelijk geëxtraheerd in de supernatant (Figuur 4H, baan 2). In contrast hiermee vertoonden de mutante GFAP's een verhoogde resistentie tegen extractie, waarbij het grootste deel van het eiwit in de pellet-fractie bleef (Figuur 4I, banen 3–7). Deze bevindingen suggereren dat AxD-geassocieerde GFAP-mutaties de vorming van onoplosbare aggregaten bevorderen, waardoor de oplosbaarheidseigenschappen van GFAP in primaire astrocyten veranderen.
Om te begrijpen hoe de R237H GFAP-mutatie en overexpressie de filamentorganisatie en de vorming van het IF-netwerk beïnvloeden, hebben we het vermogen tot netwerkvorming van GFAP geanalyseerd in primaire astrocyten afgeleid van respectievelijk WT-ratten of AxD-modelratten13 met een homozygote R237H knock-in mutatie. Immunofluorescentie confocale microscopie onthulde dat GFAP in WT-astrocyten goed georganiseerde filamentnetwerken vormde die over het cytoplasma waren verdeeld en colokaliseerden met vimentine IF's (Figuur 5A). In contrast hiermee bevatten ongeveer 70% van de GFAP-positieve cellen prominente cytoplasmatische aggregaten in homozygote mutante astrocyten (Figuur 5B). Deze aggregaten verstoorden regelmatig de vimentine IF-netwerken, waardoor deze inklapten tot grote perinucleaire aggregaten. De kwantificatie van GFAP-positieve cellen die aggregaten bevatten, wordt getoond in Figuur 5C. Om de GFAP-expressie op eiwitniveau te beoordelen, werden totale cellysaten geprepareerd van WT- en homozygote mutante astrocyten. Immunoblotting met een anti-panGFAP-antilichaam onthulde een bescheiden toename van het totale GFAP in homozygote mutante astrocyten (Figuur 5D, baan 2), met een toename van 1,3-voudig (Figuur 5E) vergeleken met WT-astrocyten (Figuur 5D, baan 1). Om te bepalen of overexpressie van mutant GFAP het dynamisch evenwicht tussen oplosbare en onoplosbare pools verandert, werden supernatant- en pelletfracties gescheiden en geanalyseerd via immunoblotting (Figuur 5F). De kwantificatie van de GFAP-distributie tussen de supernatant- en pelletfracties wordt getoond in Figuur 5G. In WT-astrocyten (Figuur 5F, banen 1 en 2) was GFAP ruwweg gelijk verdeeld tussen de supernatant- en pelletfracties. Echter, homozygote mutante astrocyten vertoonden een toename van GFAP-niveaus in de pelletfractie (Figuur 5F, baan 4), wat wijst op een versterkte sequestratie van GFAP in cytoplasmatische aggregaten. Opvallend was dat de accumulatie van GFAP-aggregaten in homozygote mutante astrocyten ook correleerde met de detectie van geubiquitineerde GFAP-soorten in de pelletfractie (Figuur 5F, baan 4), wat de aanwezigheid van pathologisch gemodificeerd GFAP in cytoplasmatische aggregaten in deze cellen verder ondersteunt.
Astrocyten spelen een cruciale rol bij het ondersteunen van de gezondheid en functie van neuronen. Om vast te stellen of de accumulatie van de R237H GFAP-mutant in astrocyten neuronen beïnvloedt via niet-celautonome mechanismen, hebben we gebruikgemaakt van astrocyten-neuronen-cocultures. Primaire neuronen van ratten op embryonale dag 18 (E18) werden gezaaid op primaire astrocyten die 10–12 DIV waren gekweekt en kregen nog 10 dagen de tijd om te rijpen. De cocultures werden vervolgens gefixeerd en immunogekleurd met antilichamen tegen βIII tubuline om de neuronale morfologie te evalueren. Neuronen (Figuur 6A) die in coculture waren met WT-astrocyten (Figuur 6B) vertoonden een significant langere neurietenuitgroei (Figuur 6C) vergeleken met neuronen (Figuur 6D) die in coculture waren met homozygote mutante astrocyten (Figuur 6E). Kwantitatieve analyse wees uit dat de neurietenlengtes van neuronen in coculture met homozygote mutante astrocyten met 76% waren afgenomen vergeleken met neuronen in coculture met WT-astrocyten (Figuur 6G). Deze bevindingen geven aan dat de accumulatie van mutant GFAP in astrocyten hun vermogen om een normale neuronale ontwikkeling en morfologie te ondersteunen ernstig belemmert. Deze verstoring kan bijdragen aan het neurodegeneratieve fenotype dat kenmerkend is voor AxD.
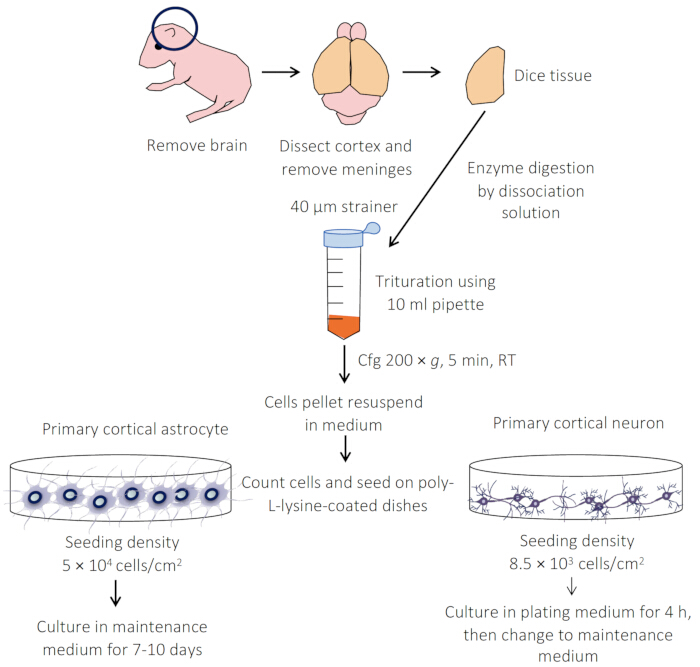
Figuur 1: Overzicht van de protocollen voor het prepareren van primaire culturen van astrocyten en neuronen. De cortices worden zorgvuldig gedisseceerd en de weefsels worden enzymatisch gedigesteerd met behulp van trypsine of papaïne. De gedissocieerde cellen worden vervolgens gezaaid op de geprepareerde dekglasjes, schaaltjes of platen. Zowel astrocyten als neuronen worden gekweekt in onderhoudmedium en kunnen tot 28 dagen in stand worden gehouden. Klik hier om een grotere versie van deze figuur te bekijken.
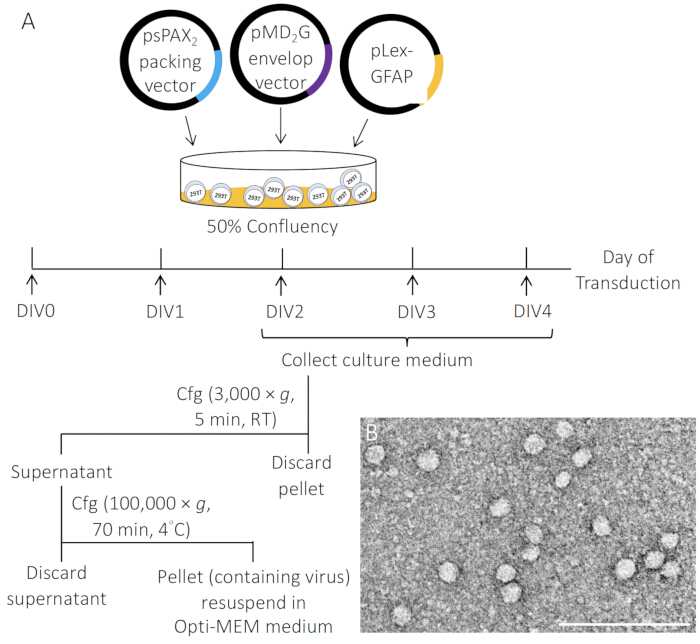
Figuur 2: Schematische weergave van de productie van lentivirale deeltjes. (A) Lentivirussen werden gegenereerd door transiënte cotransfectie van 293T-cellen met de pLEX-MCS–GFAP vector, psPAX2 packaging vector en pMD2.G envelope vector in een verhouding van 4:3:1, met gebruik van transfectiereagens. Cultuursupernatanten die lentivirale deeltjes bevatten, werden geoogst na 2–4 dagen in vitro (DIV), gefilterd door een 0,45-μm filter om debris te verwijderen en geconcentreerd via hogesnelheidscentrifugatie. (B) Elektronenmicroscoopbeeld van lentivirale deeltjes. Schaalbalk, 500 nm. Klik hier om een grotere versie van deze figuur te bekijken.
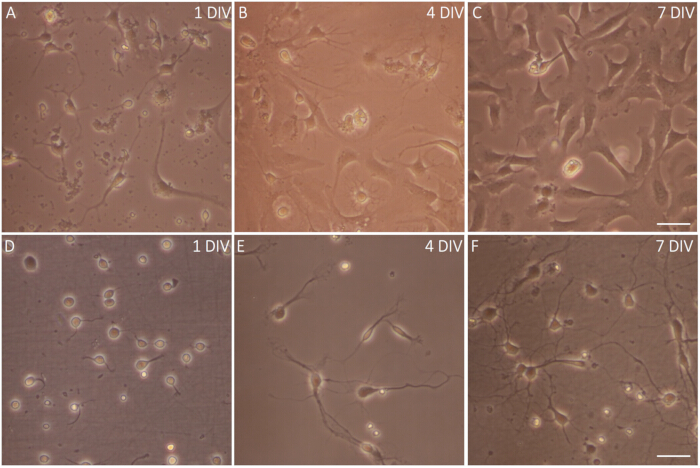
Figuur 3: Fasecontrastbeelden van primaire astrocyten en neuronen. (A–C) Morfologisch overzicht van primaire astrocytenkweken op verschillende tijdstippen na isolatie. (A) Eén dag na het uitplaten is een deel van de astrocyten gehecht aan de bodem van de kolf. (B) Vier dagen na het uitplaten begint er een astrocytenlaag te vormen. (C) Zeven dagen na het uitplaten heeft de astrocytenlaag bijna confluentie bereikt. Let op dat neuronen onder deze kweekcondities bijna volledig afwezig zijn. (D–F) Kort na het uitplaten (D) beginnen corticale neuronen een lamellaire structuur rond het cellichaam uit te breiden. (E) Gedurende de daaropvolgende dagen in kweek (F) vordert de neuronale differentiatie en ontwikkelen sommige neuronen vertakte uitlopers, wat duidt op de vorming van een complexer neuraal netwerk. Schaalbalk, 20 μm. Klik hier om een grotere versie van deze figuur te bekijken.
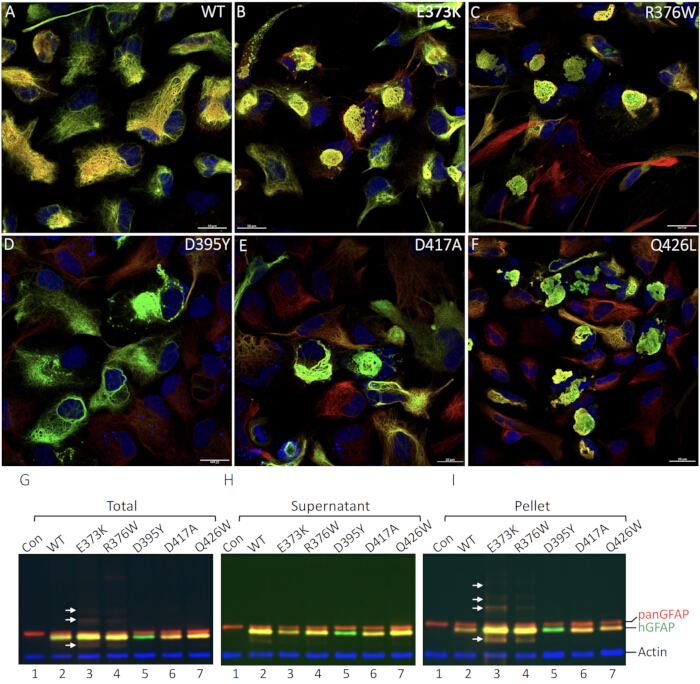
Figuur 4: Filamentorganisatie en oplosbaarheidseigenschappen van WT en mutant GFAP in primaire astrocyten. (A–F) Primaire ratastrocyten werden getransduceerd met ofwel WT (A), of AxD-geassocieerde mutanten, waaronder E373K (B), R376W (C), D395Y (D), D417A (E) en Q426L (F) GFAP. Cellen werden gefixeerd en immunostained met anti-humaan GFAP (groen kanaal) en anti-panGFAP (rood kanaal) antilichamen. Samengevoegde beelden worden getoond, waarbij kernen zijn gevisualiseerd door kleuring met DAPI (blauw kanaal). Terwijl WT GFAP hoofdzakelijk assembleerde tot filamenteuze netwerken (A), vormden de mutante GFAP-eiwitten cytoplasmatische aggregaten in de meeste getransduceerde cellen (B–F). Schaalbalk, 20 μm. (G–I) Analyse van expressieniveaus en oplosbaarheidseigenschappen van mutant GFAP. Primaire astrocyten bleven ofwel ongetransduceerd (G–I, baan 1) of werden getransduceerd met de aangegeven GFAP-constructen (G–I, banen 2–7). Op 72 h na transductie werden cellen gelyseerd in radioimmunoprecipitatie-assay (RIPA) buffer, en de resulterende totale lysaten (G), alsook de supernatant- (H) en pellet- (I) fracties werden geanalyseerd via immunoblotting met behulp van anti-humaan GFAP (groen kanaal) en anti-panGFAP (rood kanaal) antilichamen. Blots bewerkt met een anti-actine antilichaam (blauw kanaal) werden gebruikt als loading control. De posities van humaan GFAP (hGFAP), totaal GFAP (panGFAP) en actine zijn rechts aangegeven. Merk op dat astrocyten getransduceerd met de D395Y GFAP-mutatie geen kleuring vertoonden in het rode kanaal met het anti-panGFAP antilichaam, waarschijnlijk door de disruptie van het doelepitoop van het antilichaam veroorzaakt door de mutatie. Wanneer astrocyten werden getransduceerd met E373K GFAP, onthulde immunoblot-analyse additionele immunopositieve banden (pijlen) boven en onder de monomerische GFAP-band. De lagere banden zijn waarschijnlijk degradatieproducten, terwijl de bovenste banden overeenkomen met GFAP gemodificeerd door ubiquitination. Klik hier om een grotere versie van deze figuur te bekijken.
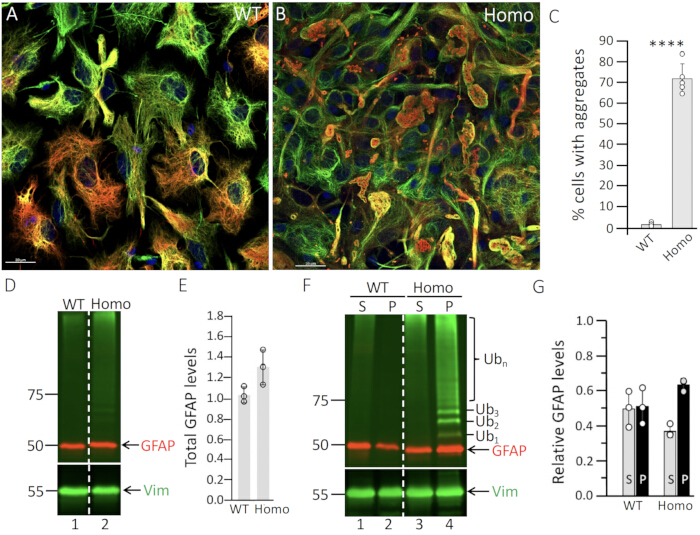
Figuur 5: GFAP-aggregatie in astrocyten afgeleid van homozygote mutante ratten. Primaire astrocyten afgeleid van respectievelijk (A) WT of (B) homozygote mutante ratten werden 14 DIV gekweekt en vervolgens verwerkt voor dubbelgelabelde immunofluorescentiemicroscopie met antilichamen tegen GFAP (rood kanaal) en vimentine (groen kanaal). Samengevoegde beelden worden getoond, waarbij kernen zijn gevisualiseerd door kleuring met DAPI (blauw kanaal). Schaalbalk, 20 μm. In WT-astrocyten (A) vormde GFAP filamenteuze IF-netwerken die colokaliseerden met vimentine. In tegenstelling hiermee bevatten de meeste homozygote mutante astrocyten GFAP-aggregaten die dubbel-positief waren voor GFAP en vimentine (B). (C) Kwantificering van aggregaat-bevattende cellen in WT- en homozygote mutante astrocyten. De gegevens representeren het gemiddelde ± standaardfout (SE) van drie onafhankelijke experimenten, gepresenteerd als staafdiagrammen. Statistische analyse werd uitgevoerd met een tweezijdige t-toets; ****p < 0.0001. (D–G) Expressieniveaus en oplosbaarheidseigenschappen van GFAP in WT- en homozygote mutante astrocyten. Primaire astrocyten werden geëxtraheerd met RIPA-buffer bij 14 DIV. Totale cellysaten (D), evenals supernatant (S) en pellet (P) fracties (F), werden geanalyseerd via immunoblotting met antilichamen tegen GFAP (rood kanaal), ubiquitine (groen kanaal) en vimentine (groen kanaal). Moleculaire massa-markers (in kDa) worden links getoond, terwijl de posities van GFAP, vimentine (Vim) en ubiquitine (Ub) rechts zijn aangegeven. Ub1–3 representeren mono-, di- en tri-geubiquitineerde GFAP-soorten, terwijl Ubn polygeubiquitineerde GFAP-soorten aangeeft. De stippellijn in (D en F) geeft aan dat banen op dezelfde gel zijn geladen maar niet opeenvolgend waren. Let op dat geubiquitineerde GFAP-soorten uitsluitend werden gedetecteerd in de pellet-fractie van homozygote mutante astrocyten (F, baan 4). Kwantificering van GFAP-niveaus wordt getoond in (E,G). Elke witte stip representeert een biologisch replica (n = 3). Gegevens worden gepresenteerd als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
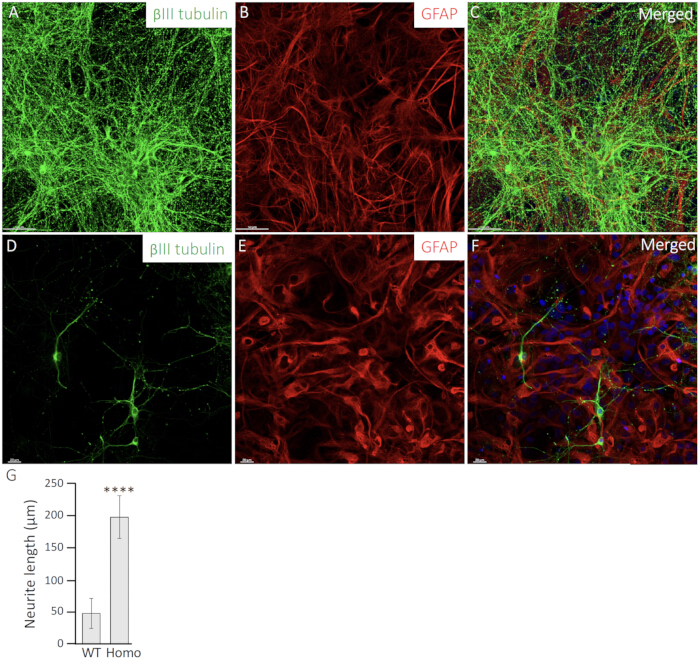
Figuur 6: Mutante GFAP-expressie in homozygote mutante astrocyten verandert de neurietmorfologie. Primaire neuronen (A,D) werden gecocultureerd met respectievelijk WT-astrocyten (B) of homozygote mutante astrocyten (E). Neuronen werden immunogekleurd met antilichamen tegen βIII tubuline (groen kanaal) om de neuronale morfologie te visualiseren (A,D), terwijl astrocyten (B,E) werden gelabeld met antilichamen tegen GFAP (rood kanaal). Samengevoegde beelden worden getoond (C,F), waarbij kernen zijn gekleurd met DAPI (blauw kanaal). Schaalbalk, 20 μm. (G) De neurietlengte van neuronen die zijn gecocultureerd met respectievelijk WT- of Homo-astrocyten werd gekwantificeerd en gepresenteerd als staafdiagrammen. Gegevens worden uitgedrukt als gemiddelde ± SD. Statistische significantie werd beoordeeld met een tweezijdige t-test, waarbij een significant verschil tussen WT- en R237H-astrocyten wordt aangeduid met ****P < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
| Component | Eindconcentratie | |
| Dissectiemedium | 10× HBSS | 10% |
| 1 M HEPES, pH 7,4 | 10 mM | |
| 100× penicilline-streptomycine | 1× | |
| Dissociatiemedium | 2,5% trypsine | 0.25% |
| 1 M HEPES, pH 7,4 | 10 mM | |
| 150 mM CaCl₂2 | 1,5 mM | |
| DNase I (15.000 U) | 80 U | |
| 10× HBSS | 10% | |
| Onderhoudsmedium | Foetaal runderserum | 10% |
| 100× penicilline-streptomycine | 1× | |
| MEM | 97% | |
| Neuraal dissociatiemedium | 100 mM natriumpyruvaat | 1 mM |
| 10% glucose | 0.10% | |
| 1 M HEPES, pH 7,4 | 10 mM | |
| 0,5 M EDTA | 5 mM | |
| 2 mg/mL cysteïne | 0,2 mg | |
| Papaïne | 67 U | |
| 150 mM CaCl₂2 | 1,5 mM | |
| DNase I (15.000U) | 80 U | |
| Neuraal platingmedium | Foetaal runderserum | 5% |
| GlutaMax-1 | 1% | |
| 10% glucose | 0.06% | |
| 100× penicilline-streptomycine | 1× | |
| Onderhoudsmedium voor neuronen | Neurobasaal medium | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0,5 mM | |
| 100× penicilline-streptomycine | 1% | |
| kweekmedium voor 293T-cellen | DMEM met 10% | 90% |
| Foetaal kalfsserum | 10% | |
| Glutamine | 2 mM | |
| 100× Penicilline-streptomycine | 1% |
Tabel 1: Samenstelling van de media.
Aanvullend bestand 1: GFAP-mutante lentivirale constructen. GFAP-mutaties zijn gegenereerd via site-directed mutagenese. Klik hier om dit bestand te downloaden.
Aanvullende figuur 1: Een schema van GFAP-mutaties gegenereerd door site-directed mutagenese.Klik hier om dit bestand te downloaden.
Discussie
Primaire astrocytenkweken hebben ons begrip van de rol van astrocyten bij gezondheid en ziekte aanzienlijk vergroot. Voortbouwend op het fundamentele werk van McCarthy en de Vellis21, zijn deze kweken essentieel voor het bestuderen van AxD, omdat ze een gedetailleerde exploratie van astrocytenspecifieke processen mogelijk maken, in het bijzonder de effecten van AxD-mutaties op de assemblage van GFAP en de vorming van aggregaten.
De succesvolle isolatie en kweek van primaire astrocyten hangt af van verschillende cruciale stappen die de celviabiliteit, zuiverheid en reproduceerbaarheid beïnvloeden. Een snelle en precieze dissectie van hersenweefsel, in combinatie met een zorgvuldige optimalisatie van de trypsineconcentratie en de duur van de digestie, is essentieel om weefseldegradatie te voorkomen en een volledige dissociatie tot een suspensie van enkelvoudige cellen te waarborgen. Voorzichtige trituratie en het gebruik van een steriele celzeef verhogen de celzuiverheid verder door debris en aggregaten te verwijderen. Deze stappen, gevolgd door centrifugatie bij lage snelheid en zorgvuldige resuspensie in vers kweekmedium, helpen een hoge celviabiliteit en groei te behouden, waarbij variabiliteit en contaminatie worden geminimaliseerd. Zodra de cellen zijn geïsoleerd, is de keuze van de oppervlaktecoating cruciaal om een robuuste celhechting te garanderen en de experimentele doelstellingen te bereiken. Poly-L-lysine (PLL) wordt vaak gebruikt vanwege de kostenefficiëntie en het vermogen om sterke celadhesie te bevorderen, maar andere coatings zoals laminine22,23 en collageen24 bootsen in vivo condities mogelijk beter na of faciliteren specifieke cellulaire studies. Inzicht in deze effecten stelt onderzoekers in staat om experimenten te ontwerpen die relevante en reproduceerbare resultaten opleveren.
Ondanks de technische uitdagingen blijft dit protocol onmisbaar, aangezien het een fysiologisch relevant model biedt dat superieur is aan geïmmortaliseerde cellijnen. Het is echter belangrijk om enkele beperkingen te erkennen: 1) Het isolatie- en kweekproces is technisch veeleisend en vereist gespecialiseerde vaardigheden en apparatuur. In vergelijking met gevestigde cellijnen is deze methode tijdrovender en gevoeliger voor variabiliteit, wat de reproduceerbaarheid van experimenten kan beïnvloeden. 2) Astrocyten vertonen aanzienlijke regionale heterogeniteit in vivo25,26, waarbij verschillende populaties worden aangetroffen in diverse gebieden van het CZS. Primaire astrocytenkweken worden doorgaans afgeleid van specifieke hersenregio's, zoals de cortex of hippocampus, en weerspiegelen mogelijk niet volledig de diversiteit van astrocytenpopulaties in het gehele CZS. 3) Het isolatie- en kweekproces induceert vaak een reactieve staat in astrocyten als gevolg van de traumatische procedure, enzymatische digestie en blootstelling aan kunstmatige kweekcondities. Hoewel deze reactieve staat nuttig is voor het bestuderen van reactieve astrogliose, representeert het mogelijk niet nauwkeurig de fysiologische respons van astrocyten op letsel of ziekte in vivo. Dit kan leiden tot niet-fysiologische artefacten die de experimentele resultaten kunnen vertekenen. 4) Primaire astrocytenkweken missen de complexe hersenmicro-omgeving die in vivo aanwezig is, inclusief interacties met neuronen, microglia, endotheelcellen en componenten van de extracellulaire matrix. Deze interacties zijn cruciaal voor de functie van astrocyten en hun respons op stressfactoren, en hun afwezigheid beperkt het vermogen om het in vivo gedrag volledig te repliceren. 5) Primaire astrocyten afgeleid van knaagdieren, zoals ratten of muizen, kunnen aanzienlijk verschillen in hun moleculaire en functionele kenmerken vergeleken met menselijke astrocyten27,28. Deze factoren kunnen niet-fysiologische artefacten introduceren, wat de noodzaak voor een zorgvuldig experimenteel ontwerp en interpretatie onderstreept. Om deze uitdagingen aan te pakken, zouden aanvullende zuiveringsstappen, zoals magnetische cel sortering29 of FACS-gebaseerde isolatie30, kunnen leiden tot zuiverdere astrocytenpopulaties. Hoewel deze methoden de complexiteit van het protocol verhogen, maken ze nauwkeurigere studies naar astrocytspecifieke functies mogelijk.
In tegenstelling tot sommige van deze geavanceerde protocollen, steunt de hier beschreven methode op gangbare celkweekmaterialen en vermijdt zij de noodzaak voor dure apparatuur. Bovendien vereenvoudigt dit protocol de preparatie van primaire culturen door cellen direct na isolatie uit te platen, zonder extra schudden of subcultivering31. Deze aanpak kan de GFAP-expressie en de reactieve toestanden van astrocyten beter behouden. Het is eenvoudig uit te voeren, reproduceerbaar en toepasbaar op cellen uit elke regio van het centraal zenuwstelsel, waardoor het een veelzijdig instrument voor onderzoekers is. Primaire astrocyten die met dit protocol zijn verrijkt, behouden hun oorspronkelijke cellulaire architectuur, signaleringspaden en functionele eigenschappen, waardoor ze geschikt zijn voor een breed scala aan celbiologische en biochemische studies16,17,32. Met matige technische expertise en zorgvuldige hantering kunnen deze culturen met een hoge viabiliteit worden onderhouden en waardevolle inzichten bieden in de morfologie, functie en het gedrag van astrocyten. Hoewel het protocol specifiek is ontworpen voor het isoleren van astrocyten uit de cortices van postnatale ratten, kan het eenvoudig worden aangepast om astrocyten uit muizen of andere hersenregio's, zoals de hippocampus of het ruggenmerg, te isoleren. Deze flexibiliteit maakt de methode zeer veelzijdig voor het beantwoorden van diverse onderzoeksvragen in de neurowetenschappen. Voor ziektemodellering kunnen astrocyten afgeleid van AxD-modelratten ziekte-geassocieerde GFAP-mutaties, de vorming van Rosenthal-vezels en pathologische reacties op stress repliceren33, wat een krachtig platform biedt voor het bestuderen van AxD-mechanismen.
Primaire astrocyten afgeleid van normale ratten kunnen genetisch worden gemanipuleerd via lentivirale transductie om de effecten van AxD-mutaties op GFAP-assemblage en aggregaatvorming te onderzoeken9,33. Een cruciale stap in dit proces is de selectie van een geschikte extractiebuffer, aangezien dit een aanzienlijke impact heeft op de beoordeling van de oplosbaarheidseigenschappen van mutant GFAP in getransduceerde astrocyten34. Radioimmunoprecipitatie-assay (RIPA) buffer, met zijn combinatie van ionische en niet-ionische detergentia, solubiliseert GFAP-filamenten effectief terwijl aggregaten behouden blijven10, wat uitgebreide biochemische analyses faciliteert die centraal staan in de onderzoeksdoelstellingen van deze studie.
Over het algemeen bieden primaire astrocytenkweken een veelzijdig en krachtig platform voor het bestuderen van de biologie van astrocyten en ziektemechanismen, in het bijzonder bij AxD. Door protocollen te optimaliseren en beperkingen aan te pakken, kunnen onderzoekers de reproduceerbaarheid en betrouwbaarheid verbeteren, waardoor deze methode essentieel is voor het verdiepen van ons begrip van de astrocytenfunctie en het identificeren van therapeutische targets voor GFAP-gerelateerde astrocytopathie.
Openbaarmakingen
De auteurs hebben niets te melden.
Dankbetuigingen
Wij danken Dr. Tracy Hagemann (Waisman Center, University of Wisconsin-Madison) voor het leveren van de R237H knock-in ratten. Dit werk werd ondersteund door subsidies van de National Science and Technology Council (111-2320-B-007-008 en 112-2320-B-007-006 aan N.-H. L. en M.-D.P.). De auteurs zijn dankbaar voor de ondersteuning van de confocal imaging core aan de National Tsing Hua University, Taiwan, die wordt gefinancierd door de National Science and Technology Council (NSTC-114-2740-M-007-001). Wij danken tevens het Instrument Center van de National Tsing Hua University voor de toegang tot de elektronenmicroscoop.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1 M HEPES, pH 7.4 | Gibco | 15630-080 | |
| 100× penicilline-streptomycine | Gibco | 15140-122 | |
| 10× Hank's Balanced Salt Solution (HBSS) | Gibco | 14180-046 | |
| 2,5% Trypsine | Gibco | 15090046 | |
| 30% Acrylamide/Bis-oplossing 37,5:1 | Biorad | 1610158 | |
| anti-GFAP-antilichaam | Cell Signaling Technology | 12389 | |
| anti-human GFAP-antilichaam | Biolegend | 837202 | Kloon SMI21 |
| anti-panGFAP-antilichaam | Agilent | GA524 | |
| anti-ubiquitine-antilichaam | Millipore | ST 1200 | Kloon FK2 |
| anti-vimentine-antilichaam | Sigma-Aldrich | V6389 | Kloon V9 |
| anti-β III tubuline-antilichaam | Biolegend | 801201 | |
| B27-supplement | Gibco | 17504044 | |
| Calciumchloride (CaCl2) | Arcos | 34961 | |
| Reagentia voor celkweek | |||
| ChemiDoc Imaging System | BioRad | NA | |
| Coomassie blauwe kleurstof | USB | 32826 | |
| Cysteïne | Sigma-Aldrich | C1276 | |
| Dithiothreitol (DTT) | UR | DTT | |
| DNase I | Sigma-Aldrich | D5025 | |
| Dounce-homogenisator | Wheaton | ||
| Dulbecco's modified Eagle Medium (DMEM) | Corning | 10-013-CM | |
| Endotoxine-vrije plasmid DNA-preparatiekit | Qiagen | 12943 | |
| Enhanced chemiluminescent (ECL) reagens | PerkinElmer | NEL 105001 | |
| Ethylendiaminetetraazijnzuur (EDTA) | USB | 15699 | |
| Foetaal runderserum | Gibco | A5209401 | |
| Glucose | Sigma-Aldrich | G8270 | |
| GlutaMax | Gibco | 35050-061 | |
| Minimal essential medium (MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| Neurobasal-medium | Gibco | 21103049 | |
| Optima XE-90 ultracentrifuge | Beckman | NA | |
| Papaïne | Worthington | LS003126 | |
| Fenylmethylesulfonylfluoride (PMSF) | ACROS ORGANICS | 215740050 | |
| Polyethyleenimine | Sigma-Aldrich | P3143 | |
| Poly-L-lysine | Sigma-Aldrich | P6516 | |
| Kaliumchloride (KCl) | Honeywell | 12636 | |
| Rhodamine anti-actine-antilichaam | BioRad | 12004164 | |
| Natriumdodecylsulfaat (SDS) | USB | 75819 | |
| Natriumpyruvaat | Gibco | 11360070 | |
| StarBright Blue 520 geit anti-muis IgG | Biorad | 12005867 | |
| StarBright Blue 700 geit anti-konijn IgG | BioRad | 12004161 | |
| Sucrose | Sigma-Aldrich | S5391 | |
| SW-28 rotor | Beckman | NA | |
| TansIT-LT1 transfectiereagens | Mirus | MR-MIR-2300 | |
| TEMED | USB | 76320 | |
| Tris(hydroxymethyl)aminomethaan (Tris) | USB | 75825 | |
| Triton X-100 | Sigma-Aldrich | T9284 | |
| β-mercaptoethanol | Sigma-Aldrich | M3148 |
Referenties
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar