Fotowywołane sieciowanie niemodyfikowanych białek (PICUP) umożliwia charakteryzację rozkładu wielkości oligomerów w metastabilnych mieszaninach białek. Prezentujemy zastosowanie metody PICUP w odniesieniu do trzech reprezentatywnych peptydów amyloidogennych: form 40- i 42-resztkowych białka amyloid β oraz kalcytoniny, a także do kontrolnego peptydu – czynnika uwalniającego hormon wzrostu.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Fotostymulowane sieciowanie niemodyfikowanych białek (PICUP) zastosowane do peptydów amyloidogennych
W tym artykule
Podsumowanie
Streszczenie
Agregacja białek amyloidogennych w toksyczne oligomery jest kluczowym zdarzeniem w patogenezie chorób związanych z błędnym fałdowaniem białek, w tym choroby Alzheimera, Parkinsona i Huntingtona, dziedzicznej stwardnienia zanikowej bocznego oraz cukrzycy typu 2. Ze względu na metastabilną naturę tych kompleksów białkowych, trudna jest ilościowa ocena rozkładu wielkości ich oligomerów za pomocą klasycznych metod, takich jak elektroforeza, chromatografia, fluorescencja czy dynamiczne rozpraszanie światła. Oligomery białek amyloidogennych występują jako metastabilne mieszaniny, w których jednocześnie zachodzi dysocjacja oligomerów do monomerów oraz ich asocjacja w większe kompleksy. Metoda PICUP stabilizuje populacje oligomerów poprzez kowalencyjne sieciowanie a w połączeniu z metodami frakcjonowania, takimi jak elektroforeza w żelu poliakryloamidowym z dodecylosiarczanem sodu (SDS-PAGE) lub chromatografia wykluczania (SEC), PICUP pozwala uzyskać obraz rozkładu wielkości oligomerów istniejących przed sieciowaniem. W związku z tym PICUP umożliwia wizualizację i analizę ilościową metastabilnych populacji białek i może być wykorzystywana do monitorowania agregacji oraz określania zależności między modyfikacjami sekwencji a oligomeryzacją.1Mechanistycznie PICUP obejmuje fotoutlenianie Ru2+w kompleksie tris(bipyrydylu)Ru(II) (RuBpy) do Ru3+poprzez naświetlanie światłem widzialnym w obecności akceptora elektronów. Ru3+jest silnym utleniaczem jednoelektronowym zdolnym do odebrania elektronu z sąsiedniej cząsteczki białka, co prowadzi do powstania rodnika białkowego1,2Rodniki są niestabilnymi, wysoce reaktywnymi formami, które z tego względu szybko zanikają w wyniku szeregu reakcji wewnątrz- i międzycząsteczkowych. Rodnik może wykorzystać wysoką energię niesparowanego elektronu do reakcji z innym monomerem białka, tworząc rodnik dimeryczny, który następnie traci atom wodoru i tworzy stabilny, kowalencyjnie powiązany dimer. Dimer ten może następnie dalej reagować poprzez podobny mechanizm z monomerami lub innymi dimerami, tworząc oligomery wyższego rzędu. Zalety metody PICUP w porównaniu z innymi metodami sieciowania foto- lub chemicznego3,4uwzględnij krótką (≤1 s) ekspozycję na niedestrukcyjne światło widzialne, nie ma potrzebypre factomodyfikacji natywnej sekwencji oraz kowalencyjnego sieciowania o zerowej długości. Ponadto PICUP umożliwia sieciowanie białek w szerokim zakresie pH i temperatur, w tym w parametrach fizjologicznych. W niniejszej pracy demonstrujemy zastosowanie PICUP do sieciowania trzech białek amyloidogennych: wariantów białka amyloid β o długości 40 i 42 aminokwasów (Aβ40 i Aβ42) oraz kalcytoniny, a także białka kontrolnego – czynnika uwalniającego hormon wzrostu (GRF).
Protokół
1. Przygotowanie peptydów
- Odważ około 100–200 μg liofilizowanego peptydu za pomocą mikrowagi i przenieś go do oznakowanych, powlekanych silikonem, niskoadsorpcyjnych probówek do wirówek. W niniejszej procedurze stosujemy ludzkie sekwencje Aβ40, Aβ42, kalcytoniny oraz GRF.
- Stosujemy peptydy poddane wstępnej obróbce 1,1,1,3,3,3-heksafluoro-2-propanolem (HFIP), aby uzyskać jednorodne preparaty wolne od agregatów. Krok ten jest niezbędny, ponieważ wcześniej powstałe agregaty indukują szybką agregację białek amyloidogennych, co prowadzi do niskiej powtarzalności między doświadczeniami5. Do uzyskania preparatów wolnych od agregatów dla metody PICUP można również zastosować inne metody, takie jak filtracja i SEC6.
- Aby poddać peptydy obróbce HFIP, schłodź pojemnik z HFIP w lodzie wewnątrz dygestorium, stosując odpowiednie środki ochrony (HFIP jest lotny i toksyczny). Chłodzenie butelki o pojemności 250 ml trwa zazwyczaj 10–15 min. Dodaj HFIP do uprzednio schłodzonych probówek zawierających liofilizaty peptydów, aby uzyskać nominalne stężenie peptydu 0,5 mM.
- Poddaj roztwory peptydów sonikacji w kąpieli wodnej przez 5 min w temperaturze pokojowej.
- Delikatnie wymieszaj na wortexie i inkubuj probówki przez 30 min w temperaturze pokojowej.
- Schłodź probówki w lodzie (przez 1 min), a następnie podziel roztwory na alikwoty o objętości 10–50 μl w oznakowanych, niskoadsorpcyjnych probówkach o pojemności 0,6 ml.
- Usuń HFIP poprzez odparowanie pod delikatnym strumieniem azotu lub pozostaw otwarte probówki w dygestorium przez noc. W przypadku odparowywania nocnego umieść otwarte probówki w statywie i przykryj je dużym arkuszem chusteczek Kimwipes, aby zapobiec zanieczyszczeniu kurzem i cząstkami.
- Wysusz pozostały HFIP in vacuo w liofilizatorze lub koncentratorze odśrodkowym przez 30 min, bądź w eksykatorze podłączonym do pompy próżniowej przez 2 h. Produktem końcowym będzie film peptydowy na dnie probówek do wirówek. Po prawidłowym wysuszeniu probówki mogą być przechowywane szczelnie przez dłuższy czas (miesiące) w temperaturze −20 lub −80 °C.
2. Rozpuszczanie peptydów traktowanych HFIP i fotousieciowanie
- Przed rozpuszczeniem peptydów traktowanych HFIP w celu przeprowadzenia reakcji sieciowania należy przygotować odczynniki sieciujące i gaszące.
- Odważyć nadsiarczan amonu (APS, Mr 228.2 g/mol) i przygotować roztwór 20 mM w 10 mM fosforanie sodu, pH 7.4. Mieszać za pomocą wortexa do momentu uzyskania przejrzystego roztworu.
- Przygotować roztwór 1 mM sześcionawodnika dichlorochloreku tris(2,2-bipyrydylu)rutenu(II) (RuBpy, Mr 748.63 g/mol) w 10 mM fosforanie sodu, pH 7.4. Mieszać za pomocą wortexa i zweryfikować całkowite rozpuszczenie. Chronić probówkę przed światłem za pomocą folii aluminiowej.
- Do analizy SDS-PAGE po sieciowaniu wygodnym odczynnikiem gaszącym jest 5% β-merkaptoetanol w 2× buforze do próbek SDS-PAGE. Alternatywnie można zastosować 1 M ditiotreitol (DTT, Mr 154.5 g/mol) w wodzie dejonizowanej lub odpowiednim buforze.
- Filmy peptydowe traktowane HFIP rozpuszcza się najpierw w rozcieńczonym NaOH, a następnie dodaje bufor fosforanowy sodu, aby uzyskać stężenie peptydów ok. 30 μM. Do probówki zawierającej film peptydowy dodać 60 mM NaOH, a następnie wodę dejonizowaną w taki sposób, aby NaOH i woda stanowiły odpowiednio 10% i 45% objętości końcowej. Zeskrobać film peptydowy z wewnętrznych ścianek probówki do mikrocentryfugi za pomocą końcówki pipety, wymieszać poprzez pipetowanie w górę i w dół, a następnie sonikować przez 5 min w kąpieli ultradźwiękowej.
- Dodać 45% 20 mM fosforanu sodu, pH 7.4, wymieszać przez pipetowanie i wirować przy 16,000 g przez 10 min. Odstawić alikwoty niesieciowanych peptydów wymieszanych z odczynnikiem gaszącym jako kontrole negatywne.
- Ustawić opóźnienie migawki aparatu na 1 s. Przy dłuższym czasie naświetlania intensywne reakcje rodnikowe mogą prowadzić do degradacji białek. Napiąć migawkę aparatu. Czas naświetlania może wymagać optymalizacji podczas stosowania tej metody z nowym białkiem.
- Typową reakcję PICUP przeprowadza się w objętości reakcyjnej 20 μl. Przenieść 18 μl roztworu peptydów do cienkościennej, przezroczystej probówki PCR o pojemności 0.2 ml.
- Do roztworu peptydów dodać 1 μl RuBpy, a następnie 1 μl APS i wymieszać odczynniki poprzez pipetowanie (końcowe stężenia RuBpy i APS w mieszaninie reakcyjnej wyniosą odpowiednio 0.05 i 1 mM).
- Szybko umieścić probówkę reakcyjną w szklanej fiolce o pojemności 1.8 ml. Umieścić fiolkę w miechu zamocowanym z przodu korpusu aparatu. Założyć osłonę obiektywu i nacisnąć migawkę, aby próbka była naświetlana przez 1 s wewnątrz miecha.
- Po naświetleniu próbki szybko wyjąć fiolkę z miecha, a probówkę PCR z fiolki. Szybko zgasić reakcję, dodając 1 μl DTT lub 10 μl redukującego buforu do próbek PAGE. Powtórzyć reakcję dla każdego alikwotu peptydów.
- Mieszaniny reakcyjne można teraz zamrozić w temperaturze −20 °C w celu przechowywania nie dłużej niż przez 7 dni lub trzymać na lodzie przed analizą metodą SDS-PAGE i barwieniem srebrem.
3. SDS-PAGE i barwienie srebrem produktów sieciowania peptydów
- W celu wizualizacji sieciowanych peptydów przeprowadza się rutynowe rozdzielanie metodą SDS-PAGE oraz barwienie srebrem.
- Na każdą ścieżkę nanosi się 5 μl mieszaniny reakcyjnej, aby uzyskać ~130 pmol peptydów na ścieżkę.
- W celu porównania należy uwzględnić podobne ilości niesieciowanych peptydów. Należy również zastosować standardową drabinę białkową do wizualnej oceny masy cząsteczkowej prążków peptydowych.
- Żel należy poddać elektroforezie przy użyciu standardowej aparatury. W naszej pracy stosujemy system XCell SureLock Mini-Cell firmy Invitrogen, a barwienie srebrem przeprowadzamy zgodnie z publikacją Invitrogen IM-1002, Novex Pre-Cast Gel Electrophoresis Guide.
Część 4: Reprezentatywne wyniki (Rysunek 1)
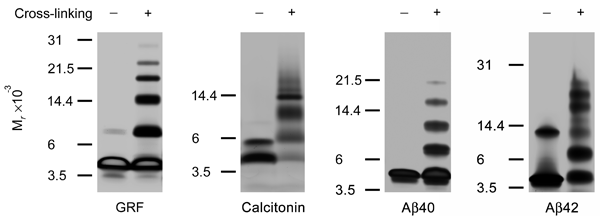
Rycina 1: Barwione srebrem żele poliakrylamidowe przedstawiające nieusieciowany (−) oraz usieciowany fotochemicznie (+) GRF, kalcytoninę, Aβ40 i Aβ42
Analizy SDS-PAGE i barwienie srebrem oligomerów Aβ40 generowanych metodą PICUP wykazują zbliżoną intensywność prążków od monomeru do tetrameru, po czym następuje gwałtowny spadek zawartości wyższych oligomerów7. Nieusieciowany Aβ40 migruje z Mr zgodną z masą monomeru7. Aβ42 wykazuje odmienny rozkład wielkości oligomerów. Oligomery Aβ42 składają się z 2–3 grup8. Pierwsza grupa, od monomeru do trimeru, wykazuje malejącą intensywność wraz ze wzrostem rzędu oligomeru. W drugiej grupie obserwuje się rozkład zbliżony do rozkładu Gaussa pomiędzy tetramerem a heptamerem, z maksimum dla pentameru i heksameru. Trzecia grupa, która nie jest tutaj pokazana, zawiera oligomery o Mr ~30 000–60 000 Da8. Te oligomery o wyższym Mr są zazwyczaj obserwowane przy użyciu LMW Aβ42 izolowanego metodą SEC, ale nie w peptydach przygotowanych poprzez filtrację lub traktowanie HFIP6. Nieusieciowany Aβ42 tworzy głównie dwa prążki: prążek monomeru oraz szeroki prążek trimeru/tetrameru, który jest artefaktem indukowanym przez SDS5,9. Kalcytonina daje rozkład wielkości oligomerów, który silnie odbiega od monotonnego spadku wykładniczego w zakresie od monomeru do tetrameru, co sugeruje wstępne istnienie dimerów, trimerów i tetramerów7. Polipeptyd kontrolny, GRF, tworzy monotonny rozkład oligomerów od dimeru do heksameru, tak że pozorne względne ilości oligomerów maleją wykładniczo wraz ze wzrostem masy cząsteczkowej. W innych eksperymentach można było zwizualizować również wyższe oligomery7. Dokładna liczba i względne intensywności prążków oligomerów mogą się nieco różnić między eksperymentami w zależności od rzeczywistego stężenia białka, ilości białka naniesionego na żel oraz czasu trwania etapu wywoływania w protokole barwienia srebrem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Metoda PICUP została opracowana pierwotnie w celu badania stabilnych kompleksów białkowych2. Następnie zastosowano ją do ilościowych badań metastabilnych agregatów białek amyloidowych, w tym Aβ10, prionów i PrPSc 11 związanych z chorobami oraz α-synukleiny12. Najważniejszymi czynnikami, które należy uwzględnić podczas projektowania eksperymentu PICUP, są stechiometria odczynników, czas naświetlania oraz procedura przygotowania próbek. Dwie pierwsze kwestie mogą wymagać optymali...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Podziękowania
Niniejsza praca była wspierana przez granty AG027818 i AG030709 z NIH/NIA, 2005/2E z Larry L. Hillblom Foundation, IIRG-07-58334 z Alzheimer Association oraz 07-65798 z California Department of Public Health.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze | |
|---|---|---|---|---|
| żarówka wolframowa Dolan-Jenner o mocy 200 W | Inne | Dolan-Jenner Industries | Model 170-D | Ciepło generowane przez lampę d–nie wpłynie na próbki podczas krótkich okresów inkubacji. |
| korpus aparatu SLR 35 mm | Narzędzie | Pentax | model SP500 | W naszej konfiguracji do korpusu kamery przymocowano miech, który tworzy dogodną komorę do naświetlania próbki umieszczonej w odległości 10 cm od źródła światła. |
| Przezroczyste probówki do PCR z cienkimi ściankami | Inne | Eppendorf | 951010006 dostarczony przez Fisher L22-003-24 | |
| Fiolki szklane (1,8 ml) | Inne | Kimble Chase | 60940A 2, dostarczony przez Fisher 03-340-60 | |
| GRF | Odczynnik | Bachem | H-3695 | |
| HFIP | Odczynnik | TCI America | H0424 | Stosować w dygestorium. |
| Aβ40 i Aβ42 | Odczynnik | Laboratorium Biopolimerów UCLA | ||
| Kalcytonina | Odczynnik | American Peptide | 22-1-10 | |
| Heksahydrat dichlorotris(2,2'-bipirydylo)rutenu(II) | Odczynnik | Sigma-Aldrich | 224758-1G | Mieszać w wstrząsarze wirowym (vortexować) aż do uzyskania klarownego roztworu. Probówkę z RuBpy owinąć folią aluminiową, aby chronić odczynnik przed światłem otoczenia. RuBpy należy przygotowywać świeżo przed każdym użyciem i zużyć w ciągu 48 h. |
| Persiarczan amonu | Odczynnik | Sigma-Aldrich | A-7460 | Wymieszać w wstrząsarku wirującym (vortex) do czasu uzyskania klarownego roztworu. APS należy przygotowywać na świeżo przed każdym użyciem i zużyć w ciągu 48 h. |
| β-merkapto–etanol | Odczynnik | Sigma-Aldrich | M7154-25 ML | Można stosować podczas przeprowadzania analizy metodą SDS-PAGE. |
| Bufor do próbek Novex Tricine SDS (2x) | Odczynnik | Invitrogen | LC1676 | |
| XCell SureLock Mini-komórka | Narzędzie | Invitrogen | EI0001 | |
| Żele Novex Tricine (10-20%) | Inne | Invitrogen | EC6625B0X | |
| Bufor do elektroforezy Novex Tricine SDS (10x) | Invitrogen | LC1675 | ||
| Zestaw do szybkiego barwienia srebrem | Invitrogen | LC6100 |
Bibliografia
- Bitan, G. Structural study of metastable amyloidogenic protein oligomers by photo-induced cross-linking of unmodified proteins. Methods Enzymol. 413, 217-236 (2006).
- Fancy, D. A., Kodadek, T. Chemistry for the analysis of protein-protein interactions: rapid and efficient cross-linking triggered by long wavelength light. Proc. Natl. Acad. Sci. USA. 96, 6020-6024 (1999).
- Kluger, R., Alagic, A. Chemical cross-linking and protein-protein interactions—a review with illustrative protocols. Bioorg. Chem. 32, 451-472 (2004).
- Tomohiro, T., Hashimoto, M., Hatanaka, Y. Cross-linking chemistry and biology: development of multifunctional photoaffinity probes. Chem. Rec. 5, 385-395 (2005).
- Bitan, G., Fradinger, E. A., Spring, S. M., Teplow, D. B. Neurotoxic protein oligomers—what you see is not always what you get. Amyloid. 12, 88-95 (2005).
- Bitan, G., Teplow, D. B. Preparation of aggregate-free, low molecular weight amyloid-β for assembly and toxicity assays. Methods Mol. Biol. 299, 3-9 (2005).
- Bitan, G., Lomakin, A., Teplow, D. B. Amyloid β-protein oligomerization: prenucleation interactions revealed by photo-induced cross-linking of unmodified proteins. J. Biol. Chem. 276, 35176-35184 (2001).
- Bitan, G., Kirkitadze, M. D., Lomakin, A., Vollers, S. S., Benedek, G. B., Teplow, D. B. Amyloid β-protein (Aβ) assembly: Aβ40 and Aβ42 oligomerize through distinct pathways. Proc. Natl. Acad. Sci. USA. 100, 330-335 (2003).
- Hepler, R. W., Grimm, K. M., Nahas, D. D., Breese, R., Dodson, E. C., Acton, P., Keller, P. M., Yeager, M., Wang, H., Shughrue, P., Kinney, G., Joyce, J. G. Solution state characterization of amyloid β-derived diffusible ligands. Biochemistry (Mosc). 45, 15157-15167 (2006).
- Bitan, G., Teplow, D. B. Rapid photochemical cross-linking—a new tool for studies of metastable, amyloidogenic protein assemblies). Acc. Chem. Res. 37, 357-364 (2004).
- Piening, N., Weber, P., Hogen, T., Beekes, M., Kretzschmar, H., Giese, A. Photo-induced crosslinking of prion protein oligomers and prions. Amyloid. 13, 67-77 (2006).
- Li, H. T., Lin, X. J., Xie, Y. Y., Hu, H. Y. The early events of α-synuclein oligomerization revealed by photo-induced cross-linking. Protein Pept. Lett. 13, 385-390 (2006).
- Vollers, S. S., Teplow, D. B., Bitan, G. Determination of Peptide oligomerization state using rapid photochemical crosslinking. Methods Mol. Biol. 299, 11-18 (2005).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
