Bezpośrednia injekcja cDNA do jądra komórkowego jest skuteczną techniką transfekcji komórek pomitotycznych. Metoda ta zapewnia wysoki poziom ekspresji białek heterologicznych z pojedynczych lub wielu konstruktów cDNA i umożliwia badanie funkcji białek w fizjologicznie istotnym środowisku z wykorzystaniem różnych testów na pojedynczych komórkach.
Artykuł metodologiczny
Wewnątrzjądrowa mikroiniekcja DNA do rozdzielonych neuronów dorosłych ssaków
W tym artykule
Podsumowanie
Streszczenie
Pierwotne hodowle komórek neuronalnych są cennymi narzędziami do badania funkcji białek, ponieważ stanowią system bardziej istotny biologicznie w porównaniu z unieśmiertelnionymi liniami komórkowymi. Jednak postmitotyczny charakter pierwotnych neuronów uniemożliwia efektywną heterologiczną ekspresję białek przy użyciu powszechnych procedur, takich jak elektroporacja czy transfekcja chemiczna. W związku z tym, w celu skutecznej ekspresji białek w tych niedzielących się komórkach, należy zastosować inne techniki.
W niniejszym artykule opisujemy kroki niezbędne do przeprowadzenia iniekcji wewnątrzjądrowych konstruktów cDNA do rozdzielonych neuronów współczulnych osobników dorosłych. Technika ta, zastosowana w odniesieniu do różnych typów neuronów, pozwala na skuteczną indukcję ekspresji białek heterologicznych. Wyposażenie niezbędne do procedury mikroiniekcji obejmuje mikroskop odwrócony do wizualizacji komórek, szklaną pipetę iniekcyjną wypełnioną roztworem cDNA podłączoną do systemu dostarczania pod ciśnieniem N2(g) oraz mikromanipulator. Mikromanipulator koordynuje ruch iniekcyjny pipety do mikroiniekcji z krótkim impulsem ciśnieniowego N2, aby wyrzucić roztwór cDNA z końcówki pipety.
Technika ta nie wykazuje toksyczności związanej z wieloma innymi metodami transfekcji i umożliwia ekspresję wielu konstruktów DNA w stałym stosunku. Niska liczba wstrzykniętych komórek sprawia, że procedura mikrowstrzykiwania jest dobrze dostosowana do badań pojedynczych komórek, takich jak rejestracje elektrofizjologiczne i obrazowanie optyczne, lecz może nie być idealna dla testów biochemicznych wymagających większej liczby komórek i wyższej wydajności transfekcji. Chociaż mikrowstrzykiwania do jądra komórkowego wymagają nakładów sprzętowych i czasowych, możliwość osiągnięcia wysokiego poziomu ekspresji białek heterologicznych w środowisku fizjologicznie istotnym sprawia, że technika ta jest bardzo użytecznym narzędziem do badania funkcji białek.
Protokół
I. Przygotowanie do iniekcji
W tej sekcji opisano kroki przygotowawcze, które należy podjąć przed wstrzyknięciem cDNA do jądra neuronów. Procedura izolacji neuronów wykracza poza zakres niniejszego artykułu, jednak istotne jest, aby neurony zostały dysocjowane do pojedynczych komórek i dobrze przylegały do dolnej powierzchni naczyń hodowlanych o średnicy 35 mm (przydatne wskazówki w tym zakresie znajdują się w sekcji Discussion). Choć potencjalnie można wykorzystać różne rodzaje neuronów, do wysekowania preferowane są zwoje obwodowe, takie jak górny zwoj szyjny (SCG) lub zwoje korzeni grzbietowych, ponieważ są one łatwo dostępne i pozwalają na uzyskanie dużej liczby neuronów. Dodatkowymi zaletami stosowania neuronów SCG jest to, że stanowią one stosunkowo homogeniczną populację komórek i są dobrze scharakteryzowane1,2,3,4.
A. Przygotowanie plazmidowego cDNA do iniekcji
- Aby zapobiec kontaminacji lub degradacji DNA, podczas przygotowania należy nosić rękawiczki.
- DNA kodujące białko zainteresowania jest subclonowane do odpowiedniego wektora ekspresyjnego dla ssaków, takiego jak pCI (Promega, Madison, WI), pod kontrolą silnego i konstytutywnie aktywnego promotora cytomegalowirusa (CMV). Jeśli białko nie jest znakowane, w celu potwierdzenia prawidłowego wstrzyknięcia i ekspresji współwstrzykuje się plazmid reporterowy, kodujący na przykład EGFP (pEGFP-N1, BD Biosciences Clontech, Palo Alto, CA). DNA izoluje się przy użyciu wysokiej jakości kolumny separacyjnej (np. zestaw QIAfilter Midi-prep kit, Qiagen, Chatsworth, CA), a następnie dodatkowo oczyszcza za pomocą jednostki filtra odwirującego z filtrem PVDF (0.1 μm, Millipore, Bedford, MA), aby usunąć cząstki stałe z preparatu plazmidowego, które mogłyby zablokować pipety do mikroiniekcji podczas procesu wstrzykiwania. Plazmidy przechowuje się w temperaturze -20°C w stężeniu około 1 μg/μl w odpowiednim buforze do przechowywania DNA (np. bufor TE: 10 mM Tris, 1 mM EDTA, pH 8.0).
- Bezpośrednio przed mikroiniekcją cDNA plazmidowe rozcieńcza się i miesza do pożądanego stężenia końcowego w buforze TE lub H2O. Zazwyczaj 5-10 ng/μl genu reporterowego jest wystarczające do znakowania wstrzykniętych komórek, a całkowite stężenie wstrzykiwanego cDNA nie powinno przekraczać 200 ng/μl, ponieważ DNA przy wysokich stężeniach jest lepkie i może zapchać pipety do mikroiniekcji. Małą objętość cDNA do iniekcji (5-10 μl) przygotowuje się poprzez mieszanie kropel roztworu na czystej powierzchni niewielkiego kawałka Parafilmu (stroną znajdującą się pod papierowym podkładem). Krople roztworu miesza się, wielokrotnie pobierając i wypuszczając ciecz pipetorem, unikając wprowadzania pęcherzyków powietrza podczas mieszania.
- Używając końcówki do mikroloadera (Eppendorf, Brinkmann Instruments, Westbury, NY), przenieś roztwór cDNA do specjalnie przygotowanej rurki hematokrytowej (Fisher Scientific, Pittsburgh, PA). Instrukcje dotyczące przygotowania rurek hematokrytowych znajdują się w sekcji materiałów (Tabela Materiałów). Rurkę hematokrytową zawierającą roztwór cDNA do iniekcji umieść w probówce do mikrocentryfugi o pojemności 1.5 ml.
- Wiruj probówkę przez 15-30 min przy 10 000 g w mikrocentryfudze wyposażonej w rotor z kątem stałym lub z koszyczkami odchylanymi (Eppendorf), w temperaturze pokojowej (20-24°C), aby osadzić cząstki w roztworze cDNA, które mogłyby zablokować pipetę do mikroiniekcji. Roztwór cDNA do iniekcji można przechowywać w temperaturze pokojowej podczas sesji wstrzykiwania.
B. Wykonanie pipet do iniekcji
- Jednorazowe szklane pipety do mikroiniekcji są dostępne w sprzedaży (np. Femtotips, Eppendorf), co jest wygodne, lecz kosztowne (10 $ za jedną pipetę). Pipety do iniekcji można wytwarzać w laboratorium, korzystając z programowalnego wyciągacza pipet P-97 Flaming Brown (Sutter Instrument Company, Novato, CA) oraz cienkościennych kapilar z borokrkaianu (World Precision Instruments, Sarasota, FL). Ta opcja jest bardziej ekonomiczna i pozwala na kontrolę kształtu oraz rozmiaru pipety do mikroiniekcji.
- Do wyciągania wąskich końcówek pipet do mikroiniekcji stosuje się program dwuetapowy. Ponieważ otwór pipety do mikroiniekcji jest zbyt wąski, aby można go było zbadać pod mikroskopem świetlnym, jakość pipet należy oceniać bezpośrednio, przeprowadzając iniekcję w kilku komórkach przed ostatecznym zatwierdzeniem ustawień programu. Poniżej znajdują się przybliżone ustawienia temperatury (heat), siły wyciągania (pull), prędkości (velocity) i czasu (time): (wyciąganie 1) 600, 115, 15, 250; (wyciąganie 2) 640, 130, 65, 200. Ustawienia te różnią się w zależności od partii szkła oraz stanu włókna grzejnego w wyciągaczu i powinny być dostosowywane w razie potrzeby. Więcej szczegółów znajduje się w pozycji5.
- Należy wyciągnąć kilka (2-5) pipet do iniekcji na każdą płytkę z neuronami do iniekcji, na wypadek uszkodzeń lub problemów podczas sesji. Pipety do iniekcji należy przechowywać w przykrytym pojemniku, aby zapobiec przedostaniu się kurzu do końcówki pipety do mikroiniekcji.
II. Mikroiniekcja do jądra komórkowego
W tej sekcji szczegółowo opisano proces wstrzykiwania cDNA do jądra neuronów. Podstawowy zestaw do mikroiniekcji obejmuje odwrócony mikroskop fazowo-kontrastowy (np. Nikon Diaphot TMD, Nikon, Melville, NY) do wizualizacji procesu, mikromanipulator (np. Eppendorf 5171) do sterowania ruchem pipety iniekcyjnej oraz iniekcyjny system ciśnieniowy (np. Eppendorf FemtoJet Express) do wypychania roztworu cDNA z pipety. Połączenie systemu ciśnieniowego z mikromanipulatorem pozwala na synchronizację tych dwóch procesów podczas iniekcji. Inne opcjonalne, lecz wysoce zalecane komponenty to zamontowany system monitorowania wideo (kamera CCD, Cohu Inc., San Diego, CA; czarno-biały monitor wideo, Sony Corporation, Tokyo, Japan). System ten nie jest bezwzględnie wymagany do przeprowadzania iniekcji, jednak monitor czarno-biały zapewnia wysoki kontrast, co usprawnia wizualizację jądra komórkowego i zwiększa komfort obserwacji podczas długich sesji iniekcyjnych. Dodatkowo można wykorzystać laptop z oprogramowaniem obsługującym kontroler ręczny w celu półautomatyzacji procesu iniekcji (szczegóły znajdują się w sekcji Dyskusja).
Idealny czas na wstrzyknięcie neuronów SCG przypada na okres od 3 do 6 godzin po dysocjacji. Na tym etapie komórki są sferyczne, ściśle przylegają do dna naczynia, a jądro jest wyraźnie widoczne w mikroskopie fazokontrastowym jako centralna, okrągła organella z ciemną błoną, zawierająca jeden lub więcej jąderek (Rysunek 1A).
- Umieść naczynie z dysocjowanymi neuronami na środku stolika mikroskopu. Dostrój ostrość i zoptymalizuj optykę kontrastową fazową mikroskopu tak, aby jądra neuronów były wyraźnie widoczne.
- Naboruj 2 μl przygotowanego roztworu cDNA do mikropipety do mikroiniekcji, używając końcówki mikroloadera. Unikaj pobierania roztworu z dna probówki do hematokrytu, ponieważ może to spowodować wzbudzenie cząstek stałych, które osadziły się podczas wirowania. Włókno w mikropipetach do mikroiniekcji powinno wspomagać pobieranie roztworu do końcówki, ale jeśli utrzymują się małe pęcherzyki powietrza, delikatnie stuknij w ściankę szklaną, aby je usunąć.
- Włóż mikropipetę do mikroiniekcji do uchwytu kapilarnego wtryskiwacza ciśnieniowego, a następnie przymocuj uchwyt do mikromanipulatora. Uchwyt jest ustawiony pod kątem 45°.
- Opuść mikropipetę do mikroiniekcji do naczynia. W momencie wprowadzenia pipety do pożywki hodowlanej tworzy się menisk, który wpływa na refrakcję światła i obniża jakość obrazu neuronów. Aby rozwiązać ten problem, można lekko przesunąć wieżyczkę pierścienia fazowego, aż jądra neuronów znów staną się wyraźnie widoczne.
- Niektóre systemy wtrysku ciśnieniowego posiadają funkcję „czyszczenia” (clean), która przez krótki czas przykłada maksymalne ciśnienie powietrza do końcówki mikropipety. Używaj tej funkcji do oczyszczania pipety z zanieczyszczeń przed rozpoczęciem oraz w trakcie iniekcji, jeśli końcówka wydaje się zapchana. Jeśli podczas korzystania z tej funkcji na ekranie nie widać wypychanego płynu, wymień pipetę na nową.
- Wycentruj mikropipetę do mikroiniekcji w monitorze podglądu i ustaw końcówkę obok neuronu, w tej samej płaszczyźnie ogniskowej co jąderko. Ustaw tę pozycję jako dolną granicę osi z w mikromanipulatorze. Jest to głębokość, do której mikropipeta do mikroiniekcji zostanie przesunięta podczas wtrysku. Następnie ustaw końcówkę około 30 μm powyżej tego punktu, aby mikropipeta znajdowała się nad neuronami.
- Tryb „iniekcji” (inject) w mikromanipulatorze Eppendorf 5171 można zdefiniować za pomocą następujących ustawień w celu przeprowadzenia iniekcji dojądrowych. Funkcja inject jest włączona, podczas gdy funkcja impale pozostaje wyłączona. Przekątna ścieżka iniekcji (wzdłuż osi x i z) powoduje najmniejsze uszkodzenia komórki, dlatego do iniekcji należy używać trybu axial. Prędkość iniekcji 300 μm/s jest wystarczająca; zsynchronizuj narastanie ciśnienia w momencie, gdy mikropipeta osiągnie ustawiony limit osi z.
- Wtryskiwacz ciśnieniowy kontroluje ilość roztworu cDNA wstrzykiwanego do jądra. W trybie iniekcji „automatycznej” podawanie DNA jest sterowane czasowo i inicjowane przez podłączony mikromanipulator. Ciśnienie iniekcji (Pi) powinno być ustawione w zakresie od 100 do 200 hektopaskali (hPa; 1 hPa $\approx$ 0,015 psi); wyższe ciśnienia nie poprawiają skuteczności ani jakości iniekcji i mogą wskazywać na inne problemy z rozmiarem końcówki mikropipety lub czystością DNA. Należy zastosować czas trwania iniekcji (ti) wynoszący 0,3 s oraz ciśnienie kompensacyjne (Pc) wynoszące 30 hPa, które zapewnia stałe nadciśnienie, aby zapobiec przedostawaniu się zatykających cząstek z pożywki do końcówki pipety.
- Używając sterowania osiami xy stolika mikroskopu, ustaw neuron do iniekcji pod końcówką mikropipety. Wyrównaj końcówkę pipety nad centrum jądra, zmieniając ostrość między końcówką a jąderkami.
- Wykonaj iniekcję do jądra, naciskając przycisk iniekcji (w mikromanipulatorze). Podczas etapu iniekcji ruch mikropipety oraz uwalnianie roztworu cDNA są kontrolowane przez mikromanipulator. Trudno jest potwierdzić sukces iniekcji dojądrowej gołym okiem, jednak wtrysk roztworu cDNA o stosunkowo niskiej lepkości (w porównaniu do lepkości środowiska jądrowego) często objawia się jako biała smużka w optyce kontrastowej fazowej i może służyć jako wskaźnik wniknięcia do jądra. Czasami mikropipeta nie przebija błony jądrowej, a jedynie przesuwa jądro. Druga próba iniekcji w tym samym miejscu może doprowadzić do udanego wstrzyknięcia DNA do jądra. Opuchlizna komórki zazwyczaj wskazuje na niezamierzoną iniekcję cytoplazmatyczną. Ponadto znaczne obrzmienie jądra jest źle tolerowane przez neurony i zazwyczaj prowadzi do szybkiej śmierci komórki; dlatego ciśnienie i czas trwania iniekcji nie powinny przekraczać sugerowanych wartości.
- Kontynuuj iniekcję neuronów, przesuwając stolik mikroskopu tak, aby kolejny neuron znalazł się pod mikropipetą. Systematycznie przemieszczaj się po naczyniu, aby zainiekować około 50-100 jąder, a następnie przenieś naczynie z neuronami do inkubatora na nocną inkubację. Pomyślnie zainiekowane neurony można zidentyfikować następnego dnia po ekspresji genu reporterowego.
III. Reprezentatywne wyniki

Rycina 1: Neurony z górnego zwoju szyjnego (SCG).
Obraz w kontraście fazowym neuronów SCG 3 godziny po dysocjacji (A). Na tym etapie jądro komórkowe jest wyraźnie widoczne, co ułatwia ustawienie końcówki pipety do mikroiniekcji. Jądro znajduje się w centrum neuronów i zawiera pojedyncze (lewo) lub wiele (prawo) ciemnych jąderek.
Neurony SCG 16 godzin po iniekcji cDNA EGFP do jądra (B). Po lewej neurony SCG obserwowane w kontraście fazowym. Po prawej obraz epifluorescencyjny tych samych neuronów, wykazujący prawidłową iniekcję i wynikową ekspresję EGFP w jednym neuronie.
Biały pasek skali ma długość 20 μm.

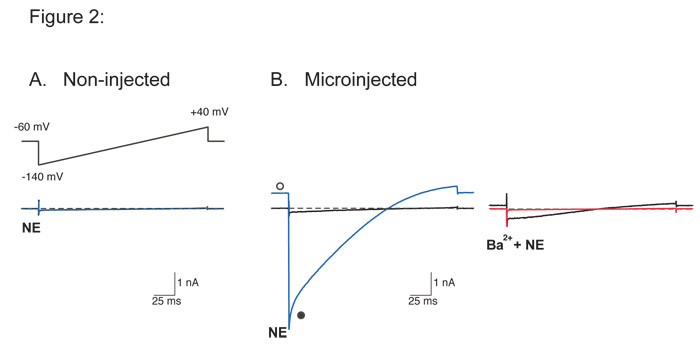
Rysunek 2: Rejestracje prądów z całej komórki przepływających przez heterologicznie ekspresowane potasowe kanały prostujące do wewnątrz sprzężone z białkiem G+ kanały (GIRK) z neuronów SCG.
prądy GIRK (IGIRK) wywołano za pomocą 200-msowego rampy napięcia od -140 do +40 mV z potencjału holdingowego -60 mV (wstawka na rys. A) po aktywacji endogennych α2-adrenoreceptory przez norepinefrynę (NE, 10 μM). Nałożone ślady są zapisami z tego samego neuronu i wskazują stan przed (czarny) oraz po aplikacji samego NE (niebieski) lub NE z dodatkiem 10 mM Ba2+ (czerwony). Linie przerywane wskazują poziom prądu równego zero.
Do rejestracji IGIRKroztwór zewnętrzny zawierał (w mM) 130 NaCl, 5,4 KCl, 10 HEPES i 10 CaCl22, 0,8 MgCl22, 15 glukozy, 15 sacharozy i 0,0003 TTX, z pH skorygowanym do 7,4 za pomocą NaOH. Wewnętrzny roztwór rejestrujący zawierał (w mM) 135 KCl, 11 EGTA, 1 CaCl22, 2 MgCl22, 10 HEPES, 4 MgATP oraz 0,3 Na2GTP, z pH dostosowanym do 7,2 za pomocą KOH.
Brak prądu wywołanego rampą napięcia w obecności NE w nieinjektowanych neuronach SCG (A) dowodzi, że neurony SCG nie wykazują endogennej ekspresji kanałów GIRK. Pomyślna injekcja plazmidowego cDNA kodującego funkcjonalny kanał GIRK11 powoduje powstanie dużych prądów podczas rampy napięcia po ekspozycji na NE (B, lewo). Prądy te wykazują typowe charakterystyki prądów przez kanały GIRK: aktywację przez agonistę receptora sprzężonego z białkiem G (NE), prostowanie do wnętrza oraz blokowanie prądów przez domniemany bloker kanałów GIRK, $\text{Ba}^{2+}$.2+ (B, prawa czerwona krzywa). Otwarte i wypełnione kółka reprezentują IGIRK odpowiednio przy prądzie podtrzymującym i szczytowym. Proszę kliknij tutaj aby zobaczyć powiększoną wersję rysunku 2.
Dyskusja
Typowe problemy i sugestie:
Jak wspomniano wcześniej, sukces iniekcji do jąder komórkowych zależy od przylegania komórek do płytek hodowlanych. Odroczenie rozpoczęcia iniekcji o kilka godzin po procedurze dysocjacji komórek pozwala neuronom przylgnąć do dna naczyń. Ponadto powlekanie naczyń 0,1 mg/ml wysokocząsteczkowej poli-L-lizyny (Sigma, St. Louis, MO) wspomaga adhezję neuronów do dolnej powierzchni naczyń.
Zapychanie się pipet do mikroiniekcji, szczególnie przy próbach wstrzykiwania wysokich stężeń DNA, może być częstym problemem. Stosowanie wysokiej jakości kolumn separacyjnych do izolacji i oczyszczania plazmidowego DNA oraz przeprowadzanie wspomnianych dodatkowych etapów oczyszczania (filtry wirowkowe, wirowanie w rurkach do hematokrytu) może pomóc w usunięciu cząsteczek stałych przed wstrzykiwaniem. Podczas iniekcji można skorzystać z funkcji „clean” w injektorze ciśnieniowym (wystarczy 0,2 s); jeśli jednak nie rozwiązuje to problemu, należy użyć nowej pipety do iniekcji. Jeśli większość pipet do mikroiniekcji zapycha się podczas jednej sesji, należy rozważyć zmianę ustawień wyciągarki do pipet szklanych w celu uzyskania końcówek pipet do mikroiniekcji o większym otworze.
Kolejnym problemem pojawiającym się podczas mikroiniekcji jądrowych jest nierówność powierzchni dna naczyń do hodowli tkankowej. Zmienność ta bezpośrednio wpływa na dokładność celowania końcówką pipety iniekcyjnej w jądro, ponieważ głębokość, na jaką pipeta przemieszcza się podczas iniekcji, jest stała. W związku z tym limit osi z musi być korygowany w trakcie wykonywania iniekcji w obrębie tego samego naczynia. Konieczność dokonania korekty stanie się oczywista, gdy nie pojawi się oznaka iniekcji jądrowej (brak białej smugi w jądrze lub całkowite pominięcie komórki) lub gdy końcówka pipety iniekcyjnej zbliży się do dna naczynia (co spowoduje uciśnięcie komórki, a nawet uderzenie końcówki pipety o dno). Podczas wysiewania neuronów można zastosować szklane cylindry do klonowania (O.D. 10 mm, nr kat. 2090-01010, Bellco Glass, Vineland, NJ), aby ograniczyć je do mniejszego, bardziej zwartego obszaru, co minimalizuje dystans, jaki pipeta iniekcyjna musi pokonać między kolejnymi iniekcjami. Cylindry te usuwa się przed przystąpieniem do mikroiniekcji.
Wady techniki:
Mikroiniekcje dojądrowe są wymagające technicznie i wymagają od operatora cierpliwości oraz wysokiego stopnia sprawności manualnej. Biegłość w tej technice, podobnie jak w przypadku każdej innej umiejętności, przychodzi wraz z praktyką. Dlatego zaleca się przećwiczenie samych iniekcji jądrowych genu reporterowego przed przystąpieniem do właściwych eksperymentów. Aby dodatkowo wspomóc proces iniekcji, można zintegrować kroki sterowania mikromanipulatorem i injektorem ciśnieniowym w programie komputerowym. Programy takie jak Igor Pro (WaveMetrics, Lake Oswego, OR) mogą być wykorzystywane do zapisywania ustawień mikroiniekcji i programowania kontrolerów wielofunkcyjnych (ShuttlePro, Contour Design, Windham, NH) w celu częściowej automatyzacji procesu iniekcji (szczegóły w 6,7,8).
Kolejną wadą techniki mikroiniekcji dojądrowych jest niski odsetek sukcesu. Około 10-20% próbowanych iniekcji jądrowych prowadzi do ekspresji białka. Choć taka wydajność może być wystarczająca w zastosowaniach, które nie wymagają dużej liczby komórek wykazujących ekspresję, na przykład w elektrofizjologii, w przypadku różnych testów biochemicznych może ona okazać się niewystarczająca.
Zastosowania techniki:
Pomimo swoich wad, mikroiniekcja DNA do jądra komórkowego jest niezwykle użyteczną techniką heterologicznej ekspresji białek w neuronach.
Wysoki poziom ekspresji białek uzyskuje się dzięki mikroiniekcjom jądrowym ze względu na dużą liczbę plazmidów uwalnianych do jądra podczas iniekcji, wysoką aktywność promotora CMV regulującego transkrypcję genów oraz długą stabilność plazmidów w jądrze. Nadekspresja białek jest szczególnie przydatna w eksperymentach z dominantnim ujemnym efektem, gdzie wymagane są wysokie poziomy białek heterologicznych w celu zdominowania białka endogennego. Inną zaletą iniekcji dojądrowych jest możliwość dostarczenia stałej proporcji konstruktów cDNA do jądra w przypadku wstrzykiwania wielu konstruktów. W przypadku innych metod transfekcji trudno jest w sposób powtarzalny wprowadzić taką samą proporcję każdego konstruktu DNA do różnych komórek w obrębie jednej szalki oraz pomiędzy poszczególnymi transfekcjami. Bezpośrednia iniekcja roztworu cDNA do jądra eliminuje to źródło zmienności i pozwala na efektywne miareczkowanie stosunku ekspresyjnych białek.
Tradycyjne metody transfekcji charakteryzują się ograniczoną skutecznością w komórkach postmitotycznych ze względu na niską inkorporację DNA do jądra9 oraz toksyczność chemiczną związaną z odczynnikami do transfekcji10. Mikroiniekcje jądrowe rozwiązują te problemy poprzez mechaniczne wprowadzanie materiału genetycznego do jądra. Choć technika ta jest bardziej złożona, możliwość badania wpływu białka w funkcjonalnym systemie biologicznym, z zachowaniem endogennych szlaków sygnalizacyjnych, z nawiązką rekompensuje pracochłonność tej metody.
Wszystkie procedury eksperymentalne z udziałem zwierząt zostały przeprowadzone zgodnie z wytycznymi National Institutes of Health dotyczącymi opieki nad zwierzętami i ich wykorzystywania.
Podziękowania
Badania prowadzone w naszym laboratorium są wspierane przez Intramural Research Program NIH, National Institute on Alcohol Abuse and Alcoholism.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Jednostka filtrująca Ultrafree-MC | EMD Millipore | UFC30VV00 | Filtr PVDF Durapore; rozmiar porów 0.1 μm |
| Bufor TE | Quality Biological, Inc. | 351-010-131 | 10 mM Tris, 1 mM EDTA, pH 8.0 |
| Kapilary do mikrohematokrytu | Fisher Scientific | 22-362-574 | Przygotowanie nieheparynizowane: Namoczyć w 100% etanolu przez noc. Trzykrotnie dokładnie wypłukać wodą dejonizowaną i wysuszyć szkło w piekarniku (95°C). Pociąć oczyszczone kapilary do hematokrytu na odcinki o długości 3-4 cm za pomocą skrybera z końcówką diamentową, a następnie jeden koniec zamknąć za pomocą płomienia, trzymając szkło pęsetą. Przechowywać w czystym zlewce szklanym pod przykryciem, aby zapobiec osadzaniu się kurzu. |
| Mikrowirówka | Eppendorf | 5417 R | Z rotorem kątowym lub koszykowym |
| Napiwniki do pipet Microloader 20 μl | Eppendorf | 5242 956.003 | |
| Szkło kapilarne do mikroiniekcji | World Precision Instruments, Inc. | TW120F-4 | Cienkościenne z włóknem, średnica zewnętrzna 1.2 mm, średnica wewnętrzna 0.9 mm, długość 100 mm |
| Wytwornica mikrokapilar Sutter Instrument (Puller) | Sutter Instrument Co. | P-97 | Z platynowo-irydowym włóknem w ramce (część nr FB330B) |
| Odwrócony mikroskop Nikon Diaphot TMD | Nikon Instruments | Obiektywy kontrastowo-fazowe 20x i 40x, zamontowany na stole wibroizolacyjnym | |
| Kamera CCD (Charge-coupled device) | Cohu Inc. | 6410 | |
| Monitor wideo | Sony Corporation | PVM-122 | Czarno-biały, ekran 9” |
| System mikromanipulatorów | Eppendorf | 5171 | |
| Jednostka do mikroiniekcji | Eppendorf | FemtoJet Express | |
| Sterownik mikroiniekcji | Contour Design | S-PROV2 | Programowalny sterownik multimedialny |
| Igor Pro | WaveMetrics | Version 4.05A | Program sterujący sterownikiem mikroiniekcji napisanym przez S. Ikedę |
Bibliografia
- Eccles, J. C. The action potential of the superior cervical ganglion. J Physiol. 85, 179-206 (1935).
- Ikeda, S. R. Voltage-dependent modulation of N-type calcium channels by G-protein βγ subunits. Nature. 380, 255-258 (1996).
- Schofield, G. G., Ikeda, S. R. Potassium currents of acutely isolated adult rat superior cervical ganglion neurons. Brain Res. 485, 205-214 (1989).
- Schofield, G. G., Ikeda, S. R. Sodium and calcium currents of acutely isolated adult rat superior cervical ganglion neurons. Pflugers Arch. 411, 481-490 (1988).
- Dean, D. A. Chapter 4. Live Cell Imaging: a Laboratory Manual. Goldman, R. D., Spector, D. L. 1, Cold Spring Harbor Laboratory Press. 51-66 (2005).
- Ikeda, S. R. Heterologous expression of receptors and signaling proteins in adult mammalian sympathetic neurons by microinjection. Methods Mol Biol. 83, 191-202 (1997).
- Ikeda, S. R. Expression of G-protein signaling components in adult mammalian neurons by microinjection. Methods Mol Biol. 259, 167-181 (2004).
- Ikeda, S. R., Jeong, S. W. Use of RGS-insensitive Gα subunits to study endogenous RGS protein action on G-protein modulation of N-type calcium channels in sympathetic neurons. Methods Enzymol. 389, 170-189 (2004).
- Washbourne, P., McAllister, A. K. Techniques for gene transfer into neurons. Curr Opin Neurobiol. 12, 566-573 (2002).
- Zhang, Y., Yu, L. C. Single-cell microinjection technology in cell biology. Bioessays. 30, 606-610 (2008).
- Vivaudou, M. Probing the G-protein regulation of GIRK1 and GIRK4, the two subunits of the KACh channel, using functional homomeric mutants. J Biol Chem. 272, 31553-31560 (1997).
Przedruki i uprawnienia
