Transdukcja białek umożliwia bezpośrednie dostarczanie biologicznie czynnych białek do komórek. W przeciwieństwie do konwencjonalnych metod, takich jak transfekcja DNA czy transdukcja wirusowa, ten nieinwazyjny paradygmat pozwala na wysoce efektywną manipulację komórkową w sposób miareczkowalny, unikając toksyczności komórkowej oraz ryzyka transformacji onkogennej wynikającej z trwałej modyfikacji genetycznej.
Artykuł metodologiczny
Inżynieria białek przenikających przez błony komórkowe
W tym artykule
Podsumowanie
Streszczenie
Technika transdukcji białek umożliwia bezpośrednie dostarczanie biologicznie aktywnego materiału do komórek ssaków [przegląd w 1,2]. Można w tym celu wykorzystać zdolność translokacyjną tzw. peptydów przenikających przez błony komórkowe (CPPs), określanych również jako domeny transdukcji białek (PTDs). Powszechnie stosowany jest TAT-CPP, pochodzący z białka Tat (trans-aktywator transkrypcji) ludzkiego wirusa niedoboru odporności typu 1 (HIV-1). Dodatnio naładowany TAT zwiększa przepuszczalność komórkową, pokonując bariery błony komórkowej poprzez endocytozę i/lub bezpośrednie przenikanie przez błonę2. W połączeniu z sygnałem lokalizacji jądrowej (NLS) białka fuzyjne są w stanie wniknąć do jądra komórkowego, zachowując swoją funkcjonalność. Nasza prezentacja wideo demonstruje, jako przykład inżynierii białek przepuszczalnych przez błony komórkowe, konstrukcję, produkcję i zastosowanie wersji przepuszczalnej przez błony enzymu modyfikującego DNA — Cre.
Cre jest rekombinazą specyficzną dla miejsca, która jest zdolna do rozpoznawania i rekombinacji 34-par zasadowych miejsc loxP w komórkach ssaków in vitro oraz in vivo. W związku z tym system Cre/loxP jest szeroko stosowany do warunkowego indukowania mutacji w genomie żywych komórek3,4. Ograniczeniem jest jednak dostarczenie aktywnej rekombinazy Cre do komórek.
Opisujemy system wektorów pSESAME, który umożliwia bezpośrednią insercję genu zainteresowania i stanowi platformę do szybkiego klonowania różnych domen i znaczników stosowanych w wektorze w wygodny i ustandaryzowany sposób. Wykazano, że zmiana rozmieszczenia różnych znaczników modyfikuje właściwości biochemiczne białek fuzyjnych, co daje możliwość uzyskania wyższej wydajności i lepszej rozpuszczalności. Demonstrujemy, jak eksponować i oczyszczać rekombinowane białka przenikające przez błony komórkowe w komórkach i z komórek E. coli. Funkcjonalność rekombinowanego białka Cre zostaje ostatecznie zwalidowana w hodowli komórkowej poprzez ocenę jego wewnątrzkomórkowej aktywności rekombinazy.
Protokół
Konstrukcja wektora ekspresyjnego i ekspresja:
Wektor ekspresyjny pSESAME-Cre skonstruowano poprzez wstawienie fragmentu kodującego Cre do pSESAME za pomocą miejsc restrykcyjnych AvrII oraz NheI z wykorzystaniem standardowych metod klonowania. pSESAME koduje białko fuzyjne składające się z przeciągu histydynowego, domeny TAT, sekwencji NLS i Cre, w skrócie HTNCre. W celu ekspresji HTNCre wektor pSESAME-Cre transformowano do szczepu TUNER (DE3) pLacI, a następnie przygotowano zapas w glicerolu.
- Kulturę nocną zaszczepiono za pomocą końcówki do pipety pokrytej bakteriami transformowanymi z zapasu glicerolowego. Kultura nocna składała się z pożywki LB uzupełnionej o 0,5% glukozy [v/v] oraz karbenicyliny w stężeniu końcowym 50 μg/mL i była inkubowana w temperaturze 37°C przez 16 godzin.
- Następnego dnia gęstą kulturę noczną wykorzystano do zaszczepienia kultury ekspresyjnej w stosunku 1:40, a następnie umieszczono ją w inkubatorze w temperaturze 37°C. Kultura ekspresyjna składała się z pożywki TB uzupełnionej o 0,5% glukozy [v/v] oraz ampicyliny w stężeniu końcowym 100 μg/mL.
- Przy wartości OD595 wynoszącej 1,5 indukowano ekspresję w kulturze za pomocą 0,5 mM IPTG przez 1 h.
- Następnie bakterie zebrano poprzez wirowanie przy 5000 rpm przez 10 minut w rotorze SLA3000.
- Osady bakteryjne przechowywano w temperaturze minus 20°C do momentu oczyszczania.
Oczyszczanie białka przenikającego przez błony komórkowe:
- Zamrożone osady bakterii resuspendowano w 10 mL buforu lizującego na litr hodowli w kolbie przez 15 minut w temperaturze pokojowej.
- Zawiesinę inkubowano następnie z 1 mg/mL lizozymu przez kolejne 15 minut w temperaturze pokojowej przy ciągłym mieszaniu.
- Następnie dodano 25 U/mL benzonukleazy i inkubowano przez 15 minut w temperaturze pokojowej przy mieszaniu.
- Po sonikacji na lodzie przez 1,5 min z impulsami 0,5 s przy mocy 45%, ostrożnie dodano 1 mL zimnego buforu soli winianowej (TSB) na każdy 1 mL zawiesiny przy mieszaniu i inkubowano przez 5 min na lodzie. Pobrano próbkę frakcji lizatu (L) do analizy SDS-PAGE.
- Oczyszczony lizat otrzymano poprzez wirowanie w 4°C przez 30 min przy 30 000g. Pobrano próbki frakcji rozpuszczalnej (S) i nierozpuszczalnej (I) do analizy SDS-PAGE.
- Nadsącz przeniesiono do nowych probówek typu Falcon o pojemności 50 mL, a następnie delikatnie mieszano przez 1 h w 4°C z 2 mL 50% zawiesiny Ni-NTA na litr początkowej hodowli ekspresyjnej.
- Zawiesinę nałożono na kolumnę grawitacyjną EconoPac (pobrano próbkę frakcji przepływowej (FT) do analizy SDS-PAGE) i przemyto dwukrotnie 5 objętościami złoża buforu płuczącego. Zebrano próbki obu frakcji płukania (W1 i W2) do analizy SDS-PAGE.
- Frakcje zawierające HTNCre eluowano 3 objętościami złoża buforu elucyjnego i pobrano próbkę frakcji eluatu (E) do analizy SDS-PAGE.
- Imidazol usunięto poprzez dwukrotną dializę frakcji elucyjnej przeciwko buforowi wysokosolnemu.
- Roztwór białka dalej zagęszczano poprzez dwukrotną dializę przeciwko buforowi glicerolowemu. we wszystkich etapach dializy stosunek buforu do próbki wynosił co najmniej 50. Procedura ta pozwoliła na otrzymanie roztworu stockowego w glicerolu zawierającego HTNCre w typowym stężeniu od 200 do 450 μM, co oznacza, że 1 litr hodowli ekspresyjnej daje ok. 12 mg białka. Pobrano próbkę roztworu stockowego w glicerolu (GS) do analizy SDS-PAGE. Roztwór stockowy HTNCre można przechowywać w temperaturze minus 20°C.

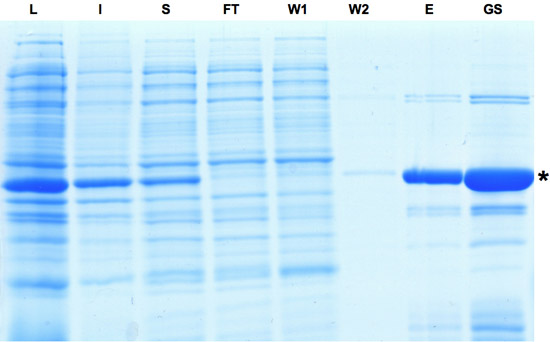
Rycina 1: Analiza SDS-PAGE próbek pobranych podczas procesu oczyszczania rekombinazy Cre. Indukcję ekspresji Cre wskazuje dominujący prążek we frakcji lizatu. Mimo że część białka jest nierozpuszczalna, białko Cre można dalej wzbogacać, co widać w frakcjach eluatu i zapasu w glicerolu. L: lizat, I: frakcja nierozpuszczalna, S: supernatant, FT: przedział przepływowy, W: przemywanie, E: eluat, GS: zapas w glicerolu. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję ryciny 1.
Transdukcja białka do murzych embrionalnych komórek macierzystych (ES):
- Komórki ES zawierające konstruktyw warunkowego reportera β-Galaktozydazy5 wysiano jako pojedyncze komórki, wykorzystując TrypLE™ Express do dysocjacji komórek adherentnych. Po 4 do 6 godzinach komórki ponownie przytwierdziły się do podłoża, a następnie usunięto medium.
- Następnie komórki ES inkubowano w medium zawierającym HTNCre przez 16 godzin.
- Odpowiednią ilość białka HTNCre (odpowiadającą stężeniu 10 μM) z zapasu w glicerolu rozcieńczono w medium dla komórek ES, a następnie poddano filtracji sterylnej (0.22 μm).
- Po transdukcji białkiem zmieniono medium z powrotem na standardowe medium wzrostowe.
- Po dwóch dniach komórki przemyto PBS i utrwalono w 4% Paraformaldehydzie (PFA) przez 10 minut.
- Przed przystąpieniem do barwienia X-Gal wykonano dwa dodatkowe etapy płukania PBS.
- Utrwalone komórki przykryto warstwą roztworu barwiącego X-Gal6 i inkubowano przez noc w temperaturze 37°C.
Reprezentatywne wyniki:
Następnego dnia odessano roztwór barwiący X-Gal, a komórki przykryto warstwą PBS w celu przeprowadzenia analizy mikroskopowej. Na podstawie aktywności β-Galaktozydazy zaobserwowano, że od 80 do 100% komórek ES myszy uległo rekombinacji.
Dyskusja
Podczas procesu oczyszczania białka fuzyjnego Cre ważne jest, aby nie pominąć dodania schłodzonego w lodzie buforu TBS przed wirowaniem. W przeciwnym razie rekombinaza Cre ma tendencję do wytrącania się w buforze glicerolowym.
Jeśli frakcja eluatu stanie się mętna z powodu wysokiego stężenia białka fuzyjnego, należy dodać dodatkowy bufor elucyjny, aż roztwór ponownie stanie się klarowny.
Zastosowanie 10 μM białka fuzyjnego Cre zazwyczaj skutkuje wydajnością rekombinacji na poziomie od 80 do 100%. Serum z płodu cielęcego (FCS), będące głównym składnikiem pożywki dla komórek ES, silnie hamuje transdukcję białek. W związku z tym konieczne było zastosowanie wysokiego stężenia rekombinazy Cre. W warunkach bezsurowiczych do osiągnięcia podobnej wydajności rekombinacji można zastosować mniejszą ilość białka (0,5 - 2 μM).
Wykorzystując system wektorowy pSESAME można zastosować technikę transdukcji białek w odniesieniu do innych białek, w tym czynników transkrypcyjnych, takich jak Oct4 i Sox27 oraz Scl/Tal18.
Podziękowania
Dziękujemy Oliverowi Brüstle oraz wszystkim członkom Grupy Inżynierii Komórek Macierzystych (Stem Cell Engineering Group) na Uniwersytecie w Bonn za wsparcie i cenne dyskusje. Dziękujemy Sabine Schenk za przygotowanie SDS-PAGE oraz nieustające wsparcie w trakcie realizacji projektu. Nicole Russ i Anna Magerhans zapewniły doskonałe wsparcie techniczne. Ponadto chcielibyśmy podziękować Andreasowi Bärowi i Sheili Mertens za produkcję filmu. Praca ta była finansowana z grantów Fundacji Volkswagena (Az I/77864) oraz niemieckiego Ministerstwa Edukacji i Badań (BMBF, 01 GN 0813).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| TUNER (DE3) pLacI | Novagen, EMD Millipore | 70625 | |
| Glicerol | Carl Roth GmbH | 3783.2 | |
| Na2HPO4 | Carl Roth GmbH | T876.1 | |
| Trizma Base | Sigma-Aldrich | T1503 | |
| HCl | Carl Roth GmbH | 4625.1 | |
| Imidazol | Carl Roth Gmbh | X998.4 | |
| NaCl | Carl Roth GmbH | 9265.2 | |
| Ekstrakt drożdżowy | Carl Roth GmbH | 2363.4 | |
| Trypton/Pepton | Carl Roth GmbH | 8952.4 | |
| K2HPO4 | Carl Roth Gmbh | P749.2 | |
| KH2PO4 | Carl Roth Gmbh | 3904.1 | |
| Ampicylina | Sigma-Aldrich | A9518 | |
| Karbenicylina | Sigma-Aldrich | 6344.2 | |
| HEPES | Sigma-Aldrich | H3375 | |
| Lizozym | Sigma-Aldrich | 62971 | |
| Benzonaza | Novagen, EMD Millipore | ||
| Kwas L-winowy, sól sodowa (dwusodowa) | Sigma-Aldrich | ||
| 50% zawiesina Ni-NTA | Invitrogen | R901-15 | |
| kolumny EconoPac | Bio-Rad | 732-1010 | |
| Filtr sterylny 0,22 μmμm | Whatman, GE Healthcare | ||
| Paraformaldehyd (PFA) | Sigma-Aldrich | ||
| pożywka LB | Ekstrakt z drożdży, trypton/pepton, NaCl | ||
| podłoże TB | Ekstrakt z drożdży, Trypton/Pepton, Glicerol, K2HPO4, KH2PO4 | ||
| Bufor do lizy | 50 mM Na2HPO4, 5 mM Tris, pH 7,8 | ||
| Bufor z winianu sodu (TSB) | PTB zawierający 2 M kwas L-winowy, sól sodową oraz 20 mM imidazolu | ||
| Bufor płuczący | PTB, 500 mM NaCl, 15 mM imidazol | ||
| Bufor elucyjny | PTB, 500 mM NaCl, 250 mM imidazol | ||
| Bufor wysokosolny | 600 mM NaCl, 20 mM HEPES, pH 7,4 | ||
| Bufor glicerolowy | 50% glicerolu, 500 mM NaCl, 20 mM HEPES, pH 7,4 | ||
| TrypLE™ Ekspresować | Invitrogen | ||
| ESGRO (LIF) | EMD Millipore | ||
| niepodstawowe aminokwasy egzogenne | GIBCO, by Life Technologies | 11140035 | |
| L-glutamina | GIBCO, by Life Technologies | 25030024 | |
| β-merkapto–etanol | GIBCO, by Life Technologies | 31350010 | |
| DMEM | GIBCO, by Life Technologies | 11960044 | |
| PBS | GIBCO, by Life Technologies | ||
| Surowica z płodu cielęcego (FCS) | Laboratoria PAA | ||
| roztwór barwiący X-Gal: | 4 mM K+3(FeIII(CN)6), 4 mM K4(FeII(CN)6), 2mM MgCl22 0,4 mg/ml X-Gal rozpuszczonego w PBS | ||
| K3(FeIII(CN)6) | Sigma-Aldrich | P-3367 | |
| K4 (FeII(CN)6) | Sigma-Aldrich | P-9387 | |
| MgCl22 | Sigma-Aldrich | M8266 | |
| X-Gal | Sigma-Aldrich | B4252 |
Bibliografia
- Gump, J. M., Dowdy, S. F. TAT transduction: the molecular mechanism and therapeutic prospects. Trends Mol Med. 13 (10), 443-448 (2007).
- Edenhofer, F. Protein transduction revisited: novel insights into the mechanism underlying intracellular delivery of proteins. Curr Pharm Des. 14 (34), 3628-3636 (2008).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6 (1), 7-28 (2004).
- Nolden, L. Site-specific recombination in human embryonic stem cells induced by cell-permeant Cre recombinase. Nat Methods. 3 (6), 461-467 (2006).
- Zhang, Y. Inducible site-directed recombination in mouse embryonic stem cells. Nucleic Acids Res. 24 (4), 543-548 (1996).
- Peitz, M. Enhanced purification of cell-permeant Cre and germline transmission after transduction into mouse embryonic stem cells. Genesis. 45 (8), 508-517 (2007).
- Bosnali, M., Edenhofer, F. Generation of transducible versions of transcription factors Oct4 and Sox2. Biol Chem. 389 (7), 851-861 (2008).
- Landry, J. R. Runx genes are direct targets of Scl/Tal1 in the yolk sac and fetal liver. Blood. 111 (6), 3005-3014 (2008).
Przedruki i uprawnienia
