Przedstawiamy powtarzalną metodę hodowli konfluentnych monowarstw ludzkich płodowych komórek nabłonka pigmentowego siatkówki (hfRPE), które wykazują morfologię, fizjologię, polarność oraz wzorce ekspresji białek i genów charakterystyczne dla natywnej tkanki dorosłego organizmu. Praca ta została rozszerzona o model zwierzęcy kilku chorób oczu.
Artykuł metodologiczny
Modele eksperymentalne do badania fizjologii i patofizjologii nabłonka pigmentowego siatkówki
W tym artykule
Podsumowanie
Streszczenie
Opracowaliśmy procedurę hodowli komórkowej, która pozwala na otrzymanie dużych ilości konfluencyjnych monowarstw pierwotnych hodowli ludzkiego płodowego nabłonka pigmentowego siatkówki (hfRPE) o charakterystyce morfologicznej, fizjologicznej i genetycznej odpowiadającej natywnemu ludzkiemu RPE. Hodowle komórek hfRPE wykazują silną pigmentację, a mikroskopia elektronowa ujawnia liczne mikrokosmki błony apikalnej. Kompleksy połączeń zidentyfikowano za pomocą znakowania immunofluorescencyjnego różnych białek połączeń ścisłych. Polarność nabłonkowa i funkcje tych łatwo reprodukowalnych hodowli pierwotnych ściśle przypominają wcześniej badane modele ssacze natywnego RPE, w tym ludzki. Wyniki te zostały rozszerzone o opracowanie interwencji terapeutycznych w kilku modelach zwierzęcych ludzkich chorób oka. Skupiliśmy się na strategiach usuwania nieprawidłowych gromadzeń płynu w siatkówce lub przestrzeni podsiatkówkowej. Zewnątrzkomórkowa przestrzeń podsiatkówkowa oddziela zewnętrzne segmenty fotoreceptorów od błony apikalnej RPE i ma kluczowe znaczenie dla utrzymania przylegania siatkówki oraz szeregu oddziaływań między RPE a siatkówką.
Protokół
1. Ludzka tkanka płodowa
Wszystkie badania związane z tkankami ludzkimi są prowadzone zgodnie z zasadami Deklaracji Helsińskiej oraz wytycznymi instytucjonalnej komisji rewizyjnej NIH. Gałki oczne płodu są pozyskiwane przez niezależnego dostawcę, Advanced Bioscience Resources (ABR, Alameda, CA), od przypadkowych dawców w okresie od 16 do 22 tygodnia gestacji, umieszczane w probówkach z pożywką RPMI-1640 (zapewnionych przez ABR), pakowane w lód i dostarczane priorytetową przesyłką nocną. Tkanki pozostają żywotne do 48 godzin po enukleacji.
2. Pożywka do hodowli komórkowej
Modyfikowane medium MEM-alpha (Sigma-Aldrich) jest stosowane jako medium podstawowe do przygotowania mediów zawierających 5% i 15% surowicy do hodowli komórek RPE (medium RPE; Tabela 1 poniżej).
| Nazwa | Sigma | Gibco | Ilość | Przechowywanie |
| MEM, alpha modification | M-4526 | 500 mL | +4°C | |
| Suplement N1 | N-6530 | 5 mL | +4°C | |
| Penycylina-streptomycyna | 15140-148 | 5 mL | -20°C | |
| GlutaMax - I | 35050 | 5 mL | -20°C | |
| Niezbędne aminokwasy | M-7145 | 5 mL | +4°C | |
| THT* | -80°C | |||
| Tauryna | T-0625 | 125 mg | ||
| Hydrokortyzon | H-0396 10 | 10 μg | ||
| Trijodotyronina | T-5516 | 0.0065 μg | ||
| Płodowa surowica bydlęca** | 5% lub 15% | -80°C |
Tabela 1. Składniki pożywki dla ludzkiego płodowego RPE do przygotowania 500 mL pożywki
* THT przygotowuje się poprzez rozpuszczenie tauryny, hydrokortyzonu i trijodotyroniny w 1,5 mL PBS przed sporządzeniem pożywki. Przygotowuje się wiele alikwotów, które przechowuje się w temperaturze -80°C, aby uprościć proces przygotowania pożywki hodowlanej.
** Płodowa surowica bydlęca nie pochodzi z firmy Sigma-Aldrich ani Gibco.
Płodowa surowica bydlęca używana do przygotowania pożywek pochodzi z firmy Atlanta Biologicals (Norcross, GA). Każda butelka surowicy jest inaktywowana termicznie (56°C przez 1h) przed użyciem. Aby zapewnić spójność hodowli komórkowej, duże ilości surowicy z tej samej partii są kupowane i przechowywane w -20°C do czasu wykorzystania w przygotowaniu pożywek. Rzadko wysiane komórki z konkretnej partii komórek hfRPE są hodowane w płytkach 24- lub 12-dołkowych przez kilka tygodni w pożywkach zawierających 20% FBS z różnych partii. Najszybciej rosnące, zmielanizowane komórki o najbardziej klasycznej morfologii RPE (brukowej) wskazują na odpowiednią partię surowicy, która może zostać zastosowana w hodowli komórkowej.
Pożywka do hodowli komórek zawiera również: suplement N1 (Sigma-Aldrich) 1:100 mL/mL, GlutaMax/penicylinę-streptomycynę 1:100 mL/mL (Gibco) oraz roztwór nieessentialnych aminokwasów (Sigma-Aldrich) 1:100 mL/mL. Dodatkowo, wcześniej przygotowuje się mieszaninę hydrokortyzonu (20 μg/L), tauryny (250 mg/L) i trijodotyroniny (0,013 μg/L) (THT) poprzez rozpuszczenie tych trzech składników w PBS do końcowego stężenia 1:500 (mL/mL). Alikwoty THT przechowuje się w temperaturze 80°C do momentu dodania ich do pożywki RPE.
3. Hodowla komórkowa
Po otrzymaniu nienaruszone gałki oczne płucze się w roztworze antybiotyku i antymykotyku (rozcieńczonym 10X; kat. nr 15240-096; Invitrogen) z dodatkiem gentamycyny (1 mg/mL) przez 3 do 5 minut (Rysunek 1 poniżej).

Rysunek 1. Po inkubacji antybiotyki płucze się dwukrotnie pożywką taką jak HBSS lub PBS. Pojedynczą gałkę oczną przenosi się do 10 cm szalki Petriego pokrytej Sylgard-184 (WPI) i unieruchamia za pomocą igieł 27G. Za pomocą noża ClearCut sideport (Alcon) wykonuje się nacięcie przez twardówkę poniżej ciała rzęskowego (1/3 odległości od równika oka do powierzchni przedniej). Nacięcie to służy do rozpoczęcia cięcia okrężnego w celu usunięcia przedniej części oka. Cięcie to wykonuje się za pomocą zakrzywionych nożyczek do tęczówki z powłoką z węglika wolframu, z jednym ostrzem ząbkowanym (FST). Przed usunięciem przedniej części oka wykonuje się cięcie przez ciało szkłowate, aby uniknąć odwarstwienia siatkówki od RPE w biegunie tylnym. Po usunięciu przedniej części oka, biegun tylny inkubuje się z roztworem dyspazy-I (2 U/mL, kat. nr 04942086001; Roche Diagnostics, Indianapolis, IN) w pożywce zawierającej 5% surowicy przez 40-60 minut w temperaturze 37°C i 5% CO2. Poy traktowaniu dyspazą, bieguny tylne przenosi się do HBSS w szalkach Petriego z silikonową podkładką (Sylgard 184; Dow Corning, Midland, MI) i rozczłonkowuje na ćwiartki lub większe kawałki, aby odpowiednio spłaszczyć tkanki. Następnie siatkówkę ostrożnie usuwa się pęsetą. Jednowarstwy RPE oddziela się w postaci płatów i zbiera bezpośrednio do zimnego roztworu trypsyny-EDTA (Gibco, #25200-056). Po zebraniu RPE, probówki z tkankami w trypsynie-EDTA szczelnie zamyka się i przenosi do łaźni wodnej na 10-15 min w 37°C. Po 10 min inkubacji probówki energicznie wstrząsa się, aby rozdzielić RPE na małe skupiska. Jeśli rozdzielenie nie jest pełne, probówki umieszcza się ponownie w łaźni wodnej na kolejne 5 min. Po inkubacji z trypsyną-EDTA sprawdza się probówki pod kątem ewentualnych nierozpuszczonych mieszanych skupisk komórkowych. Wszelkie zaobserwowane skupiska usuwa się za pomocą szklanej pipety Pasteura z cienką końcówką. Po odwirowaniu (1,4 rpm w wirówce klinicznej przez 4 min), komórki hfRPE resuspenduje się w 15% pożywce RPE, a następnie przenosi do kolb Primaria (przykład: kat. nr 08-772-45; Fisher Scientific, Pittsburgh, PA). Po 1 dniu pożywkę tę wymienia się na pożywkę RPE zawierającą 5% surowicy, a kolejne wymiany przeprowadza się co 2 do 3 dni. Po 3 do 4 tygodniach komórki stają się konfluentne i jednorodnie upigmentowane. Następnie poddaje się je trypsynizacji w 0,25% trypsyny-EDTA przez 10 do 15 minut, resuspenduje w pożywce do hodowli komórek RPE zawierającej 15% surowicy i wysiewa na przejrzyste wkłady do hodowli komórkowych w zagęszczeniu od 150 do 200K komórek na studzienkę (Transwell; Corning Costar, Corning, NY), używając wkładów o średnicy 12 mm, z membranami poliestrowymi o porach 0,4 µm (przykład: kat. nr 07-200-161, Fisher Scientific). Przed wysiewaniem studzienki pokryto ludzką macierzą zewnątrzkomórkową (10 μg w 150 μL HBSS na studzienkę, kat. nr 354237; BD Biosciences, Franklin Lakes, NJ) i utwardzono światłem UV w komorze laminarnej przez 2 godziny. W niektórych przypadkach procedurę trypsynizacji powtarzano drugi raz, aby zebrać komórki, które nie oddzieliły się po pierwszej trypsynizacji. Ten sam protokół (z wyłączeniem pokrywania ECM) zastosowano do hodowli komórek w kolbach w celu uzyskania populacji komórek P1. Komórki te wykorzystywano w eksperymentach, gdy ich całkowita oporność tkankowa wynosiła ≥ 200 Ω•cm2 i były one jednorodnie upigmentowane.
Kliknij tutaj, aby wyświetlić powiększoną rysunk 1.
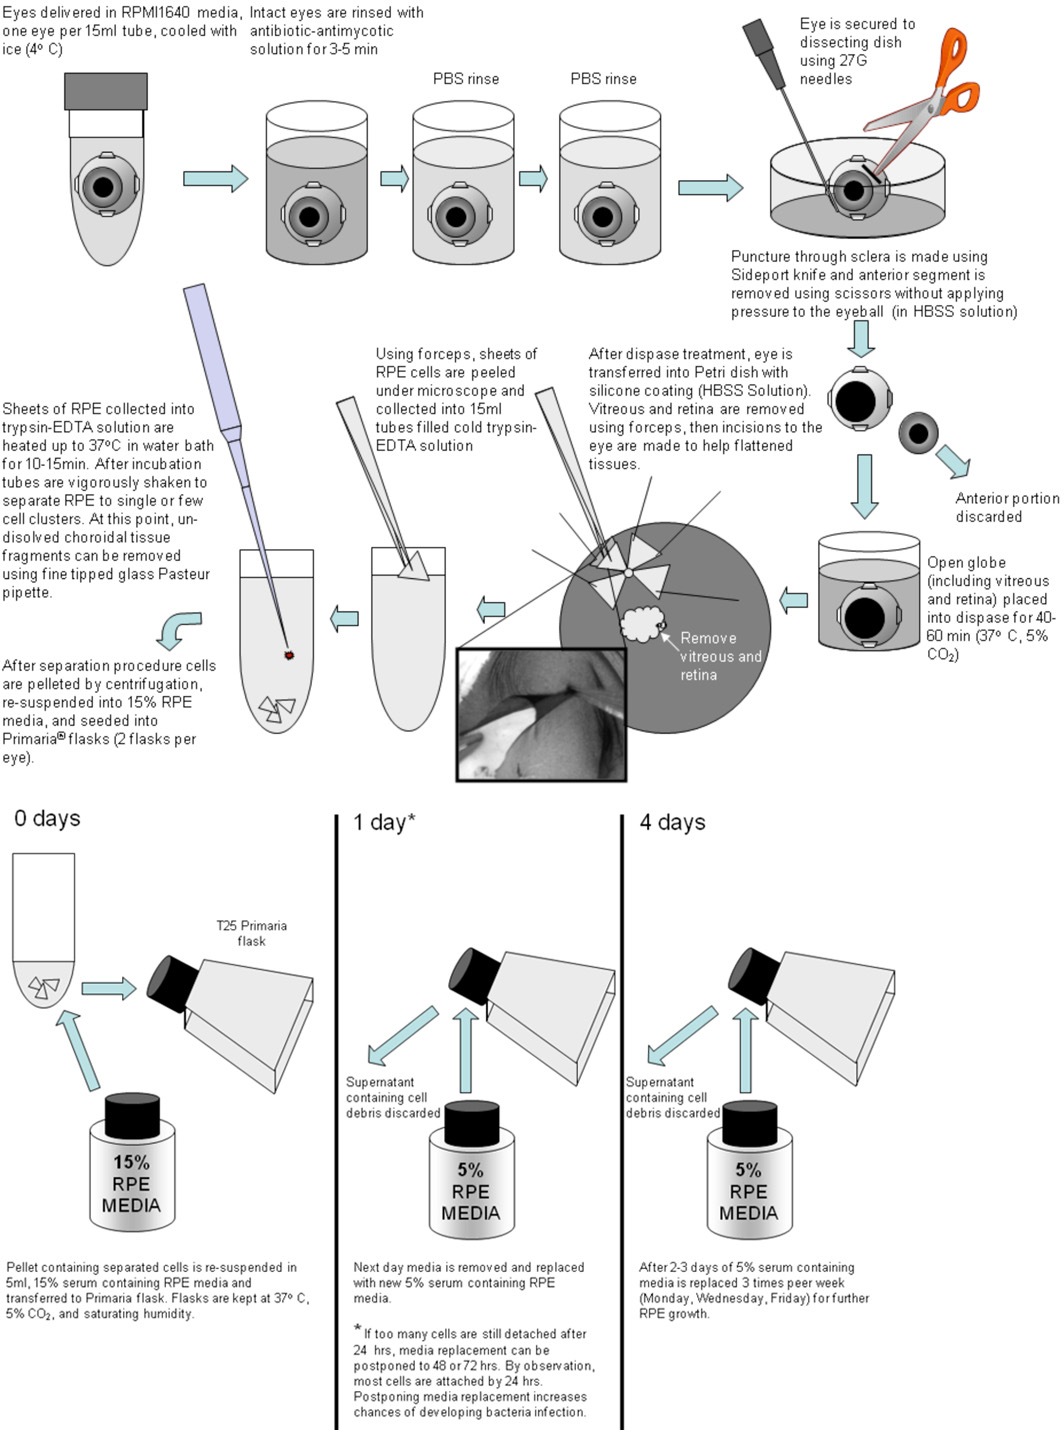
4. Procedury krok po kroku
- Przygotuj płytkę 12-dołkową z wieloma roztworami (dla każdego oka potrzebne są 4 dołki):
- dodaj 10x roztwór antybiotyk-antymykotyk – 1 dołek/oko
- dodaj roztwór PBS/HBSS do płukania – 2 dołki/oko
- dodaj roztwór dispazy – 1 dołek/oko
- Przygotuj szalkę Petriego do sekcji, rozpakowując 5 igieł do unieruchamiania i wypełniając ją HBSS
- Wyjmij oczy i umieść je w roztworze antybiotyk-antymykotyku na 3-5 min (przygotowanym w kroku 1)
- Opłucz oczy w dwóch dołkach (przygotowanych w kroku 1) roztworem PBS/HBSS, a następnie przenieś je do szalki do sekcji.
- Odetnij nadmiar mięśni i tkanek łącznych wokół oka
- Używając igieł 27G, unieruchom (przypnij do silikonowej podstawy) oczy w szalce do sekcji, ustawiając je tak, aby rogówka była skierowana do góry.
- Używając noża bocznego, wykonaj nacięcie poniżej rogówki w miejscu, w którym rozpocznie się cięcie okrężne
- Używając nożyczek do tęczówki, wykonaj cięcie wokół oka, a następnie tymi samymi nożyczkami przetnij ciało szkliste i odchyl przednią część oka.
Uwaga: w krokach od 3 do 8 unikaj wywierania nadmiernego nacisku mechanicznego na gałkę oczną. - Przenieś otwarte oko do roztworu dispazy (przygotowanego w kroku 1)
- Inkubuj skorupę oka przez 40-60 minut w temperaturze 37°C przy 5 % CO2
- Wymień roztwór HBSS w szalce do sekcji na świeży.
- Przenieś oko z roztworu dispazy do szalki do sekcji.
- Ułóż oko w szalce Petriego (skorupa gałki ocznej skierowana do góry) i unieruchom za pomocą dwóch igieł 27G.
- Delikatnie unieś częściowo oddzieloną siatkówkę i za pomocą nożyczek do siatkówki odetnij siatkówkę od nerwu wzrokowego. Usuń siatkówkę.
- Używając nożyczek do tęczówki, wykonaj jedno nacięcie od obwodu oka w stronę nerwu wzrokowego.
- Używając wszystkich pięciu igieł 27G, spłaszcz oko, tak aby warstwa RPE była dobrze rozciągnięta.
- Używając nożyczek do siatkówki, wykonaj cięcie okrężne wokół nerwu wzrokowego, oddzielając warstwę RPE od miejsca jej przyczepu do nerwu wzrokowego.
Uwaga: kroki 13-17 można wykonać przy małym powiększeniu lub bez użycia stereomikroskopu - Ustaw stereomikroskop na powiększenie 250x lub większe i znajdź krawędź płata RPE w pobliżu nerwu wzrokowego wzdłuż nacięcia wykonanego nożyczkami do tęczówki.
- Używając dwóch pincet, oddziel błonę RPE-Bruch’a od warstwy tkanki naczyniówkowej. Może być wymagane kilka prób, aby zlokalizować obszar wzdłuż krawędzi, w którym połączenie RPE z naczyniówką jest najsłabsze.
- Umieść płaty RPE w zimnym roztworze trypsyny-EDTA w probówce 15 mL
- Po zebraniu RPE zamknij probówki z tkankami w trypsynie-EDTA i przenieś je do kąpieli wodnej na 10-15 min w temperaturze 37°C.
- Po 10 min inkubacji energicznie potrząśnij probówkami 15 mL, aby rozdzielić RPE na małe skupiska. Jeśli separacja nie jest pełna, umieść probówki ponownie w kąpieli wodnej na kolejne 5 min.
- Sprawdź probówki pod kątem obecności nierozpuszczonych mieszanych skupisk komórek. Wszelkie zaobserwowane skupiska należy usunąć za pomocą szklanej pipety Pasteura z cienkim końcem.
- Odwirowuj (1.4 rpm w wirówce klinicznej przez 4 min) komórki hfRPE, usuń nadsącz i resuspenduj komórki w 15% pożywce RPE (łącznie 9 mL)
- Przenieś 3 mL zawiesiny komórkowej do kolb Primaria, dodaj 2 mL świeżej 15% pożywki RPE i umieść kolbę w inkubatorze do następnego dnia (37°C, 5% CO2)
5. Reprezentatywne wyniki
Walidacja funkcjonalna hodowli komórek hfRPE
W poprzednich eksperymentach wykorzystaliśmy te kultury pierwotne do określenia ekspresji, polaryzacji i funkcji białek transportowych błony plazmatycznej oraz do zidentyfikowania specyficznych szlaków sygnalizacyjnych regulujących funkcję RPE 1-11. Nagromadzone cechy te stanowią zestaw walidacyjny właściwości, które można zastosować do każdego pokolenia komórek. Opisane poniżej eksperymenty pozwalają zidentyfikować białka determinujące transepitelialny transport płynów oraz integralność drogi parakomórkowej. Te eksperymenty in vitro zostały zwalidowane w modelu zwierzęcym ponownego przytwierdzenia siatkówki 6.

Rysunek 2. Lokalizacja CFTR w komórkach hfRPE. Górny panel po lewej: CFTR wykryto w komórkach hfRPE z wykorzystaniem ekstraktów wzbogaconych w błony. M, marker masy cząsteczkowej; ścieżka 1, główna dojrzała forma (prążek C) oraz formy niedojrzałe (prążki A i B). Dolny panel środkowy: lokalizacja CFTR za pomocą immunofluorescencji (etykieta zielona). Górny panel po prawej: powiększony widok przekroju przez płaszczyznę z przedstawiający projekcję maksymalnego natężenia wzdłuż osi z. ZO-1 (etykieta czerwona) służy jako marker połączeń ścisłych wyznaczający stronę apikalną i bazolateralną RPE. DAPI (niebieski) barwi jądra położone blisko błony podstawnej. ZO-1 widoczny jest jako kolor żółto-pomarańczowy, ponieważ jego czerwona etykieta nakłada się na zieloną fluorescencję CFTR.

Rycina 3. Fizjologiczne zmiany indukowane przez IFNγ w hfRPE. A: dodanie IFNγ do kąpieli bazalnej zwiększyło transepitelialny transport płynów (Jv) przez monowarstwę pierwotnych, hodowanych komórek hfRPE. Jv przedstawiono jako funkcję czasu na górnym wykresie, gdzie dodatnie wartości wskazują na netto absorpcję płynów (z kąpieli apikalnej do bazalnej); potencjał transepitelialny (TEP) oraz całkowity opór tkanki (RT) przedstawiono jako funkcję czasu na dolnych wykresach. B: dodanie CFTRinh-172(5 μM) do kąpieli bazalnej zahamowało stymulowany przez IFNγ wzrost Jv.
Poniżej przedstawiono przykład eksperymentów na modelu zwierzęcym potwierdzających wyniki uzyskane in vitro dla hfRPE. W tym doświadczeniu sztucznie wywołane odwarstwienie siatkówki uległo znacznemu ograniczeniu po dodaniu IFNg na zewnętrzną powierzchnię oka (Rysunek 4 A,B). Efekt ten można częściowo zablokować poprzez: (1) dodanie blokera cAMP (Rysunek 4D); (2) całkowicie zablokować po dodaniu blokerów JAK+cAMP. Obrazy poniżej zostały uzyskane przy użyciu skanera OCT.

Rysunek 4. Eksperymenty z odwarstwieniem siatkówki in vivo. Procedury dla tych eksperymentów in vivo zostały wcześniej szczegółowo opisane 6. W badaniach tych odwarstwienia siatkówki w oku szczura indukowano poprzez wstrzyknięcie 0,5-3 μL zmodyfikowanego roztworu PBS do przestrzeni podsiatkówkowej (SRS), samodzielnie lub w połączeniu z inhibitorami szlaków JAK-STAT i PKA. Każdy eksperyment obejmował wstępny okres kontrolny trwający 40-70 min po wywołaniu odwarstwienia siatkówki. W tym czasie mierzono szybkość zmiany objętości pęcherza, aby zapewnić jego stabilność. Do pomiaru przebiegu czasowego zmian objętości w SRS wykorzystano obrazowanie za pomocą optycznej koherentnej tomografii (Institute of Applied Physics, Russian Academy of Science, Nizhniy Novgorod, Rosja).
Przebieg czasowy zmiany objętości ponownego przylegania mierzono za pomocą optycznej koherentnej tomografii (OCT). Obrazy OCT z 4 różnych eksperymentów (panele po lewej stronie; A-D) pokazują zmianę rozmiarów odwarstwienia (strzałki w A, B i D) po dodaniu IFNγ na powierzchnię przednią przez 40-70 min. Panele A i B pokazują, że IFNγ zwiększył Jv z wartości kontrolnej (≈ 2 μl•cm2•hr-1) odpowiednio do 14 i 12 μl•cm2•hr-1. Po dodaniu inhibitorów szlaku JAK-STAT oraz PKA (C i D), indukowane przez IFNγ tempo absorpcji zostało znacząco zredukowane odpowiednio do 0,2 i 7,9 μl•cm2•hr-1. Strzałki wskazują granicę pęcherzyka w porównaniu z obszarem zamkniętym w przerywanej linii (objętość początkowa). Prawa strona rysunku: górny panel – podsumowanie zmierzonych wartości Jv z kilku eksperymentów; środkowy panel – film (kliknij tutaj); dolny panel – przekroje 3D eksperymentu podsumowanego w B. Kolor pseudobarwny niebieski wskazuje zakres przestrzenny odwarstwienia w t = 0 i 40 min po dodaniu INFγ.
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z wytycznymi Association for Research in Vision and Ophthalmology. Protokół został zatwierdzony przez Komitet ds. Opieki i Wykorzystania Zwierząt National Institutes of Health.
Dyskusja
W niniejszych eksperymentach opisujemy dodatkowe modyfikacje naszych wcześniej opublikowanych technik 3, zaprojektowane w celu usprawnienia licznych etapów niezbędnych do uzyskania powtarzalnych pierwotnych kultur hfRPE z większą liczbą dostępnych komórek z jednego oka. Każda zmiana w pierwotnej procedurze została rygorystycznie przetestowana w wielu eksperymentach z zakresu fizjologii i biologii molekularnej, aby upewnić się, że modyfikacje te nie wprowadziły artefaktów, a następnie była ona stale weryfikowana przez wiele innych laboratoriów wykorzystujących te komórki. Na koniec przeprowadzono dodatkowe eksperymenty w celu porównania wyników in vitro z podobnymi zaburzeniami w modelach zwierzęcych.
Oświadczenia
Nie zadeklarowano żadnych konfliktów interesów.
Podziękowania
Dziękujemy członkom laboratorium: Jeffreyowi Adijanto, Tinie Banzon, Rong Li, Qin Wan, Congxiao Zhang, Jing Zhao, Connie Zhi, Awaisowi Zia oraz Natalii Strunnikovej za pomoc w charakterystyce tych kultur komórkowych. Szczególne podziękowania kierujemy do Jing Zhao, Connie Zhi i Tiny Banzon za pomoc w utrzymywaniu dużych zapasów kultur komórkowych.
Praca ta była wspierana przez Program Badań Wewnętrznych Narodowych Instytutów Zdrowia (National Institutes of Health Intramural Research Program).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Instrumenty niezbędne do protokołu sekcji | |||
| Stereomikroskop – dowolny z dostępnym powiększeniem x250 wymaganym do sekcji | |||
| Szalka do sekcji – np. Kimble 100 x 20mm #23062 (jedna na sekcję) z dowolnego źródła | |||
| Sylgard 184 – WPI Kat. #SYLG184* | |||
| * Aby przygotować szalkę do sekcji, należy postępować zgodnie z dołączoną instrukcją mieszania Sylgard 184, wlać wymieszany ciekły elastomer do szalki Petriego, tworząc warstwę o grubości 5-8mm. Pozostawić elastomer do utwardzenia przez co najmniej 24h. Szalka z utwardzonym elastomerem może być sterylizowana 70% etanolem i używana wielokrotnie (~100 razy) | |||
| Igły 27 G z B-D PrecissionGlide 1¼ długości (5 na sekcję) z dowolnego źródła | |||
| Roztwór HBSS 1X zawierający sole Ca i Mg – GIBCO Kat.#14025 500ml (nadaje się do wielu sekcji) | |||
| Nożyczki tęczowe (Iris), ostrze węglikowe ząbkowane, zakrzywione – FST Kat.# 14559-11 (jedne) | |||
| Nożyczki siatkówkowe – Katena Kat.#K4-5300 (jedne) | |||
| Pinceta – np. pęseta Dumont #5 z polerowanymi końcówkami z WPI Kat.#500085 (2 sztuki) | |||
| Nóż do bocznego nacięcia (Sideport knife) – Alcon, ClearCut 1mm, podwójna ścięcie, kątowy Kat.#8065921540 | |||
| Probówka do wirowania 15ml – (jedna na oko) z dowolnego źródła | |||
| Szklana pipeta Pasteura – (jedna na sekcję) z dowolnego źródła | |||
| Płytka 12-dołkowa (jedna na sekcję) z dowolnego źródła | |||
| Kolba Primaria 25cm2 – (2-3 na oko) z dowolnego źródła |
Bibliografia
- Bharti, K., Miller, S. S., Arnheiter, H. The new paradigm: Retinal pigment epithelium cells generated from embryonic stem cells or induced pluripotent cells. Pigment Cell & Melanoma Research. , Forthcoming Forthcoming.
- Strunnikova, N. V., Maminishkis, A., Barb, J. J., Wang, F., Zhi, C., Sergeev, Y., Chen, W., Edwards, A. O., Stambolian, D., Abecasis, G., Swaroop, A., Munson, P. J., Miller, S. S., S, S. Transcriptome analysis and molecular signature of human retinal pigment epithelium. Hum Mol Genet. 19 (12), 2468-2486 (2010).
- Miller, S. S., Maminishkis, A., Li, R., Adijanto, J. Chapter 184: Phototransduction: RPE transport Retina Phototransduction: RPE transport. Encyclopedia of the Eye. , Elsevier. 2540-2540 (2010).
- Bryant, D. M., Mostov, K. E. From cells to organs: Building polarized tissue. Nature Reviews. Molecular Cell Biology. 9 (11), 887-901 (2008).
- Maminishkis, A., Chen, S., Jalickee, S., Banzon, T., Shi, G., Wang, F. E., Ehalt, T., Hammer, J. A., Miller, S. S. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47, 3612-3624 (2006).
- Shi, G., Maminishkis, A., Banzon, T., Jalickee, S., Li, R., Hammer, J., Miller, S. S. Control of chemokine gradients by the retinal pigment epithelium. Invest Ophthalmol Vis Sci. 49, 4620-4630 (2008).
- Economopoulou, M., Hammer, J., Wang, F. E., Fariss, R., Maminishkis, A., Miller, S. S. Expression, localization, and function of junctional adhesion molecule-C (JAM-C) in human retinal pigment epithelium. Invest Ophthalmol Vis Sci. 50 (3), 1454-1463 (2008).
- Li, R., Maminishkis, A., Banzon, T., Wan, Q., Jalickee, S., Chen, S., Miller, S. S. IFN{gamma} Regulates Retinal Pigment Epithelial Fluid Transport. Am J Physiol Cell Physiol. 297, C1452-C1465 (2009).
- Li, R., Maminishkis, A., Wang, F. E., Miller, S. S. PDGF-C and -D induced proliferation/migration of human RPE is abolished by inflammatory cytokines. Invest Ophthalmol Vis Sci. 48, 5722-5732 (2007).
- Maminishkis, A., Jalickee, S., Blaug, S. A., Rymer, J., Yerxa, B. R., Peterson, W. M., Miller, S. S. The P2Y(2) receptor agonist INS37217 stimulates RPE fluid transport in vitro and retinal reattachment in rat. Invest Ophthalmol Vis Sci. 43, 3555-3566 (2002).
- Wang, F. E., Zhang, C., Maminishkis, A., Dong, L., Zhi, C., Li, R., Zhao, J., Majerciak, V., Gaur, A. B., Chen, S. MicroRNA-204/211 alters epithelial physiology. FASEB J. 24, (2010).
- Adijanto, J., Banzon, T., Jalickee, S., Wang, N. S., Miller, S. S. CO2-induced ion and fluid transport in human retinal pigment epithelium. J Gen Physiol. 133, 603-622 (2009).
- Li, R., Maminishkis, A., Zahn, G., Vossmeyer, D., Miller, S. S. Integrin alpha5beta1 mediates attachment, migration, and proliferation in human retinal pigment epithelium: relevance for proliferative retinal disease. Invest Ophthalmol Vis Sci. 50, 5988-5996 (2009).
- Peterson, W. M., Meggyesy, C., Yu, K., Miller, S. S. Extracellular ATP activates calcium signaling, ion, and fluid transport in retinal pigment epithelium. J Neurosci. 17, 2324-2337 (1997).
- Voloboueva, L. A., Liu, J., Suh, J. H., Ames, B. N., Miller, S. S. R)-alpha-lipoic acid protects retinal pigment epithelial cells from oxidative damage. Invest Ophthalmol Vis Sci. 46, 4302-4310 (2005).
Przedruki i uprawnienia
