Film demonstruje oczyszczanie i zagęszczanie cząstek wirusa z klarownego płynu alantoidowego pobranego z zarodkowych jaj kurzych zainfekowanych wirusem. Przedstawiono serię etapów filtracji i separacji, w tym filtrację wgłębną, filtrację przepływową wzdłużną oraz ultrawirowanie w gradiencie gęstości w celu wyizolowania nienaruszonych wirusów. Frakcja bogata w wirusy jest następnie poddawana dializie w celu usunięcia pozostałych soli i składników gradientu drogą dyfuzji, a następnie zagęszczana przy użyciu roztworu hipertonicznego drogą osmozy. Wynikiem jest oczyszczony preparat wirusa o wysokim mianie, odpowiedni do zastosowań eksperymentalnych.
Artykuł metodologiczny
Oczyszczanie wirusa z płynu alantoicznego zarodkowych jaj kurzych
71 wyświetleń
⸱
31 sierpnia 2026
W tym artykule
Streszczenie
Protokół
1. Amplifikacja wirusa choroby Newcastle (NDV) z wykorzystaniem zarodkowych jaj kurzych wolnych od określonych patogenów
- Inokulacja zarodkowych jaj kurzych wolnych od swoistych patogenów (SPF)
UWAGA: Zazwyczaj do wytworzenia jednej partii wirusa choroby Nowego Zamku (NDV) klasy in vivo wykorzystuje się osiem tuzinów zarodkowych jaj SPF. Należy zamówić jeden lub dwa dodatkowe tuziny jaj, aby uwzględnić uszkodzenia podczas transportu oraz zmienność żywotności.- Po otrzymaniu zarodkowych jaj SPF inkubować je w inkubatorze do jaj w temperaturze 37 °C i 60% wilgotności przez 9 dni. Należy upewnić się, że inkubator jest ustawiony na automatyczne kołysanie/obracanie jaj co godzinę.
UWAGA: Jaja można przechowywać w temperaturze pokojowej do 24 h lub w 4 °C do 72 h; może to jednak obniżyć żywotność zarodków. - Po 8–11 dniach inkubacji (idealnie w 9. dniu) przeprowadzić prześwietlanie jaj w celu oceny żywotności zarodków. Wskaźnikami żywotnych zarodków są sieć naczyń krwionośnych (Rycina 1A) oraz ruch zarodka. Jaja pozbawione tych cech należy utylizować (Rycina 1B).
- Na żywotnych jajach zaznaczyć ołówkiem znak „X” na granicy między komorą powietrzną a zarodkiem (Rycina 1A). Należy upewnić się, że miejsce to nie spowoduje perforacji naczyń krwionośnych. Zaznaczone jaja należy zwrócić do inkubatora na czas przygotowania inokulum.
- Obliczyć ilość wirusa niezbędną do inokulacji wszystkich zarodkowych jaj SPF. Każde jajo powinno otrzymać 100 jednostek tworzących płytki (PFU) wirusa w objętości 100 µL; wirusa należy rozcieńczyć w soli fizjologicznej z buforem fosforanowym (PBS) do stężenia 1 × 10³ PFU/mL. Należy przygotować dodatkowe 20% inokulum, aby zrekompensować niedokładności podczas podawania wirusa.
- Używając ściereczki antystatycznej, oczyścić górną część zaznaczonych jaj 10% roztworem jodu rozcieńczonym w 70% etanolu. Odczekać około 1–2 minuty do wyschnięcia roztworu.
- Ostrożnie przebić skorupkę za pomocą sterylnej, ostrej pęsety. Pęsetę należy dezynfekować w 70% etanolu pomiędzy kolejnymi jajami.
- Używając strzykawki 1 mL i igły 25 G, wstrzyknąć 100 µL inokulum przygotowanego w kroku 1.1.4 do jamy chorioalantoidalnej (Rycina 1C). Igłę należy wprowadzać pod kątem bliskim 90° do jaja, wbijając ją tuż w górną część błony chorioalantoidalnej.
- Po inokulacji zakryć miejsce nakłucia lakierem do paznokci i zwrócić jaja do inkubatora. Ustawienie kołysania powinno pozostać włączone (ON) do 24 h po inokulacji.
- Sprawdzić żywotność jaj 24 h po inokulacji. Odrzucić jaja martwe, w których brak naczyń w błonie chorioalantoidalnej oraz brak ruchu zarodka (Rycina 1B).
UWAGA: Jaja te obumarły w wyniku procesu inokulacji, a nie z powodu NDV. - Zwrócić jaja do inkubatora z wyłączoną (OFF) funkcją kołysania, aby zapobiec zanieczyszczeniu płynu alantoidalnego białkami jaja.
- Kontrolować jaja co 12–24 h zgodnie z opisem w kroku 1.1.9 w celu zidentyfikowania martwych osobników. Jaja, które obumrą po 24 h od inokulacji, przenieść do 4 °C, aby zminimalizować autolizę. Płyn alantoidalny należy zebrać w ciągu 2–12 h od schłodzenia.
- Inkubować jaja przez co najmniej 72 h.
UWAGA: W przypadku propagacji szczepu mezogennego NDV optymalny czas inkubacji wynosi 60–72 h, ponieważ przedłużona inkubacja może utrudnić proces oczyszczania z powodu zmniejszonej klarowności płynu alantoidalnego. Kwestia ta nie jest tak istotna przy propagacji szczepów lentogennych NDV, ponieważ potrzebują one znacznie więcej czasu na zabicie zarodka. - Po odpowiednim okresie inkubacji przenieść pozostałe jaja do 4 °C na 2–12 h przed zbiorem płynu alantoidalnego.
- Po otrzymaniu zarodkowych jaj SPF inkubować je w inkubatorze do jaj w temperaturze 37 °C i 60% wilgotności przez 9 dni. Należy upewnić się, że inkubator jest ustawiony na automatyczne kołysanie/obracanie jaj co godzinę.
- Zbiór płynu alantoidalnego zawierającego NDV
- Przenieść schłodzone jaja do komory z laminarnym przepływem powietrza. Oczyścić górną część jaj 70% etanolem.
- Używając sterylnej pęsety i nożyczek chirurgicznych, otworzyć szczytową stronę jaja w miejscu znajdującej się komory powietrznej.
- Usunąć skorupkę, aby odsłonić błonę chorioalantoidalną (Rycina 1D).
- Ostrożnie przebić błonę i odsunąć ją, aby odsłonić jamę alantoidalną (Rycina 1E). Należy uważać, aby przypadkowo nie przebić pęcherzyka żółtkowego, co zniszczyłoby próbkę.
- Używając pęsety tępokrawędzistej, chwycić zarodek i otworzyć pęcherzyk zarodkowy.
UWAGA: Płyn wewnątrz pęcherzyka zarodkowego również zawiera NDV. - Docisnąć zarodek pęsetą i zebrać płyn alantoidalny za pomocą pipety serologicznej 10 mL.
- Przechowywać płyn alantoidalny w lodzie w stożkowych probówkach 15 mL do czasu klarowania.
UWAGA: Jeśli płyn alantoidalny jest żółty, oznacza to uszkodzenie pęcherzyka żółtkowego i płyn należy utylizować. - Wirować probówki stożkowe z płynem alantoidalnym przy 1 500 × g przez 10 min w 4 °C.
- Punkt przerwania: Rozdzielić sklarowany płyn alantoidalny do probówek stożkowych 50 mL i przechowywać w -80 °C w celu długotrwałego przechowywania (np. od kilku tygodni do kilku miesięcy), uzupełniając płyn sacharozą do stężenia końcowego 5%, aby chronić wirusa przed szkodliwym działaniem zamrażania i rozmrażania. Alternatywnie, do krótkotrwałego przechowywania (np. 1–3 dni), uzupełnić płyn alantoidalny sacharozą (końcowe 5%) lub 3× buforem mannitolowo-lizynowym (ML) (15% mannitolu, 3% lizyny), aby uzyskać stężenie końcowe 1× (5% mannitolu, 1% lizyny) przed przechowywaniem w 4 °C.
2. Oczyszczanie NDV z płynu alantoisowego
- Filtracja wgłębna płynu alantoicznego
- Przechowywać klarowany płyn allantois w temperaturze -80 °C i rozmrozić go w temperaturze 4 °C wieczorem w przeddzień oczyszczania.
- W komorze bezpieczeństwa biologicznego przygotować układ przewodów i pompę perystaltyczną zgodnie z przedstawionym w Rycina 2.
- Jeśli nie zostało to jeszcze wykonane, połączyć płyn allantoiczny z 3× bufor ML do stężenia końcowego 1×.
- Przed podłączeniem filtra głębinowego należy wysterylizować przewody, przepuszczając przez układ do naczynia z odpadami 50 ml 0,5 M wodorotlenku sodu (NaOH).
- Przepłucz dreny, przepuszczając 100 ml sterylnej wody klasy molekularnej przez system do naczynia na odpady.
UWAGA: Ponieważ NaOH inaktywuje NDV, ważne jest, aby linie zostały odpowiednio przepłukane przed wprowadzeniem zawierającego wirusa płynu alantoicznego. - Przygotuj system, przepuszczając przez niego 50 ml PBS; zatrzymaj pompę, gdy w probówce pozostanie około 5 ml PBS.
- Zamocuj filtr głębinowy o wielkości porów 1-3 µM stopień zatrzymania odpowiedni do rurek i zdejmij drugą nasadkę ze strony apikalnej filtra głębinowego, aby go odpowietrzyć. Rozpocznij przepuszczanie dodatkowych 50 mL PBS przez system.
- Gdy PBS zacznie wypływać przez otwór odpowietrzający na górze filtra, należy zamknąć port i kontynuować przepływ PBS przez linie.
UWAGA: Dopuszczalne są niewielkie pęcherzyki powietrza, jednak obecność dużych ilości powietrza będzie wymagać ponownego odpowietrzenia filtra, zgodnie z opisem w krokach 2.1.7 i 2.1.8. - Zatrzymać pompę, gdy w probówce pozostanie około 5 ml PBS.
- Należy zastąpić naczynie na odpady nowym sterylnym naczyniem do zbierania i rozpocząć przepuszczanie płynu allantois przez filtr głębinowy.
UWAGA: Ciśnienie nie powinno przekraczać 10 psi, ponieważ może to doprowadzić do ścinania wirusa. Ciśnienie można regulować poprzez zmniejszanie lub zwiększanie szybkości przepływu pompy. Jeśli ciśnienie zacznie przekraczać 10 psi, a szybkości przepływu nie można już dalej zmniejszyć, należy zastosować nowy filtr wgłębny. W takim przypadku przed wznowieniem przepływu płynu alantoicznego należy wykonać kroki 2.1.6–2.1.8. - Gdy cały płyn alantoisowy przejdzie przez filtr, przepuść 50 ml 1× bufor ML przez linie w celu maksymalizacji odzysku wirusa.
- Zbierać ciecz do momentu, aż linie wyschną. Przechowywać wirusa przez noc lub do 36 h w temperaturze 4 °C.
UWAGA: Po przeprowadzeniu filtracji wgłębnej wirusa, należy kontynuować proces oczyszczania w ciągu 36 h od zakończenia tego etapu. - Odłącz filtr głębinowy i zdezynfekuj przewody, przepuszczając 100 ml 0,5 M NaOH oraz podchlorynu sodu o stężeniu 400 ppm, uprzednio podgrzanych do 42 °C przez system przed przechowywaniem w 0,5 M NaOH.
- Filtracja przepływowa styczna w celu zagęszczenia NDV
- Zmontować elementy kasety zgodnie z przedstawionym na Rycina 3A w komorze bezpieczeństwa biologicznego.
UWAGA: Kolektor i płyta końcowa powinny zostać umyte detergentem i wysuszone przed użyciem. Silikonowe uszczelki są wielorazowe i powinny być przechowywane wraz z kasetą w 0,5 M NaOH. - Skonfiguruj system filtracji przepływowej (TFF, tzw. filtracji krzyżowej) w konfiguracji „otwartej” (Rycina 3B).
- Jeśli kaseta jest używana po raz pierwszy, należy złożyć kasetę TFF w konfiguracji do elucji i przepłukać ją 100 ml sterylnej wody o czystości molekularnej (Rysunek 3C).
- Gdy w zbiorniku pozostanie jedynie 5 ml wody, należy zatrzymać pompę i zmienić konfigurację systemu TFF na układ zamknięty (Rycina 3D).
- Dodać 100 ml 0,5 M NaOH z dodatkiem 400 ppm wybielacza, uprzednio podgrzanych do 42 °C do zbiornika i pozostawić w obiegu systemowym przez 30–60 min.
- Wstrzymać przepływ i przywrócić system TFF do konfiguracji elucyjnej, a następnie wznowić przepływ w celu elucji roztworu czyszczącego.
- Gdy w zbiorniku pozostanie około 5 ml cieczy, zatrzymaj pompę i dodaj 100 ml sterylnej wody klasy molekularnej w celu przepłukania układu.
- Gdy w zbiorniku pozostanie około 5 ml cieczy, należy zatrzymać pompę i ustawić system TFF w konfiguracji otwartej (Rycina 3B). Kontynuuj krok 2.2.3.
- Sterylizujemy kasetę i przewody, przepuszczając przez system 100 ml 0,5 M NaOH za pomocą pompy perystaltycznej. Należy dopilnować, aby ciśnienie nie przekroczyło 30 psi w celu zachowania integralności kasety.
- Wstrzymaj pracę pompy, gdy w zbiorniku pozostanie około 5 ml 0,5 M NaOH.
- Do zbiornika należy dodać 100 ml sterylnej wody klasy molekularnej i wznowić przepływ cieczy przez kasetę. Zbiornik należy zamieszać ruchem wirowym, aby wypłukać cały NaOH ze ścianek zbiornika i zapobiec inaktywacji wirusa. Należy powtórzyć etap płukania zbiornika.
- Gdy w zbiorniku pozostanie około 5 ml sterylnej wody klasy molekularnej, należy zatrzymać pompę.
- Do zbiornika należy dodać 100 mL PBS, delikatnie nim potrząsając, aby wypłukać ze ścianek sterylną wodę klasy molekularnej. Następnie należy wznowić przepływ cieczy przez kasetę.
- Gdy w zbiorniku pozostanie około 5 ml cieczy, należy zatrzymać pompę, dolać do zbiornika przefiltrowany w filtrze głębinowym płyn allantoisowy, a następnie wznowić przepływ pompy.
- Monitoruj manometr 1 (Rycina 3B) aby upewnić się, że nie przekroczy ona 10 psi, co zapobiegnie ścinaniu wirusa. Należy zastosować kombinację prędkości pompy perystaltycznej oraz zacisków śrubowych w celu zwiększenia elucji do odpadu.
UWAGA: Połączenie prędkości pompy perystaltycznej i zastosowania ścisków C spowoduje wzrost ciśnienia. - Gdy w zbiorniku pozostanie 50–100 ml płynu alantoisowego, należy zatrzymać pompę, aby przeprowadzić wymianę buforu poprzez dodanie 150–200 ml 1× Bufor ML.
- Wznowić przepływ pompy, ponownie monitorując manometr 1 (Rysunek 3B), aby upewnić się, że nie przekracza ona 10 psi.
- Gdy w zbiorniku pozostanie 5–10 ml cieczy, należy zatrzymać pompę.
- Za pomocą dwóch zacisków śrubowych zamknij dwie linie odpływowe, jak pokazano na Rysunek 3C.
- Odłącz linię retentatu doprowadzającą do zbiornika i umieść ją w probówce stożkowej o pojemności 50 ml (Rycina 3C).
- Wznów pracę pompy, zatrzymując ją, gdy w zbiorniku pozostanie zaledwie kilka kropel cieczy.
- Zdejmij śruby ściskowe z linii odprowadzających odpady i ponownie podłącz linię zasilającą retentatu do zbiornika rezerwuarowego (Rysunek 3B).
- Dodać 20–25 ml 1× Bufor ML i wznowić przepływ pompy, aż w zbiorniku rezerwowym pozostanie około 5 ml.
- Powtórz kroki od 2.2.13 do 2.2.16.
UWAGA: W celu zwiększenia wydajności wirusa można przeprowadzić trzecią elucję, powtarzając krok 2.2.17 oraz kroki od 2.2.13 do 2.2.16. Większość wirusa znajduje się jednak w dwóch pierwszych elucjach. - Po zakończeniu elucji umieścić wirusa na lodzie lub w temperaturze 4 °C.
- Aby oczyścić linie, należy skonfigurować system w formacie zamkniętej pętli (Rycina 3D) z liniami odpływowymi powracającymi do zbiornika, jak przedstawiono w Rycina 3D.
- Następnie należy oczyścić system, dodając 250 ml 0,5 M NaOH oraz 400 ppm wybielacza, uprzednio podgrzanych do 42 °C.
- Przepuszczaj roztwór czyszczący przez system przez całą noc.
UWAGA: Podczas recyrkulacji roztworu czyszczącego, przy pracy pompy z prędkością 50 ml/min, powinno zostać odnotowane ciśnienie wynoszące około 5 psi. Jeśli ciśnienie przekroczy tę wartość, oznacza to, że kaseta jest zabrudzona; w takim przypadku należy wymienić roztwór czyszczący i powtórzyć proces. - Wypłucz roztwór czyszczący, kierując obie linie odpływowe oraz linię retentatu do pojemnika na odpady.
- Do zbiornika należy dodać 400–500 ml sterylnej wody, a następnie przepuścić ją przez układ do naczyń na odpady.
- Gdy w zbiorniku pozostanie około 5 ml płynu, należy zatrzymać pompę i dodać do zbiornika 100–200 ml 0,5 M NaOH, delikatnie mieszając roztwór w celu wypłukania wnętrza pojemnika.
- Gdy zbiornik będzie prawie pusty, powtórz krok 2.2.23 jeszcze dwa razy.
- Zdemontować układ TFF, przechowując kasetę TFF oraz uszczelki w niewielkiej objętości 0,5 M NaOH w zamykanym plastikowym worku w temperaturze 4 °C.
UWAGA: Przewody można przechowywać w temperaturze pokojowej, zanurzone w 0,5 M NaOH.
- Zmontować elementy kasety zgodnie z przedstawionym na Rycina 3A w komorze bezpieczeństwa biologicznego.
- Ultrawirowanie w gradiencie gęstości jodiksanolu
- Włącz ultrawirówkę i ustaw ją na wstępne chłodzenie do 4 °CWstępnie schłodzić wybrany rotor w temperaturze 4 °C oraz (zob. Lista materiałów).
UWAGA: Rotory należy przechowywać w 4 °C. - Należy wykorzystać roztwór stokowy jodiksanolu o stężeniu 60% (stężenie w momencie zakupu), aby przygotować roztwory jodiksanolu o stężeniach 40%, 20% i 10% poprzez rozcieńczenie ich w PBS i 3× bufor ML do 1× stężenie końcowe buforu ML.
- W otwartej, cienkościennej probówce do ultrawirówki o pojemności 13,2 ml nałóż warstwami odpowiednio 0,5 ml, 2,5 ml i 2,5 ml roztworów jodiksanolu o stężeniach 40%, 20% i 10% (Rycina 4A).
UWAGA: Przechylenie probówki wirówki ultracentryfugowej na bok i powolne wypuszczanie roztworu znacznie zmniejszy ryzyko wymieszania dwóch warstw gradientu. Rozdzielenie każdej z warstw powinno być wyraźne, z "halo" widoczne pomiędzy poszczególnymi warstwami gradientu. - Użyj pisaka, aby zaznaczyć granice poszczególnych warstw gradientu.
- Nanieś 6–6,5 ml eluatego wirusa z procedury TFF na gradient gęstości. Dodawaj wirusa ostrożnie, zgodnie z opisem w kroku 2.3.3, aby nie zakłócić gradientu gęstości.
- Umieść probówki do ultrawirówki w adapterach rotora z koszykami wahadłowymi (patrz na Lista materiałów) używając wagi z otwartym talerzem, aby zrównoważyć wkłady z dokładnością do 0,01 g. W celu wyrównania różnic w wadze należy zastosować PBS lub dodatkowy eluent wirusowy.
- Po zrównoważeniu probówek należy je zakręcić i umieścić w wirniku.
- Wiruj przez 1,5 h przy 125 000 × g przy 4 °C.
UWAGA: Można to przeprowadzić w ciągu nocy, jeśli dostępna jest ultrawirówka z funkcją opóźnionego startu. - Po ultrawirowaniu wyjmij probówki za pomocą sterylnej pincety. Zlokalizuj docelowy prążek – szeroki prążek znajdujący się pomiędzy gradientami 10% i 20% (Rycina 4B).
- Zawiesić probówkę nad zlewką, używając statywu laboratoryjnego.
- Podłącz igłę 18 G × igłę o długości 1,5 cala do strzykawki o pojemności 5 ml i przebić ściankę probówki do ultrawirowania.
UWAGA: Probówkę należy nakłuć nieco poniżej docelowego pasma, wprowadzając igłę pod kątem w górę, z otworem skierowanym do góry, tak aby igła wniknęła w docelowe pasmo. - Powoli wysuń tłok, aby usunąć docelowy prążek.
UWAGA: Przesuwaj igłę w obrębie docelowego prążka, aby zmaksymalizować ilość wyekstrahowanego wirusa. Należy uważać, aby inne prążki lub zanieczyszczenia nie zmieszały się z prążkiem docelowym; należy również unikać pobierania nadmiaru roztworu, ponieważ spowoduje to konieczność użycia większej liczby kaset do dializy. - Po wyekstrahowaniu docelowego prążka należy wyjąć igłę i pozwolić pozostałej cieczy spłynąć do zlewki z odpadami. Docelowy prążek należy przenieść do probówki stożkowej o pojemności 50 ml i powtarzać tę czynność, aż wszystkie prążki ze wszystkich pozostałych probówek do ultrawirówki zostaną wyekstrahowane.
- Powtarzać kroki 2.3.10–2.3.13 do momentu, aż wszystkie docelowe prążki zostaną wyekstrahowane ze wszystkich probówek do ultrawirówki.
- Alternatywna metoda wycinania docelowych prążków, opisana w krokach od 2.3.10 do 2.3.13
- Powoli usuń ciecz znajdującą się nad docelowym prążkiem za pomocą pipety. Po dotarciu do docelowego prążka pobierz go pipetą i przechowuj wirusa w stożkowej probówce o pojemności 50 mL.
UWAGA: Umożliwia to ponowne wykorzystanie probówek do ultrawirowania.
- Powoli usuń ciecz znajdującą się nad docelowym prążkiem za pomocą pipety. Po dotarciu do docelowego prążka pobierz go pipetą i przechowuj wirusa w stożkowej probówce o pojemności 50 mL.
- Włącz ultrawirówkę i ustaw ją na wstępne chłodzenie do 4 °CWstępnie schłodzić wybrany rotor w temperaturze 4 °C oraz (zob. Lista materiałów).
- Usuwanie jodiksanolu z roztworu wirusa
UWAGA: Prążek zawierający NDV pojawia się przy gęstości jodiksanolu pomiędzy 15% a 16%. Stężenie jodiksanolu w roztworze można określić, mierząc absorbancję przy 340 nm w odniesieniu do krzywej wzorcowej. Krok ten można pominąć, ponieważ nie zaobserwowano żadnych działań niepożądanych ani ostrej toksyczności po podaniu roztworów jodiksanolu o takim stężeniu myszom C57BL/6.- Kasetę dializacyjną o objętości 0,5–3 ml i progu odcięcia masy cząsteczkowej (MWCO) 10 kDa należy uprzednio nawilżyć, zanurzając ją w PBS na 1 min.
UWAGA: Membrana dializacyjna powinna zmienić swoją strukturę z gładkiej na pofałdowaną lub grudkowatą. Jeśli objętość wyizolowanego wirusa przekracza 10 ml, należy zastosować dwie kasety do dializy o pojemności 0,5–3 ml lub jedną kasetę o pojemności 5–12 ml. - W zależności od potrzeb należy użyć strzykawki o pojemności 5 lub 10 ml oraz igły G18 × igła tępa o długości 1,5 cala do pobrania wirusa z probówki stożkowej o pojemności 50 ml.
- Za pomocą strzykawki wprowadź wirusa do kasety dializacyjnej, uważając, aby nie przebić membrany.
UWAGA: Kasetę do dializy można obracać, aby kontrolować położenie pęcherzyka powietrza wewnątrz kasety. Pęcherzyk powietrza należy usunąć przed wyjęciem igły z kasety. - Napełnij zlewkę o pojemności 1 L sterylnym 1× PBS, umieścić wewnątrz magnes do mieszania oraz kasetę do dializy, a następnie przykryć. Inkubować w 4 °C przy delikatnym mieszaniu.
UWAGA: Użyj ekstrudowanego polistyrenu i gumki recepturki, aby przymocować kasetę do dializy w taki sposób, aby pływała w roztworze PBS. Kaseta może lekko napęcznieć pod wpływem buforu ML. - Po 1-2 h wymienić na świeży 1× PBS i kontynuować inkubację w 4 °C przez kolejne 8–10 h przy lekkim mieszaniu.
UWAGA: Można to również przeprowadzić w ciągu nocy. - Wymienić na świeży 1× ponownie w PBS, inkubując w temperaturze pokojowej przez 1-2 h.
- Kasetę dializacyjną o objętości 0,5–3 ml i progu odcięcia masy cząsteczkowej (MWCO) 10 kDa należy uprzednio nawilżyć, zanurzając ją w PBS na 1 min.
- Koncentracja roztworu wirusa
- Wyjmij kasetę do dializy z buforu do dializy (Rycina 4C) i umieść ją w małej, szczelnej plastikowej torebce. Dodaj 15–25 ml 40% glikolu polietylenowego o masie cząsteczkowej 20 000 MW, tak aby kaseta do dializy była całkowicie zanurzona.
- Inkubować w temperaturze pokojowej przy jednoczesnym kołysaniu. Okresowo sprawdzać objętość wirusa w kasecie, używając strzykawki o pojemności 5 lub 10 ml oraz igły 18 G × igła tępa do pobierania 1,5 cala.
UWAGA: Czas wymagany do skoncentrowania wirusa będzie zależał od objętości początkowej oraz pożądanej objętości końcowej. Zazwyczaj docelowa objętość końcowa wynosi od 1 do 1,5 ml, niezależnie od początkowej objętości płynu alantoicznego. Podczas sprawdzania objętości należy uważać, aby nie korzystać z tego samego portu, ponieważ naruszy to jego szczelność i może doprowadzić do zmieszania roztworu glikolu polietylenowego z wirusem. - Przed usunięciem skoncentrowanego wirusa z kasety dializacyjnej należy krótko przepłukać kasetę w 1× PBS i napełnić igłę 18 G × Igła tępia do pobierania (blunt-fill) o długości 1,5 cala z powietrzem.
- Wprowadź wypełnioną powietrzem strzykawkę do kasety dializacyjnej i naciśnij tłok. Obróć urządzenie w taki sposób, aby można było usunąć skoncentrowany wirus bez wypuszczania wprowadzonego powietrza.
- Przenieś skoncentrowany wirus do probówki stożkowej o pojemności 50 ml, odnotowując objętość odmierzonej ilości.
- Używając tej samej strzykawki i igły, wstrzyknąć do kasety dializacyjnej odpowiednią ilość 60% sacharozy w taki sposób, aby po zmieszaniu z wcześniej odzyskanym wirusem ostateczne stężenie sacharozy wyniosło 5%.
- Palcami w rękawiczkach delikatnie masuj membranę, aby odłączyć pozostałości wirusa, które mogły do niej przywrzeć, uważając, by jej nie uszkodzić. Usuń część nadmiaru powietrza z kasety do dializy, aby ułatwić proces odłączania.
- Połącz ten roztwór do płukania z wirusem znajdującym się już w probówce stożkowej o pojemności 50 ml.
UWAGA: Wirus znajduje się teraz w 5% sacharozie i jest gotowy do rozdzielenia do 20 µL, 50 µL, 100 µLlub 200 µL alikwoty i przechowywane w temperaturze -80 °CAlternatywnie, w celu długoterminowego przechowywania, NDV można liofilizować i przechowywać w temperaturze 4 °C zgodnie z opisem w sekcji 2.6.
Wyniki
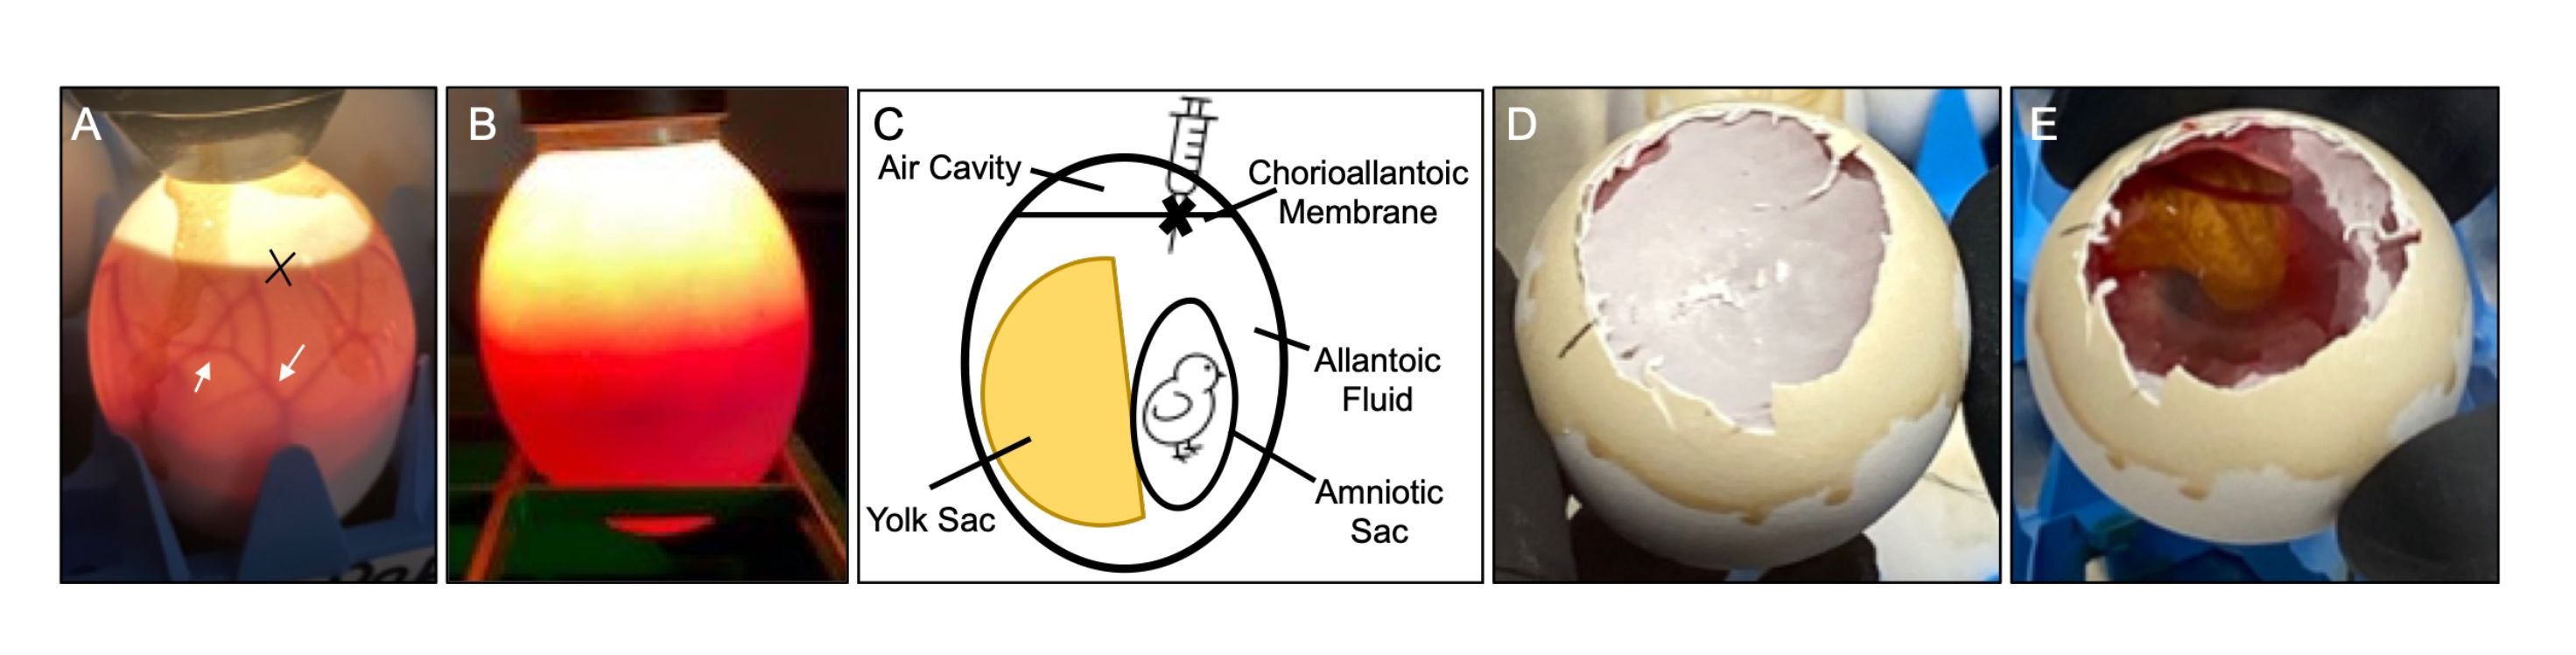
Rysunek 1: Zakażanie i pozyskiwanie NDV z zarodkowych jaj kurzych wolnych od określonych patogenów. (A) Po 9 dniach inkubacji, oprócz ruchów zarodka, powinna być widoczna sieć naczyń krwionośnych (strzałki). „X” oznacza granicę między błoną chorioallantoidalną a komorą powietrzną, w miejscu, gdzie należy wykonać otwór do inokulacji jaja. (B) Obraz przedstawiający martwego zarodka. Zwróć uwagę na brak sieci naczyń krwionośnych. Zaobserwowany zostanie również brak ruchów zarodka. (C) Schemat elementów zarodkowego jaja kurzego pokazujący położenie komory powietrznej, pęcherzyka żółtkowego, pęcherzyka wgłownego, błony chorioallantoidalnej oraz płynu allantoidalnego. (D) Usunięcie skorupki w celu odsłonięcia błony chorioallantoidalnej. (E) Ilustracja wyglądu płynu allantoidalnego i zarodka po otwarciu błony chorioallantoidalnej. Skrót: NDV = wirus choroby Newcastle.
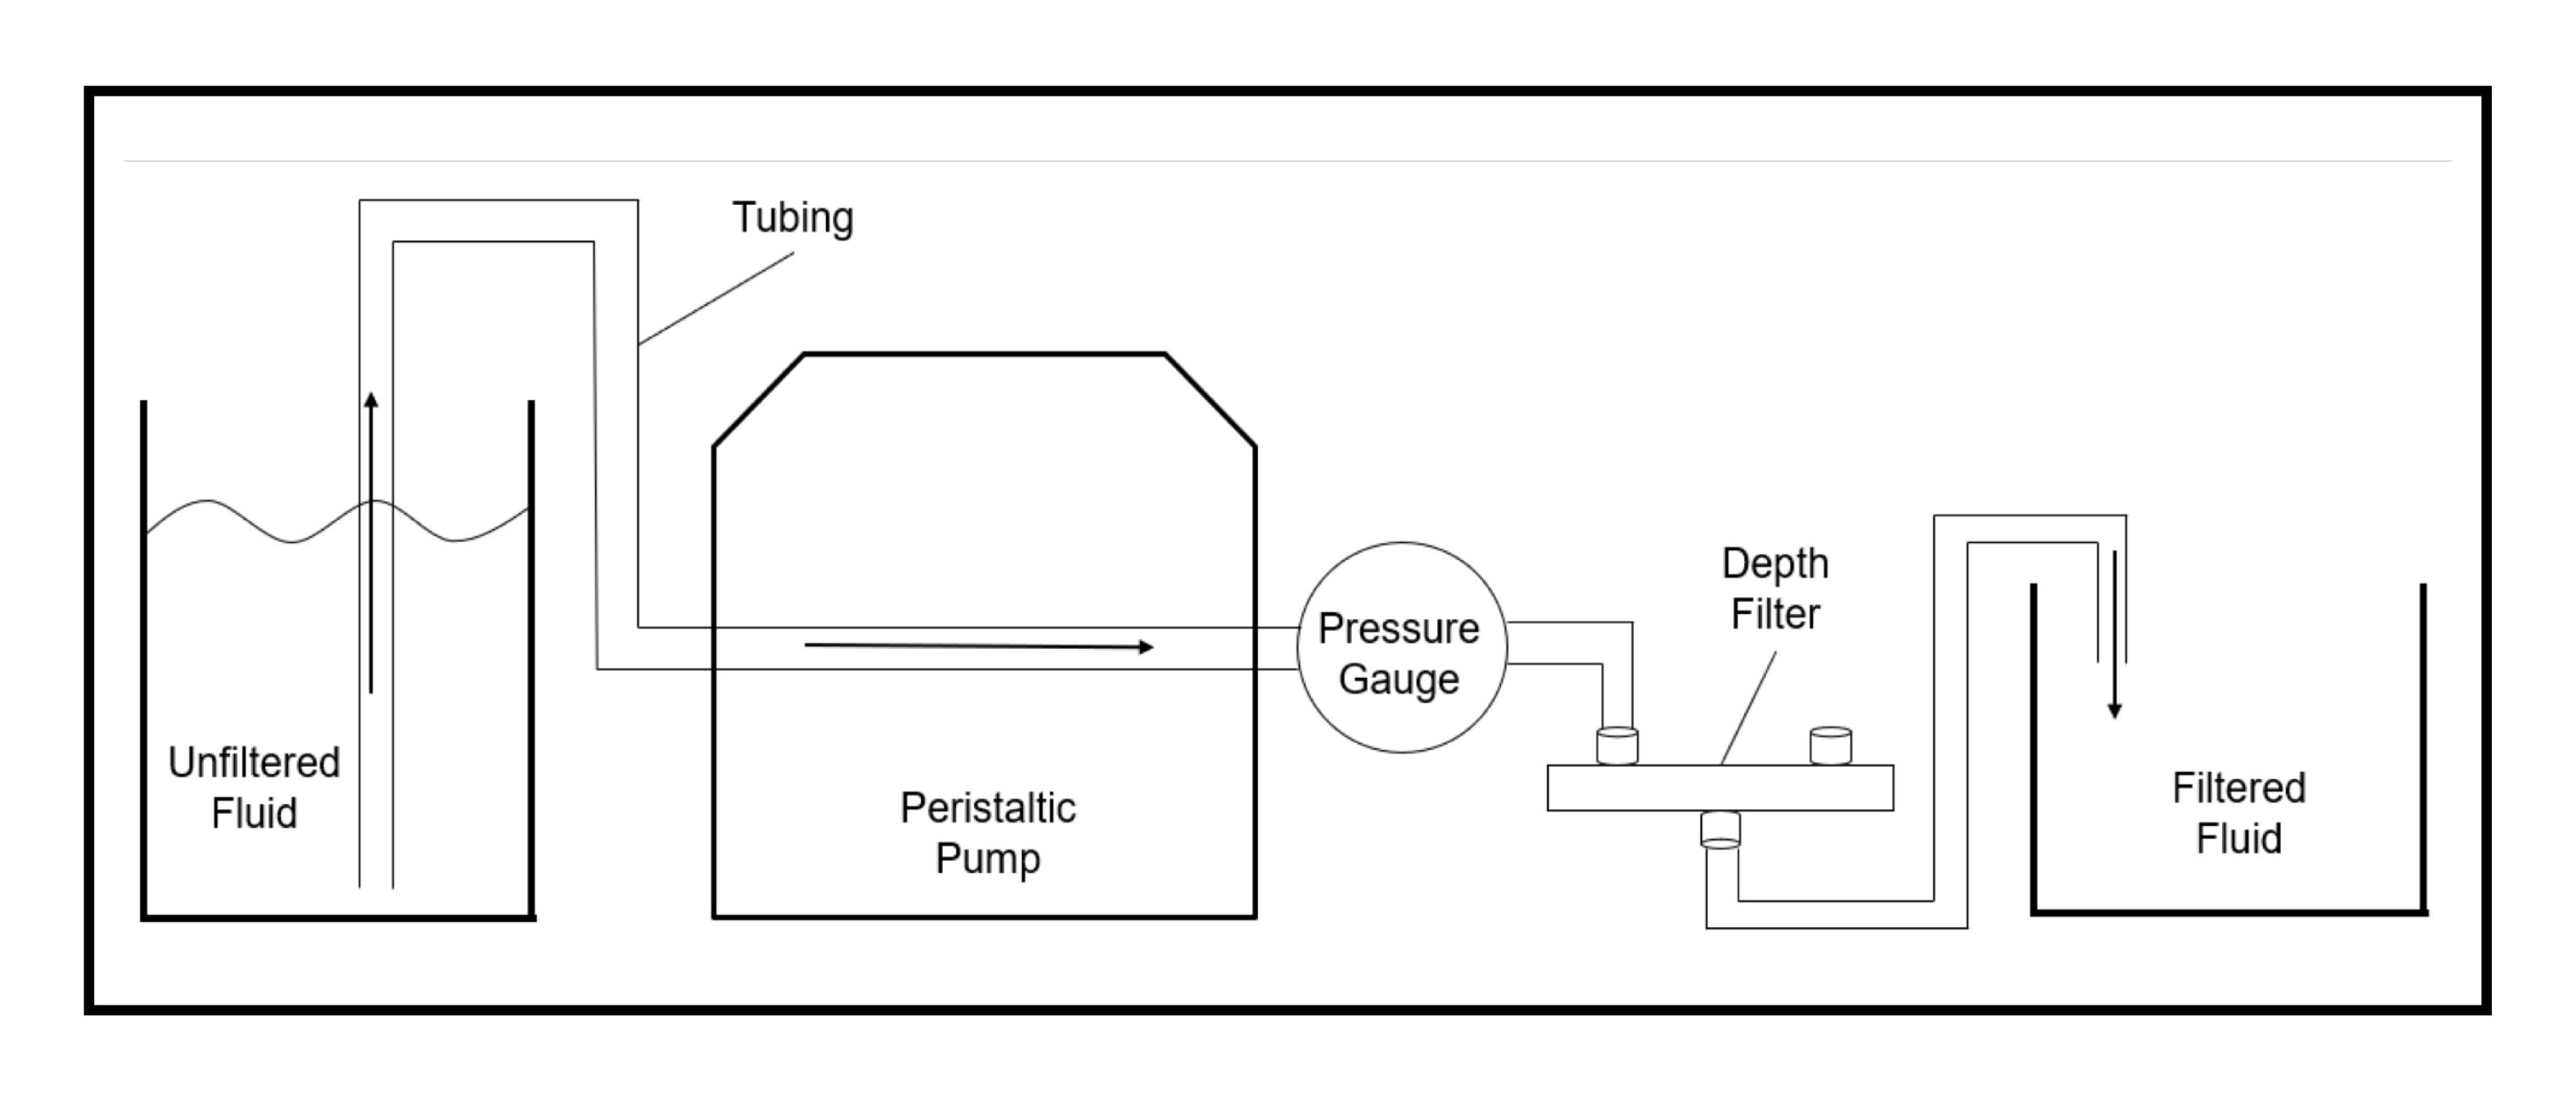
Rycina 2: Schemat przedstawiający ogólną budowę aparatury używanej do filtracji wgłębnej. Należy upewnić się, że manometr jest zainstalowany przed filtrem wgłębnym.
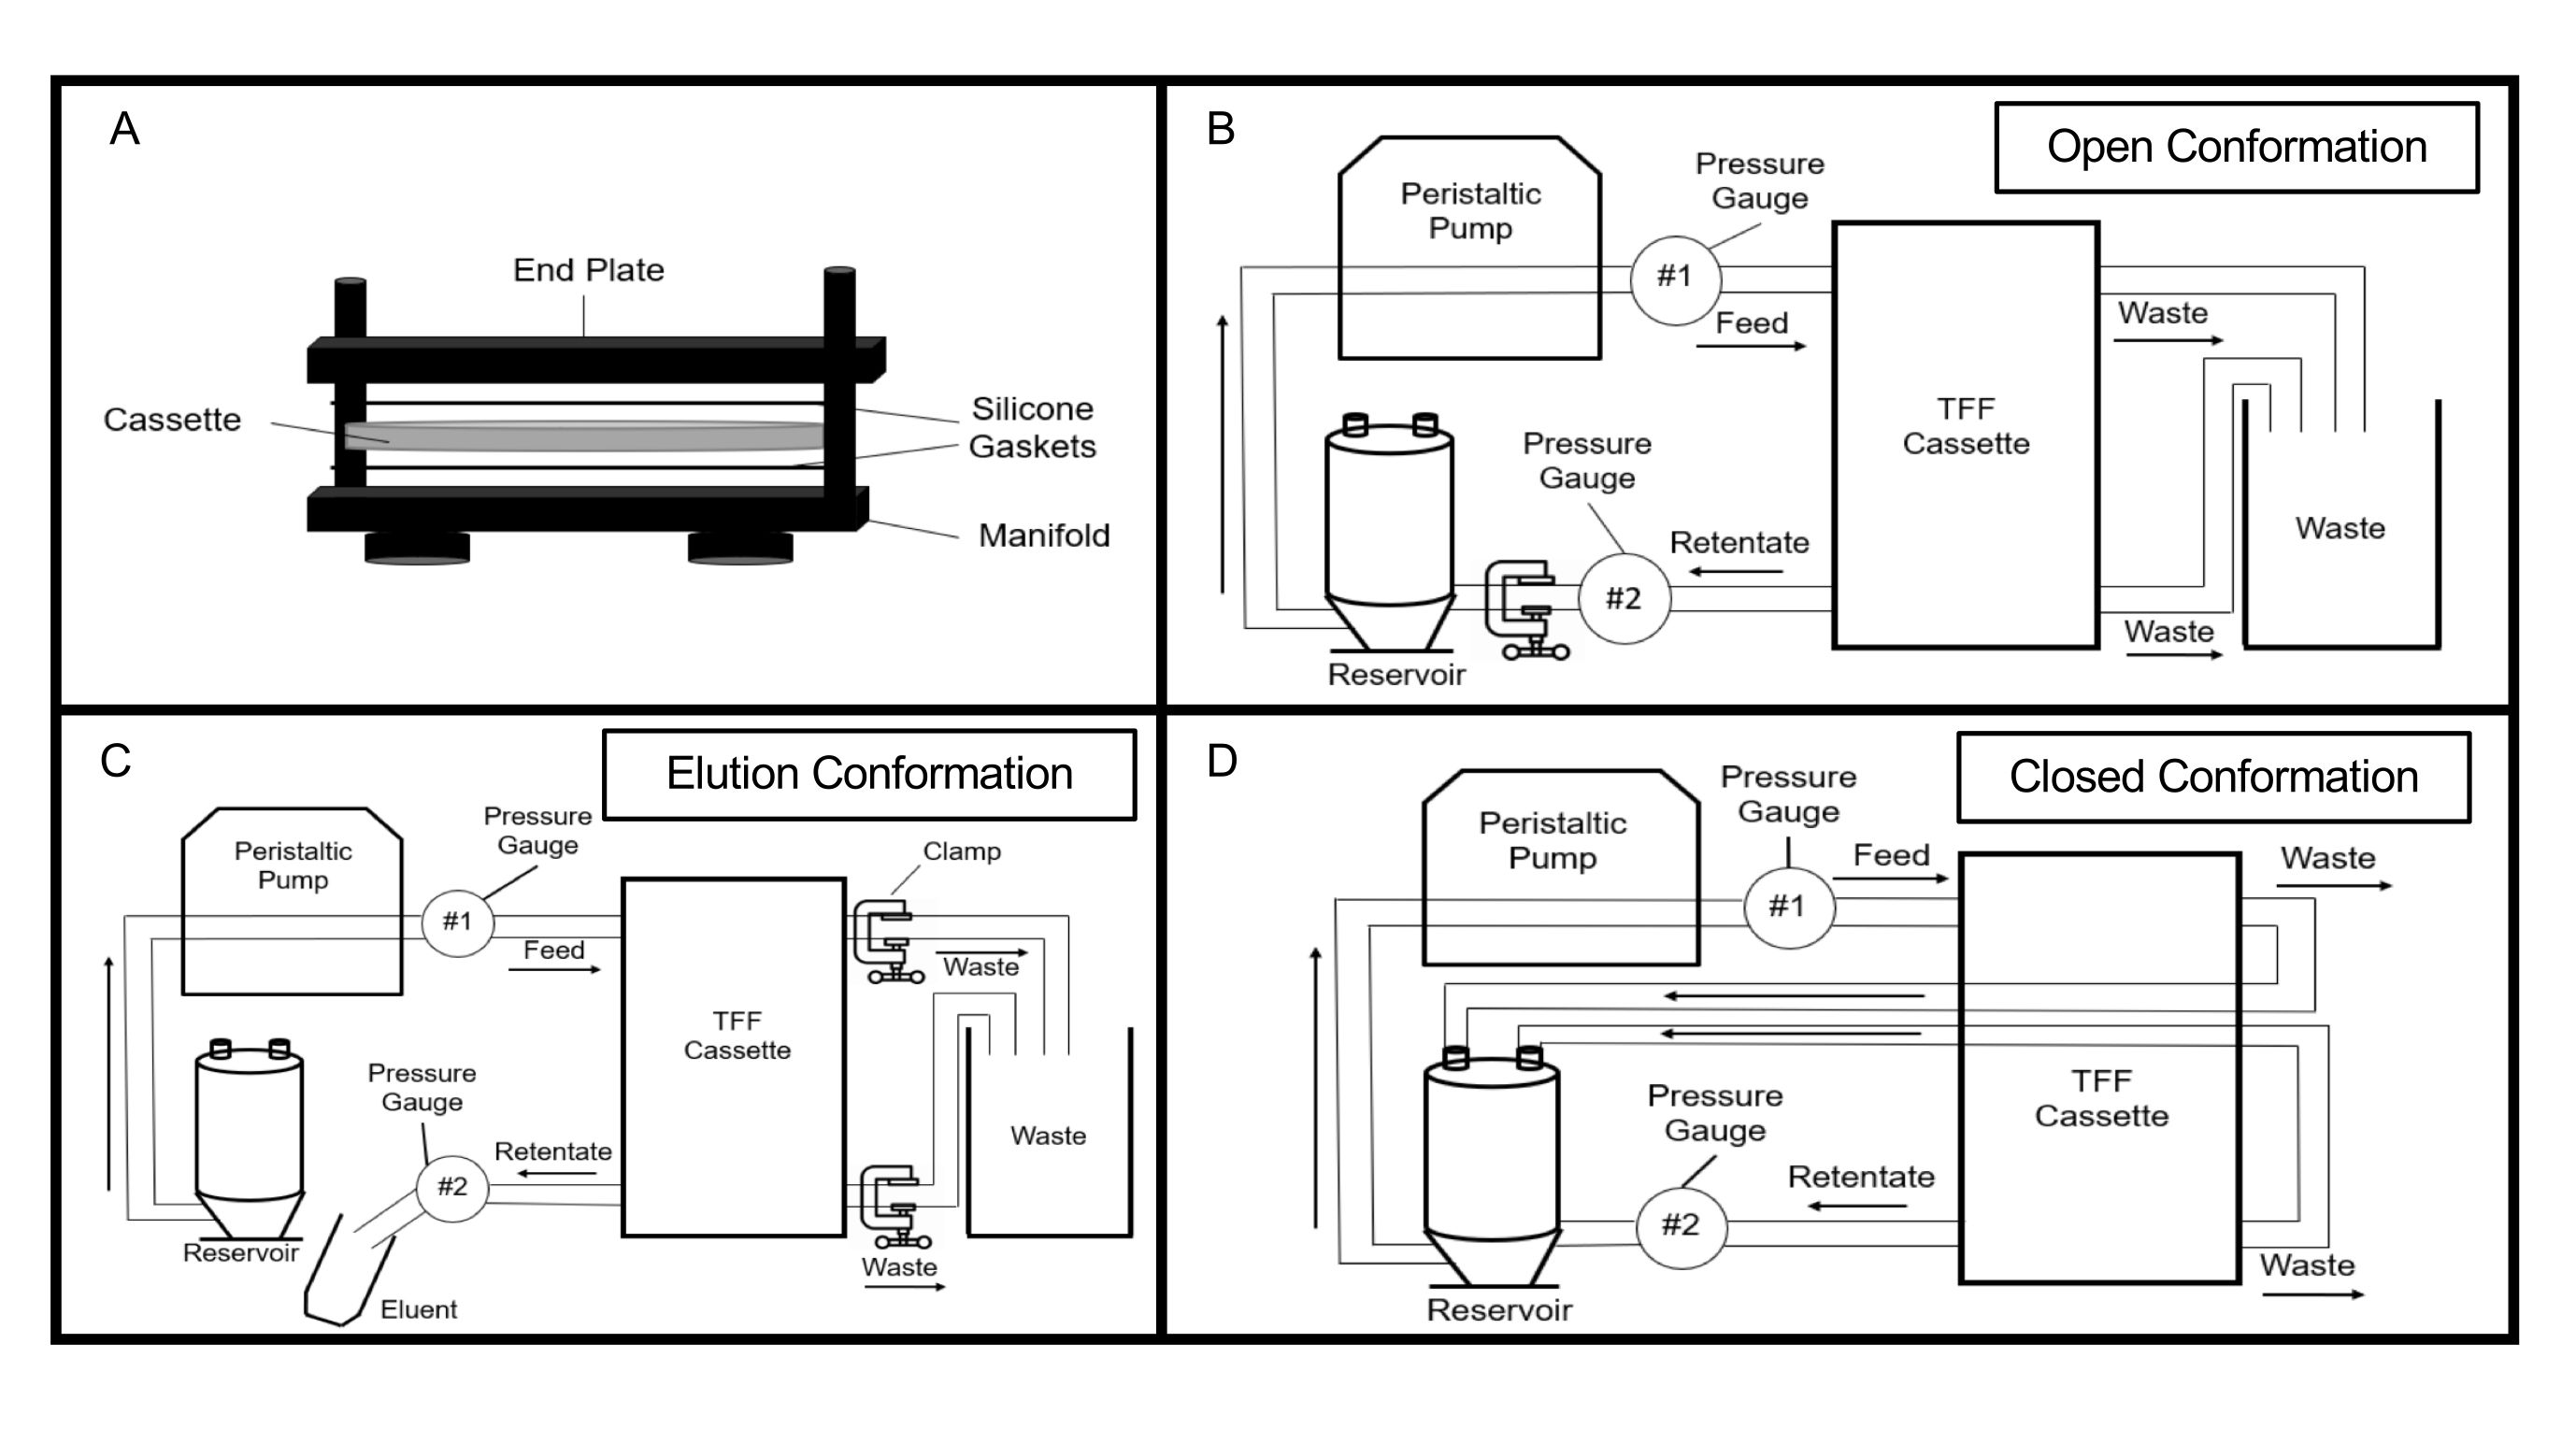
Rycina 3: Układ do filtracji przepływowej stycznej w różnych konfiguracjach. Strzałki wskazują kierunek przepływu cieczy. (A) Ilustracja sposobu montażu kasety TFF. (B) Schemat systemu TFF w konfiguracji „otwartej”, stosowanej podczas oczyszczania i zagęszczania cieczy. (C) Schemat układu TFF podczas elucji cieczy z systemu, stosowany podczas elucji wirusa oraz roztworu czyszczącego. (D) Schemat systemu TFF w konfiguracji „zamkniętej”, stosowanej podczas czyszczenia systemu TFF. Skrót: TFF = filtracja przepływowa styczna.
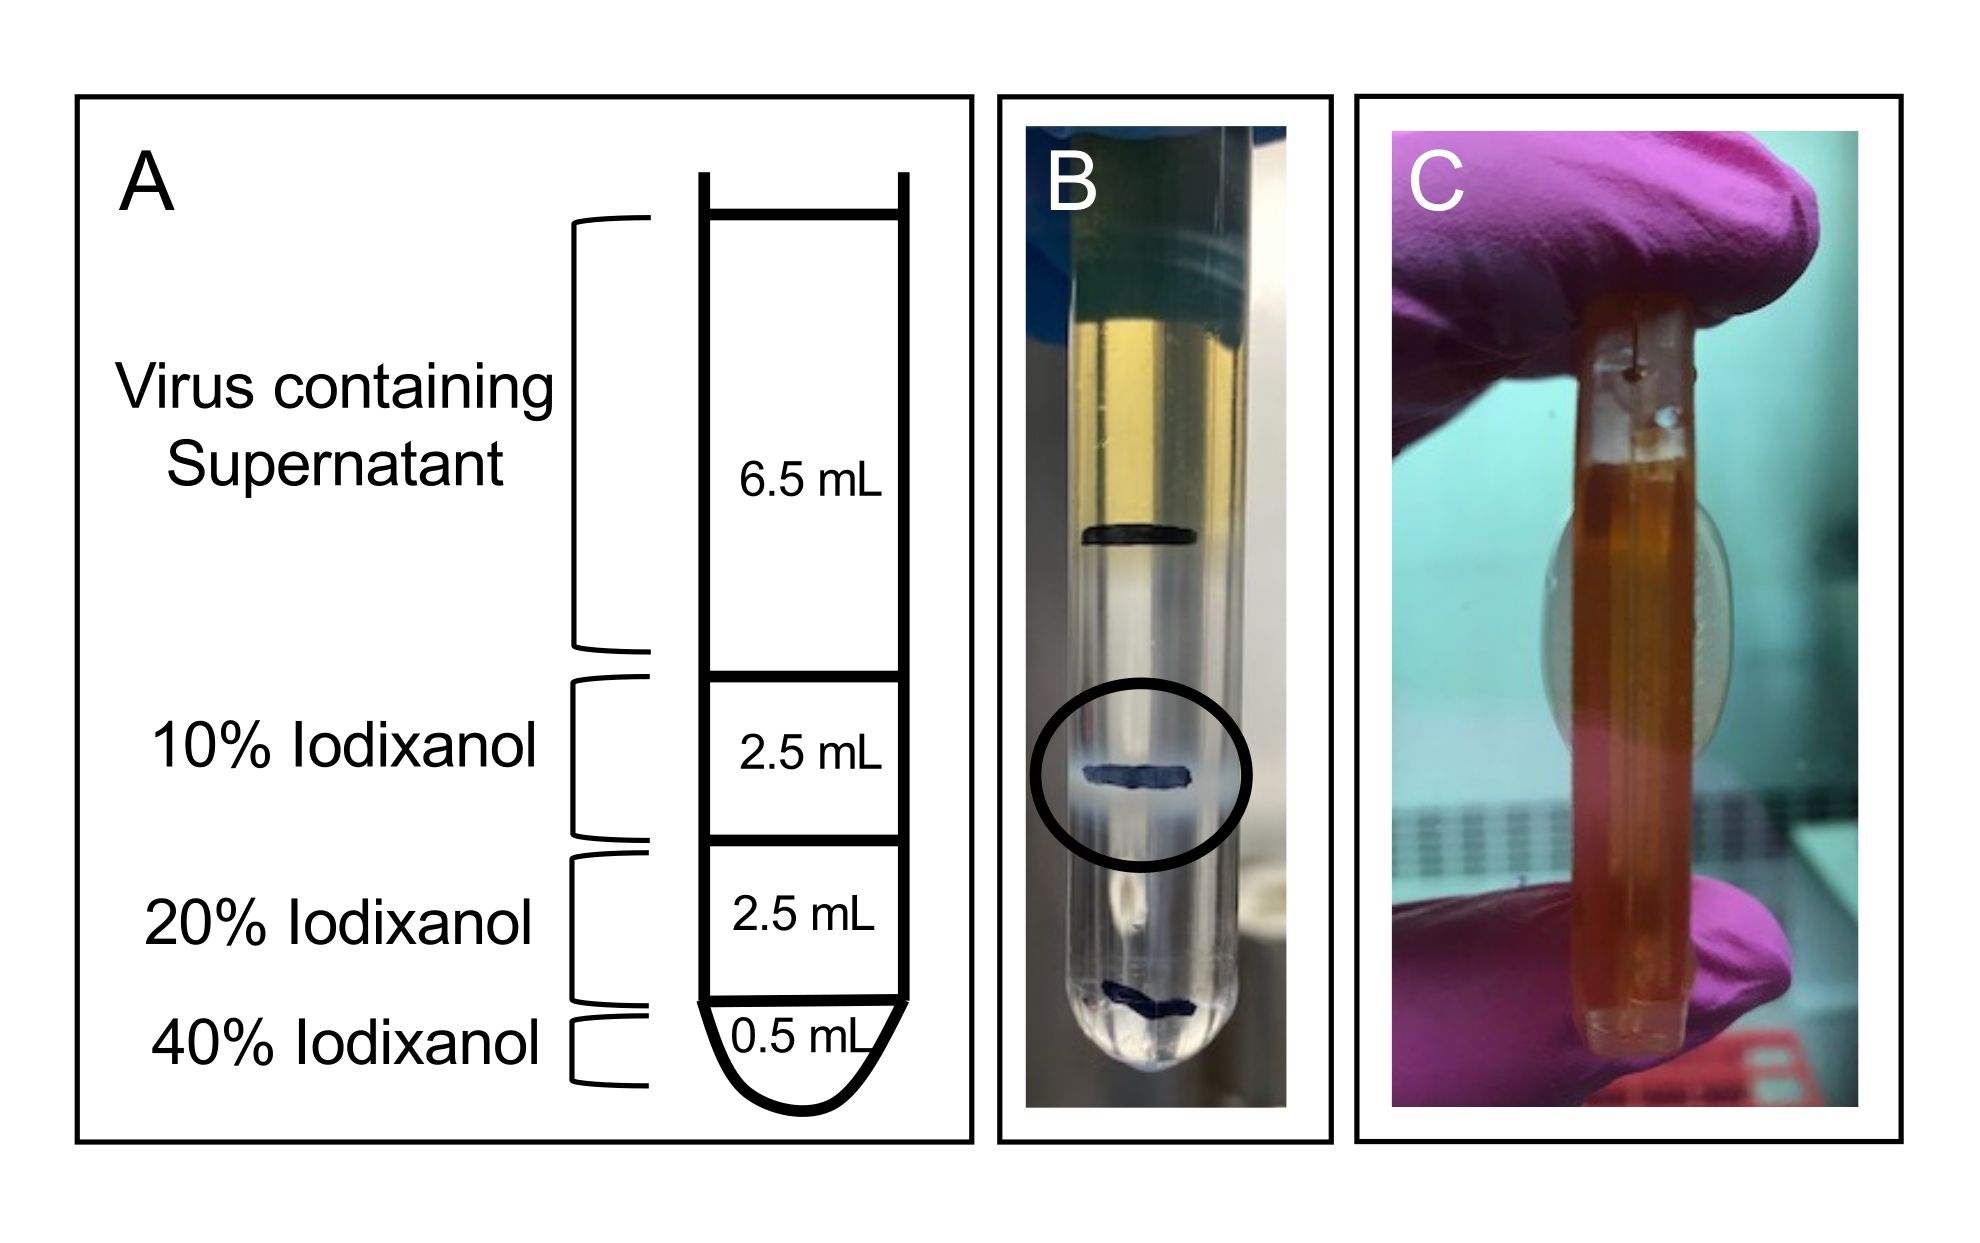
Rysunek 4: Ultracentryfugacja w gradiencie gęstości i dializa skoncentrowanego wirusa po TFF. (A) Schemat przedstawiający skład gradientu gęstości jodiksanolu. (B) Wzorzec prążkowania wirusa po ultracentryfugacji wirusa otrzymanego z użyciem buforu ML podczas procesu oczyszczania. Główny prążek zawierający wirusa zaznaczono czarną owalnicą. (C) Typowy rozmiar kasety dializacyjnej załadowanej 10 mL wirusa przygotowanego w gradiencie jodiksanolu pod koniec procedury dializy. Skróty: TFF = filtracja przepływowa styczna; ML = mannitol-lizyna.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Strzykawka 1 ml z końcówką typu Slip-Tip | BD | 309659 | |
| Strzykawka Luer-Lok 10 ml | BD | 302995 | |
| 10% roztwór powidonu z jodem | LORIS | 109-08 | |
| probówki stożkowe 15 ml | Thermo-Fisher | 14955240 | |
| igła tępa do napełniania 18G x 1 1/2 cala | BD | 305180 | |
| Igła Precision Glide 18G x 1 1/2 cala | BD | 305196 | |
| Igła 25 G x 5/8 cala | BD | 305122 | |
| strzykawka 5 ml Luer-Lok | BD | 309646 | |
| Kwas octowy lodowaty | Thermo-Fisher | A38-212 | |
| Agaroza | Froggabio | A87-500G | |
| Alexa-Fluor 488 przeciwciało kozie przeciwko mysim | Invitrogen | A11001 | |
| Wirówka Allegra X-14 | Beckman Coulter | B08861 | |
| persiarzan amonu | BioRad | 161-0700 | |
| Wybielacz (5%) | Thermo-Fisher | 36-102-0599 | |
| Szerokie pęsety o gładkich końcach | Thermo-Fisher | 09-753-50 | |
| Błękit bromofenolowy | Sigma-Aldrich | 114405-25G | |
| Uchwyt kaset Centramate | PALL | CM018V | |
| ChemiDoc XRS+ | BioRad | 1708265 | |
| Cyfrowy inkubator do jaj Sportsman 1502 | Berry Hill | 1502W | |
| D-mannitol | Sigma-Aldrich | M4125-500G | |
| Prześwietlarka do jaj | Berry Hill | A46 | |
| Etanol (70%) | Thermo-Fisher | BP82031GAL | |
| Trójniki z gwintem wewnętrznym, nylon, 1/8 cala NPT(F) | Cole-Parmer | 06349-50 | |
| Zestaw do pomiaru wilgotności | Berry Hill | 3030 | |
| Jodiksanol | Sigma-Aldrich | D1556 | 60% (m/v) roztwór jodiksanolu w wodzie (sterylnej) |
| Monowodorek L-lizyny | Sigma-Aldrich | 62929-100G-F | |
| Złącza Luer-Lok męskie i żeńskie oraz gwint rurkowy NPT 1/8 cala | Cole-Parmer | 41507-44 | |
| Napęd cyfrowy Masterflex L/S | Cole-Parmer | RK-07522-20 | Pompa perystaltyczna z wyświetlaczem cyfrowym |
| Głowica pompy Masterflex L/S Easy Load do przewodów precyzyjnych | Cole-Parmer | RK-07514-10 | |
| Przewód silikonowy Masterflex (platynowy) L/S 16 | Cole-Parmer | 96420-16 | Silikon utwardzany platynowo BioPharm |
| Kaseta Omega Membrane LV Centramate, 100K | PALL | OS100T02 | |
| Ultrawirówka Optima XE-90 | Beckman Coulter | A94471 | |
| Roztwór PBS 10X | Thermo-Fisher | BP399-20 | |
| Poli(glikol etylenowy) średnia Mn 20 000 | Sigma-Aldrich | 81300-1KG | |
| Kaseta do dializy Slide-a-lyzer (Extra Strength), MWCO 10 000, 0,5-3 ml | Thermo-Fisher | 66380 | |
| Wodorotlenek sodu (granulki) | Thermo-Fisher | S318-10 | |
| Jaja wolne od specyficznych patogenów | CFIA | ND | Dostawca może się różnić w zależności od lokalizacji |
| Sacharoza | Thermo-Fisher | S5-3 | |
| Filtr głębinowy Supracap 50 | PALL | SC050V100P | |
| Nożyczki chirurgiczne | Thermo-Fisher | 08-951-5 | |
| Rotor Sw41Ti | Beckman Coulter | 331362 | Stosowane w krokach protokołu 2.3.1, 2.3.6, 2.3.7 |
| Rotor SX4750 | Beckman Coulter | 369702 | |
| Adapter SxX4750 do probówek z dnem stożkowym | Beckman Coulter | 359472 | |
| Cienkościenne probówki do wirówki Ultraclear (9/16 cala x 3 1/2 cala) | Beckman Coulter | 344059 | |
| Śrubowy zacisk do wężyka | PALL | 88216 | |
| Manometry ciśnienia roboczego | Cole-Parmer | 68355-06 |
