1. Umieszczanie ludzkich iPSC w bioreaktorze
- Inkubować iPSC wyhodowane jako monowarstwy w mTeSR1 uzupełnione 10 μM inhibitora ROCK Y-27632 (ROCKi). Dodać 1 ml uzupełnionej pożywki do każdej studzienki z 6-dołkowej płytki do hodowli tkankowej i inkubować przez 1 godzinę w temperaturze 37 °C, wilgotności 95% i 5% CO2,
nuta: ROCKi służy do ochrony zdysocjowanych iPSC przed apoptozą.
- Po 1 godzinie inkubacji odessać zużyte podłoże z każdej studzienki i przemyć 1x 1 ml 1× PBS na studzienkę.
- Dodać 1 ml pożywki do oddzielania komórek (patrz tabela materiałów) do każdego dołka na płytce 6-dołkowej i inkubować w temperaturze 37 °C przez 7 minut, aż komórki łatwo odłączą się od studzienek, delikatnie wstrząsając.
- Pipetować pożywkę odrywającą komórki w górę i w dół za pomocą mikropipety P1000, aż komórki odłączą się i rozdysocjują na pojedyncze komórki. Dodać 2 ml kompletnej pożywki do hodowli komórkowych do każdej studzienki, aby dezaktywować trawienie enzymatyczne i delikatnie pipetować komórki do sterylnej stożkowej probówki.
- Odwirować przy 210 × g przez 3 minuty i usunąć supernatant.
- Zawiesić osad komórkowy w pożywce hodowlanej (tj. mTeSR1 uzupełnionym 10 μM ROCKi) i policzyć iPSC za pomocą hemocytometru przy użyciu barwnika błękitu trypanowego.
- Nasiona 15 × 106 pojedynczych komórek w bioreaktorze (maksymalna objętość 100 ml) z 60 ml mTeSR1 uzupełnionych 10 μM ROCKi przy końcowej gęstości komórek 250 000 komórek/ml.
- Włożyć naczynie zawierające iPSC do uniwersalnej jednostki bazowej umieszczonej w inkubatorze w temperaturze 37 °C, wilgotności 95% i 5% CO2,
nuta: Mieszanie w bioreaktorze jest utrzymywane przez 24 godziny poprzez ustawienie uniwersalnego sterowania jednostką bazową na 27 obr./min w celu promowania agregacji iPSC.
2. Różnicowanie i dojrzewanie ludzkich agregatów pochodzących z iPSC w organoidach móżdżku
- Zdefiniuj dzień rozmieszczania pojedynczej komórki jako dzień 0.
- W pierwszym dniu pobrać 1 ml zbiorczej próbki iPSC za pomocą pipety serologicznej. Utrzymuj bioreaktor w stanie mieszania jak poprzednio, umieszczając uniwersalną jednostkę bazową z bioreaktorem zawierającym agregaty w sterylnym przepływie przed pobraniem próbki. Umieść zawiesinę komórek w 24-dołkowej płytce o bardzo niskim mocowaniu. Sprawdź, czy powstały agregaty pochodzące z iPSC.
- Uzyskuj obrazy za pomocą mikroskopu optycznego przy całkowitym powiększeniu 40x lub 100x w celu pomiaru średnicy agregatu.
- Zmierz powierzchnię agregatów na każdym obrazie za pomocą oprogramowania FIJI.
- Wybierz "Analizuj | Ustaw pomiary" z paska menu i kliknij "Obszar" i "OK".
- Wybierz "Plik | Otwórz" na pasku menu, aby otworzyć zapisany plik obrazu. Wybierz narzędzie do zaznaczania linii przedstawione na pasku narzędzi i utwórz linię prostą nad paskiem skali przedstawionym na obrazie. Wybierz "Analizuj | Ustaw skalę" z paska menu.
- W polu "Znana odległość" dodaj szerokość paska skali obrazu w μm. Zdefiniuj "Jednostkę długości" jako μm. Kliknij "Globalny", aby zachować ustawienia i "OK". Wybierz opcję Owalne zaznaczenie na pasku narzędzi.
- Dla każdej agregacji wyznacz obszar za pomocą narzędzia owal. Wybierz "Analizuj | Środek". Oblicz ich średnicę na podstawie zmierzonej powierzchni, biorąc pod uwagę, że agregaty są w przybliżeniu kuliste za pomocą
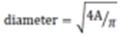
gdzie A oznacza powierzchnię agregatu.
- Gdy średnia średnica kruszywa wynosi 100 μm, 80% zużytego podłoża należy zastąpić świeżym mTeSR1 bez ROCKi. Gdy agregaty osiągną średnicę 200–250 μm, zastąp całe zużyte podłoże gfCDM (Tabela 1), pozwalając organoidom osiąść na dnie bioreaktora.
nuta: Jeżeli średnia średnica kruszywa przekracza 350 μm, nie należy rozpoczynać protokołu różnicowania. Powtórz wysiewanie pojedynczych komórek. Zazwyczaj potrzeba około 1 dnia, aby kruszywo osiągnęło średnią średnicę 100 μm.
- Umieścić bioreaktor zawierający agregaty w uniwersalnej jednostce bazowej umieszczonej w inkubatorze w temperaturze 37 °C, wilgotności 95% i 5% CO2 .
- Zmniejsz mieszanie bioreaktora do 25 obr./min.
- W dniu 2 powtórz kroki 2.2, 2.3 i 2.4, aby ocenić średnicę kruszywa. Dodać 30 μl FGF2 (stężenie końcowe, 50 ng/ml) i 60 μl SB431542 (stężenie końcowe, 10 μM) do 60 ml pożywki różnicującej gfCDM (tabela 1). Zastąp wszystkie zużyte pożywki z bioreaktora uzupełnionym gfCDM. Powtórz krok 2.6.
UWAGA: SB431542 ma kluczowe znaczenie dla hamowania różnicowania mezendodermalnego, indukując różnicowanie neuronalne. FGF2 jest stosowany do promowania kaudalizacji tkanki neuronabłonkowej.
- W dniu 5 powtórz kroki 2.2, 2.3, 2.4 i 2.8.
nuta: Wielkość agregatu powinna wzrosnąć podczas protokołu różnicowania. Jednak średnica ma kluczowe znaczenie tylko wtedy, gdy rozpoczyna się różnicowanie, ponieważ ten parametr może wpływać na skuteczność różnicowania.
- W dniu 7 powtórz kroki 2.2, 2.3 i 2.4. Rozcieńczyć FGF2 i SB431542 do 2/3: Dodać 20 μl FGF2 i 40 μl SB431542 do 60 ml pożywki różnicującej gfCDM. Zastąp wszystkie zużyte pożywki z bioreaktora uzupełnionym gfCDM. Powtórz krok 2.6 i zwiększ mieszanie bioreaktora do 30 obr./min.
- W dniu 14 powtórz kroki 2.2, 2.3 i 2.4. Dodać 60 μl FGF19 (stężenie końcowe, 100 ng/ml) do 60 ml pożywki różnicującej gfCDM. Zastąp wszystkie zużyte pożywki z bioreaktora gfCDM uzupełnionym FGF19. Powtórz krok 2.6.
nuta: FGF19 jest stosowany do promowania polaryzacji struktur śródmózgowia.
- W dniu 18 powtórz kroki 2.2, 2.3, 2.4 i 2.11.
- W dniu 21 powtórz kroki 2.2, 2.3 i 2.4. Zastąp całą zużytą pożywkę z bioreaktora kompletną pożywką neurobazalną (Tabela 1). Powtórz krok 2.6.
nuta: Pożywka neuropodstawowa to podstawowa pożywka stosowana do utrzymania populacji komórek neuronalnych w organoidzie.
- W dniu 28 powtórz kroki 2.2, 2.3 i 2.4. Dodać 180 μl SDF1 (stężenie końcowe, 300 ng/ml) do 60 ml kompletnego podłoża neurobazalnego. Zastąp całą zużytą pożywkę z bioreaktora kompletną pożywką neurobazalną uzupełnioną SDF1. Powtórz krok 2.6.
nuta: SDF1 służy do ułatwienia organizacji odrębnych warstw komórek.
- W 35. dniu powtórz kroki 2.2, 2.3 i 2.4. Zastąp wszystkie zużyte pożywki z bioreaktora kompletną pożywką BrainPhys (Tabela 1). Powtórz krok 2.6.
nuta: BrainPhys to pożywka neuronalna, która wspiera neurony aktywne synaptycznie.
- Zastępuj 1/3 całkowitej objętości co 3 dni kompletną pożywką BrainPhys aż do 90 dnia różnicowania.
Tabela 1: Roztwory podstawowe i przygotowanie pożywki. Wymieniono wszystkie składniki i objętości używane do przygotowania pożywek do protokołu konserwacji i różnicowania iPSC, a także roztwory podstawowe czynników wzrostu i małych cząsteczek. W przypadku roztworów podstawowych wymienione są wszystkie stężenia podstawowe i protokoły dotyczące rekonstytucji.
| Przygotowanie nośnika | mTeSR1
Objętość końcowa: 500 ml | 1. Rozmrozić suplement mTeSR1 5× w temperaturze pokojowej (RT) lub w temperaturze 4 °C przez noc i wymieszać z podłożem podstawowym
2. Przechowywać kompletną pożywkę mTeSR1 w temperaturze 4 °C przez okres do 2 tygodni lub przygotować 40 ml porcji i przechowywać w temperaturze -20 °C
3. Przed użyciem podgrzej kompletny mTeSR1 w temperaturze pokojowej |
gfCDM (pożywka chemicznie zdefiniowana bez czynnika wzrostu)
Objętość końcowa: 60 ml | 30 ml Ham's F12 30 ml IMDM 600 μl chemicznie zdefiniowany koncentrat lipidowy (1 % v/v) 2,4 μl monotioglicerolu (450 μM) 30 μL apo-transferyny (roztwór podstawowy o stężeniu 30 mg/ml w wodzie, stężenie końcowe: 15 μg/ml) 300 mg BSA oczyszczonego krystalizacją (5 mg/mL) 42 μL insuliny (stężenie podstawowe przy 10 mg/ml, stężenie końcowe: 7 μg/mL) 300 μL P/S (0,5% v/v, 50 U/ml penicyliny/50 μg/ml streptomycyny) |
Neurobasal
Objętość końcowa: 60 ml | 60 ml pożywki Neurobasel 600 μL suplementu N2 600 μL Glutamax I 300 μL P/S (0,5 % v/v). |
Kompletny BrainPhys
Objętość końcowa: 60 ml | 60 ml BrainPhys 1,2 ml NeuroCult SM1 Neuronal Supplement 600 μL N2 Suplement 12 μL BDNF (stężenie końcowe: 20 ng/mL) 12 μL GDNF (stężenie końcowe: 20 ng/mL) 300 μL Dibutyryl-cAMP (stężenie podstawowe: 100 mg/ml w wodzie, stężenie końcowe: 1 mM) 42 μL kwas askorbinowy (stężenie podstawowe: 50 μg/ml w wodzie, stężenie końcowe: 200 nM) |
| Roztwory podstawowe czynników wzrostu i małych cząsteczek | Zasadowy czynnik wzrostu fibroblastów (bFGF/FGF2)
Stężenie magazynowe: 100 μg/ml | 1. Rozpuścić w 5 mM Tris, pH 7,6, w stężeniu 10 mg/mL
2. Rozcieńczyć 0,1 % BSA w PBS (v/v) do końcowego stężenia wyjściowego 100 μg/ml |
Czynnik 1 pochodzenia zrębowego (SDF1)
Stężenie magazynowe: 100 μg/ml | 1. Rozpuścić w wodzie w stężeniu 10 mg/mL
2. Rozcieńczyć 0,1 % BSA (v/v) w PBS do końcowego stężenia wyjściowego 100 μg/ml. |
Neurotroficzny czynnik pochodzenia mózgowego (BDNF)
Stężenie podstawowe: 100 μg/ml< |
Czynnik neurotroficzny pochodzenia glejowego (GDNF)
Stężenie magazynowe: 100 μg/ml |
Czynnik wzrostu fibroblastów 19 (FGF19)
Stężenie magazynowe: 100 μg/ml | 1. Rozpuścić w 5 mM fosforan sodu o pH 7,4 w stężeniu 10 mg/ml
2. Rozcieńczyć 0,1 % BSA w PBS (v/v) do końcowego stężenia wyjściowego 100 μg/ml |
Inhibitor ROCK Y-27632
Koncentracja zapasów: 10mM | Rozpuść w DMSO w stężeniu 10 mM. |
SB431542
Koncentracja zapasów: 10mM |
Insulina
Stężenie podstawowe: 10 mg/ml | 1. Rozpuścić 10 mg insuliny w 300 μl 10 mM NaOH
2. Ostrożnie dodać 1 M NaOH, aż roztwór stanie się klarowny-przezroczysty
3. Napełnij do 1 ml sterylną wodą |
Tabela 2: Rozwiązania do przygotowania organoidów do kriosekcji i barwienia immunologicznego. Wymieniono wszystkie składniki i objętości używane do przygotowania roztworów stosowanych do przygotowania organoidów do kriosekcji i barwienia immunologicznego.
Żelatyna/sacharoza
Stężenie końcowe: 7,5%/15% w/w | 1. Zważ 15 g sacharozy i 7,5 g żelatyny w sterylnej szklanej butelce Schott i dobrze wymieszaj
2. Podgrzej PBS 1× w temperaturze 65 °C
3. Dodaj wstępnie podgrzany PBS 1× do końcowej masy 100 g i dobrze wymieszaj
4. Umieść szklaną butelkę Schott na płycie grzewczej o temperaturze 65 °C i potrząsaj, aż żelatyna się rozpuści
5. Inkubować w temperaturze 37 °C do momentu ustabilizowania się roztworu |
