Opisujemy protokół służący do identyfikacji kluczowych ról cząsteczek sygnałowych gospodarza w litycznej replikacji modelowego herpeswirusa, gamma herpeswirusa 68 (γHV68). Wykorzystując genetycznie zmodyfikowane szczepy myszy oraz fibroblasty zarodkowe do litycznej replikacji γHV68, protokół ten umożliwia zarówno charakterystykę fenotypową, jak i analizę molekularną oddziaływań wirus-gospodarz podczas litycznej replikacji wirusa.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Analiza oddziaływań gospodarz-wirus podczas litycznej replikacji modelowego herpeswirusa
W tym artykule
Podsumowanie
Streszczenie
W odpowiedzi na infekcję wirusową organizm gospodarza wykształca różnorodne odpowiedzi obronne, takie jak aktywacja wrodzonych szlaków sygnalizacji immunologicznej, które prowadzą do produkcji cytokin przeciwwirusowych1,2. Aby skolonizować gospodarza, wirusy muszą unikać jego odpowiedzi przeciwwirusowych i manipulować szlakami sygnalizacyjnymi. Zrozumienie interakcji między gospodarzem a wirusem pozwoli na opracowanie nowych strategii terapeutycznych przeciwko infekcjom wirusowym.
Mysi wirus γHV68 jest blisko spokrewniony z ludzkim onkogennym wirusem związanym z ziarniakowładzakem Kaposiego oraz wirusem Epsteina-Barr3,4. Infekcja γHV68 u myszy laboratoryjnych stanowi praktyczny model małego zwierzęcia do badania całego przebiegu odpowiedzi gospodarza i infekcji wirusowej in vivo, co nie jest możliwe w przypadku ludzkich herpeswirusów. W niniejszym protokole przedstawiamy panel metod do charakterystyki fenotypowej i molekularnej analizy komponentów sygnalizacyjnych gospodarza podczas litycznej replikacji γHV68 zarówno in vivo, jak i ex vivo. Dostępność genetycznie zmodyfikowanych szczepów myszy umożliwia badanie roli szlaków sygnalizacyjnych gospodarza podczas ostrej infekcji γHV68 in vivo. Ponadto embrionalne fibroblasty mysie (MEFs) wyizolowane z tych deficyjnych szczepów myszy mogą być wykorzystane do dalszej analizy roli tych cząsteczek podczas litycznej replikacji γHV68 ex vivo.
Wykorzystując testy wirusologiczne i biologii molekularnej, możemy precyzyjnie określić mechanizm molekularny oddziaływań gospodarz-wirus oraz zidentyfikować geny gospodarza i wirusa niezbędne do litycznej replikacji wirusa. Wreszce system bakteryjnego sztucznego chromosomu (BAC) umożliwia wprowadzenie mutacji do czynnika (czynników) wirusowych, które specyficznie przerywają oddziaływanie gospodarz-wirus. Rekombinowany szczep γHV68 niosący te mutacje może być wykorzystany do odtworzenia fenotypów litycznej replikacji γHV68 w MEF z deficytem kluczowych komponentów sygnalizacyjnych gospodarza. Niniejszy protokół stanowi doskonałą strategię badania oddziaływań gospodarz-patogen na wielu poziomach interwencji in vivo oraz ex vivo.
Niedawno odkryliśmy, że γHV68 przejmuje szlak sygnałowy odporności wrodzonej w celu promowania litycznej replikacji wirusa5. Konkretnie, infekcja de novo γHV68 aktywuje kinazę immunologiczną IKKβ, a aktywowana IKKβ fosforyluje główny wirusowy czynnik transkrypcyjny, replikator i transaktywator (RTA), aby promować wirusową aktywację transkrypcyjną. W ten sposób γHV68 skutecznie wiąże swoją aktywację transkrypcyjną z aktywacją wrodzonej odporności gospodarza, ułatwiając tym samym transkrypcję wirusa i replikację lityczną. Niniejsze badanie stanowi doskonały przykład, który można zastosować do innych wirusów w celu analizy interakcji między gospodarzem a wirusem.
Protokół
1. Zakażanie myszy wirusem γHV68
- Do infekcji wirusowej wykorzystuje się myszy z jednego miotu, w wieku od sześciu do ośmiu tygodni, o tej samej płci (8 do 12 myszy na grupę). Po transporcie należy zapewnić myszom cztery pełne dni (96 godzin) na aklimatyzację.
- Kroki protokołu z wykorzystaniem wirusa należy przeprowadzać w komorze bezpieczeństwa biologicznego poziomu 2 (BSL2), stosując standardowe środki ostrożności BSL2.
- Bezpośrednio przed eksperymentem należy przygotować zawiesinę wirusową γHV68 (40 do 1 x 10⁵ jednostek tworzących plaki [PFU]) w 30 μl sterylnego PBS na mysz. Zawiesinę wirusową należy przechowywać w lodzie.
- Przygotować roztwór ketaminy/ksylazyny (1,5 mg ketaminy i 0,15 mg ksylazyny na 20 g masy ciała, 100 μl/mysz) do sedacji myszy. Sedację należy potwierdzić, wykonując ucisk palca u nogi.
- Myszy należy poddać sedacji poprzez wstrzyknięcie dootrzewnowe 1,5 mg ketaminy i 0,15 mg ksylazyny na 20 mg masy ciała (100 μl/mysz).
- Zawiesinę wirusową (30 μl/mysz) należy podać donosowo, kroplami, do jednej nozdrza zsedowanych myszy.
- Myszy należy położyć na boku na 5 - 10 min, aby ułatwić dostanie się wirusa drogami oddechowymi do płuc.
- Myszy należy umieścić z powrotem w klatce i monitorować do czasu pełnego wybudzenia z sedacji.
- W określonych dniach po infekcji myszy należy uśmiercić poprzez uduszenie CO2 i pobrać płuca po upewnieniu się o zgonie lub utracie głębokiej przytomności. Płuca należy umieścić w sterylnych probówkach z nakrętką o pojemności 1,5 ml zawierających 500 μl kulek cyrkonowo-krzemionkowych o średnicy 1,0 mm. Probówki należy przechowywać w lodzie. Jeśli następny krok nie zostanie wykonany tego samego dnia, próbki należy przechowywać w temperaturze -80°C. W zależności od ram czasowych eksperymentu, w tym momencie można pobrać tkankę śledziony lub wątroby do analizy latencji wirusa.
- Do probówki należy dodać 1 ml zimnego, bezzれたowego DMEM i zhomogenizować płuca za pomocą homogenizatora kulkowego przez 30 sekund. Probówki należy schładzać w lodzie przez co najmniej 1 min. Proces ten należy powtórzyć raz.
- Lizaty płuc należy odwirować przy 16 000 rcf w temperaturze 4°C przez 1 min, a supernatant wykorzystać do oznaczenia miana wirusa za pomocą testu plackowego na monowarstwie komórek NIH3T3 lub BHK21 (szczegóły w sekcji 5).
2. Wyznaczenie kinetyki wieloetapowego wzrostu γHV68 w embrionalnych fibroblastach myszych
- Hodować embrionalne fibroblasty mysie (MEF) typu dzikiego oraz te z niedoborem genu gospodarza do gęstości subkonfluencyjnej (około 80%) przed wysianiem komórek.
- Wysiać MEF na płytkę 24-dołkową w zagęszczeniu 10 000 komórek/dołek dla niskiej wielokrotności infekcji (MOI) w dniu poprzedzającym infekcję. Eksperymenty są zazwyczaj przeprowadzane w trzech powtórzeniach i zazwyczaj stosuje się MOI w zakresie 0,001 - 0,05.
- Przygotować zawiesinę γHV68 zawierającą pożądaną ilość wirusa (0,5 ml na dołek).
- Usunąć pożywkę i pokryć MEF zawiesiną γHV68 w ilości 0,5 ml na dołek.
- Inkubować płytkę w inkubatorze do hodowli tkankowych, kołysząc nią co 30 min; inkubację prowadzić przez 2 h.
- Usunąć zawiesinę wirusową i pokryć komórki 0,5 ml świeżej, pełnej pożywki DMEM zawierającej 8% płodowej surowicy bydlęcej.
- W różnych dniach po infekcji zebrać pożywkę i komórki do sterylnych probówek wirówkowych o pojemności 1,5 ml. Natychmiast zamrozić probówki w temperaturze -80°C.
- Uwolnić γHV68 z MEF poprzez zamrażanie w -80°C, rozmrażanie w łaźni wodnej o temperaturze 37°C i mieszanie w wortexie. Do próbek zazwyczaj stosuje się trzy cykle zamrażania i rozmrażania.
- Wyznaczyć miano wirusa za pomocą testu plackowego z użyciem monowarstwy NIH3T3 lub BHK21 (szczegóły w sekcji 5).
- Odczytać miano wirusa i wykreślić wielostopniową krzywą wzrostu γHV68 na MEF.
3. Molekularna analiza litycznej replikacji γHV68 w zarodkowych fibroblastach mysich
- Przeprowadź infekcję wirusową zgodnie z opisem w krokach 2.1 do 2.6 sekcji 2.
- W różnych dniach po infekcji odlej nadsącz. Przepłucz komórki zimnym PBS i poddaj je trypsynizacji. Wirowarką osadź komórki przy 1,000 rcf w temperaturze pokojowej przez 1 min. Odlej nadsącz i przechowuj komórki w temperaturze -80°C.
- Wyizoluj całkowite DNA (genom gospodarza i wirusa) oraz całkowite RNA zgodnie z wcześniej opisanymi metodami5,6.
- Przeprowadź reakcję real-time PCR, wykorzystując całkowite DNA oraz startery specyficzne dla litycznych transkryptów wirusa, takich jak RTA (ORF50), ORF57 i ORF60. Określ względną ilość wewnątrzkomórkowego genomu γHV68 w odniesieniu do genu gospodarza odpowiedzialnego za podstawowe funkcje komórkowe (np. β-actin).
- W celu usunięcia zanieczyszczeń w postaci DNA genomicznego, kluczowe dla przygotowania cDNA z całkowitego RNA i startera oligo(dT)11-19 jest zastosowanie DNazy wolnej od RNazy. Szczegółowe informacje na temat izolacji RNA, w tym traktowania DNazą wolną od RNazy oraz RT-PCR, znajdują się w pozycji bibliograficznej 5. Przeprowadź reakcję real-time PCR z użyciem cDNA i starterów opisanych powyżej, aby określić względną ilość transkryptów wirusowych w odniesieniu do ilości transkryptu genu gospodarza odpowiedzialnego za podstawowe funkcje komórkowe.
4. Generowanie rekombinowanego γHV68 z wykorzystaniem bakteryjnego sztucznego chromosomu
Metoda opisana w niniejszym materiale służy do wprowadzania mutacji do genu γHV68 zaangażowanego w interakcję gospodarz-wirus.
- Za pomocą PCR przygotować fragment DNA (około 1,5 kb) o sekwencji typu dzikiego lub sekwencji zawierającej pożądane mutacje w regionie centralnym.
- Za pomocą oczyszczania w skali midi (OriGene) przygotować bakteryjny sztuczny chromosom (BAC) zawierający insercję transpozonu7 w obrębie miejsca mutacji, co specyficznie inaktywuje badany gen. DNA BAC przechowywać w temperaturze 4°C (należy unikać zamrażania i rozmrażania DNA BAC).
- DNA BAC oraz produkt PCR zawierający pożądane mutacje badanego genu przetransfekować do komórek (np. NIH3T3 lub BHK21), które są wysoce podatne na replikację lityczną γHV68, przy użyciu Lipofectamine 2000 (Invitrogen).
- Kontynuować pasażowanie komórek aż do momentu pojawienia się efektu cytopatycznego (CPE) w monowarstwie. Zebrać supernatant zawierający wirusa i, jeśli jest to konieczne, namnożyć wirusa w komórkach NIH3T3 lub BHK21.
- Zainfekować komórki NIH3T3 wirusem rekombinowanym poprzez wirowanie przy 1800 rpm w temperaturze 30°C przez 30 min.
- Zebrać zainfekowane γHV68 komórki NIH3T3 i przygotować cyrkularyzowany genom wirusowy zgodnie z protokołem Hirta8,9.
- Przeprowadzić transformację kompetentnych komórek Electro-MAX DH10B (Invitrogen) metodą elektroporacji i wyselekcjonować kolonie oporne na chloramfenikol (Cm), ale wrażliwe na kanamycynę (Kan) (gen oporności na Cm znajduje się w szkielecie BAC, natomiast gen oporności na Kan w insercji transpozonu).
- Hodować kolonie CmRKanS w pożywce zawierającej chloramfenikol i przygotować DNA BAC za pomocą oczyszczania w skali mini lub midi (OriGene).
- Zweryfikować pożądaną mutację w docelowym genie za pomocą PCR, stosując startery specyficzne dla regionów flankujących miejsce mutacji, oraz za pomocą sekwencjonowania.
- Potwierdzić brak rearanżacji chromosomowych w BAC poprzez trawienie wybranymi enzymami restrykcyjnymi i elektroforezę w polu pulsującym.
- Rekombinowany BAC przetransfekować do komórek NIH 3T3 lub BHK21 przy użyciu Lipofectamine 2000 (Invitrogen) w celu przygotowania rekombinowanego γHV68.
- Kontynuować pasażowanie komórek aż do momentu pojawienia się CPE w monowarstwie. Zebrać supernatant zawierający wirusa i namnożyć rekombinowany γHV68 w komórkach NIH3T3 lub BHK21.
- Wyznaczyć miano wirusa rekombinowanego i scharakteryzować właściwości wzrostu wirusa ex vivo oraz in vivo zgodnie z opisem w sekcjach 1 i 2.
5. Wyznaczenie miana wirusa za pomocą testu plackowego
- Hodować komórki NIH3T3 do gęstości subkonfluencyjnej (około 80%) przed wysianiem komórek.
- Wysiać komórki NIH3T3 na płytkę 24-dołkową w zagęszczeniu 20 000 komórek/dołek w dniu poprzedzającym infekcję.
- Przygotować 10-krotne rozcieńczenia seryjne supernatantów wirusowych w medium DMEM zawierającym 8% surowicy z noworodka cielęcia (NCS).
- Usunąć medium i przykryć komórki NIH3T3 0,5 ml zawiesiny γHV68.
- Inkubować płytkę w inkubatorze do hodowli tkankowych, kołysząc nią co 30 min, i kontynuować inkubację przez 2 h.
- Usunąć zawiesinę wirusową i przykryć komórki 0,5 ml medium DMEM zawierającego 2% NCS i 0,75% metylocelulozy (Sigma).
- Inkubować płytkę w inkubatorze do hodowli tkankowych. Zliczyć plaki w 6. dniu po infekcji. Barwienie monowarstwy, np. fioletem krystalicznym, może ułatwić liczenie plaków.
- Obliczyć miano wirusa w nierozcieńczonych lizatach tkanek lub lizatach komórkowych, korzystając z następującego wzoru: Titer (PFU/ml) = D x N x 1000 μl/ml ÷ V μl. Gdzie N to średnia liczba plaków przy odpowiednim rozcieńczeniu; D to stopień rozcieńczenia (np. 5, 10, 100...); V (μl) to objętość dodanego do dołka rozcieńczonego seryjnie supernatantu.
6. Reprezentatywne wyniki:
Przedstawiono tutaj trzy reprezentatywne rysunki, w tym replikację lityczną γHV68 w płucach myszy typu dzikiego oraz Mavs-/-10, fenotypy replikacji litycznej γHV68 w embrionalnych fibroblastach mysich (MEF) oraz rekombinowany γHV68 zawierający mutacje w miejscach fosforylacji modulowanych przez zależną od MAVS IKKβ. Te trzy potwierdzające eksperymenty stanowią schemat służący do określenia roli komponentów odporności wrodzonej w replikacji litycznej γHV68 in vivo oraz ex vivo.

Rysunek 1. Miano γHV68 w płucach myszy Mavs+/+ i Mavs-/-. A) Dwa główne szlaki sygnalizacji wrodzonej poniżej MAVS. Cząsteczka adaptorowa MAVS przekazuje sygnały z cytozolowych receptorów RIG-I-like w celu aktywacji NFκB oraz czynników regulacyjnych interferonu (IRFs), które z kolei zwiększają ekspresję genów cytokin prozapalnych i interferonów. B) Myszy Mavs+/+ oraz Mavs-/- zainfekowano donosowo dawką 40 PFU γHV68, a miano wirusa w płucach w określonych punktach czasowych określono za pomocą testu plackowego z wykorzystaniem monowarstwy NIH3T3. Każdy symbol reprezentuje jedną mysz.

Rysunek 2. Kinetyka replikacji litycznej γHV68 w embrionalnych fibroblastach mysich (MEFs). Replikację lityczną γHV68 w MEFs Mavs+/+ oraz Mavs-/- oceniono za pomocą wielostopniowych krzywych wzrostu (A) oraz ilościowej PCR w czasie rzeczywistym (B). W obu eksperymentach do infekcji wirusowej użyto równej liczby MEFs i ilości γHV68 przy wielokrotności infekcji (MOI) wynoszącej 0,01. (A) Komórki i nadsącz zbierano w określonych punktach czasowych i poddawano testowi plackowemu w celu określenia miana wirusa. (B) Całkowity RNA wyekstrahowano z MEFs zainfekowanych γHV68 i przeanalizowano za pomocą ilościowej PCR w czasie rzeczywistym z zastosowaniem starterów specyficznych dla wybranych transkryptów litycznych (RTA, ORF57 oraz ORF60).
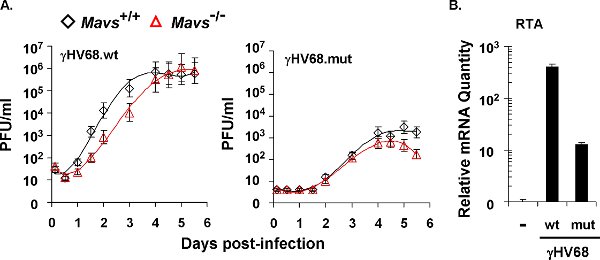
Rysunek 3. Kinetyka replikacji litycznej rekombinowanego γHV68 zawierającego mutacje w domenie transaktywacyjnej RTA, które znoszą fosforylację przez IKKγ. (A) Wielostopniowe krzywe wzrostu rekombinowanego wirusa typu dzikiego (γHV68.wt) oraz wirusa zmutowanego (γHV68.mut) w komórkach MEF Mavs+/+ i Mavs-/- (MOI=0,01). Komórki MEF zainfekowano γHV68 przy MOI wynoszącym 0,01. Komórki i nadsączone pobierano we wskazanych punktach czasowych, a miana wirusa określano za pomocą testu plackowego z wykorzystaniem monowarstwy NIH 3T3. (B) Poziom mRNA RTA γHV68 w zainfekowanych γHV68 komórkach NIH3T3 (MOI=0,01). W 30 h po infekcji z zainfekowanych γHV68 komórek NIH 3T3 wyizolowano całkowite RNA i przeanalizowano je za pomocą ilościowej reakcji PCR w czasie rzeczywistym.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W odpowiedzi na infekcję wirusową aktywowane są zależne od MAVS szlaki sygnalizacyjne odporności wrodzonej, aby promować produkcję przeciwirusowych cytokin zapalnych10-14. Wykorzystując mysi wirus γHV68 jako model wirusa dla ludzkiego onkogennego wirusa herpes związanego z ziarniakiem Kaposiego oraz wirusa Epstein-Barr3,4, odkryliśmy, że γHV68 zawłaszcza szlak MAVS-IKKβ, aby promować lityczną replikację wirusa poprzez aktywację transkrypcyjną5. Dzięki zastosowaniu genetycznie zmodyfikowan...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie zgłoszono żadnych konfliktów interesów.
Podziękowania
Autorzy chcieliby podziękować dr. Jamesowi (Zhijian) Chenowi (UT Southwestern, biologia molekularna) za dostarczenie niezbędnych odczynników, w tym myszy Mavs-/-, oraz dr. Ren Sun (University of California-Los Angeles, farmakologia i medycyna molekularna) za udostępnienie bakteryjnego sztucznego chromosomu γHV68 na potrzeby niniejszego badania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Lipofectamine 2000 | Invitrogen | 11668-019 | |
| Komórki kompetentne Electro-MAX DH10B | Invitrogen | 18290-015 | |
| Metyloceluloza | Sigma-Aldrich | M0512 | |
| Zestaw do minipreparacji plazmidów POWERPREP HP | OriGene | NP100004 | |
| Zestaw do midipreparacji plazmidów POWERPREP HP | OriGene | NP100006 |
Bibliografia
- Akira, S., Uematsu, S., Takeuchi, O. Pathogen recognition and innate immunity. Cell. 124, 783-801 (2006).
- Medzhitov, R. Recognition of microorganisms and activation of the immune response. Nature. 449, 819-826 (2007).
- Speck, S. H., Virgin, H. W. Host and viral genetics of chronic infection: a mouse model of gamma-herpesvirus pathogenesis. Curr. Opin. Microbiol. 2, 403-409 (1999).
- Speck, S. H., Ganem, D. Viral latency and its regulation: lessons from the gamma-herpesviruses. Cell Host Microbe. 8, 100-115 (2010).
- Dong, X. Murine gamma-herpesvirus 68 hijacks MAVS and IKKbeta to initiate lytic replication. PLoS Pathog. 6, e1001001-e1001001 (2010).
- Strauss, W. M. Preparation of genomic DNA from mammalian tissues. Current Protocols in Molecular Biology. Ausubel, F. M. , John Wiley & Sons, Inc. 2-2 (1998).
- Song, M. J. Identification of viral genes essential for replication of murine gamma-herpesvirus 68 using signature-tagged mutagenesis. Proc. Natl. Acad. Sci. U. S. A. 102, 3805-3810 (2005).
- Hirt, B. Selective extraction of polyoma DNA from infected mouse cell cultures. J. Mol. Biol. 26, 365-369 (1967).
- Zhao, S., Stodolsky, M. Cloning of β-herpesvirus genomes as bacterial artificial chromosomes. Methods in Molecular Biology. , Humana Press Inc. 256-256 (2004).
- Sun, Q. The specific and essential role of MAVS in antiviral innate immune responses. Immunity. 24, 633-642 (2006).
- Seth, R. B., Sun, L., Ea, C. K., Chen, Z. J. Identification and characterization of MAVS, a mitochondrial antiviral signaling protein that activates NF-kappaB and IRF 3. Cell. 122, 669-682 (2005).
- Kawai, T. IPS-1, an adaptor triggering RIG-I- and Mda5-mediated type I interferon induction. Nat. Immunol. 6, 981-988 (2005).
- Meylan, E. Cardif is an adaptor protein in the RIG-I antiviral pathway and is targeted by hepatitis C virus. Nature. 437, 1167-1172 (2005).
- Xu, L. G. VISA is an adapter protein required for virus-triggered IFN-beta signaling. Mol. Cell. 19, 727-740 (2005).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
