Opisujemy szczurzy model zespołu stresu pourazowego (PTSD), który wykazuje trwałe zmiany w funkcji neuroendokrynnej oraz opóźnioną, długotrwałą i nasiloną reakcję lękową, charakterystyczną dla pacjentów z PTSD. Opisany tutaj model zwierzęcy oraz metody są przydatne do korelacji biomarkerów w jądrach mózgu, które mają charakter mechanistyczny, ale nie mogą być mierzone u pacjentów, z biomarkerami w obwodowych leukocytach, które podlegają pomiarowi.
Artykuł metodologiczny
Biomarkery w modelu zwierzęcym służące do ujawnienia korelatów neuronalnych, hematologicznych i behawioralnych PTSD
W tym artykule
Podsumowanie
Streszczenie
Identyfikacja biomarkerów reprezentujących ewolucję patofizjologii zespołu stresu pourazowego (PTSD) jest niezwykle istotna, nie tylko dla obiektywnej diagnostyki, ale także dla oceny skuteczności terapeutycznej i odporności na traumę. Trwające badania są nakierowane na identyfikację molekularnych biomarkerów PTSD, w tym białek indukowanych stresem traumatycznym, transkryptomów, wariantów genomicznych i modulatorów genetycznych, z wykorzystaniem próbek biologicznych krwi, śliny, moczu oraz pośmiertnych tkanek mózgowych badanych osób. Jednakże korelacja tych cząsteczek biomarkerowych w próbkach obwodowych lub pośmiertnych ze zmienionymi funkcjami mózgu związanymi z objawami psychiatrycznymi w PTSD pozostaje nierozwiązana. W niniejszej pracy przedstawiamy zwierzęcy model PTSD, w którym można zebrać i zmierzyć zarówno biomarkery krwi obwodowej i ośrodkowego układu nerwowego, jak i fenotyp behawioralny, zapewniając tym samym niezbędną korelację ośrodkowych biomarkerów PTSD, które są mechanistyczne i patognomoniczne, lecz nie mogą być pobierane od ludzi, z biomarkerami obwodowymi i fenotypami behawioralnymi, które są możliwe do zmierzenia.
Nasz model zwierzęcy PTSD wykorzystuje unieruchomienie i wstrząsy ogona powtarzane przez trzy kolejne dni – model nieuniknionych wstrząsów ogona (ITS) u szczurów. Ten model ITS naśladuje patofizjologię PTSD 17, 7, 4, 10. My oraz inni badacze potwierdziliśmy, że model ITS indukuje zmiany behawioralne i neurobiologiczne podobne do tych stwierdzanych u osób z PTSD 17, 7, 10, 9. W szczególności szczury poddane stresowi wykazują (1) opóźnioną i wyolbrzymioną reakcję przestrachu pojawiającą się kilka dni po ustaniu stresora, co – biorąc pod uwagę skróconą skalę czasową życia szczura w porównaniu do człowieka – odpowiada opóźnieniu wystąpienia objawów od jednego do trzech miesięcy u pacjentów z PTSD (DSM-IV-TR PTSD kryterium D/E 13), (2) podwyższony poziom kortykosteronu (CORT) w osoczu przez kilka dni, co wskazuje na zaburzenie osi podwzgórze-przysadka-nadnercza (HPA), oraz (3) spowolniony przyrost masy ciała po ustaniu stresora, co wskazuje na dysfunkcję regulacji metabolicznej.
Paradygmaty eksperymentalne zastosowane w tym modelu to: (1) paradygmat wyuczonej bezradności u szczura, oceniany poprzez pomiar reakcji zaskoczenia akustycznego (ASR) oraz monitorowanie masy ciała; (2) mikrodisekcja mózgu szczura z podziałem na regiony i jądra; (3) test immunoenzymatyczny (ELISA) w celu oznaczenia poziomu CORT we krwi; (4) mikromacierze ekspresji genów wraz z powiązanymi narzędziami bioinformatycznymi 18. Mikromacierza ta, nazwana rMNChip, koncentruje się na genach mitochondrialnych oraz jądrowych związanych z mitochondriami u szczura, aby w sposób specyficzny zbadać bioenergetykę neuronalną, która według hipotezy bierze udział w PTSD.
Protokół
1. Model behawioralny PTSD u zwierząt
- Obiekty badań: Wykorzystano samce szczurów albinosów linii Sprague Dawley (Taconic Farms, Derwood, MD) o masie ciała od 150 do 200 g w momencie rozpoczęcia protokołu stresowego.
- Pomiar spożycia pokarmu, wody i przyrostu masy ciała: Po przybyciu do laboratorium szczury o masie 100 ± 25 g kwaterowano po dwa zwierzęta w klatce (wymiary klatki: 45x24x20 cm). Podłoże ściółkowe w klatkach (wióry drewniane) wymieniano dwa razy w tygodniu. Na tydzień przed eksperymentami zwierzęta utrzymywano w środowisku z kontrolowaną temperaturą (22 ± 4 °C) i wilgotnością względną (30-70%) w odwróconym 12-godzinnym cyklu oświetlenia (światło zapalone: 18:00–06:00, zgaszone: 06:00–18:00). W klatkach zapewniono swobodny dostęp do wody i standardowej paszy peletowanej (Harlan (2018) 18% protein Rodent diet, Global diets, Harlan Teklad), a masę ciała rejestrowano codziennie na 3 dni przed, 3 dni w trakcie i 3 dni po zakończeniu stresu.
- Aklimatyzacja: Szczury aklimatyzowano przez trzy dni zarówno do pomieszczenia dla zwierząt, jak i do komory pomiaru reakcji startlowej. W celu aklimatyzacji do komory pomiaru reakcji startlowej, zwierzęta umieszczano w niej na 5 min każdego dnia przez trzy kolejne dni przed rozpoczęciem pomiarów.
- Protokół stresowy: Zwierzęta przydzielono równomiernie do grup na podstawie masy ciała i bazowej reakcji startlowej. Badaniem objęto dwie grupy zwierząt, z których każda składała się z 16 osobników. Grupa 1 została poddana protokołowi stresowemu, a Grupa 2 stanowiła grupę kontrolną.
Protokół ekspozycji na stres polegał na ciągłej, 2-godzinnej procedurze, w której każda sesja obejmowała unieruchomienie („nieuniknione”) oraz wstrząsy elektryczne ogona, powtarzane raz dziennie przez 3 kolejne dni. Stresowanie przeprowadzano rano (w przedziale czasowym od 08:00 do 12:00). Zwierzęta unieruchamiano w wentylowanej rurce z pleksiglasu. Czterdzieści wstrząsów elektrycznych (2 mA, czas trwania 3 s; Animal Test Cage Grid Floor Shocker, Coulbourn Instruments, USA) podawano do ogonów w półlosowych odstępach od 150 do 210 s (oprogramowanie Graphic State Notation, Habitest Universal Link, Coulbourn Instruments, USA). Stymulację natężeniem 2 mA wybrano dlatego, że jest ona awersyjna, ale nie bolesna, gdy wyjście stymulujące zostanie przyłożone do palca eksperymentatora. Za pomocą patyczka Q-tip nakładano żel elektrodowy, aby utworzyć cienką warstwę żelu przewodzącego między elektrodą a skórą ogona szczura. Klipsy elektrod dopasowano i przymocowano do ogona, aby zapewnić dobre połączenie bez wpływania na krążenie krwi w ogonie. - Akustyczna reakcja startlowa (ASR): Pomiar akustycznej reakcji startlowej przeprowadzono za pomocą systemu Startle Response Acoustic Test System (Coulbourn Instruments, Columbus, Ohio, USA) 3. System ten składa się z platform wrażliwych na nacisk w komorze wygłuszonej. Przetwornik, będący tensometrem w każdej z platform startlowych, wymaga kalibracji przed użyciem. Najpierw sprzęgacz musi znajdować się w trybie sprzężenia DC w celu kalibracji. W tym trybie wyjście sprzęgacza bezpośrednio podąża za sygnałem wejściowym z platformy, co jest wymagane do kalibracji za pomocą ciężarków statycznych. Podczas eksperymentów przetwornik przełączany jest w tryb sprzężenia AC, tak aby wyjściem była tylko szybka zmiana siły, wskazująca na reakcję startlową. Ruchy zwierząt w odpowiedzi na bodźce dźwiękowe są zatem mierzone jako zmiana napięcia przez tensometr wewnątrz każdej platformy i rejestrowane jako maksymalna odpowiedź występująca w ciągu 200 ms od początku bodźca wywołującego startle.
Zastosowano sześć typów prób bodźcowych: 100 dB samodzielnie, 100 dB z pre-pulsem, 110 dB samodzielnie, 110 dB z pre-pulsem, pre-puls samodzielnie oraz kontrola bez bodźca. Każdy typ próby zaprezentowano osiem razy. Typy prób prezentowano w losowej kolejności, aby uniknąć efektów sekwencji i habituacji. Odstępy między próbami wynosiły losowo od 15 do 25 s. Z ośmiu prób do wyników zbierano wyłącznie wartości maksymalne, które następnie korygowano względem masy ciała zwierzęcia z tego samego dnia. Zwierzęta badano jeden dzień przed stresem lub innym zabiegiem w celu uzyskania odczytu bazowego oraz 1, 7, 14 i 21 dni po ostatnim dniu z trzech kolejnych dni procedury stresowej lub innego zabiegu. - Analiza danych:
- ASR: Amplituda akustycznej reakcji startlowej badana w każdym punkcie czasowym jest przedstawiona jako „% wartości bazowej”, obliczana zgodnie z równaniem: % wartości bazowej = (amplituda bezwzględna / bazowa amplituda bezwzględna) × 100%. Dla każdego dnia testowego przeprowadzono analizę wariancji (ANOVA) z powtarzanymi pomiarami dla amplitud startlowych z uwzględnieniem czynników statusu stresu i dawki leku przy użyciu oprogramowania SPSS (wersja 16). Do oceny istotnych różnic post-hoc między poszczególnymi grupami zastosowano testy Tukeya, Bonferroniego lub Dunnetta. Dane przedstawiono jako średnia ± S.E.M.
- Wzrost: Masę ciała oraz spożycie pokarmu i wody mierzono w dniu -1 poprzedzającym stres oraz w dniach 14, 21 i 30 po zakończeniu protokołu stresowego. Analiza statystyczna: Dane dotyczące spożycia pokarmu i wody poddano jednoczynnikowej analizie wariancji z powtarzanymi pomiarami (ANOVA). Aby przeanalizować zmiany w tempie spożycia pokarmu w czasie, ilość spożytego pokarmu podzielono przez masę ciała osobnika, aby zminimalizować wariancję masy ciała wywołaną protokołem stresowym oraz początkową różnicę w masie ciała między grupami. Wszystkie procedury przeprowadzono za zgodą Instytucjonalnego Komitetu Opieki i Użytkowania Zwierząt (IACUC).
2. Disekcja mózgu
- Instrumenty i materiały:
- Słoik do znieczulania: szklany słoik z pokrywką o wysokości około 15 cm i średnicy około 13 cm, np. słoik aptekarski, słoik na waciki lub słoik na przyprawy.
- Gilotyna dla szczurów, np. dostarczana przez Kent Scientific.
- Wibratom 1000:
- Przeciąć żyletkę wzdłuż na pół, odmyć olej alkoholem i umieścić w uchwycie.
- Wypełnić wannę zwykłym kruszonym lodem.
- Umieścić tackę wzdłużnie.
- Wytrzeć tackę z wilgoci przed nałożeniem kropli cyjanoakrylanu.
- Kleszczyki kupażowe (przykłady: mikro kleszczyki kupażowe Friedmana od Miltex, nr kat. 17-4801 lub kleszczyki kupażowe Pearsona od Fine Science Tools, nr kat. 16015-17).
- Pinceta jubilerska nr 3 lub nr 5 (ostra, do usuwania opony twardej).
- Małe nożyczki z ostrymi końcami (np. Vantage V95-304).
- (2) Płaskie miniszpatułki ze stali nierdzewnej, np. takie, których używa się do przenoszenia odczynników w proszku na wagę analityczną. Szeroki koniec jest zagięty do przodu, aby pasował między mózg przedni a sklepienie czaszki.
- Łyżka do przenoszenia bloku mózgu (dobrze sprawdzi się plastikowa łyżka do zupy z bufetu).
- Skalpel nr 10.
- Dwustronna żyletka (stal węglowa):
- Jedna połowa do wibratomu.
- Jedna połowa do sekcji.
- Dwie szklane szalki Petriego o średnicy ok. 9 cm i 10 cm, tak aby jedna mieściła się w drugiej. Kruszony lód w dolnej szalce. Dwa papiery filtracyjne w górnej szalce. Przesuwać przekrój w wymagane pozycje, przesuwając papier filtracyjny.
- Zlewka 100 ml.
- Zakraplacz do irygacji mózgu schłodzonym lodem płynem aCSF (dobrze sprawdza się szklana pipeta Pasteura z wąskim końcem włożonym w lateksową gruszkę o szerokości 1,3 cm).
- Tacka z kruszonym lodem: ok. 13 cm wysokości, 50 cm długości, 25 cm szerokości. Zawiera:
- Wszystkie instrumenty umieszczone w kruszonym lodzie.
- aCSF z niską zawartością wapnia / wysoką zawartością magnezu w plastikowej butelce, którą można uderzać, aby kruszyć lód.
- Cyjanoakrylan.
- Sztuczny płyn mózgowo-rdzeniowy (aCSF) z niską zawartością wapnia / wysoką zawartością magnezu:
- W mM: 125 NaCl, 2.5 KCl, 0.5 CaCl2*2H2O , 2.0 MgCl2*6H20, 1.2 NaH2PO4*H2O, 25 NaHCO, 11 Glucose.
- W plastikowej butelce, którą można uderzać, aby kruszyć lód.
- Chłodzić przez 20 min w zamrażarce -80 °C, aby uzyskać konsystencję papki śnieżnej.
- Patyczki watne.
- Papier filtracyjny: Whatman 42,5 mm (nr kat. 1001 042).
- Mini probówki do wirówek do zbierania mniejszych fragmentów tkanki.
- Płytka z dołkami do zbierania większych struktur i fragmentów tkanki.
- Ręcznik papierowy.
- Czerwony worek na odpady biologiczne.
- Znieczulenie:
- Słoik do znieczulania, gaziki, izofluran oraz metalowa pinceta zostają umieszczone w dygestorium.
- Szczura umieszcza się w słoiku do znieczulania.
- Nawilżyć gazik izofluranem i umieścić go w słoiku.
- Czekać do momentu zaniku odruchu stopy (cofnięcie łapy po uciśnięciu błony między palcami pincetą) lub odruchu rogówkowego.
- Dekapitacja: Trzymając szczura jedną ręką za klatkę piersiową od tyłu, przeprowadzić dekapitację gilotyną jak najbliżej potylicy. Atlas zazwyczaj pozostaje przyczepiony do czaszki.
- Pobranie krwi: Ścisnąć szczura w okolicy klatki piersiowej, aby zapobiec gwałtownemu tryskaniu krwi z tętnic szyjnych. Stopniowo rozluźniać uścisk, aby kontrolować przepływ krwi do pojemnika zbiorczego.
- Wyjęcie mózgu:
- Szybko odciąć mięśnie i pozostałe kręgi od podstawy potylicy za pomocą małych nożyczek.
- Używając kleszczyków kupażowych i zaczynając od otworu wielkiego, wyciąć wyrostki kłykczyate potyliczne oraz podstawę potylicy.
- Wykonać nacięcie skóry w linii środkowej za pomocą skalpela.
- Używając nożyczek, wykonać nacięcie w płaszczyźnie strzałkowej pośrodku kości potylicznej i ciemieniowej. Chwytając odcięty brzeg czaszki kleszczykami kupażowymi, odłamać go na zewnątrz od linii środkowej, podobnie jak skorupkę jajka, uważając, aby zminimalizować jakikolwiek kontakt z mózgiem. Nacięcie w linii środkowej i odłamywanie mogą być wykonywane etapami.
- W miarę dalszego odsłaniania mózgu, kluczowe jest polewanie go schłodzonym lodem płynem aCSF, aby zachować integralność i żywotność tkanki.
- W podobny sposób odłamać kości skroniowe i czołowe.
- Za pomocą precyzyjnej pincety usunąć oponę twardą, upewniając się, że usunięto również namiot móżdżku (tentorium cerebelli).
- Wprowadzając miniszpatułkę pod płat czołowy, lekko unieść mózg znad sklepienia czaszki, aby napiąć nerwy czaszkowe.
- Przeciąć nerwy czaszkowe nożyczkami.
- Całkowicie wyjąć mózg z czaszki i pozwolić mu wpaść do zlewki z lodowatym aCSF o niskiej zawartości wapnia / wysokiej zawartości magnezu. Pozostawić na minutę lub dłużej w celu schłodzenia, tak aby tkanka stała się sztywniejsza, struktury były wyraźnie widoczne, a kondycja tkanki została zachowana.
- Za pomocą plastikowej łyżki przenieść mózg na papier filtracyjny w schłodzonej szalce Petriego, stroną brzuszną do góry.
- Sekcja mózgu:
- Wykonać cięcie koronalne żyletką na wysokości tętnicy mózgowej środkowej (Rycina 2A).
- Tymczasowo zachować płat czołowy w lodowatym aCSF o niskiej zawartości wapnia / wysokiej zawartości magnezu w zlewce 100 ml.
- Obrócić mózg tak, aby powierzchnia grzbietowa była skierowana do góry. Przeciąć pień mózgu na połączeniu śródmózgowia i przodomózgowia. Powstały blok mózgu przedstawiono na Rycini 2B.
- Wrzucić blok mózgowia z powrotem do lodowatego aCSF o niskiej zawartości wapnia / wysokiej zawartości magnezu.
- Używając miniszpatułek, oddzielić móżdżek od rdzenia przedłużonego i mostu. Zachować w medium odpowiednim do planowanej analizy.
- Przenieść blok mózgowia z powrotem do szalki Petriego. Używając dwóch papierów filtracyjnych, unieść mózg, kładąc jeden papier na stronie brzusznej. Za jego pomocą umieścić tylną płaszczyznę koronalną bloku mózgowia na krawędzi drugiego papieru filtracyjnego. Za pomocą tego drugiego papieru umieścić przednią płaszczyznę cięcia bloku mózgowia na kropli cyjanoakrylanu na płytce tnącej wibratomu, kora powinna być skierowana w stronę ostrza.
- Za pomocą wibratomu odciąć tylko tyle tylnej części mózgu, aby odsłonić hipokamp (Rycina 2C).
- Wyciąć przekrój o grubości 2 400 μm w szczurze 125 g lub 2 700 μm w szczurze 200 g. Przenieść przekrój za pomocą patyczka watnego na papiery filtracyjne w szalce Petriego (Rycina 2D).
- Wyciąć i zachować korę obręczy za pomocą żyletki.
- Za pomocą szpatułki dentystycznej wbić się w dystalny brzeg ciała modzelowatego, aby je przeciąć, a następnie oddzielić izokorę.
- Oddzielić hipokamp od jego brzegu brzuszzno-bocznego (Rycina 2E).
- Zachować śródmózgowie.
- Wyciąć drugi przekrój o grubości 2 400 μm w szczurze 120 g lub 2 500 μm w szczurze 200 g. Umieścić przekrój na papierach filtracyjnych w szalce Petriego (Rycina 2F). Alternatywnie, na tym etapie dla celów elektrofizjologii można pobrać pięć przekrojów o grubości 500 μm.
- Wyciąć i zachować korę obręczy za pomocą żyletki.
- Wykonać cięcia boczne żyletką na wysokości torebki wewnętrznej, aby usunąć izokorę (Rycina 2F).
- Wykonać cięcia skośne żyletką, aby usunąć ciała migdałowate (Rycina 2F,G).
- Wyciąć prostokątny fragment żyletką, aby usunąć podwzgórze. Cięcia boczne przebiegają bocznie względem widocznego jądra brzuszzno-przyśrodkowego podwzgórza. Cięcie grzbietowe wykonujemy tuż powyżej trzeciej komory lub pola brzusznego nakrywy (Rycina 2H).
- Wsunąć szpatułkę w ciało modzelowate i odsunąć mały fragment izokory przytwierdzony do hipokampa. Umieścić wąski koniec szpatułki brzusznie względem spójki hipokampa i unieść grzbietowo, aby oddzielić hipokamp.
- Konserwacja RNA i białek w próbkach tkanki mózgowej i krwi:
- Media do analizy RNA:
- Mózg: odczynnik do stabilizacji RNA RNAlater, #76106 w probówkach Eppendorf.
- Krew: probówka PAXgene Blood RNA (PreAnalytix, Quagen).
- Media do analizy białek (CORT) z krwi: roztwór d-HBSS, bez Ca2+ i Mg 2+, (Quality Biological, Inc).
- Przechowywanie:
- Zebraną tkankę mózgową przechowuje się najpierw w koszyku z suchym lodem nie dłużej niż przez 12 h, a następnie w zamrażarce -70 °C do wykorzystania w ciągu 6 miesięcy, co odpowiada czasowi trwania badania.
- Zebraną krew przechowuje się przez noc w temperaturze pokojowej, aby umożliwić penetrację odczynników, po czym przechowuje się ją w zamrażarce -70 °C do wykorzystania w ciągu 6 miesięcy, co odpowiada czasowi trwania badania.
- Media do analizy RNA:
3. Mikromacierz genów mitochondrialnych i jądrowych związanych z mitochondriami
Aby zbadać funkcje mitochondriów szczura w tkankach mózgowych, opracowaliśmy niedawno macierz mikrodializacyjną skoncentrowaną na mitochondriach i neuronach szczura (rMNChip) oraz narzędzia bioinformatyczne do szybkiej identyfikacji zróżnicowanych szlaków w tkankach mózgowych 18. rMNChip zawiera 1 500 genów zaangażowanych w funkcje mitochondrialne, odpowiedź na stres, rytmy okołodobowe i transdukcję sygnałów. Narzędzie bioinformatyczne obejmuje algorytm do obliczania genów o zróżnicowanej ekspresji oraz bazę danych umożliwiającą prostą i intuicyjną interpretację wyników mikroarray.
- Oczyszczanie całkowitego RNA z tkanek (Cat# GPM-Kit 2011-1, GenProMarkers):
- Tkanki mózgu szczura z konkretnych jąder w odczynniku do stabilizacji RNA RNAlater (Qiagen).
- Homogenizacja tkanki (30 mg w 600 μl buforu GPM-L/B) przy użyciu Ultra-Turrax T8 na stacji Dispergierstation (IKA Labortechnik).
- Wirowanie w probówkach 1,5-ml w wirówce Sorvall przy 21 000 rpm przez 15 min.
- Zlanie supernatantu do kolumny spinowej z probówką zbierającą o pojemności 2 ml.
- Wirowanie kolumn z probówkami przy 15 000 rpm przez 3 min, odrzucenie filtratu.
- Dodanie 700 μl buforu GPM-B/W do każdej z kolumn spinowych, wirowanie kolumn z probówkami przy 16 000 rpm przez 15 s, odrzucenie filtratu.
- Dodanie 500 μl buforu GPM-W do każdej z kolumn spinowych, wirowanie kolumn z probówkami przy 16 000 rpm przez 15 s, powtórzenie czynności raz.
- Umieszczenie kolumny spinowej w nowej probówce zbierającej 1,5 ml.
- Dodanie 30 μl wody traktowanej DEPC do każdej z kolumn spinowych, wirowanie przy 16 000 rpm przez 1 min, powtórzenie czynności raz.
- Pomiar stężenia RNA, dostosowanie stężenia do 1 μg/μl przy użyciu wody wolnej od DNaz i RNaz; próbki są gotowe do znakowania mikromacierzy.
- Znakowanie i hybrydyzacja mikromacierzy (Cat#Array 900, Genisphere):
- Do syntezy cDNA i znakowania mikromacierzy wykorzystuje się 1,0 μg całkowitego RNA szczura zgodnie z instrukcjami producenta.
- Hybrydyzację mikromacierzy przeprowadza się na rMNChip w temperaturze 65 °C przez 12-16 h, zgodnie z wcześniejszym opisem.18
- Przemywanie zhybrydyzowanych szkiełek mikromacierzy (Cat#GPM0101-6, GenProMarkers):
Roztwór do przemywania Objętość 20 X SSC 10% SDS ddH2O 0,5 X SSC/0,01 SDS 500 ml 12,5 ml 0,5 ml do 500 ml 0,5 X SSC 500 ml 12,5 ml do 500 ml 0,1 X SSC 500 ml 2,5 ml do 500 ml 0,01 X SSC 500 ml 0,25 ml do 500 ml
Podczas przemywania szkiełka powinny być chronione przed światłem. Nie wolno dopuścić do wyschnięcia szkiełek na żadnym etapie.- Przemywanie szkiełek w 250 ml Roztworu 1 w szklanym naczyniu Coplin (Cat #: 70312-20, Electron Microscopy Sciences, Hatfield, PA) w temperaturze pokojowej poprzez wstrząsanie naczyniem na BioShaker (Molecular Technologies Inc., St. Louis, MO) do czasu odpadnięcia wszystkich szkiełek przykrywkowych z szkiełek przedmiotowych (trwa to <3 minuty).
- Przemywanie szkiełek 250 ml Roztworem 2 w innym naczyniu poprzez wstrząsanie naczyniem przez 3 min.
- Przemywanie szkiełek 250 ml Roztworem 3 w innym naczyniu poprzez obracanie naczyniem przez 3 min, powtarzając ten krok dwukrotnie.
- Przemywanie szkiełek 250 ml Roztworem 4 w innym naczyniu przez 10 s. Natychmiastowe osuszenie szkiełek poprzez wirowanie naczyń umieszczonych na płytkach PN11779 i rotorze ST-H750 w wirówce Sorvall Super T21 przy 1000 rpm przez 5 min.
- Umieszczenie przemytych szkiełek w pudełku do skanowania tak szybko, jak to możliwe.
- Skanowanie obrazu mikromacierzy i analiza przy użyciu skanera mikromacierzy ScanArray Express (PerkinElmer) zgodnie z instrukcją obsługi, ze szczególnym uwzględnieniem:
- Skanowania obrazu mikromacierzy: szybkie skanowanie (easy scan) w porównaniu do protokołu skanowania.
- Wpływu mocy lasera, PMT i metod normalizacji na wyniki danych.
- Dopasowania pliku GAL do obrazu.
- Precyzyjnego dopasowania plamek (spots) do siatek.
- Analiza danych: Dostosowane procedury obliczeniowe dla analizy danych mikromacierzy obejmują ocenę obrazu mikromacierzy, filtrowanie danych, korekcję wielkości plamek, inkluzję, normalizację i porównanie, zgodnie z wcześniejszym opisem 18. Ponadto metody analizy ontologii, szlaków i sieci są takie same, jak opisano wcześniej, aby zapewnić generowanie powtarzalnych i weryfikowalnych wyników mikromacierzy 2, 22, 25, 19, 20, 8, 23, 18.
4. Pobieranie próbek krwi i pomiar stężenia CORT w osoczu
- Próbki krwi z ogona pobrane przed lub po stresie od znieczulonych zwierząt są zbierane w dniach 1, 14, 21 i 30 do probówek z heparyną w celu oznaczenia poziomu krążącego CORT.
- Próbki krwi z pnia są również pobierane do probówek z heparyną po uśmierceniu zwierząt. Plazma jest ekstrahowana i przechowywana w temperaturze -70 °C do czasu analizy.
- Media do ekstrakcji plazmy:
- Próbki krwi do ekstrakcji RNA są pobierane do probówek PAXgene Blood RNA (PreAnalytix, Quagen)
- Próbki krwi do ekstrakcji DNA są pobierane do probówek PAXgene Blood DNA (PreAnalytix, Quagen).
- Próbki krwi do analizy białek są pobierane do kapilarnych probówek z heparyną litową (200 μl) od MaketLab #ML5601.
- Stężenie CORT w plazmie jest badane i analizowane za pomocą Active Rat Cort EIA (Diagnostic Systems Labs Inc. http://www.beckmancoulter.com/) w następujący sposób:
- Oznakuj używane paski do mikrotytracji.
- Przygotuj roztwór koniugatu enzymatycznego Rat CORT poprzez rozcieńczenie koncentratu koniugatu enzymatycznego Rat CORT w rozcieńczalniku koniugatu.
- Pipetuj 25 μl standardów, kontroli i próbek nieznanych do dołków.
- Do każdego dołka dodaj 100 μl roztworu koniugatu enzymatycznego za pomocą dozownika półautomatycznego. Delikatnie opukaj uchwyt do dołków przez 5-10 s.
- Do każdego dołka dodaj 100 μl antyserum Rat CORT za pomocą dozownika półautomatycznego.
- Inkubuj dołki w temperaturze pokojowej, 25 °C, na wytrząsarce ustawionej na 500-700 rpm przez 60 min.
- Odsącz i przemyj każdy dołek 5 razy roztworem piorącym za pomocą automatycznej myjki do mikropłytek. Osusz płytkę, odwracając ją na materiale chłonnym.
- Do każdego dołka dodaj 100 μl roztworu chromogenu TMB za pomocą dozownika półautomatycznego.
- Inkubuj w temperaturze pokojowej przez 15-20 min na orbitalnej wytrząsarce do mikropłytek ustawionej na 500-700 rpm. Obserwuj zmianę barwy.
- Do każdego dołka dodaj 100 μl roztworu stopującego za pomocą dozownika półautomatycznego.
- Wstrząśnij płytką ręcznie przez 5-10 s.
- Odczytaj absorbancję roztworu w dołku w ciągu 30 min.
- Filtr jest ustawiony na 450 nm. *Zestawy EIA można nabyć również w Immunobiological Laboratories (www.ibl-america.com).
5. Reprezentatywne wyniki
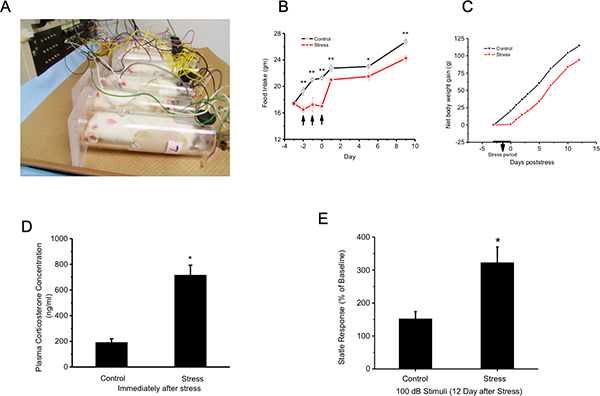
Rycina 1. Szczury zostają unieruchomione i poddane wstrząsom elektrycznym ogona. Następnie mierzy się masę ciała, stężenie kortykosteronu w osoczu oraz reakcję startową na bodziec akustyczny.A: Narażenie na stres: Zwierzęta są unieruchamiane w wentylowanej rurce z pleksiglasu. Do ich ogonów dostarcza się czterdzieści wstrząsów elektrycznych (2 mA, czas trwania 3 sec) w półlosowych odstępach czasu od 150 do 210 sec. B i C: Stres opóźnia przyrost masy ciała podczas wzrostu: Masę ciała oraz spożycie pokarmu i wody mierzy się bezpośrednio przed stresem (Dzień -3), w dniu rozpoczęcia trzech dni stresu, a następnie co drugi dzień aż do Dnia 14. Brak przyrostu masy ciała podczas stresu nigdy nie zostaje zrekompensowany. D: Stres zwiększa stężenie kortykosteronu w osoczu. E: Start akustyczny: Zwierzęta są badane jeden dzień przed stresem (dzień -1) w celu ustalenia wartości bazowej oraz 12 dni po ostatnim z trzech kolejnych dni stresu. Dane dla każdej grupy – Stres i Kontrola – są wyrażone jako procent reakcji startowej na bodziec akustyczny w dniu 12 w stosunku do dnia -1. Stres wyraźnie zwiększa odruch startowy na bodziec akustyczny. Kliknij tutaj, aby wyświetlić powiększoną rycinę.
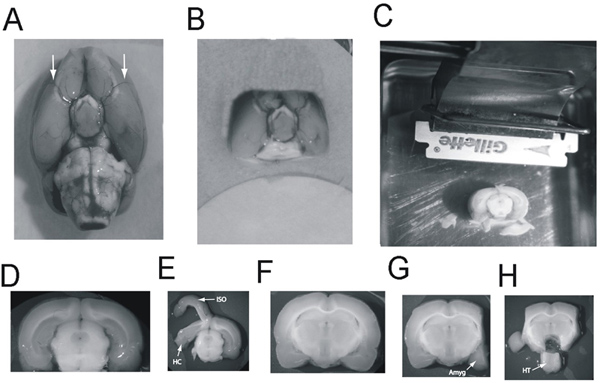
Rysunek 2. Sekcja ciała migdałowatego, hipokampa i podwzgórza z przekroju mózgu. A: Mózg szczura, widok brzuszny: strzałki wskazują środkowe tętnice mózgowe. B: Blok mózgu, widok brzuszny, przygotowany do przeniesienia do wibratomu. C: Blok mózgu przyklejony do tacki wibratomu, stroną ogonową do góry, korą skierowaną w stronę ostrza. Tylna część mózgu została już odcięta, odsłaniając tylny hipokamp. Blok jest teraz gotowy do pobrania przekroju o grubości 2,500 μm zawierającego główną część hipokampa. D: Przekrój o grubości 2,500 μm zawierający tylny hipokamp. E: Izokora (ISO) jest oddzielana od hipokampa (HC), a hipokamp od śródmózgowia. F: Przekrój o grubości 2,500 μm zawierający ciało migdałowate i przedni hipokamp. G: Izokora została wycięta, a ciało migdałowate (Amyg) wyresekowane. H: Podwzgórze (HT) zostaje wycięte i odsunięte. Kliknij tutaj, aby wyświetlić powiększony rysunek.
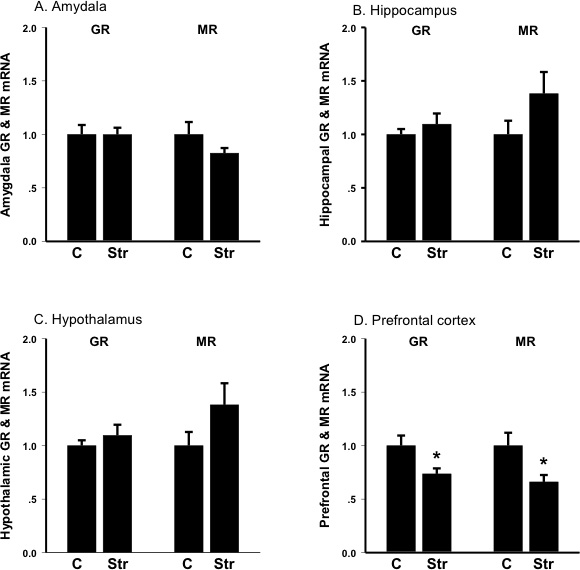
Rycina 3. Poziomy ekspresji mRNA receptora glikokortykoidowego (GR) i receptora mineralokortykoidowego (MR) w ciele migdałowatym, hipokampie, podwzgórzu i korze czołowej przed (C, kontrola) i po (Str) stresie wywołanym szokiem ogona. Jednostki stanowią proporcję względem kontroli; słupki przedstawiają S.E.M. A: Ciało migdałowate: Stres zmniejsza ekspresję mRNA receptora mineralokortykoidowego. B: Hipokamp: Stres zwiększa ekspresję mRNA receptora mineralokortykoidowego. C: Podwzgórze: Stres zwiększa ekspresję mRNA receptora mineralokortykoidowego. D: Kora czołowa: Stres zmniejsza ekspresję mRNA receptora glikokortykoidowego, a także ekspresję mRNA receptora mineralokortykoidowego.
| Startery PCR (121bp) dla szczurzego GR to: | 1f.CCACTGCAGGAGTCTCACAA 1rAACACCTCGGGTTCAATCAC |
| Startery PCR (99 bp) dla szczurzego MR to: | 1f.GCCTTCAGCTATGCCACTTC 1rAACGTCGTGAGCACCTTTCT |
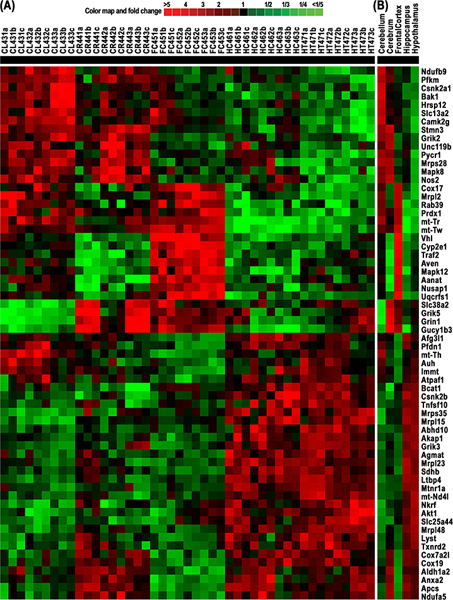
Rysunek 4. Klastrowanie i mapa ciepła różnicowej ekspresji RNA 64 genów pochodzących z 5 tkanek mózgu szczura, w tym móżdżku (CL), mózgu przedniego (CR), kory czołowej (FC), podwzgórza (HT) i hipokampa (HC). Mapa kolorów wskazuje krotność zmian w genach o obniżonej (zielony) i podwyższonej (czerwony) ekspresji. (A) Klastrowanie i mapa ciepła znormalizowanych intensywności sygnału dla 9 pomiarów każdego z 64 genów, uzyskanych z 15 eksperymentów z macierzy mikroarray dla tych pięciu tkanek mózgowych. Ekspresję każdego genu mierzono w trzech powtórzeniach technicznych i trzech powtórzeniach eksperymentalnych. (B) Klastrowanie i mapa ciepła średnich poziomów RNA z tych 9 pomiarów dla każdego z 64 genów. Wyniki te wykazują wyraźne różnice w ekspresji genów mitochondrialnych, a tym samym w powiązanych z nimi funkcjach, co potwierdza naszą hipotezę, że różne obszary mózgu mają różne zapotrzebowanie energetyczne. Kliknij tutaj, aby wyświetlić większy rysunek.
Zastosowanie przez nas rMNChip oraz narzędzi bioinformatycznych pozwoliło na zidentyfikowanie klastra i mapy ciepła 64 genów z różnicowo wyrażanym RNA pochodzącym z 5 tkanek mózgu szczura, w tym z móżdżku (CL), mózgowia (CR), kory czołowej (FC), podwzgórza (HT) oraz hipokampa (HC) (Rysunek 4). Dane te wykazują wyraźne różnice w ekspresji genów mitochondrialnych, a co za tym idzie, w powiązanych z nimi funkcjach. Wyniki dowodzą, że różne obszary mózgu wymagają różnej ilości energii w celu realizacji odpowiednich funkcji mózgowych.
Dyskusja
Diagnoza PTSD opiera się na zgłaszanych przez potencjalnych pacjentów objawach psychiatrycznych (DSM IV). Obecnie nie istnieje dobrze zdefiniowany biomarker pozwalający ocenić stan patofizjologiczny potencjalnych pacjentów z PTSD. PTSD jest zaburzeniem wywołanym przez traumatyczne zdarzenia zagrażające życiu, a główne objawy psychiatryczne utrzymują się w życiu osoby ocalałej przez miesiące, a nawet lata po pierwotnych zdarzeniach. Najbardziej wyraźne i trwałe objawy występujące u pacjentów z PTSD to nadmierna czujność, opóźniona i wyolbrzymiona reakcja przestrachu 14, 15, 16 oraz wyraźne upośledzenie osi HPA. U ludzi objawy te utrzymują się lub pojawiają się z opóźnieniem trzech miesięcy po ustąpieniu stresora traumatycznego 24. Nasz obecny model do badań nad biomarkerami PTSD wykorzystuje unieruchomienie i wstrząsy elektryczne ogona powtarzane przez trzy kolejne dni (2-godzinne sesje składające się z 40 wstrząsów o natężeniu 2 mA) – jest to model nieuniknionego wstrząsu ogona (ITS) u szczurów o masie 150 g. Wykazano, że model ITS w znacznym stopniu naśladuje patofizjologię PTSD 17, 7, 4, 10. Nasze laboratorium oraz inne ośrodki potwierdziły, że model stresu ITS u szczurów indukuje zmiany behawioralne i neurobiologiczne podobne do tych występujących u osób z PTSD 17, 7, 10, 9. W szczególności szczury poddane stresowi wykazują: (1) opóźnioną i wyolbrzymioną reakcję przestrachu pojawiającą się kilka dni po ustąpieniu stresora, co przy skompresowanej skali czasu życia szczura w porównaniu do człowieka odpowiada opóźnieniu wystąpienia objawów od jednego do trzech miesięcy u pacjentów z PTSD (DSM-IV-TR PTSD kryterium D/E 13), (2) podwyższony poziom kortykosteronu (CORT) w osoczu przez kilka (10) dni, co wskazuje na upośledzenie osi podwzgórze-przysadka-nadnercza (HPA), oraz (3) spowolniony przyrost masy ciała po ustąpieniu stresora, co odpowiada dysfunkcji regulacji metabolicznej w PTSD. W literaturze nie ma dowodów na to, aby zapach lisa, ekspozycja na drapieżnika lub reakcja przestrachu wzmocniona lękiem wykazywały te trwałe fenotypy behawioralne i neuroendokrynologiczne związane z PTSD.
Szczury poddane pojedynczej sesji stresu (1DS) wykazywały przejściowe, a nie trwałe nieprawidłowości obserwowane u szczurów 3DS 17. W niniejszym eksperymencie porównano reakcję przestrachu szczurów 3DS i 1DS odpowiednio 4, 7 i 10 dni po zaprzestaniu działania stresora. Zgodnie z wcześniejszymi badaniami, u szczurów poddanych stresowi odnotowano podwyższone podstawowe poziomy CORT w osoczu w pierwszym dniu po stresie 17. Poziomy CORT były zależne od liczby ekspozycji na stresor, przy czym były one wyższe u szczurów 3DS niż u szczurów 1DS. W odniesieniu do reakcji przestrachu, szczury 1DS wykazały nasiloną reakcję 7 dni po stresorze, podczas gdy uwrażliwienie na przestrach stało się widoczne dopiero 10 dni po stresorze u szczurów 3DS. Zatem pojawienie się nasilonej reakcji przestrachu po zaprzestaniu działania stresora wydaje się być powiązane z liczbą sesji stresowych. Model stresu 3DS wydaje się użyteczny do uzyskania wglądu w zmienioną ekspresję biomarkerów związanych z objawami PTSD oraz kluczowych mierzalnych fenotypów behawioralnych powiązanych z czasem po ustaniu stresu. Przedstawione wyniki genomiczne stanowią dowód koncepcji zastosowania rMNChip oraz narzędzi bioinformatycznych do identyfikacji odmiennych szlaków, a także biomarkerów genowych i białkowych, co znacznie ułatwi badania biologii systemowej i zrozumienie mechanizmów molekularnych leżących u podstaw złożonych i wieloczynnikowych schorzeń neurologicznych, w tym PTSD.
Choć nasz paradygmat nie zgłębia poznawczych i bardziej złożonych aspektów behawioralnych PTSD, zauważamy, że zmienione wzorce snu w modelu ITS 1 odpowiadają trudnościom z zasypianiem i utrzymaniem snu oraz koszmarom u pacjentów z PTSD 11 (Kryteria D PTSD według DSM-IV-TR 13), a deficyty w uczeniu się ucieczki/unikania oraz uczeniu się zadania apetytywnego w modelu ITS 12 odpowiadają problemom z koncentracją i deficytom pamięci w PTSD 5 (Kryteria C PTSD według DSM-IV-TR 13). Obecny model dobrze koreluje z kluczowymi objawami charakterystycznymi dla PTSD i stanowi odpowiedni model do korelacji obwodowych biomarkerów PTSD, które można pobrać od pacjentów, z centralnymi biomarkerami mechanistycznymi, których pobranie nie jest możliwe 6.
Oświadczenia
Nie zadeklarowano konfliktów interesów.
Podziękowania
Niniejsza praca była wspierana przez CDMRP, granty USUHS G188LE, G188MG i G188QC (dla HL) oraz USUHS Center for the Study of Traumatic Stress.
Bibliografia
- Adrien, J., Dugovic, C., Martin, P. Sleep-wakefulness patterns in the helpless rat. Physiol. Behav. 49, 257-262 (1991).
- Bai, X., Wu, J., Zhang, Q., Alesci, S., Manoli, I., Blackman, M. R., Chrousos, G. P., Goldstein, A. L., Rennert, O. M., Su, Y. A. Third-generation human mitochondria-focused cDNA microarray and its bioinformatic tools for analysis of gene expression. Biotechniques. 42, 365-375 (2007).
- Blaszczyk, J. W. Startle response to short acoustic stimuli in rats. Acta Neurobiol. Exp. (Wars.). 63, 25-30 (2003).
- Braga, M. F., roniadou-Anderjaska, V., Manion, S. T., Hough, C. J., Li, H. Stress impairs alpha(1A) adrenoceptor-mediated noradrenergic facilitation of GABAergic transmission in the basolateral amygdala. Neuropsychopharmacology. 29, 45-58 (2004).
- Bremner, J. D., Vythilingam, M., Vermetten, E., Anderson, G., Newcomer, J. W., Charney, D. S. Effects of glucocorticoids on declarative memory function in major depression. Biol. Psychiatry. 55, 811-815 (2004).
- Garrick, T., Morrow, N., Eth, S., Marciano, D., Shalev, A. Psychophysiologic parameters of traumatic stress disorder in rats. Ann. N.Y. Acad. Sci. 821, 533-537 (1997).
- Garrick, T., Morrow, N., Shalev, A. Y., Eth, S. Stress-induced enhancement of auditory startle: an animal model of posttraumatic stress disorder. Psychiatry. 64, 346-354 (2001).
- Hsiao, Y. H., Su, Y. A., Tsai, H. D., Mason, J. T., Chou, M. C., Man, Y. G. Increased invasiveness and aggressiveness in breast epithelia with cytoplasmic p63 expression. Int. J. Biol. Sci. 6, 428-442 (2010).
- Jiang, X., Xing, G., Yang, C., Verma, A., Zhang, L., Li, H. Stress Impairs 5-HT(2A) Receptor-Mediated Serotonergic Facilitation of GABA Release in Juvenile Rat Basolateral Amygdala. Neuropsychopharmacology. , (2008).
- Jiang, X., Zhang, Z. J., Zhang, S., Gamble, E. H., Jia, M., Ursano, R. J., Li, H. 5-HT2A receptor antagonism by MDL 11,939 during inescapable stress prevents subsequent exaggeration of acoustic startle response and reduced body weight in rats. J. Psychopharmacol. , (2009).
- Maher, H. K. Sleep deprivation: are you a victim. AAOHN. J. 54, 548(2006).
- Maier, S. F. Exposure to the stressor environment prevents the temporal dissipation of behavioral depression/learned helplessness. Biol. Psychiatry. 49, 763-773 (2001).
- North, C. S., Suris, A. M., Davis, M., Smith, R. P. Toward validation of the diagnosis of posttraumatic stress disorder. Am. J. Psychiatry. 166, 34-41 (2009).
- Orr, S. P., Metzger, L. J., Pitman, R. K. Psychophysiology of post-traumatic stress disorder. Psychiatr. Clin. North Am. 25, 271-293 (2002).
- Orr, S. P., Roth, W. T. Psychophysiological assessment: clinical applications for PTSD. J. Affect. Disord. 61, 225-240 (2000).
- Pitman, R. K., Orr, S. P., Shalev, A. Y., Metzger, L. J., Mellman, T. A. Psychophysiological alterations in post-traumatic stress disorder. Semin. Clin. Neuropsychiatry. 4, 234-241 (1999).
- Servatius, R. J., Ottenweller, J. E., Natelson, B. H. Delayed startle sensitization distinguishes rats exposed to one or three stress sessions: Further evidence toward an animal model of PTSD. Biological Psychiatry. 38, 539-546 (1995).
- Su, Y. A., Zhang, Q., Su, D. M., Tang, M. X. Rat Mitochondrion-Neuron Focused Microarray (rMNChip) and Bioinformatics Tools for Rapid Identification of Differential Pathways in Brain Tissues. Int. J. Biol. Sci. 7, 308-322 (2011).
- Su, D. M., Zhang, Q., Wang, X., He, P., Zhu, Y. J., Zhao, J., Rennert, O. M., Su, Y. A. Two types of human malignant melanoma cell lines revealed by expression patterns of mitochondrial and survival-apoptosis genes: implications for malignant melanoma therapy. Mol. Cancer Ther. , (2009).
- Identification of stress-responsive genes, canonical pathways, molecular networks and drug targets in brain tissues of human and animals for systems-biology study of post-traumatic stress disorder. Su, Y. A., Li, H., He, P., Webster, M. J., Zhang, Q., Zhang, L., Wang, X., Su, D. M., Ursano, R. J., Rennert, O. M. The DOD Congressionally Directed Medical Research Programs, the third Military Health Research Forum (MHRF), August 31 - September 3, 2009, Hallmark Crown Center, Kansas City, Missouri, , (2009).
- Su, Y. A., Wu, J., Zhang, L., Zhang, Q., Su, D. M., He, P., Wang, B. D., Li, H., Webster, M. J., Rennert, O. M., Ursano, R. J. Dysregulated mitochondrial genes and networks with drug targets in postmortem brain of patients with posttraumatic stress disorder (PTSD) revealed by human mitochondria-focused cDNA microarrays. Int. J Biol. Sci. 4, 223-235 (2008).
- Su, Y. A., Yang, J., Tao, L., Nguyen, H., He, P. Undetectable and Decreased Expression of KIAA1949 (Phostensin) Encoded on Chromosome 6p21.33 in Human Breast Cancers Revealed by Transcriptome Analysis. J. Cancer. 1, 38-50 (2010).
- Yehuda, R., Yang, R. K., Buchsbaum, M. S., Golier, J. A. Alterations in cortisol negative feedback inhibition as examined using the ACTH response to cortisol administration in PTSD. Psychoneuroendocrinology. 31, 447-451 (2006).
- Zhang, Q., Wu, J., Nguyen, A., Wang, B. D., He, P., Laurent, G. S., Rennert, O. M., Su, A. Molecular mechanism underlying differential apoptosis between human melanoma cell lines UACC903 and UACC903(+6) revealed by mitochondria-focused cDNA microarrays. Apoptosis. 13, 993-1004 (2008).
Przedruki i uprawnienia
