W niniejszym raporcie opisujemy metodę zmiażdżenia nerwu kulszowego u myszy. Metoda ta wykorzystuje powszechnie dostępne kleszczyki hemostatyczne i pozwala w prosty oraz powtarzalny sposób uzyskać całkowite zmiażdżenie nerwu kulszowego. Ponadto opisujemy metodę przygotowania preparatów całych mięśni, odpowiednich do analizy regeneracji nerwów po zmiażdżeniu nerwu kulszowego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Powtarzalny model zmiażdżenia nerwu kulszowego myszy i późniejsza ocena regeneracji poprzez analizę całego preparatu mięśnia
W tym artykule
Podsumowanie
Streszczenie
Regeneracja w obwodowym układzie nerwowym (OUN) jest szeroko badana zarówno ze względu na jej znaczenie dla chorób ludzkich, jak i w celu zrozumienia silnej odpowiedzi regeneracyjnej wywoływanej przez neurony OUN, co może rzucić światło na przyczyny niepowodzeń regeneracji w ośrodkowym układzie nerwowym (OUN)1. Zmiażdżenie nerwu kulszowego (aksonotmeza) jest jednym z najczęstszych modeli uszkodzenia nerwu obwodowego u gryzoni2. Zmiażdżenie przerywa wszystkie aksony, ale błony podstawne komórek Schwanna zostają zachowane, dzięki czemu regeneracja przebiega optymalnie3,4. Pozwala to badaczowi na precyzyjne badanie zdolności rosnącego aksonu do oddziaływania zarówno z komórką Schwanna, jak i z błoną podstawną4. Szczury były zazwyczaj preferowanymi modelami zwierzęcymi w eksperymentalnym zmiażdżeniu nerwu. Są one powszechnie dostępne, a ich uszkodzony nerw kulszowy stanowi rozsądne przybliżenie ludzkich uszkodzeń nerwów5,4. Choć nerw myszy jest mniejszy niż nerw szczura, posiada wiele podobnych właściwości. Co najważniejsze, modele mysie są coraz bardziej wartościowe ze względu na szeroką dostępność linii transgenicznych, co pozwala obecnie na szczegółową analizę poszczególnych cząsteczek kluczowych dla regeneracji nerwów6, 7. Poprzedni badacze stosowali wiele metod wywoływania zmiażdżenia lub uszkodzenia nerwu, w tym zwykłe pęsety kątowe, pęsety chłodzone, pęsety hemostatyczne, zaciski naczyniowe oraz zaciski zaprojektowane przez badaczy8,9,10,11,12. Badacze stosowali również różne metody znakowania miejsca uszkodzenia, w tym szwy, cząsteczki węgla i koraliki fluorescencyjne13,14,1. Opisujemy naszą metodę uzyskania powtarzalnego, całkowitego zmiażdżenia nerwu kulszowego z dokładnym i trwałym znakowaniem miejsca zmiażdżenia przy użyciu precyzyjnej pęsety hemostatycznej i późniejszym znakowaniem miejsca zmiażdżenia węglem. Jako część opisu procedury zmiażdżenia nerwu kulszowego, uwzględniliśmy również stosunkowo prostą metodę preparatyki całego mięśnia (whole mount), której używamy do późniejszej kwantyfikacji regeneracji.
Protokół
1. Zwierzęta doświadczalne
1.1. Obróbka
- Wszystkie procedury z udziałem zwierząt powinny być wykonywane za zgodą lokalnej Komisji Etyki i Opieki nad Zwierzętami danej instytucji oraz zgodnie z wytycznymi National Institutes of Health i odpowiednimi komisjami, z podjęciem środków mających na celu zminimalizowanie bólu i dyskomfortu.
- Myszy utrzymywano w warunkach z kontrolowaną temperaturą w 12-godzinnym odwróconym cyklu światła i ciemności, z dostępem do paszy dla myszy i wody ad libitum.
- W badaniach nad regeneracją u osobników dorosłych myszy powinny mieć co najmniej 6 tygodni w momencie wykonywania zmiażdżenia nerwu kulszowego. Wiek ten wykracza poza okres, w którym zachodzi pruning polineuralnych złączy nerwowo-mięśniowych.
- W tych eksperymentach wykorzystano myszy C57BL/6 w wieku 6–8 tygodni pozyskane z Charles River. Podczas porównywania regeneracji po zmiażdżeniu nerwu kulszowego (tzn. tempa wzrostu aksonów) szczepy myszy powinny być identyczne, ponieważ odnotowano różnice w regeneracji aksonalnej pomiędzy różnymi liniami inbredalnymi15,16. W przypadku użycia myszy modyfikowanych genetycznie, najbardziej odpowiednie są kontrole z tego samego miotu.
1.2. Przygotowanie chirurgiczne
- Zwierzęta są głęboko znieczulone przed operacją przy użyciu mieszaniny ketaminy (100 mg/kg) i ksylazyny (10 mg/kg) podanej wtryskowo dootrzewnowo. Każde zwierzę otrzymuje również podskórny zastrzyk meloksykamu (10 mg/kg) w celu zminimalizowania bólu pooperacyjnego.
- Obie tylne kończyny są starannie golone za pomocą chirurgicznej maszynki do golenia (Roboz, RC-5903), a depilację kończy się przy użyciu kremu do usuwania włosów Nair (dostępnego w lokalnej aptece).
- Skórę oczyszcza się za pomocą sterylnych aplikatorów z bawełnianą końcówką oraz chirurgicznego preparatu do mycia Betadine (Fisher Scientific, 19066452).
- Maść oftalmiczną (Fisher Scientific, 19082795) nakłada się na oczy za pomocą sterylnych aplikatorów z bawełnianą końcówką.
- Myszy umieszcza się na czystej płycie ze stali nierdzewnej, pod którą znajduje się wstępnie podgrzany homeotermiczny system koców (Harvard Apparatus, 507222F). Temperaturę zwierzęcia utrzymuje się na poziomie 37°C.
- Wszystkie kończyny są przytwierdzone taśmą, dbając o symetryczne ułożenie kończyn tylnych tak, aby staw kolanowy tworzył kąt prosty z ciałem (Rycina 1, panel A).
- Pole operacyjne zostaje przykryte sterylnym obłożeniem. Wszystkie instrumenty są sterylizowane w autoklawie lub za pomocą sterylizatora koralikowego (Fine Science Tools, 18000-45), a chirurg nosi maseczkę, fartuch i sterylne rękawiczki.
2. Reprodukowalne zmiażdżenie nerwu kulszowego
- Po przygotowaniu skóry wykonuje się półkoliste nacięcie wzdłuż linii środkowej (Rysunek 1). Skórę delikatnie oddziela się od leżącej pod nią muskulatury i odgina, aby nie przeszkadzała podczas procedury. W trakcie zabiegu utrzymuje się ją w stanie wilgotnym, aplikując 0,1 mL sterylnej soli fizjologicznej (Hospira, 0409-4888-20).
- Otwarcie płaszczyzny powięziowej między mięśniem pośladkowym wielkim a głową przednią mięśnia dwugłowego uda odsłania nerw kulszowy (Rysunek 1, panel A). W celu uzyskania kontroli chirurgicznej należy odsłonić i zmobilizować przeciwległy nerw kulszowy, pozostawiając go jednak nienaruszonym. Następnie mięśnie pośladkowe są ponownie zbliżane i zszywane za pomocą niewchłanialnych, plecionych szwów jedwabnych 6-0 (Roboz, SUT-1073-11).
- Następnie w ten sam sposób odsłania się eksperymentalny nerw kulszowy, stosując rozieracze w celu ułatwienia wizualizacji (Rysunek 1, panel B). Rozieracze są sterylizowane przed użyciem.
Uwaga: choć systemy rozieraczy są dostępne w sprzedaży, często są one bardzo kosztowne. Udało nam się stworzyć satysfakcjonujący system rozieraczy, wykorzystując niedrogie elementy metalowe oraz szpilki entomologiczne (patrz sekcja Materiały). - Nerw kulszowy jest następnie delikatnie uwalniany z otaczającej go tkanki łącznej za pomocą nożyczek do irydektomii.
- Przy użyciu precyzyjnej pęsety 5/45 (Fine Science Tools, 11251-35) nerw umieszcza się w dolnym ramieniu super-precyzyjnego zacisku hemostatycznego (Fine Science Tools, 13020-12). Trzy pęczki włókien są ustawiane sekwencyjnie, a nie jeden na drugim (Rysunek 1, wstawka B). Na zaciskach hemostatycznych wygrawerowano znacznik w odległości 1,5 mm od ich końcówki. Przed zmiażdżeniem zewnętrzna część nerwu kulszowego jest ustawiana w linii z tym znacznikiem. Zapewnia to zmiażdżenie o jednolitej szerokości oraz zapobiega wystawaniu nerwu poza ramiona zacisku hemostatycznego po spłaszczeniu spowodowanym siłą nacisku. Jeśli nerw wystaje poza końcówkę zacisku, zostanie on zmiażdżony tylko częściowo.
- Zmiażdżenie wykonuje się prostopadle do nerwu w odległości 45 mm od trzeciego palca, mierzonej nitką przybliżającą przebieg nerwu kulszowego. Nerw jest miażdżony raz przez 15 sekund przy 3 kliknięciach zacisku hemostatycznego. Należy zadbać o to, aby nie rozciągać nerwu. Po ponownym otwarciu zacisków cały nerw w miejscu zmiażdżenia powinien być półprzezroczysty.
- Do zaznaczenia miejsca zmiażdżenia używa się drugiej pary zacisków hemostatycznych (identycznych z pierwszą), które zostały uprzednio zanurzone w węglu w proszku (Fisher Scientific, C272-500). Nerw jest miażdżony w tym samym miejscu przez 15 sekund przy 3 kliknięciach. Znacznik węglowy nie powinien wykraczać poza granice pierwotnego zmiażdżenia. Jest to szczególnie istotne, jeśli wymagane jest precyzyjne oznaczenie miejsca zmiażdżenia. Przed użyciem proszek węglowy jest sterylizowany poprzez naświetlanie promieniami UV przez dwie godziny, a następnie manipuluje się nim zgodnie z techniką sterylną.
- Aby zanurzyć zaciski w węglu, unikając jednocześnie rozprzestrzeniania się go w polu operacyjnym, zaciski otwiera się w proszku węglowym, następnie delikatnie zamyka (bez zatrzaskiwania), a węgiel z zewnętrznych powierzchni zacisków usuwa się za pomocą sterylnej gazy. Zaciski sprawdza się pod powiększeniem co najmniej 3x, aby zweryfikować, czy powierzchnie miażdżące są równomiernie pokryte proszkiem węglowym. W razie potrzeby są one ponownie zanurzane i wycierane.
- Muskulatura pośladkowa jest ponownie zbliżana i zszywana w ten sam sposób, co po stronie przeciwległej.
- Na koniec nacięcie skóry zamyka się za pomocą 9 mm klipsów refleksyjnych (World Precision Instruments, 500346; aplikator: 500345). Jeśli stwierdzono, że 9 mm klipsy refleksyjne ograniczają ruchy, można zamiast nich zastosować mniejsze klipsy refleksyjne lub szwy 6-0 (Roboz, SUT-1073-11).
3. Opieka pooperacyjna
- Po zakończeniu procedury zwierzęta umieszcza się na podkładce grzewczej w temperaturze 37°C do momentu, aż pojawią się oznaki ruchu.
- Następnie przenosi się je z powrotem do klatki macierzystej, w której na dnie zapewniony jest łatwy dostęp do wody i pożywienia w postaci Hydrogelu oraz namoczonej karmy.
4. Przygotowanie półcienkich przekrojów
- Po przedawkowaniu pentobarbitalu (300 mg/kg) usuwa się mięśnie kończyn, aby odsłonić nerw kulszowy*. Pozostawiając nerw in situ, tylną część ciała zanurza się w 2% paraformaldehydzie i 2% glutaraldehydzie w 0,1 M buforze fosforanowym w temperaturze 0°C (na lodzie) na 30 minut.
*W przypadku przygotowania całego preparatu mięśniowego, mięśnie pobiera się przed odsłonięciem nerwu kulszowego. - Nerw ostrożnie usuwa się, dbając o to, aby dotykać jedynie jego końca proksymalnego. Następnie nerw poddaje się postfiksacji w tym samym utrwalaczu przez kolejne trzy godziny.
- Po fiksacji nerw płucze się trzykrotnie w 0,1 M buforze fosforanowym.
- Nerw zanurza się w 2% cztejrotlenku osmu w 0,1 M buforze fosforanowym na jedną godzinę.
- Następnie nerw odwadnia się poprzez sekwencyjne zanurzanie w coraz bardziej stężonym etanolu (50%, 70%, 80%, 95%, 100%, 100%, 100%). Każde zanurzenie trwa 15 minut.
- Odwodniony nerw inkubuje się dwukrotnie w tlenku propylenu po trzy minuty za każdym razem.
- Następnie nerw zanurza się w mieszaninie tlenku propylenu i Embed 812 w stosunku 1:1 na co najmniej 6 godzin (zazwyczaj przez noc).
- Następnie nerw zanurza się w mieszaninie tlenku propylenu i Embed 812 w stosunku 2:1 przez noc.
- Na koniec nerw zanurza się w czystym Embed 812 na sześć godzin, a następnie zatapia w odpowiedniej formie i utwardza w temperaturze 60°C przez 48 godzin.
- Przekroje o grubości 1,0 μm wycina się z dystalnego kikuta nerwu w określonej odległości od miejsca zmiażdżenia, używając ultramikrotomu Ultracut UCT (Leica) z nożem szklanym, a następnie barwi się je błękitem toluidyny. Można również przygotować cienkie skrawki do badania ultrastruktury za pomocą mikroskopii elektronowej.
5. Przygotowanie całego mięśnia do badania
- W pierwszej kolejności myszy uśmierca się przedawkowaniem pentobarbitalu (300 mg/kg), a następnie usuwa kończyny tylne na wysokości kolan.
- Do analizy wycina się cztery mięśnie kończyny tylnej: mięsień piszczelowy przedni (TA), mięsień prostownik długi palców (EDL), mięsień płaszczkowaty oraz mięsień strzałkowy długi.
- Wszystkie mięśnie są usuwane poprzez staranną dyssekcję i przypinane za pomocą tkanki łącznej do szalki powlekanej sylgardem (Fisher Scientific, NC9492579) w kolorze czarnym. Następnie płucze się je w PBS i utrwala w 4% paraformaldehydzie przez 30 minut.
- Mięsień TA płucze się w PBS, zatapia w O.C.T (Fisher Scientific, 14-373-65) i szybko zamraża w kąpieli z acetonu i suchego lodu.
- Przechowuje się go w temperaturze -80 °C w celu wykonania cienkich przekrojów na wypadek niepowodzenia preparatyki całego preparatu. Zazwyczaj mięsień TA jest zbyt gruby do prawidłowego przygotowania całego preparatu.
- Mięśnie EDL, płaszczkowaty i strzałkowy długi płucze się 3 x 10 minut w PBS, umieszcza w 0,1 M glicynie* (Fisher Scientific, AC12007-0010; rozcieńczonej w PBS) na 30 minut, a następnie ponownie płucze się 3 x 10 minut w PBS. Następnie poddaje się je gwałtownemu chłodzeniu w lodowatym 100% metanolu przez dokładnie 5 minut w temperaturze -20°C, płucze 3 x 10 minut w PBS i inkubuje w alfa-bungarotoksynie sprzężonej z fluoresceincą (rozcieńczonej 1:200 w PBS) przez 30 minut. Mięśnie płucze się 3 x 10 minut w PBS, a następnie blokuje przez 1 godzinę w 2% BSA (KPL, 50-61-00) i 0,2% Triton X-100 (Dot Scientific Incorporated, 9002-93-1) w PBS*, a następnie inkubuje przez noc w temperaturze 4 °C przy ciągłym kołysaniu w koktajlu przeciwciał pierwszorzędowych rozcieńczonych w tym samym roztworze blokującym 2% BSA/0,2% Triton.
*Roztwory glicyny i roztwory blokujące przygotowuje się w tym samym dniu, w którym pobiera się mięśnie, i miesza przez 30–60 minut w temperaturze pokojowej przed użyciem.- Do znakowania aksonów i synaps nerwowo-mięśniowych stosujemy kombinację mysiego monoklonalnego markera neurofilamentów (Covance, SMI-312R; rozcieńczenie 1:1000), mysiego monoklonalnego markera pęcherzyków synaptycznych (SV2 DSHB, rozcieńczenie 1:1000) oraz alfa-bungarotoksyny sprzężonej z rodamyną (Sigma-Aldrich, rozcieńczenie 1:200). Do znakowania reaktywnych komórek Schwanna stosujemy królicze przeciwciała anty-GAP-43 (Novus Biologicals, NB300-143, rozcieńczenie 1/500). Przeciwciała pierwszorzędowe są wizualizowane za pomocą specyficznego dla podtypu IgG1 koziego przeciwciała wtórnego anty-mysiego sprzężonego z fluoresceincą oraz osiołczego przeciwciała anty-kroliczego sprzężonego z DyLight 649 (Jackson ImmunoResearch, rozcieńczenie 1:200).
- Następnego dnia mięśnie płucze się w PBS 3 x 10 minut i inkubuje w przeciwciałach wtórnych rozcieńczonych 1:200 (w roztworze blokującym 2% BSA/0,2% Triton). Następnie płucze się je 2 x 10 minut w PBS, po czym zanurza na 5 minut w DAPI (Invitrogen, D3571; rozcieńczonym do 300 nM w wodzie dejonizowanej) i ponownie płucze przez 10 minut w PBS.
- Każdy mięsień jest następnie dyssekowany na czarnej szalce Petriego powlekanej sylgardem (Fisher Scientific, NC9492579). Początkowo usuwa się ścięgna w miejscach ich przyczepu do mięśnia, a następnie cieńczy mięśnie poprzez oddzielanie wewnętrznych włókien mięśniowych (Rysunek 3, panele A-C). Należy zadbać o zachowanie zewnętrznej powierzchni mięśnia, w tym pasm płyt końcowych (Rysunek 3, panele D-F). Uzyskane mięśnie montuje się na szkiełkach plus (Fisher Scientific, 12-550-15) przy użyciu vectashield (Vector Laboratories, H-1000) i szkiełek nakrywkowych 22 x 40 mm (Fisher Scientific, 12-548-5C), uszczelniając je z dwóch stron bezbarwnym lakierem do paznokci. Po prawidłowym zamontowaniu na szkiełku pasmo płyt końcowych styka się ze szkiełkiem nakrywkowym.
6. Pomiar regeneracji
- Regenerację można ocenić we wszystkich trzech mięśniach (strzałkowym, EDL i płaszczkowatym). Często badamy regenerację czternaście dni po zmiażdżeniu nerwu, czyli w czasie, w którym znaczna część połączeń nerwowo-mięśniowych (NMJ) zostaje ponownie unerwiona. W zależności od stawianego pytania badawczego odpowiednie mogą być również wcześniejsze i późniejsze punkty czasowe. W każdym mięśniu bada się ponowną unerwienie całej strefy końcowej. Punktowane są tylko NMJ widoczne z powierzchni (en face). W ten sposób można szybko zbadać co najmniej 200 NMJ na mięsień.
- Aby ocenić ponowną unerwienie mięśni, wyznaczamy „wskaźnik ponownej unerwienia”. Mianownikiem jest liczba zdenerwowanych połączeń nerwowo-mięśniowych, oznaczonych wiązaniem α-bungarotoksyny i immunoreaktywności białka GAP-43 w komórkach Schwanna. Licznikiem jest liczba ponownie unerwionych NMJ, oznaczonych immunoreaktywnością neurofilamentów/SV2. W razie potrzeby NMJ można sklasyfikować jako częściowo (niepełne pokrycie α-bungarotoksyny przez SV2) lub całkowicie (pełne pokrycie α-bungarotoksyny przez SV2) ponownie unerwione. Przykłady ponownie unerwionych i zdenerwowanych NMJ przedstawiono na Rysunku 3, panele G i H.
7. Reprezentatywne wyniki
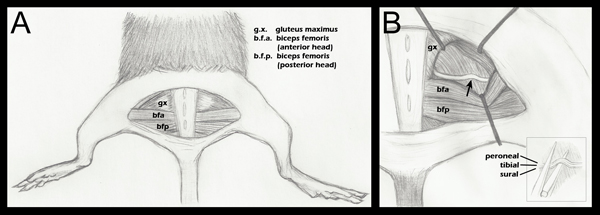
Rycina 1. Schemat anatomii kończyny tylnej istotnej dla zmiażdżenia nerwu. A. Wykonano półkoliste nacięcie skóry, odsłaniające leżącą pod nią muskulaturę. B. Muskulatura pośladkowa została odsunięta, a nerw kulszowy odsłonięty (krok 2.4 powyżej). Strzałka wskazuje przybliżone miejsce zmiażdżenia. Rozmieszczenie rozszerzaczy przedstawiono jako ogólną wskazówkę; jest ono dostosowywane podczas każdej operacji w celu ułatwienia wizualizacji nerwu kulszowego i dostępu kleszczyków hemostatycznych do zmiażdżenia. B (wstawka): Umieszczenie nerwu kulszowego w dolnym ramieniu kleszczyków hemostatycznych tuż przed zmiażdżeniem (krok 2.5 powyżej). Poszczególne pęczki są oznakowane, aby wykazać, że podczas zmiażdżenia są one sąsiadujące poziomo, ale nie pionowo. Choć na schemacie zaznaczono trzy pęczki, można zauważyć również czwarty pęczek – gałąź stawową nerwu strzałkowego. Bardziej szczegółowy rysunek anatomiczny wzorów rozgałęzień pęczków nerwu kulszowego dystalnie względem punktu zmiażdżenia znajduje się w publikacji Greene's Anatomy of the Rat, Rycina 18817.

Rycina 2. Miejsce zmiażdżenia zaznaczone węglem in situ oraz półcienkie przekroje zmiażdżonego nerwu kulszowego barwione błękitem toluidyny. A. Przykład miejsca zmiażdżenia in situ (lewa kończyna tylna). Czarny węgiel oznacza miejsce zmiażdżenia. Gwiazdka oznacza odgałęzienie nerwu piszczelowego, który unerwia mięśnie uda i służy jako przydatny punkt orientacyjny podczas zabiegu zmiażdżenia. Dział piszczelowy nerwu kulszowego zaznaczono na niebiesko, strzałkowy na zielono, a skórny przyśrodkowy na żółto. B. Przekroje półcienkie obrazujące całkowite zmiażdżenie wykonane kleszczykami hemostatycznymi. C. Przekroje półcienkie obrazujące niepełne zmiażdżenie wykonane kleszczykami kątowymi. Na obu obrazach degenerujące profile mieliny zaznaczono grotami strzałek. Na panelu C strzałki wskazują przykłady zachowanych profili mieliny oraz skupisko oszczędzonych aksonów. Pasek skali wynosi 10 μm.

Rycina 3. Schemat mięśni w preparacie całego organu oraz reprezentatywne NMJ. A-C: Wyrenderowane obrazy mięśnia prostownika długiego palców (EDL) (A), mięśnia strzałkowego długiego (B) oraz mięśnia płaszczowatego (C) po usunięciu z kończyny tylnej. Przedstawione mięśnie pochodzą z prawej kończyny tylnej. Dla odniesienia uwzględniono również orientację anatomiczną kolana i kostki. Ścięgna są zaznaczone kolorem białym i obwiedzione ciągłą czarną linią, gdy znajdują się na powierzchni mięśnia. Są one obwiedzione czarną przerywaną linią, gdy przebiegają pod mięśniem. Przecięcia zaznaczono czerwonymi przerywanymi liniami. Mięsień jest oddzielany od miejsc przecięcia, co wskazują niebieskie strzałki, a następnie jest go pocieniany. Po pocienieniu mięsień zostaje oddzielony od szpilek poprzez przecięcie pozostałości przypiętych ścięgien. D-F: Wyrenderowane obrazy z preparatów całych mięśni po usunięciu tkanki łącznej i późniejszym pocienieniu. Na każdym mięśniu zaznaczono pasma płyt końcowych. G-H: Preparat całego mięśnia płaszczowatego czternaście dni po zmiażdżeniu nerwu kulszowego, obrazujący reinerwowane (G) i denerwowane (H) złącza nerwowo-mięśniowe. Na tych panelach NMJ, aksony i komórki Schwanna są wizualizowane zgodnie z opisem w sekcji 5.5.1. Receptory acetylocholiny są czerwone, aksony zielone, a wypustki komórek Schwanna niebieskie. W panelu G strzałki wskazują obszary NMJ, które zostały ponownie unerwione przez akson. W panelu H groty strzałek wskazują wypustki komórek Schwanna wykazujące ekspresję GAP-43. Zwróć uwagę na brak aksonów. Pasek skali wynosi 10 μm.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiliśmy metodę uzyskania wiarygodnie całkowitego zmiażdżenia nerwu kulszowego z precyzyjnym oznaczeniem miejsca urazu. Jak wspomniano wcześniej, zmiażdżenie nerwu kulszowego jest powszechnym modelem uszkodzenia nerwów obwodowych u myszy i szczurów. Chociaż każda metoda zmiażdżenia ma swoje zalety i wady, stwierdziliśmy, że ta metoda pozwala na uzyskanie całkowitego zmiażdżenia, które można łatwo oznaczyć przy użyciu minimalnej ilości specjalistycznego sprzętu (np. specjalnych zacisków itp.).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie mamy nic do ujawnienia.
Podziękowania
Praca ta była wspierana przez granty NIH K08NS065157 (dla T.A.F.). Ponadto, badania te były wspierane przez Penn Center for Musculoskeletal Disorders, numer przyznania P30AR050950 z National Institute of Arthritis, Musculoskeletal and Skin Diseases (T.A.F. oraz Steven S. Scherer). Wreszcie, praca ta otrzymała wsparcie z funduszy zalążkowych Shriners Pediatric Research Center Seed funding (T.A.F). Pragniemy podziękować dr. Young-Jin Son za początkowe zaprezentowanie procedury całego preparatu (whole mount) oraz Amy A. Kim za pomoc w przygotowaniu szkiców do Ryciny 1.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Bibliografia
- Pan, Y. A., Misgeld, T., Lichtman, J. W., Sanes, J. R. Effects of neurotoxic and neuroprotective agents on peripheral nerve regeneration assayed by time-lapse imaging in vivo. J. Neurosci. 23, 11479-11488 (2003).
- Magill, C., Tong, A., Kawamura, D., Hayashi, A., Hunter, D. Reinnervation of the tibialis anterior following sciatic nerve crush injury: A confocal microscopic study in transgenic mice. Exp. Neurol. 207, 64-74 (2007).
- Amado, S., Simñes, M. J., Armada-da-Silva, P. A. S., Luís, A. L., Shirosaki, Y. Use of hybrid chitosan membranes and N1E-115 cells for promoting nerve regeneration in an axonotmesis rat model. Biomaterials. 29, 4409-4419 (2008).
- Luís, A. L., Rodrigues, J. M., Geuna, S., Amado, S., Simðes, M. J. Neural cell transplantation effects on sciatic nerve regeneration after a standardized crush injury in the rat. Microsurgery. 28, 458-470 (2008).
- Luís, A. L., Amado, S., Geuna, S., Rodrigues, J. M., Simðes, M. J. Long-term functional and morphological assessment of a standardized rat sciatic nerve crush injury with a non-serrated clamp. J. Neurosci. Methods. 163, 92-104 (2007).
- Baptista, A. F., de Souza Gomes, J. R., Oliveira, J. T., Santos, S. M. G., Vannier-Santos, M. A. A new approach to assess function after sciatic nerve lesion in the mouse - adaptation of the sciatic static index. J. Neurosci. Methods. 161, 259-264 (2007).
- Ronchi, G., Raimondo, S., Varejão, A. S. P., Tos, P., Perroteau, I. Standardized crush injury of the mouse median nerve. J. Neurosci. Methods. 188, 71-75 (2010).
- Berg, A., Zelano, J., Cullheim, S. Netrin G-2 ligand mRNA is downregulated in spinal motoneurons after sciatic nerve lesion. Neuroreport. 21, 782-785 (2010).
- Girolami, E. I., Bouhy, D., Haber, M., Johnson, H., David, S. Differential expression and potential role of SOCS1 and SOCS3 in Wallerian degeneration in injured peripheral nerve. Exp. Neurol. 223, 173-182 (2010).
- Hossain-Ibrahim, M. K., Rezajooi, K., Stallcup, W. B., Lieberman, A. R., Anderson, P. N. Analysis of axonal regeneration in the central and peripheral nervous systems of the NG2-deficient mouse. BMC Neurosci. 8, 80-80 (2007).
- Thornton, M. R., Mantovani, C., Birchall, M. A., Terenghi, G. Quantification of N-CAM and N-cadherin expression in axotomized and crushed rat sciatic nerve. J. Anat. 206, 69-78 (2005).
- Beer, G. M., Steurer, J., Meyer, V. E. Standardizing nerve crushes with a non-serrated clamp. J. Reconstr. Microsurg. 17, 531-534 (2001).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
