Organizm modelowy C. elegans wykorzystuje płyn pseudocelomiczny jako pasywny układ krążenia. Bezpośrednia analiza tego płynu nie była wcześniej możliwa. Przedstawiamy tutaj nową technikę bezpośredniego badania przestrzeni zewnątrzkomórkowej, wykorzystując systemowe sygnały wyciszania podczas odpowiedzi RNAi jako przykład potwierdzający zasadność tej metody.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wampiryczna izolacja płynu zewnątrzkomórkowego z Caenorhabditis elegans
W tym artykule
Podsumowanie
Streszczenie
Genetycznie podatny organizm modelowy C. elegans dostarczył odpowiedzi na niezliczone pytania biologiczne, co było możliwe dzięki jego krótkiemu czasowi generacji, łatwości hodowli i niewielkim rozmiarom. Ten niewielki rozmiar uniemożliwił jednak zastosowanie wielu podejść technicznych spotykanych w innych systemach modelowych. Na przykład przetaczanie krwi w systemach ssaków oraz techniki szczepienia roślin pozwalają na badanie składu i sygnalizacji układu krwionośnego. Układ krwionośny nicieni, czyli pseudocoelom, do niedawna był niemożliwy do bezpośredniej analizy. Aby odpowiedzieć na pytania dotyczące sygnalizacji międzykomórkowej i składu układu krwionośnego, badacze C. elegans tradycyjnie polegali na analizie genetycznej, swoistej dla komórek/tkanek rekonstytucji funkcji oraz analizie mozaikowej. Techniki te pozwalają wnioskować o procesach zachodzących między komórkami, ale nie są uniwersalnie stosowalne w identyfikacji i charakterystyce cząsteczek zewnątrzkomórkowych. Przedstawiamy tutaj nowo opracowaną technikę bezpośredniej analizy płynu pseudocoelomicznego C. elegans. Technika ta rozpoczyna się od manipulacji genetycznej lub fizycznej w celu zwiększenia objętości płynu zewnątrzkomórkowego. Następnie zwierzęta poddawane są technice wampirycznej odwrotnej mikroiniekcji z wykorzystaniem zestawu do mikroiniekcji, który umożliwia precyzyjną kontrolę ciśnienia równowagi. Po wyizolowaniu płynu zewnątrzkomórkowego, zebrały materiał można analizować poprzez przeniesienie go do innych osobników lub za pomocą metod molekularnych. Aby zademonstrować skuteczność tej techniki, przedstawiamy szczegółowe podejście do analizy konkretnego przykładu cząsteczek sygnalizacyjnych zewnątrzkomórkowych – długich dsRNA podczas systemowej odpowiedzi RNAi. Choć charakterystyka systemowego RNAi służy jako przykład dowodu koncepcji, uważamy, że technika ta może być adaptowana do odpowiedzi na szereg pytań dotyczących składu i sygnalizacji układu krwionośnego.
Protokół
1. Przygotowanie materiałów
Materiały niezbędne do wampirycznej mikroiniekcji wstecznej są podobne do tych wymaganych w standardowych technikach mikroiniekcji stosowanych do tworzenia transgenicznych szczepów C. elegans 1. Chociaż niektóre odczynniki (np. płytki do testów) przygotowuje się w dniu transferu eksperymentalnego, wiele materiałów musi zostać przygotowanych w sposób skoordynowany w ciągu 8 dni (harmonogram znajduje się w Tabeli 1). W związku z tym, przy stosowaniu tej techniki ważne jest staranne planowanie z wyprzedzeniem (niezbędne odczynniki i sprzęt wymieniono w Tabeli 2).
Podkładki do wstrzykiwania:
- Przygotować 2% roztwór agarozy w H2O i podgrzewać do czasu rozpuszczenia. Rozdzielić na aliquoty po 1 ml do probówek do mikrocentryfugi o pojemności 1,5 mL i przechowywać w temperaturze 4 °C.
- Rozłożyć szkiełka nakrywki o wymiarach 22 x 50 mm na blacie roboczym tak, aby ich krawędzie lekko wystawały poza brzeg blatu, co ułatwi ich szybkie podnoszenie.
- W pokrywce probówki do mikrocentryfugi zrobić mały otwór (używając pinezki), aby umożliwić wentylację. Umieścić probówkę w zlewce o pojemności 15 mL z około 5 mL wody i podgrzać w mikrofalówce do stopienia (około 35 sekund).
- Za pomocą pipety Pasteura z gruszką nanieść kroplę (około 35 μL) stopionej agarozy na szkiełko nakrywkowe, a następnie natychmiast położyć drugie szkiełko nakrywkowe na kropli pod kątem 90° względem pierwszego. Powtórzyć czynność dla kilku kolejnych szkiełek nakrywkowych.
- Po zastygnięciu agarozy zdjąć szkiełko nakrywkowe i pozostawić podkładkę do całkowitego wyschnięcia na powietrzu przez noc (jeśli wymagane jest szybsze wysuszenie, preparaty można umieścić w piekarniku w temperaturze 50-80 °C na 15-30 minut).
- Podkładki można następnie przechowywać w pudełku na szkiełka nakrywkowe w temperaturze pokojowej przez nieokreślony czas.
Płytki do analiz:
W celu oceny letalności embrionalnej związanej z RNAi pal-1, przygotowanie płytek testowych powinno odbyć się w dniu przeprowadzenia eksperymentu. Celem jest uzyskanie minimalnego trawnika bakteryjnego, który nie doprowadzi do zagłodzenia nicieni. Zbyt gęsty trawnik sprawia, że ocena larw Pal-1 jest niezwykle trudna, ponieważ małe, półprzezroczyste i zdeformowane osobniki L1 mogą łatwo zniknąć w pożywce. Przygotowanie płytek powinno być zoptymalizowane pod kątem oceny analizowanego fenotypu.
- Przygotuj szczep OP50: Zaszczep 5 mL bulionu LB pojedynczą kolonią OP50 wyhodowaną na płytkach z agarem LB. Inkubuj OP50 w temperaturze 37 °C przez noc z wytrząsaniem, a następnie przechowuj w temperaturze 4 °C.
- Przygotuj płytki NGM o średnicy 35 mm zgodnie z protokołem podstawowym (patrz Uwaga 1).
- Nanieś po 20 μL nocnej kultury OP50 (krok 1.7) na każdą płytkę NGM. Pozostaw LB-OP50 do wyschnięcia (powinno to zająć mniej niż 20 minut).
Igły do iniekcji:
- Wyciągnąć igły do iniekcji z kapilar borokrzemianowych za pomocą wyciągarki P97 flaming/brown firmy Sutter instruments (kształt reprezentatywnej igły przedstawiono na Rysunku 1).
- Przechowywać igły do iniekcji w uchwycie wykonanym z płytki Petriego i plasteliny (patrz 1).
2. Przygotowanie nicieni
Szacowana objętość pseudocele dorosłego hermafrodyty C. elegans wynosi 40-80 pikolitrów (komunikat Davida Halla). Aby uzyskać próbki płynu pozakomórkowego z tak małego zbiornika, korzystne jest zwiększenie całkowitej dostępnej puli zasobów. Zidentyfikowaliśmy trzy metody pozwalające znacznie zwiększyć ilość dostępnego płynu w robakach dawcach. Nasza główna metoda wykorzystuje fenotyp mutantów clr-1(e1745), który może spowodować dziesięciokrotny lub większy wzrost objętości płynu pozakomórkowego (Rycina 2). Dwie alternatywne metody wykorzystują fakt, że linia zarodkowa stanowi prawie jedną trzecią całkowitej objętości robaka, a jej usunięcie za pomocą glp-1(RNAi) lub ablacji laserowej skutkuje powstaniem zwierząt, w których płyn pseudocelemiczny wypełnia pustą przestrzeń po linii zarodkowej (Rycina 2) 2.
Przygotowanie nicieni dawców przy użyciu clr-1(e1745)
Patrz Rycina 3, aby zapoznać się z przebiegiem testu transferu clr-1(e1745)
- Wysiać bakterie ekspresyjne dsRNA w celu otrzymania pojedynczych kolonii na płytki LB + 25μg/mL karbenicylyny. W tej demonstracji użyjemy bakterii produkujących dsRNA dla pal-1. Inkubować przez noc w 37 °C.
- Z wysianej płytki LB + 25 μg/mL karbenicylyny z bakteriami pal-1(RNAi) pobrać pojedynczą kolonię w celu zaszczepienia 3 mL kultury nocnej w pożywce LB uzupełnionej o 25μg/mL karbenicylyny.
- Nanieść pipetą 15 μL kultury nocnej na płytki NGM 35mm uzupełnione o 25 μg/mL karbenicylyny i 1 mM IPTG. Należy upewnić się, że bakterie zostały naniesione poza centrum płytki. Pozostawić do wyschnięcia (około 20 minut).
- Przygotować 500 μL świeżego roztworu wybielacza (1:1 5M KOH: podchloryn sodu).
- Nanieść pipetą 10 μL roztworu wybielacza na zaszczepioną płytkę. Należy umieścić kroplę wybielacza w pewnej odległości od plamki bakteryjnej.
- Aby uzyskać małą, czystą i zsynchronizowaną populację zwierząt clr-1(e1745) do mikroiniekcji wstecznej, przenieść 2-10 dorosłych osobników z jajami do kropli wybielacza. Dorosłe osobniki ulegną rozpuszczeniu, pozostawiając czyste embriony na różnych etapach rozwoju. Embriony te wyklują się, a larwy pełznąć będą w stronę pożywki.
- Inkubować przez cztery dni w 20 °C.
- Przenieść płytki do temperatury 25 °C na cztery godziny, aby wywołać obrzęk.
- Przenieść nicienie na niezaszczepioną płytkę NGM i odczekać, aż bakterie znikną z kutykuli. (KROK OPCJONALNY) Przemyć nicienie w buforze M9 podczas przenoszenia na płytki NGM.
- Przenieść nicienie biorców w stadium L4/młodych dorosłych (YA) na niezaszczepioną płytkę NGM i odczekać, aż bakterie znikną z kutykuli. (KROK OPCJONALNY) Przemyć nicienie w buforze M9 podczas przenoszenia na płytki NGM.
A2) Alternatywna metoda przygotowania robaków dawców przy użyciu glp-1(RNAi)
- Z wysiewanej płytki LB + 25 μg/mL karbenicyliny zaszczep 3 mL pożywki LB uzupełnionej o karbenicylinę pojedynczą kolonią bakterii glp-1(RNAi) w celu przygotowania kultury nocnej. Inkubuj przez noc w temperaturze 37 °C.
- Pipetuj 15 μL kultury nocnej glp-1(RNAi) na płytkę NGM 35 mm uzupełnioną o 25 μg/mL karbenicyliny i 1mM IPTG. Inkubuj przez noc w temperaturze pokojowej.
- Przenieś pięć zwierząt w stadium L3/L4 na płytki glp-1(RNAi). Inkubuj przez dwa dni w temperaturze 20 °C. RNAi celowane w glp-1 prowadzi do powstania potomstwa z defektami proliferacji linii zarodkowej. Brak pełnego rozwoju linii zarodkowej skutkuje powstaniem wolnej przestrzeni, która wypełnia się płynem pozakomórkowym. W zależności od potrzeb może być konieczna optymalizacja pożywki RNAi, aby uzyskać potomstwo, które osiąga wiek dorosły bez proliferujących linii zarodkowych.
- Przygotuj płytki pal-l(RNAi) zgodnie z krokami 2.1-2.3 protokołu przygotowania nicieni clr-1(e1745) opisanego powyżej.
- Przygotuj świeży roztwór wybielacza (1:1 5M KOH: podchloran sodu).
- Pipetuj 10 μL roztworu wybielacza na zaszczepioną płytkę pal-1(RNAi). Upewnij się, że kropla wybielacza znajduje się z dala od plamki bakteryjnej.
- Przenieś embriony, przenosząc 2-10 zapłodnionych dorosłych osobników glp-1(RNAi) do kropli wybielacza.
- Inkubuj przez cztery dni w temperaturze 20 °C.
- Przenieś nicienie na niezaszczepioną płytkę NGM 60 mm i odczekaj, aż bakterie zostaną usunięte z kutykuli. (KROK OPCJONALNY) Przepłucz nicienie w buforze M9 podczas przenoszenia na płytki NGM.
B2) Alternatywne przygotowanie nicieni dawców przy użyciu ablacji laserowej linii zarodkowej
- Wykonać posiew bakterii wykazujących ekspresję dsRNA w celu uzyskania pojedynczych kolonii na płytkach LB z dodatkiem 25 μg/mL karbenicyliny. W tej demonstracji użyjemy bakterii produkujących dsRNA pal-1. Inkubować przez noc w temperaturze 37 °C.
- Z płytki z karbenicyliną zaszczepić kulturę nocną o objętości 3 mL w podłożu LB uzupełnionym o 25 μg/mL karbenicyliny.
- Nanieść pipetą 15 μL nocnej kultury bakterii wykazujących ekspresję dsRNA pal-1 na 35 mm płytki NGM uzupełnione o 25 μg/mL karbenicyliny oraz 1mM IPTG. Pozostawić do wyschnięcia przez noc.
- Wyizolować zwierzęta w stadium L1 z standardowych płytek OP50 i przeprowadzić laserową ablację komórek prekursorowych somatycznej linii zarodkowej Z1 i Z4 zgodnie ze standardowym protokołem 3.
- Przenieść robaki po ablacji laserowej na wyżej wymienione płytki RNAi pal-1.
- Inkubować przez 3 dni w temperaturze 20 °C.
- Przenieść robaki na czystą płytkę NGM i odczekać, aż bakterie zostaną usunięte z kutykuli. (KROK OPCJONALNY) Przepłukać robaki w buforze M9 podczas przenoszenia na płytki NGM.
Przygotowanie nicieni biorców
- Wysiać szczep OP50 metodą smugową na płytach LB w celu uzyskania pojedynczych kolonii. Inkubować przez noc w temperaturze 37 °C.
- Z płyty LB zaszczepić 3 mL pożywki LB w celu przygotowania nocnej hodowli.
- Nanieść 15 μL nocnej hodowli na płyty NGM o średnicy 35 mm. Bakterie należy wysiać poza centrum płyty. Pozostawić do wyschnięcia (około 20 minut).
- Przygotować świeży roztwór wybielacza (1:1 5M KOH: podchloryn sodu).
- Nanieść 10 μL roztworu wybielacza na zaszczepioną płytę. Kroplę wybielacza należy umieścić w pewnej odległości od plamki bakteryjnej.
- Przenieść embriony, umieszczając 2-10 dorosłych, zapłodnionych osobników N2 w kropli wybielacza.
- Inkubować przez trzy dni w temperaturze 20 °C.
- Przenieść nicienie na czystą, niezaszczepioną płytę NGM i inkubować w temperaturze 20 °C przez co najmniej 30 minut.
3. Izolacja płynu pozakomórkowego metodą wampiryczną
Poniższy protokół jest specyficzny dla układu do mikrowstrzykiwania składającego się z piko-injektora pli-100, stacjonarnej igły zamocowanej w mikromanipulatorze oraz ruchomego stolika, za pomocą którego można przesunąć nicienia w stronę igły. Ogólna technika polega jednak na wprowadzeniu pustej igły do mikrowstrzykiwania do zwierzęcia dawcy, przy jednoczesnym zachowaniu ciśnienia wystarczającego do zapobieżenia kapilarnemu napływowi oleju mineralnego przed wprowadzeniem oraz materiału komórkowego podczas penetracji tkanki ściany ciała. Gdy igła znajduje się wewnątrz zwierzęcia dawcy, ciśnienie jest zmniejszane, aby umożliwić kapilarne napełnienie igły płynem pozakomórkowym, który następnie może zostać przetransportowany w igle do nicienia biorcy i wypchnięty poprzez odpowiednie zwiększenie ciśnienia. Usuwanie płynu za pomocą działania kapilarnego może być również wspomagane przez funkcję napełniania lub ssania piko-injektora. Ta ogólna technika powinna być łatwo adaptowalna do innych systemów mikrowstrzykiwania, które pozwalają na kontrolę ciśnienia równowagi.
- Włącz mikroskop odwrócony, mikroskop do sekcji oraz piko-wtryskiwacz (patrz Rysunek 1).
- Ustaw pokrętło wyboru piko-wtryskiwacza na Pclear i upewnij się, że pomiar aktualny jest w psi. Odczyt ten, ciśnienie oczyszczania, jest ciśnieniem wejściowym i powinno wynosić około 0 psi.
- Sprawdź główny zawór regulatora zbiornika z azotem, aby upewnić się, że wyjście jest zamknięte (obracaj przeciwnie do ruchu wskazówek zegara, aż pokrętło będzie luźne).
- Otwórz główny zawór zbiornika z azotem. Manometr regulatora znajdujący się najbliżej zbiornika N2 powinien teraz wskazywać ciśnienie wewnętrzne zbiornika.
- Powoli zwiększaj ciśnienie wyjściowe, obracając główny zawór regulatora zgodnie z ruchem wskazówek zegara. Monitoruj rosnące ciśnienie na piko-wtryskiwaczu (jest to dokładniejsze niż odczyt ciśnienia wyjściowego na manometrze regulatora). Powoli zwiększaj ciśnienie do 100 psi. NIE POZWALAJ NA PRZEKROCZENIE 105 psi.
- Po osiągnięciu 100 psi przełącz przełącznik na Pinject i ustaw ciśnienie wtrysku na 30 psi za pomocą pokrętła Pinject.
- Przełącz pokrętło wyboru na Pbalance.
- Nanieś kropelkę 15 μL oleju mineralnego na czyste płytki dla dawcy i biorcy.
- Przykryj podkładkę do wtryskiwania z 2% agarozy olejem mineralnym.
- Zamocuj wyciągniętą igłę mikropipety w uchwycie i wyrównaj ją.
- Używając mikroskopu do sekcji, umieść jednego nicienia-dawcy i jednego nicienia-biorcy obok siebie na podkładce z agarozy.
- Ustaw nicienie przy użyciu małego powiększenia i wprowadź igłę do oleju mineralnego w pobliżu dawcy.
- Przełącz na duże powiększenie i ustaw igłę w pobliżu jamy pseudocoelomicznej.
- Zwiększ ciśnienie równoważące do około 10 psi. Zauważ czop z oleju mineralnego na końcówce igły.
- Wsuń nicienia w igłę, przesuwając stolik mikroskopu, aby umieścić końcówkę igły w jamie pseudocoelomicznej.
- Zauważ przesunięcie się oleju mineralnego w końcówce igły.
- Zmniejsz ciśnienie równoważące, aby umożliwić wypełnienie igły przez działanie kapilarne. (Można również użyć funkcji wypełniania, aby przyspieszyć ten proces).
- Po pobraniu płynu odsuń nicienia od igły.
- Przełącz na małe powiększenie i ustaw igłę przy nicieniu-biorcy (NIE POZWALAJ, ABY KOŃCÓWKA IGŁY WYCZYNIŁA SIĘ Z OLEJU MINERALNEGO). [Alternatywnie, uchwyt igły można zdjąć, a płyn przenieść do kropelki w probówce do mikrowirówki].
- Powróć do dużego powiększenia i wprowadź igłę do nicienia-biorcy, przesuwając stolik mikroskopu.
- Po umieszczeniu igły w nicieniu-biorcy użyj funkcji wtrysku (ustawionej na 35 psi), aby wstrzyknąć pobrany od dawcy płyn z jamy pseudocoelomicznej.
- Wyjmij igłę z nicienia-biorcy, przesuwając stolik mikroskopu w kierunku przeciwnym do tego, w którym wprowadzono igłę.
- Gdy igła znajduje się już poza nicieniem, unieś ją nad podkładkę do wtryskiwania.
- Usuń podkładkę do wtryskiwania i nanieś kropelkę M9 na nicienie, aby umożliwić im regenerację.
- Nanieś kropelkę 10 μL M9 na płytkę testową.
- Przenieś nicienia-biorcę do M9 na płytce testowej.
4. Analiza transferu fenotypowego RNAi
- Pozostaw odzyskane nicienie do wzrostu przez 24 godziny w temperaturze 20 °C.
- Usuń dorosłe osobniki biorące, pozostawiając embriony i wyklute potomstwo na szalce. Inkubuj szalkę przez kolejne 24 godziny w temperaturze 20 °C.
- Zakwalifikuj potomstwo jako niewyklute, wyklute, ale z fenotypem mutantów, lub jako larwy typu dzikiego.
Uwagi
- Pożywka NGM jest przygotowywana w partiach 1-litrowych poprzez dodanie 18 g agaru, 2,5 g baktopeptony, 3 g chlorku sodu oraz H2O. Należy dodać mieszadło magnetyczne i poddać procesowi autoklawowania. Po autoklawowaniu kolbę należy umieścić na mieszalce magnetycznej i pozwolić pożywce schłodzić się do 60 °C podczas mieszania. Po ostygnięciu pożywki dodaje się 1 ml cholesterolu (5 mg/ml w etanolu), 1 mL 1M CaCl2, 1 mL 1M MgSO4, 25 mL buforu fosforanowego potasu (pH6.0). Jeśli płytki mają być użyte do RNAi, po schłodzeniu do 60 °C pożywkę NGM uzupełnia się o 1 mL 1M IPTG oraz 1 mL karbenicyliny w stężeniu 25 mg/mL. Pożywkę wlewa się do płytek Petri o średnicy 35 mm (3,5 mL NGM) lub 60 mm (8,5 mL NGM).
- 2% agarozę przygotowuje się w wodzie. Przechowywać w lodówce. Podkładki należy stopić i przygotować odpowiednio wcześniej przed dniem izolacji płynu z pseudoceleomy. Suchość podkładki sprawia, że nicienie przylegają do niej; aby podkładki były wystarczająco suche, konieczne jest co najmniej jednodobowe suszenie na powietrzu. Jeśli podkładki do iniekcji są zbyt suche i nicienie dawcy wysychają szybciej, niż można nimi manipulować, można zwiększyć wilgotność podkładek, dmuchając na nie przed dodaniem oleju mineralnego. Niezależnie od tego, absolutnie konieczna jest umiejętność szybkiej pracy w celu izolacji płynu z pseudoceleomy przed wyschnięciem nicienia.
- Na wszystkich etapach przygotowania pożywki do RNAi stosujemy karbenicylinę w celu selekcji markera oporności na ampicylinę. Karbenicylina jest analogiem ampicyliny, który jest bardziej stabilny i prowadzi do powstania mniejszej liczby kolonii satelitarnych niż ampicylina.
- Stosujemy płytki RNAi, które stanowią pożywkę NGM uzupełnioną o 1mM IPTG i 25 μg/mL karbenicyliny. Wektory do karmienia RNAi znajdują się w szczepie E. coli HT115, który wykazuje niedobór nukleazy specyficznej dla dsRNA.
- (Krok opcjonalny) Stwierdzono, że po godzinie przebywania na niezasianych płytkach NGM nicienie dawcy i biorcy w wystarczającym stopniu pozbywają się bakterii związanych z kutykulą, które przeniosły się z płytek do karmienia. Nie dotyczy to jednak przypadków, w których cel RNAi u zwierzęcia dawcy zakłóca mobilność (np. unc-22(RNAi)). W takim przypadku konieczne jest wspomaganie tego procesu. W tym celu używamy szkiełka wgłębnego z około 50 μL buforu M9. Przeniesienie nicieni z płytek do karmienia RNAi do buforu M9, a następnie mieszanie standardową platynową igłą do nicieni jest wystarczające do usunięcia większości przylegających bakterii.
5. Reprezentatywne wyniki
Przedstawiono reprezentatywne wyniki eksperymentalnego transferu płynu pozakomórkowego od nicieni clr-1(e1745) hodowanych na bakteriach wykazujących ekspresję dsRNA nakierowanego na pal-1. Potomstwo zwierząt dawców obumarło i/lub wykazywało defekty wzorca budowy części tylnej ciała. Następnie przetransferowano płyn pozakomórkowy od tych zwierząt do pseudocelemy nicieni typu dzikiego, które nie były poddane RNAi. Część potomstwa zwierzęcia biorcy wykazała wówczas oczekiwane fenotypy mutantów pal-1 (Rysunek 4). Kontrastuje to z potomstwem zwierząt biorców, które otrzymały płyn pozakomórkowy od zwierząt dawców hodowanych albo na standardowej pożywce bakteryjnej, albo na bakteriach z kontrolnym wektorem RNAi, u których odnotowano jedynie tło śmiertelności (Rysunek 4). Chociaż potomstwo biorców płynu pozakomórkowego od zwierząt dawców poddanych RNAi wykazuje znaczący wzrost częstotliwości występowania fenotypów indukowanych przez dsRNA, penetracja nie jest tak silna jak u potomstwa zwierząt dawców, gdzie prawie 100% potomstwa ginie jako niewyklute embriony, a wykluwają się jedynie rzadkie, silnie zdeformowane osobniki.
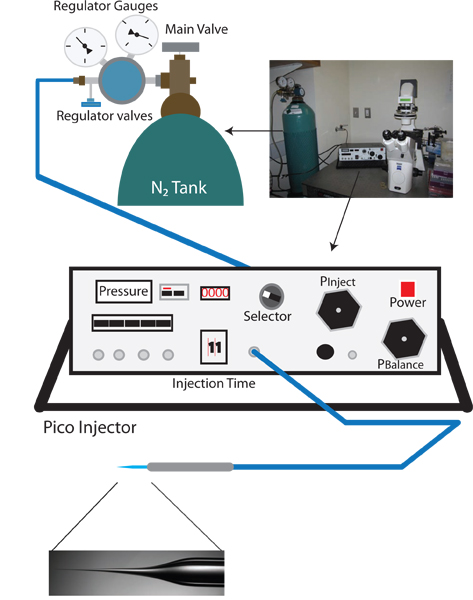
Rysunek 1. Układ do odwrotnej mikroiniekcji typu „vampiric”. Odpowiedni układ do odwrotnej mikroiniekcji typu „vampiric” jest podobny do standardowego zestawu do mikroiniekcji C. elegans i obejmuje mikroskop sekcyjny, mikroskop odwrócony z obiektywami 10X i 40X, ruchomy stolik do pozycjonowania oraz mikromanipulator z uchwytem igły iniekcyjnej. Dodatkowo niezbędny jest wyciągacz do igieł w celu przygotowania igieł iniekcyjnych. Specyficznie dla protokołu odwrotnej mikroiniekcji wymagany jest piko-injektor umożliwiający precyzyjną kontrolę ciśnienia równoważącego (np. Warner Instruments PLI-100).
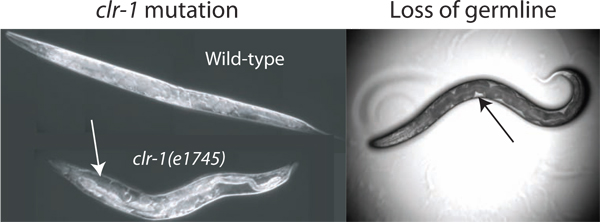
Rysunek 2. Zwiększenie objętości pseudocelemu. Objętość płynu pseudocelematycznego dostępna do izolacji u zwierząt typu dzikiego jest niewystarczająca do przeprowadzenia analizy. Objętość tę można zwiększyć poprzez zaburzenie regulacji równowagi osmotycznej poprzez zmianę temperatury u zwierząt clr-1(e1745), co prowadzi do wyraźnego gromadzenia się płynu pseudocelematycznego (biała strzałka). Dodatkowo usunięcie gonad za pomocą ablacji laserowej lub glp-1(RNAi) umożliwia dostęp do płynu pozakomórkowego (pokazano utratę w wyniku ablacji laserowej). Dostępny płyn jest najlepiej widoczny jako przeźroczyste obszary między ciemnym jelitem a ścianą ciała (czarna strzałka), choć całkowita dostępna objętość jest znacznie mniejsza niż ta stwierdzona u zwierząt clr-1(e1745) hodowanych w temperaturze restrykcyjnej.
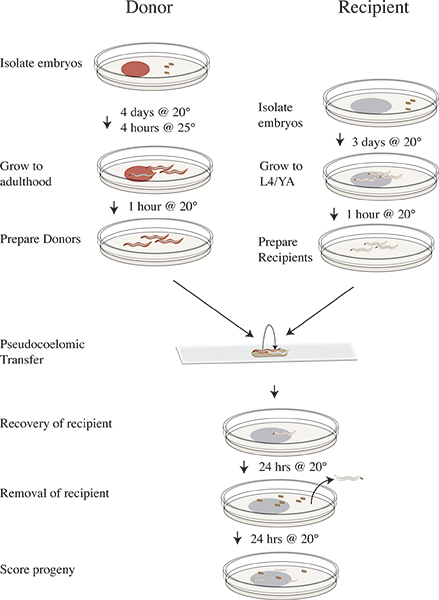
Rysunek 3. Harmonogram protokołu izolacji i transferu vampirycznego. Na cztery dni przed eksperymentem z transferu należy wyizolować embriony dawców clr-1(e1745) na płytkach z pożywką RNAi i inkubować w temperaturze 20 °C. Na trzy dni przed eksperymentem należy wyizolować embriony biorców N2 na OP50. W dniu eksperymentu płytki z dawcami należy przenieść do temperatury 25 °C na cztery godziny. Po inkubacji w 25 °C dawców należy przenieść na czyste płytki bez pożywki i zmienić temperaturę na 20 °C. Zwierzęta biorcy należy przenieść na czyste płytki bez pożywki i kontynuować inkubację w 20 °C. Należy przeprowadzić eksperyment transferu, a następnie przenieść nicienie biorcy na płytki OP50 i inkubować w 20 °C. Zwierzęta biorcy należy usunąć po 24 godzinach w 20 °C. Potomstwo biorców należy inkubować przez 24 godziny w 20 °C. Potomstwo należy ocenić jako typ dziki, mutant lub niewyklute.
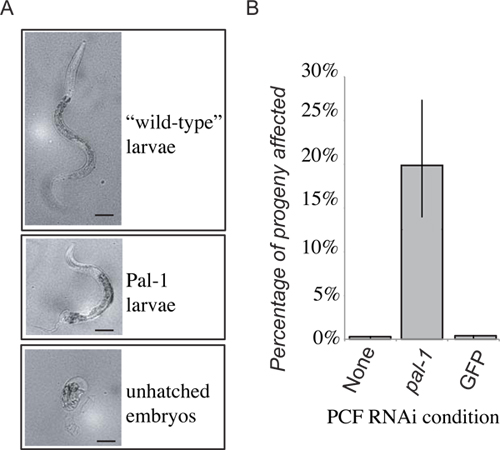
Rysunek 4. Reprezentatywne wyniki. Utrata funkcji PAL-1 u biorcy spowoduje letalność embrionalną lub charakterystyczny brak rozwoju części tylnej (A). 48 godzin po transferze płynu z pseudocele (PCF) potomstwo złożone w ciągu pierwszych 24 godzin ocenia się jako larwy typu dzikiego, larwy Pal-1 lub niewyklute embriony. Częstotliwość występowania niewyklutych embrionów oraz larw o fenotypie Pal-1 jest sumowana w celu określenia miary fenotypów indukowanych transferem pal-1(RNAi). Otrzymanie płynu z pseudocele od zwierząt hodowanych na pożywce z dsRNA PAL-1 wywołuje silną indukcję powiązanych fenotypów, których nie obserwuje się u biorców transferu kontrolnego (B).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiliśmy tutaj nowatorską metodę umożliwiającą izolację i charakterystykę płynu zewnątrzkomórkowego z organizmu modelowego C. elegans. Technika ta rozpoczyna się od genetycznej lub fizycznej manipulacji nicieniami dawcami w celu zwiększenia całkowitej objętości ich płynu zewnątrzkomórkowego. Następnie płyn zewnątrzkomórkowy jest izolowany przy użyciu zmodyfikowanej techniki mikroiniekcji. Nicienie są montowane do mikroiniekcji przy użyciu suchych podkładek agarozowych, aby unieruchomić je podczas procedur...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie zadeklarowano żadnych konfliktów interesów.
Podziękowania
Pragniemy podziękować za współpracę z laboratorium Huntera oraz za pomocne dyskusje i wsparcie, które umożliwiły opracowanie tej techniki i sprawiły, że proces ten był przyjemnością. Dziękujemy Nigelowi Delaneyowi oraz Caenorhabditis Genetics Center za udostępnienie szczepów nicieni i bakterii. Praca ta była finansowana przez National Institutes of Health w ramach grantu GM089795 przyznanego CPH.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Bibliografia
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of Stable Transgenic C. elegans Using Microinjection. J. Vis. Exp. (18), e833-e833 (2008).
- Hirose, T., Nakano, Y., Nagamatsu, Y., Misumi, T., Ohta, H., Ohshima, Y. Cyclic GMP-dependent protein kinase EGL-4 controls body size and lifespan in C elegans. Development. 130, 1089-1099 (2003).
- Kimble, J. Alterations in cell lineage following laser ablation of cells in the somatic gonad of Caenorhabditis elegans. Dev. Biol. 87, 286-300 (1981).
- Hegreness, M., Shoresh, N., Hartl, D., Kishony, R. An equivalence principle for the incorporation of favorable mutations in asexual populations. Science. 311, 1615-1617 (2006).
- Labrousse, A., Chauvet, S., Couillault, C., Kurz, C. L., Ewbank, J. J. Caenorhabditis elegans is a model host for Salmonella typhimurium. Curr. Biol. 10, 1543-1545 (2000).
- Kamath, R. S., Martinez-Campos, M., Zipperlen, P., Fraser, A. G., Ahringer, J. Effectiveness of specific RNA-mediated interference through ingested double-stranded RNA in Caenorhabditis elegans. Genome. Biol. 2, (2001).
- Min, K., Kang, J., Lee, J. A modified feeding RNAi method for simultaneous knock-down of more than one gene in Caenorhabditis elegans. Biotechniques. 48, 229-232 (2010).
- Zhuang, J. J., Hunter, C. P. Tissue-specificity of Caenorhabditis elegans Enhanced RNAi Mutants. Genetics. 188 (1), 235-237 (2011).
- Way, J. C., Chalfie, M. mec-3, a homeobox-containing gene that specifies differentiation of the touch receptor neurons in C. elegans. Cell. 54, 5-16 (1988).
- Kamath, R. S., Fraser, A. G., Dong, Y., Poulin, G., Durbin, R., Gotta, M., Kanapin, A., Bot, N. L. e, Moreno, S., Sohrmann, M. Systematic functional analysis of the Caenorhabditis elegans genome using RNAi. Nature. 421, 231-237 (2003).
- Winston, W. M., Molodowitch, C., Hunter, C. P. Systemic RNAi in C. elegans requires the putative transmembrane protein SID-1. Science. 295, 2456-2459 (2002).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
