Opisujemy jakościowy test do monitorowania konkurencji bakteryjnej, w której pośredniczy system sekrecji Pseudomonas aeruginosa typu VI (T6SS). Test opiera się na przeżyciu/zabiciu komórek docelowych Escherichia coli zawierających lacZ-reporter. Technika ta jest regulowana w celu oceny aktywności bakteriobójczej/bakteriostazy mikroorganizmów biegłych w T6SS.
Artykuł metodologiczny
Test wizualny do monitorowania konkurencji bakteryjnej za pośrednictwem T6SS
W tym artykule
Podsumowanie
Streszczenie
Systemy wydzielania typu VI (T6SSs) to molekularne nanomaszyny pozwalające bakteriom Gram-ujemnym na transport i wstrzykiwanie białek do szerokiej gamy komórek docelowych1,2. T6SS składa się z 13 podstawowych komponentów i wykazuje podobieństwa konstrukcyjne do rurki ogonowej bakteriofagów3. wykorzystuje rurkę i urządzenie do nakłuwania, aby przeniknąć do otoczki komórkowej docelowych bakterii i wstrzyknąć DNA. Sugeruje się, że T6SS jest odwróconym urządzeniem bakteriofagowym, tworzącym specyficzną ścieżkę w otoczce komórki bakteryjnej, aby wyprowadzić efektory i toksyny na powierzchnię. Proces ten można posunąć dalej, a urządzenie T6SS może perforować inne komórki, z którymi bakteria ma kontakt, wstrzykując w ten sposób efektory do tych celów. Rurka ogonowa i elementy urządzenia do nakłuwania T6SS są wykonane z białek Hcp i VgrG, odpowiednio4,5.
Wszechstronność T6SS została wykazana w badaniach z użyciem różnych patogenów bakteryjnych. Vibrio cholerae T6SS może przemodelować cytoszkielet eukariotycznych komórek gospodarza poprzez wstrzyknięcie "wyewoluowanego" VgrG niosącego C-końcową domenę sieciującą aktynę6,7. Inny uderzający przykład został niedawno udokumentowany przy użyciu Pseudomonas aeruginosa, który jest w stanie namierzać i zabijać bakterie w sposób zależny od T6SS, sprzyjając w ten sposób tworzeniu się bakterii w określonych niszach mikrobiologicznych i konkurencyjnym środowisku8,9,10.
W tym ostatnim przypadku, trzy białka wydzielane przez T6SS, a mianowicie Tse1, Tse2 i Tse3 zostały zidentyfikowane jako toksyny wstrzyknięte do docelowych bakterii (Rysunek 1). Komórka dawcy jest chroniona przed szkodliwym działaniem tych efektorów poprzez mechanizm antytoksynowy, w którym pośredniczą białka odpornościowe Tsi1, Tsi2 i Tsi38,9,10. Ta aktywność przeciwdrobnoustrojowa może być monitorowana, gdy bakterie biegłe w T6SS są współhodowane na powierzchniach stałych w konkurencji z innymi gatunkami bakterii lub z nieaktywnymi bakteriami T6SS tego samego gatunku8,11,12,13.
Dostępne dane kładą nacisk na numeryczne podejście do testu konkurencji bakteryjnej, w tym czasochłonne liczenie CFU, które w dużej mierze zależy od producentów antybiotyków. W przypadku szczepów opornych na antybiotyki, takich jak P. aeruginosa, metody te mogą być nieodpowiednie. Ponadto, dzięki identyfikacji około 200 różnych loci T6SS w ponad 100 genomach bakteryjnych14, wygodne narzędzie do badań przesiewowych jest wysoce pożądane. Opracowaliśmy test, który jest łatwy w użyciu i wymaga standardowego materiału laboratoryjnego i odczynników. Metoda oferuje szybką i jakościową technikę monitorowania zależnej od T6SS aktywności bakteriobójczej/bakteriostazy poprzez wykorzystanie szczepu reporterowego jako ofiary (w tym przypadku Escherichia coli DH5α), co pozwala na uzupełnienie genu lacZ. Ogólnie rzecz biorąc, metoda ta jest graficzna i umożliwia szybką identyfikację fenotypów związanych z T6SS na płytkach agarowych. Ten protokół eksperymentalny może być dostosowany do innych szczepów lub gatunków bakterii, biorąc pod uwagę specyficzne warunki, takie jak pożywka wzrostowa, temperatura lub czas kontaktu.
Protokół
1. Szczepy i kultury bakterii
- Inżynieria komórki biorcy Escherichia coli (Prey, P) poprzez transformację (przy użyciu standardowego traktowania CaCl2 lub elektroporacji)15 komórek DH5α E. coli z plazmidem umożliwiającym komplementację a genu lacZ (Tabela 1). Ułożyć przekształcone komórki na płytkach agarowych Luria-Bertani (LBA, 1,5% agar) zawierających 5-bromo-4-chloro-indolilo-β-D-galaktopyranozyd (X-gal) w stężeniu końcowym 40 mg/ml i odpowiednim antybiotyku. Inkubować w temperaturze 37 °C przez noc, a następnego dnia rano wybrać niebieskie transformanty (patrz §1.3).
- Hodować komórki dawcy Pseudomonas aeruginosa, które są aktywne T6SS (D+) lub nieaktywne T6SS (D-) (Tabela 1) na LBA przez noc w temperaturze 37 °C. W przedstawionym przykładzie użyliśmy szczepu P. aeruginosa retS posiadającego konstytutywnie aktywny H1-T6SS16 i izogeniczny mutant z delecją klastra genów H1-T6SS (tab. 1).
- Następnego dnia przygotować przez noc płynną kulturę w napowietrzonej kolbie, zaszczepiając jasnoniebieski klon wśród transformantów E. coli (P) z płytki opisanej w §1.1, w 5 ml tryptycznego bulionu sojowego (TSB) uzupełnionego odpowiednim antybiotykiem. Rosnąć pod wpływem mieszania w temperaturze 37 °C. Postępować równo z pojedynczą kolonią (D+) i (D-) z płytki opisanej w §1.2.
2. Test konkurencji
- Przygotuj płytki LBA do eksperymentu następnego dnia. Upewnij się, że te płyty są odpowiednio wysuszone (w pobliżu palnika Bunsena lub w komorze z przepływem laminarnym). Przygotować płytkę "Wejście do testu" (A-Input) dla szczepów (D+), (D-) i (P). Przygotować płytkę "Wynik testu" (wyjście A) dla szczepów (D-+P) i (D++P). Podziel i odpowiednio oznacz talerze.
- Po nocnym wzroście (patrz §1.3) zmierzyć gęstość optyczną (OD600nm) wejściowej kultury bakteryjnej (D-, D+ i P) i obliczyć objętość wymaganą do uzyskania gęstości komórek odpowiadającej 1 jednostce OD600nm każdego szczepu. Każda "wejściowa" hodowla komórkowa (D-, D+ i P) jest początkowo pobierana w sterylnych probówkach Eppendorfa o pojemności 1,5 ml.
- Odwirować próbki bakteryjne z prędkością 13 000 obr./min w ciągu 1 minuty w temperaturze pokojowej i wyrzucić supernatant.
- Zawiesić osady kultur D-, D+ i P w 100 μl świeżego TSB za pomocą delikatnego pipetowania i zaszczepić 10 ml każdego odpowiedniego szczepu jako pojedyncze miejsce na płytce "wejściowej A" (przygotowanej w §2.1).
- Zaszczepić płytkę "A-wyjście" (przygotowaną w §2.1). Dokładniej, delikatnie wymieszaj 30 μl (D+) z 30 μl (P) i 30 μl (D-) z 30 ml (P) w dwóch oddzielnych probówkach Eppendorfa (należy pamiętać, że użyte kultury są opisane w §2.4). Zaszczepić 20 μl mieszanin (D+/P) i (D-/P) jako pojedyncze miejsca na płytce wyjściowej A. Pozostawić plamy do wyschnięcia w pobliżu palnika Bunsena i umieścić płytkę w inkubatorze w temperaturze 37 °C na odpowiedni okres czasu, podczas którego ma miejsce zabijanie bakterii. W przypadku P. aeruginosa skuteczne zabijanie bakterii obserwuje się po 5 godzinach inkubacji, porównując aktywny szczep T6SS z wadliwym szczepem T6SS.
3. Jakościowa obserwacja zabijania bakterii
- Przygotować płytki LBA zawierające 40 μg/ml X-gal do odczytu testu. Płytki będą nazywane "Wejście odczytu" lub "Wejście R", aby wykryć izolowane bakterie, lub "Wyjście odczytu" lub "Wyjście R", aby wykryć mieszane kultury bakterii, a tym samym odczytać skuteczność zabijania. Talerze te muszą być również odpowiednio wysuszone. Podzielić płytkę na cztery równe części znajdujące się na jej odwrocie i opatrzyć te części adnotacjami 0, 10-1, 10-2 i 10-3, wyznaczając rozcieńczenia kultury bakteryjnej do naznaczenia na płytkach agarowych (patrz §3.3). Rozcieńczenie pozwoli na półilościową ocenę stosunku bakterii niebieskich do białych w tym samym miejscu.
- Zebrać sterylną pętlą poszczególne plamki bakteryjne z płytki "A-wejściowej" (patrz §2.4) i płytki "A-wyjściowej" (patrz §2.5) i ponownie zawiesić każdą plamkę w oddzielnych 1,5 ml probówkach Eppendorfa zawierających 1 ml TSB. Umieść w bloku wytrząsarki Eppendorf na 30 minut, aby skutecznie zawiesić bakterie.
- Przygotować serię 5 razy po 3 probówki Eppendorfa zawierające 900 μl TSB i postępować dla każdego ponownie zawieszonego miejsca do dziesięciokrotnych seryjnych rozcieńczeń do 10-3. Upewnij się, że wymieniasz końcówki pipet i zmieniasz wiry na 5 sekund między każdym etapem rozcieńczania.
- Przejdź do nakrapiania rozcieńczeń bakteryjnych przygotowanych w §3.3 na dobrze wysuszonych płytkach LBA zawierających 40 μg/ml X-gal, zaczynając od najbardziej rozcieńczonej do nierozcieńczonej zawiesiny, tworząc płytki "R-wejściowe" dla miejsc "wejściowych A" i płytki "R-wyjściowe" dla miejsc "wyjściowych A" (Rysunek 2). Krótko wymieszaj każdą rurkę przed przystąpieniem do plamienia, aby utrzymać jednorodną zawiesinę bakteryjną. Aby uzyskać powtarzalność wyników, należy umieścić 20 μl w trzech egzemplarzach w kwadrancie (ryc. 2). Względna suchość talerza jest ważna na tym etapie, ponieważ plamki muszą pozostać indywidualnie oddzielone na talerzu i nie mogą przesuwać się do siebie.
Na tym etapie eksperymentu możliwe jest również ilościowe określenie testu konkurencji. Postępując zgodnie z krokiem 3.3, rozprowadzić 100 μl rozcieńczenia 10-3 na płytkach LBA zawierających 40 μg/ml X-gal. W celu odtworzenia wyników należy przystąpić do posiewu w trzech egzemplarzach dla każdego miejsca z płytki "A-wyjście". Umieścić płytki rozcieńczające w inkubatorze o temperaturze 37 °C na noc (co odpowiada 16-godzinnej inkubacji). Przejdź do liczenia niebieskich kolonii (komórek P, które pozostały przy życiu). Typowe wyniki uzyskiwane po 5 godzinach zawodów przedstawiono na rysunku 3. - Pozostawić płytkę otwartą (bez pokrywki) w strefie sterylnej, aby umożliwić wchłanianie nadmiaru płynu w każdym miejscu.
- Umieścić płytkę na noc w inkubatorze o temperaturze 37 °C. W tym czasie inkubacji zabijanie nadal zachodzi w mieszance (D+/P), ponieważ oba szczepy są nadal w kontakcie.
- Zrób zdjęcie lub zeskanuj swoje płyty w celu przeprowadzenia analizy wyjściowej (Rysunek 2). Tam, gdzie plamki pozostają w dużej mierze niebieskie, oznacza to, że E. coli nie została zabita przez P. aeruginosa. Dzieje się tak w przypadku, gdy E. coli jest mieszana ze szczepem P. aeruginosa (D-) z wadą T6SS (D-) (ryc. 2, tabliczka w prawym dolnym rogu).
Wyniki
Typowe wyniki przedstawiono na Rysunku 1, z wykorzystaniem szczepów i odczynników opisanych w Tabeli 1. Płytki pokazane na tym rysunku zostały zeskanowane po inkubacji przez noc. Płytki „Readout-Input” wykazują schemat rozcieńczeń seryjnych dla szczepów użytych w tym teście. Zgodnie z oczekiwaniami, plamki ofiar E. coli (P) nadprodukujących gen lacZ wykazują niebieski kolor na pożywce uzupełnionej o X-gal, podczas gdy szczepy dawcy P. aeruginosa (D+, T6SS aktywny) oraz (D-, T6SS nieaktywny) pozostają białe. Płytki „Readout-output”, na które nanieśliśmy mieszaninę ofiary i szczepu z aktywnym T6SS (D+/P), wykazują zanik niebieskiej ofiary, co wskazuje na jej śmierć. Dowodzi to zdolności dawcy do wyparcia ofiary. Utrzymanie niebieskiego koloru na płytce (D-/P) wykazuje niezdolność dawcy z nieaktywnym T6SS do zabicia niebieskiej ofiary.

Rycina 1. Zabijanie E. coli przez P. aeruginosa posiadające T6SS. P. aeruginosa wstrzykuje toksyny do docelowej komórki E. coli w sposób zależny od T6SS (wskazano białą strzałką). Dwie toksyny, Tse1 i Tse3 (pomarańczowe i czerwone kółka), są wstrzykiwane do peryplazmy E. coli i degradują peptydoglikan9. Toksyna Tse2 (żółte kółko) jest wstrzykiwana do cytoplazmy E. coli i wykazuje działanie bakteriostatyczne8,10. Połączone działanie toksyn zabija komórki docelowe (symbol błyskawicy i czaszki). Przeżywalność komórek docelowych można wykryć poprzez monitorowanie aktywności produkowanej β-galaktosydazy (patrz również Rycina 2). P. aeruginosa jest chroniona przed działaniem toksyn przez białka odpornościowe Tsi1, Tsi2 i Tsi3 (odpowiednio pomarańczowe, żółte i czerwone kwadraty)8,9,10.
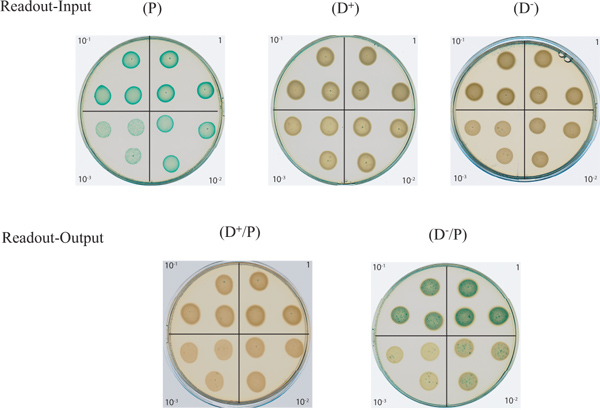
Rysunek 2. Test na szalcach agarowych w celu monitorowania zależnego od T6SS zabijania bakterii. Na górnej części tej ryciny przedstawiono płytki „Readout-Input” zawierające rozcieńczenia seryjne D-, D+oraz P komórki. Te P komórki wejściowe są niebieskie dzięki α-komplementacji lacZ genu, a w konsekwencji wyprodukowaną $\beta$-galaktozydazę, która rozszczepia X-gal. W dolnej części przedstawiono płytki „Readout-Output”, zawierające szeregowe rozcieńczenia mieszaniny bakteryjnej pomiędzy aktywną (D+/P), lub nieaktywny (D-/P), donor T6SS P. aeruginosa szczep z E. coli ofiara Kliknij tutaj, aby wyświetlić powiększony schemat.
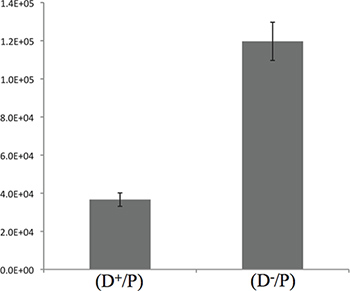
Rysunek 3. Ilościowe oznaczenie zabijania E. coli przez P. aeruginosa po 5 h inkubacji. Wykres przedstawia liczenie CFU E. coli opisane w kroku 3.4. Przedstawione tutaj wyniki wykazują trzykrotną różnicę między szczepami T6SS+ a T6SS-, co sugeruje, że większość procesu zabijania zachodzi w ciągu pierwszych 5 godzin kontaktu.
Dyskusja
Przedstawiona w artykule metoda pozwala na wizualną obserwację aktywności bakteriobójczej/bakteriostazy za pośrednictwem T6SS. Test przeprowadza się na powierzchni płytki agarowej. Wcześniej wykazano, że test zabijania zależny od T6SS przeprowadzony z mieszaną mieszaną płynną kulturą bakteryjną nie jest skuteczny, prawdopodobnie z powodu braku stałego kontaktu między dwiema bakteriami8. Uważa się, że T6SS działa z mechanizmem podobnym do tego, który jest używany przez bakteriofagi do wstrzykiwania DNA do komórek docelowych17. W hodowli płynnej rurkowata struktura T6SS może łatwiej pękać, może dojść do utraty kontaktu międzybakteryjnego, a toksyny nie są efektywnie dostarczane.
Jeśli chodzi o czas inkubacji, opisane przez nas 5 początkowych godzin kontaktu między szczepem dawcy a ofiarą jest wystarczające, aby zaobserwować zabijanie bakterii między P. aeruginosa i E. coli, jak pokazano na rycinie 3. Niemniej jednak wskazane jest dostosowanie czasu inkubacji poprzez wykonanie kinetycznego w celu optymalizacji warunków eksperymentalnych.
Ponieważ metoda ta jest techniką opartą na kolorze, wyniki wyjściowe mogą być zagrożone przez pigmentację szczepu dawcy. Na przykład w przypadku P. aeruginosa niektóre szczepy wytwarzają wysoki poziom kolorowych pigmentów, takich jak piocyjanina i pioweryna, które mogą zakłócać odczyt testu, co sprawia, że odróżnienie od ofiary jest stosunkowo trudne. Inne chromogenne substraty β-galaktozydazy, takie jak magenta-gal lub czerwony-gal, mogą być stosowane zamiast X-gal (Tabela 1).
Test konkurencji może wykorzystywać inne geny reporterowe do odczytu. Na przykład, podobny test przeprowadzono również przy użyciu zdobyczy znakowanych zielonym fluorescencyjnym białkiem12.
Nasz test, choć nie jest ilościowy, daje dobre wskazanie na aktywność T6SS, ponieważ opiera się na przeżyciu lub zabiciu ofiary reporterowej. Zaletą tej techniki jest to, że jest łatwa i wygodna do oceny aktywności bakteriobójczej/bakteriostazy T6SS z dowolnego gatunku bakterii. Do tej pory wykazano aktywność T6SS przeciwko bakteriom Gram-ujemnym i nie zgłoszono jeszcze żadnego wyraźnego przykładu wrażliwych na T6SS bakterii Gram-dodatnich12. Oczywiste jest również, że należy wziąć pod uwagę niezgodność w kulturze różnych gatunków bakterii do badania (np . temperatura wzrostu, natlenienie, określone podłoża).
Nasz test może być również wykorzystany do oceny, które ze składników T6SS są absolutnie niezbędne, ponieważ nawet ślady wydzielanej toksyny mogą wystarczyć do zabicia ofiary. Nawet słaba aktywność T6SS mogła być następnie wyraźnie wykryta przez nasz test w porównaniu ze standardową procedurą testowania wydzielania zależnego od T6SS przy użyciu supernatantu hodowli i analizy western blot. Jednak nadal wymagane jest prawidłowe zliczanie jednostek tworzących kolonie (CFU) w celu dokładnego określenia ilościowego tej aktywności T6SS.
Oświadczenia
Nie mamy nic do ujawnienia.
Podziękowania
Ta praca została sfinansowana przez WT091939MA grantu Wellcome Trust. Alain Filloux jest wspierany przez Royal Society.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| P. aeruginosa PAKΔ retS (D+) (aktywny T6SS) | Szczep laboratoryjny | Opisany w numerze referencyjnym 16 | |
| P. aeruginosa PAKΔ retSΔ H1-T6SS (D-)(nieaktywny T6SS) | To badanie | Klaster H1-T6SS (obejmujący geny od PA0070 do PA0095) został usunięty w wyniku wymiany alleli zgodnie z procedurą opisaną w pozycji 18. Fragment mutatora został wygenerowany za pomocą następującego zestawu starterów: Startery fragmentów Up: 5'-ATGGTCAACGACATGGAGCTGGAG-3' oraz 5'CGAGGCCGATCAGGCCTTCAGAACTGA-3'. Podkłady do fragmentów puchu : 5'-TCAGGCCTTCAGAACTGAAGCGGCGCA-3', 5'-GGTGGCGTTCAACAGTTCCATGTC-3' | |
| E.coli DH5α | Invitrogen | 18258-012 | F- φ 80lacZΔ M15 Δ (lacZYA-argF) U169 recA1 endA1 hsdR17 (rk-, mk+) phoA supE44 λ- thi-1 gyrA96 relA1 |
| pBluescript II SK(+) | Agilent | 212205 | Ten wektor wyraża peptyd α β-galaktozydazy używany do &alfa;-komplementacji. |
| X-gal | Invitrogen | 15520-018 | Stosować w 40 μ g / ml |
| agar Luria Bertani | Merck-chemicals | 1.10283.0500 | |
| TSB (bulion sojowy kazeinowy) | Oxoid | CM109 | |
| Wytrząsarka Vortex Skaner Genius 3 | IKA | 3340000 | |
| Spektrofotometr | Epson | Miernik gęstości komórek WPA Biowave CO8000 | |
| 30350001-1 (715241) | |||
| Red-gal | Research organics | 1364c | |
Tabela 1. Użyte obciążenie, plazmid, materiał i odczynnik. |
Bibliografia
- Filloux, A., et al. The bacterial type VI secretion machine: yet another player for protein transport across membranes. Microbiology. 154 (6), 1570(2008).
- Cascales, E., Cambillau, C. Structural biology of type VI secretion systems. Philos. Trans. R. Soc. Lond. B. Biol. Sci. 367 (1592), 1102(2012).
- Leiman, P. G., et al. Morphogenesis of the T4 tail and tail fibers. Virol. J. 7, 355(2010).
- Ballister, E. R., et al. In vitro self-assembly of tailorable nanotubes from a simple protein building block. Proc. Natl. Acad. Sci. U.S.A. 105 (10), 3733(2008).
- Leiman, P. G., et al. Type VI secretion apparatus and phage tail-associated protein complexes share a common evolutionary origin. Proc. Natl. Acad. Sci. U.S.A. 106 (11), 4154(2009).
- Pukatzki, S., et al. Type VI secretion system translocates a phage tail spike-like protein into target cells where it cross-links actin. Proc. Natl. Acad. Sci. U.S.A. 104 (39), 15508(2007).
- Ma, A. T., et al. Translocation of a Vibrio cholerae type VI secretion effector requires bacterial endocytosis by host cells. Cell Host Microbe. 5 (3), 234(2009).
- Hood, R. D., et al. A type VI secretion system of Pseudomonas aeruginosa targets a toxin to bacteria. Cell Host Microbe. 7 (1), 25(2010).
- Russell, A. B., et al. Type VI secretion delivers bacteriolytic effectors to target cells. Nature. 475 (7356), 343(2011).
- Li, M., et al. Structural basis for type VI secretion effector recognition by a cognate immunity protein. PLoS Pathog. 8 (4), e1002613(2012).
- Zheng, J., et al. Genetic analysis of anti-amoebae and anti-bacterial activities of the type VI secretion system in Vibrio cholerae. PLoS One. 6 (8), (2011).
- Schwarz, S., et al. Burkholderia type VI secretion systems have distinct roles in eukaryotic and bacterial cell interactions. PLoS Pathog. 6 (8), e23876(2010).
- Murdoch, S. L., et al. The opportunistic pathogen Serratia marcescens utilizes type VI secretion to target bacterial competitors. J. Bacteriol. 193 (21), 6057(2011).
- Boyer, F., et al. Dissecting the bacterial type VI secretion system by a genome wide in silico analysis: what can be learned from available microbial genomic resources? BMC Genomics. 10, 104(2009).
- Maniatis, T., et al. Molecular cloning: A Laboratory Manual. , Cold Spring Harbor Laboratory. Cold Spring, NY. (1982).
- Mougous, J. D., et al. A virulence locus of Pseudomonas aeruginosa encodes a protein secretion apparatus. Science. 312 (5779), 1526(2006).
- Records, A. R., et al. The type VI secretion system: a multipurpose delivery system with a phage-like machinery. Mol. Plant Microbe Interact. 24 (7), 751(2011).
- Hachani, A., et al. Type VI secretion system in Pseudomonas aeruginosa: secretion and multimerization of VgrG proteins. J. Biol. Chem. 286 (14), 12317(2011).
Przedruki i uprawnienia
