Opisujemy zbieranie niezapłodnionych jaj Xenopus tropicalis i produkcję ekstraktu z jaj zatrzymanego przez mejozę II. Ten ekstrakt z jaj może być stosowany do oczyszczania mikrotubul i RNA związanych z mikrotubulami.
Artykuł metodologiczny
Produkcja ekstraktów jajowych Xenopus tropicalis w celu identyfikacji RNA związanych z mikrotubulami
W tym artykule
Podsumowanie
Streszczenie
Wiele organizmów lokalizuje mRNA w określonych subkomórkowych miejscach, aby przestrzennie i czasowo kontrolować ekspresję genów. Ostatnie badania wykazały, że większość transkryptomu jest zlokalizowana w nielosowej pozycji w komórkach i zarodkach. Jednym z podejść do identyfikacji zlokalizowanych mRNA jest biochemiczne oczyszczenie interesującej nas struktury komórkowej i zidentyfikowanie wszystkich powiązanych transkryptów. Korzystając z niedawno opracowanych technologii sekwencjonowania o wysokiej przepustowości, można teraz łatwo zidentyfikować wszystkie RNA związane ze strukturą subkomórkową. Aby ułatwić identyfikację transkryptu, konieczna jest praca z organizmem z w pełni zsekwencjonowanym genomem. Jednym z atrakcyjnych systemów biochemicznego oczyszczania struktur subkomórkowych są ekstrakty jajowe wytwarzane z żaby Xenopus laevis. Jednak X. laevis nie ma obecnie w pełni zsekwencjonowanego genomu, co utrudnia identyfikację transkryptów. W tym artykule opisujemy metodę produkcji ekstraktów z jaj spokrewnionej żaby, X. tropicalis, która ma w pełni zsekwencjonowany genom. Dostarczamy szczegółowe informacje na temat polimeryzacji mikrotubul, oczyszczania i izolacji transkryptów. Chociaż w tym artykule opisano specyficzną metodę identyfikacji transkryptów związanych z mikrotubulami, uważamy, że będzie ona łatwo stosowana do innych struktur subkomórkowych i zapewni potężną metodę identyfikacji zlokalizowanych RNA.
Wprowadzenie
Przestrzenna i czasowa kontrola ekspresji genów jest ważna dla wszystkich komórek, a szczególnie ważna dla kontroli wczesnego embrionalnego tupania1. Przestrzenna kontrola ekspresji genów odbywa się poprzez aktywną lokalizację mRNA w określonych miejscach docelowych w komórkach lub zarodkach. W wielu bardzo dużych typach komórek (np. oocytach, zarodkach i neuronach) lokalizacja mRNA jest stosowana w celu ograniczenia ekspresji białka do miejsca działania kodowanego białka. Ponieważ zlokalizowane mRNA może katalizować wiele rund produkcji białka, bardziej efektywna jest lokalizacja mRNA niż lokalizacja pojedynczych cząsteczek białka. Zlokalizowane mRNA są zazwyczaj tłumione translacyjnie, dopóki nie dotrą do miejsca przeznaczenia, co służy dalszemu ograniczeniu lokalizacji kodowanego białka2. Oprócz wielu dobrze udokumentowanych przypadków lokalizacji RNA w celu kontrolowania wzorców embrionalnych, kilka badań udokumentowało mRNA, które są zlokalizowane w miejscu działania kodowanego białka. Wybitnymi przykładami są lokalizacja mRNA β-aktyny3 i Arp2/34 do krawędzi natarcia ruchliwych fibroblastów oraz lokalizacja mRNA dla wielu regulatorów mitotycznych do wrzecion mejotycznych i mitotycznych5-7.
Wiele klasycznych przykładów zlokalizowanych mRNA zostało zidentyfikowanych za pomocą genetycznych badań przesiewowych pod kątem mutacji efektu matczynego, a następnie zostało określonych do kodowania zlokalizowanych RNA. Jednak ostatnie badania całego genomu zaczęły dostarczać szerszego wglądu w zakres zlokalizowanych RNA. Niedawne badanie przesiewowe hybrydyzacji in situ w zarodkach Drosophila wykazało, że ~70% wszystkich mRNA ma określoną lokalizację, w tym wiele nowych miejsc docelowych8. Oczyszczanie pseudopodiów z mysich fibroblastów zidentyfikowało zróżnicowaną grupę zlokalizowanych mRNA9. Prace naszej grupy wykorzystujące biochemiczne oczyszczanie mikrotubul z mejotycznych ekstraktów jajowych Xenopus zidentyfikowały setki mRNA, które oczyszczają się za pomocą wrzeciona5,7. Nasza praca wykazała, że większość mRNA zlokalizowanych w mikrotubulach koduje białka, które działają w kontroli mitozy, co potwierdza ideę, że mRNA są zlokalizowane w miejscu działania kodowanego białka. Co więcej, zdolność do wykrywania wzbogacenia mRNA we frakcji subkomórkowej poprzez oczyszczanie biochemiczne podkreśla moc tego podejścia w identyfikacji zlokalizowanych mRNA.
Większość zlokalizowanych RNA korzysta z aktywnego transportu w cytoszkielecie, aktyny lub mikrotubul, aby osiągnąć transport do miejsca docelowego10. Aby lepiej zrozumieć zakres i typy RNA, które są zlokalizowane w określonych miejscach docelowych przy użyciu podejścia biochemicznego, konieczne jest posiadanie systemu in vitro, który może podsumować procesy cytoszkieletowe. Jednym z głównych systemów do badania biologii cytoszkieletu są ekstrakty z jaj wytwarzanych z niezapłodnionych jaj żaby Xenopus laevis. Ekstrakty z jaj X. laevis są używane od dziesięcioleci do badania szerokiego zakresu procesów cytoszkieletu i wniosły wiele do naszego zrozumienia mechanizmów i cząsteczek kontrolujących składanie i dynamikę cytoszkieletu11. Co więcej, X. Ekstrakty z jaj Lavis są podatne na oczyszczanie na dużą skalę z mikrotubul i związanych z nimi białek12,13 i istnieją dobrze zaprojektowane metody produkcji różnych rodzajów ekstraktów jajowych14-16. Jednak w przypadku badań genomicznych istnieje kilka wad stosowania X. laevis jako systemu modelowego.
Przez dziesięciolecia żaby Xenopus laevis były potężnym systemem do badania rozwoju i biologii komórki, dzięki dużemu rozmiarowi oocytów i solidnemu rozwojowi zewnętrznemu17. Co więcej, rozwój systemów ekstrakcji z jaj, które mogą podsumować wiele procesów komórkowych w probówce, sprawił, że żaba ta stała się potężnym modelem eksperymentalnym. Jednak Xenopus laevis był utrudniony przez brak kompletnej sekwencji genomu, która została spowolniona przez allotetraploidalny charakter genomu. Natomiast blisko spokrewniony gatunek, Xenopus tropicalis, ma diploidalny genom, który został zsekwencjonowany w 2010roku18. Chociaż X. tropicalis nie jest tak podatny na próby przeprowadzenia eksperymentu jak X. laevis17, dostępność zsekwencjonowanego genomu sprawia, że jest to atrakcyjny system modelowy do przeprowadzania analiz całego genomu.
W tym raporcie opisujemy metodę wytwarzania ekstraktów z izoenzymem II-, zatrzymanych przez czynnik cytostatyczny (CSF) z X. tropicalis19. Następnie opisujemy prostą metodę oczyszczania mikrotubul i związanych z nimi RNA z tego ekstraktu. RNA mogą być następnie przekształcane w biblioteki nadające się do sekwencjonowania przy użyciu niedawno opracowanych technologii sekwencjonowania o wysokiej przepustowości. Po zsekwencjonowaniu bibliotek można je dopasować do genomu żaby, aby zidentyfikować określone mRNA, które są wzbogacone w próbce mikrotubul w porównaniu z ekstraktem całkowitym. Zapewnia to potężną metodę wykrywania lokalizacji mRNA ukierunkowanej na mikrotubule w skali całego genomu. Oprócz możliwości wykrywania zlokalizowanych mRNA, zastosowanie sekwencjonowania o wysokiej przepustowości i zsekwencjonowanego genomu daje możliwość odkrycia nowych transkryptów, które nie są obecnie obecne w publicznych adnotacjach w bazach danych.
Protokół
1. Wytwarzanie jaj X. tropicalis
Wszystkie żaby Xenopus tropicalis są zamawiane w NASCO. Nasze żaby są trzymane w systemie recyrkulacyjnym Aquatic Habitats o temperaturze 27 °C. Istnieje wiele opcji systemów wodnych do pielęgnacji X. tropicalis. Kilka dobrych ogólnych informacji na temat tego gatunku żaby można znaleźć na stronach internetowych laboratoriów Harland and Grainger (http://tropicalis.berkeley.edu/home/, http://www.faculty.virginia.edu/xtropicalis/). Nasze żaby są trzymane w zbiorniku wodnym składającym się z (0,4 g soli jeziornych Ciclid, 0,6 g soli morskiej, 0,625 g NaHCO3 na litr wody, pH 7,0)20. Ta receptura daje przewodność ~1800 μS, co jest wysokim zasoleniem dla X. tropicalis. Odkryliśmy jednak, że nasze żaby rozwijają się w tym środowisku, a jakość oocytów ulega poprawie. Alternatywne przepisy na wodę w zbiorniku można znaleźć powyżej w zasobach wymienionych dla ogólnej pielęgnacji X. tropicalis.
- Żabom wstrzykuje się ludzką gonadotropinę kosmówkową (hCG) przez trzy kolejne dni, aby stymulować składanie jaj: Najpierw przygotuj dwie stężenia roztworu hCG. Zawiesić ponownie 10 000 U liofilizowanego proszku hCG w 10 ml sterylnego, dejonizowanegoH2Odo końcowego stężenia 1 000 U/ml. Następnie rozcieńczyć 1 ml roztworu hCG o stężeniu 1 000 U/ml w 9 mlH2O, aby uzyskać końcowe stężenie 100 U/ml. Oba roztwory należy przechowywać w temperaturze 4 °C.
- W pierwszym dniu należy przygotować 4-6 żab do złożenia jaj, wstrzykując im hCG między godziną 14:00 a 15:00. Każdą żabę należy wstrzyknąć do grzbietowego worka limfatycznego w pobliżu kloaki 0,2 ml roztworu hCG o stężeniu 100 j./m. Poszczenie żab podczas kolejnych dwóch wstrzyknięć zminimalizuje ilość odpadów żab obecnych podczas składania jaj, ale jest opcjonalne.
- W dniu 2 należy wstrzyknąć tym samym żabom 0,2 ml roztworu hCG o stężeniu 100 j./ml w godzinach 14:00-15:00.
- W dniu 3 wstrzyknij tym samym żabom 0,2 ml roztworu hCG o stężeniu 1000 U/ml w godzinach 7:00-10:00. Przygotuj żaby do składania jaj: napełnij 6-litrowe plastikowe wiadro świeżą wodą ze zbiornika, dodaj żaby i umieść w ciemności w temperaturze 25 °C. Po tym wstrzyknięciu składanie jaj rozpocznie się po 4 godzinach i zakończy się po 7 godzinach. Żaby powinny składać jaja w środowisku, w którym utrzymuje się co najmniej 25 °C.
- Przygotuj roztwory ekstraktu i przygotuj sprzęt bezpośrednio przed zebraniem jaj.
20X MMR: 100 mM HEPES, pH 7,8; 2 mM EDTA pH 7,8; 2 M NaCl; 40 mM KCl; 20 mM MgCl2; 40 mM CaCl2. Autoklaw i przechowywać w temperaturze pokojowej. Przygotuj 1 L 1X MMR tuż przed przygotowaniem ekstraktu.
10X XB: 100 mM HEPES, pH 7,7; 10 mM MgCl2; 1 mM CaCl2; 1 M KCl; 500 mM sacharozy. Autoklaw i przechowywać w temperaturze 4 °C. Przygotuj 1 L 1X XB tuż przed przygotowaniem ekstraktu. Roztwór galaretki: Przygotować 250 ml 3% roztworu cysteiny w dejonizowanymH2Oi pH do 7,8-8,0 z 10 N NaOH. Przygotować tuż przed przygotowaniem ekstraktu.
CSF-XB: weź 200 ml 1X XB i dodaj 2 ml 0,5 M EGTA pH 7,7 i 200 μl 1 M MgCl2. Przygotować tuż przed przygotowaniem ekstraktu.
CSF-XB+: weź 50 ml CSF-XB i dodaj 50 μl LPC (po 10 mg/ml każdego zapasu Leupeptyny, Pepstatyny i Chymostatyny w DMSO). Dodać 50 μl cytochalazyny D (10 mg/ml w DMSO). Przygotować tuż przed przygotowaniem ekstraktu.
Przygotuj 0,2% roztwór żelatyny w dejonizowanymH2O, mikrofalówkę do rozpuszczenia i filtracji sterylizacji. Przechowywać w temperaturze pokojowej.
Zarezerwuj 2 probówki do ultrawirówek Beckman 2 x 1/2 cala.
Przygotuj dwie 15 ml szklane probówki wirówkowe z okrągłym dnem po 0,5 mlH2Ow każdej, aby amortyzować probówkę ultrawirówkową.
Zrób pipety Pasteura z polerowanego szkła. Oderwij koniec szklanych pipet o średnicy 5 3/4 cala, aby odsłonić szeroki otwór, i wystaw na działanie płomienia, aby wygładzić nową, odsłoniętą końcówkę pipety.
- Przygotuj szklaną zlewkę o pojemności 500 ml do przechowywania jaj, mieszając 0,2% roztwór żelatyny w celu pokrycia ścianek zlewki. Po użyciu wylej roztwór żelatyny ze zlewki.
- Jaja należy pobrać z plastikowego wiadra używanego do nieśności 6-7 godzin po trzecim wstrzyknięciu w 3. dniu. W razie potrzeby delikatnie ściśnij każdą żabę raz, aby uzyskać pozostałe jajka. Umyj jajka świeżą wodą ze zbiornika i przenieś do szklanej zlewki o pojemności 500 ml pokrytej 0,2% roztworem żelatyny.
2. Przygotowanie ekstraktu z jaj X. tropicalis
Wszystkie etapy przygotowania ekstraktu mogą być wykonywane w temperaturze pokojowej, około 25 °C. Podczas mycia ważne jest, aby jajka były zanurzone pod płynem, aby pozostały mokre. Wystawienie na działanie powietrza może spowodować, że jaja unikną zatrzymania cyklu komórkowego lub ulegną lizie.
- Zdekantuj jak najwięcej wody w zbiorniku, zachowując wystarczającą ilość płynu, aby jajka były mokre. Przechylić zlewkę zawierającą jaja na bok i powoli dodawać ~300 ml 1X MMR do ścianki zlewki, tak aby zminimalizować fizyczne poruszenie jaj. Pozwól jajom osiąść, a następnie zdekantuj supernatant zawierający zanieczyszczenia. Na tym etapie jaja X. tropicalis są żylaste, więc usunięcie aktywowanych jaj odbywa się po oddaleniu. Powtórz w sumie trzy prania 1X MMR.
- Jaja odjąć. Zdekantować jak najwięcej MMR i dodać połowę roztworu dejelly. Wirować w sposób ciągły przez około 5 minut. Rozpuszczające się galaretki będą widoczne w supernatancie po kilku minutach. Zdekantować i dodać pozostały roztwór dejelly. Kontynuuj wirowanie w sposób ciągły, aż jajka bardzo ciasno się upakują i wszystkie zorientują się biegunem roślinnym (biegunem z białym pigmentem) w kierunku dna naczynia. Szybko zdekantuj jak najwięcej roztworu dejelly. Po dejellicji jaja są bardzo wrażliwe na manipulacje mechaniczne.
- Ostrożnie dodaj XB do jajek. W pierwszym praniu XB usuń jaja, które uniknęły zatrzymania płynu mózgowo-rdzeniowego, usuwając jaja zlizowane, opuchnięte, białe i pseudorozszczepialne. Aktywowane jaja X. tropicalis mają tendencję do osiadania w górnej środkowej części, więc użyj plastikowej pipety transferowej, aby je wyciągnąć. Usuń również kawałki skóry i odchody żab. Umyj jajka w sumie trzy razy ~ 300 ml roztworu 1X XB, delikatnie obracając jajka między myciami i pozwalając im osiąść na dnie zlewki. Tak jak poprzednio, zdekantuj jak najwięcej każdego roztworu do mycia, jednocześnie utrzymując jajka mokre.
- Umyj jajka dwukrotnie za pomocą CSF-XB i dekantacji.
- Dodaj CSF-XB+ do jajek. Za pomocą polerowanej ogniowo pipety Pasteura nasączonej żelatyną przenieś jaja do probówek ultrawirówkowych z CSF-XB+, uważając, aby nie wystawiać jaj na działanie powietrza. Umieścić w szklanych probówkach wirówkowych o pojemności 15 ml z poduszką wodną.
- Wirować jajka w wirówce klinicznej o sile 200 x g przez 1 minutę, zwiększyć prędkość do 800 x g i wirować przez 30 sekund.
- Użyj aspiratora, aby usunąć jak najwięcej buforu z jaj. Powinny być prawie suche na wierzchu. Szybko przenieś jaja do wirówki Sorvall RC-6 wyposażonej w rotor HB-6 (lub jego odpowiednik) i wiruj 17 000 x g przez 15 minut w temperaturze 20 °C.
- Usunąć żółtą warstwę cytoplazmatyczną między warstwą pigmentu a warstwą lipidów za pomocą igły o rozmiarze 18 dołączonej do strzykawki o pojemności 1 ml. Przebić bok probówki i powoli pociągnąć cylinder strzykawki, aby uzyskać warstwę ekstraktu cytoplazmatycznego. W miarę możliwości unikaj granulek pigmentu.
- Przenieś cytoplazmę do nowej probówki do ultrawirowania. To normalne, że na tym etapie ekstrakt wydaje się lekko mętny. Umieścić w szklanej probówce wirówkowej o pojemności 15 ml z poduszką wodną. Ponownie wirować 17 000 x g przez 10 minut w temperaturze 20 °C. Powtórzyć ekstrakcję za pomocą igły o rozmiarze 18.
- Przenieś cytoplazmę do probówki do mikrofugi o pojemności 1,5 ml. Oszacuj objętość ekstraktu i rozcieńcz cytochalazynę D i LPC w stosunku 1:1,000 do ekstraktu. Dobrze wymieszać końcówką do pipety o pojemności 1 ml, wielokrotnie pipetując w górę i w dół bez wprowadzania pęcherzyków powietrza. Typowy plon ze zdrowej rodziny żab wynosi około 300-500 μl ekstraktu/żabę. Aby zachować maksymalną aktywność, konieczne jest przechowywanie ekstraktu i przeprowadzanie eksperymentów w temperaturze pokojowej (20-25 °C).
3. Oczyszczanie Mikrotubule stabilizowane taksolem z ekstraktu z X. tropicalis
- Dodać Taxol do 100-200 μl podwielokrotności ekstraktu o końcowym stężeniu 10 μM i inkubować w temperaturze pokojowej przez 30 minut. W przypadku reakcji kontrolnych należy potraktować równoważną objętość ekstraktu lekiem nocodazolem (10 μM) destabilizującym mikrotubule. Zachować 100 μl niepoddanego działaniu substancji ekstraktu do analizy.
- Rozcieńczyć ekstrakt traktowany lekiem w 10 objętościach BRB-80 (80 mM RURY pH 6,8, 1 mM MgCl2, 1 mM EGTA) + 30% glicerolu. Zmontuj 14 ml okrągłodenne probówki polipropylenowe zawierające 10 ml BRB-80 + 60% poduszki glicerynowej . Używając końcówki do pipety o szerokim otworze, delikatnie nałóż ekstrakt potraktowany lekiem na wierzch poduszki BRB-80 + 60% glicerolu. Wirować przez 10 minut przy 17 000 x g w temperaturze 20 °C w wirówce RC-6 Sorvall wyposażonej w rotor HB-6 (lub jego odpowiednik) i adaptery probówek.
- Odessać supernatant zawierający nieosadzony materiał ekstraktowy i dwukrotnie przemyć granicę faz dejonizowanymH2O. Powoli odessać pozostałą objętość poduszki, uważając, aby nie naruszyć żelopodobnego osadu zawierającego mikrotubule, białka związane z mikrotubulami i RNA związane z mikrotubulami w próbce poddanej działaniu taksolu. Próbka poddana działaniu nokodazolu nie zawiera widocznego materiału. Zawiesić osad w 1 ml TRIzolu i postępować zgodnie z instrukcjami producenta dotyczącymi izolowania RNA. Nieprzetworzony ekstrakt (do 100 μl) można zawiesić bezpośrednio w 1 ml TRIzolu.
- Obecnie dostępne na rynku są zestawy do przygotowania bibliotek transkryptomu odpowiednich do sekwencjonowania RNA. Można je nabyć poprzez http://www.illumina.com/ i http://www.454.com/.
Wyniki
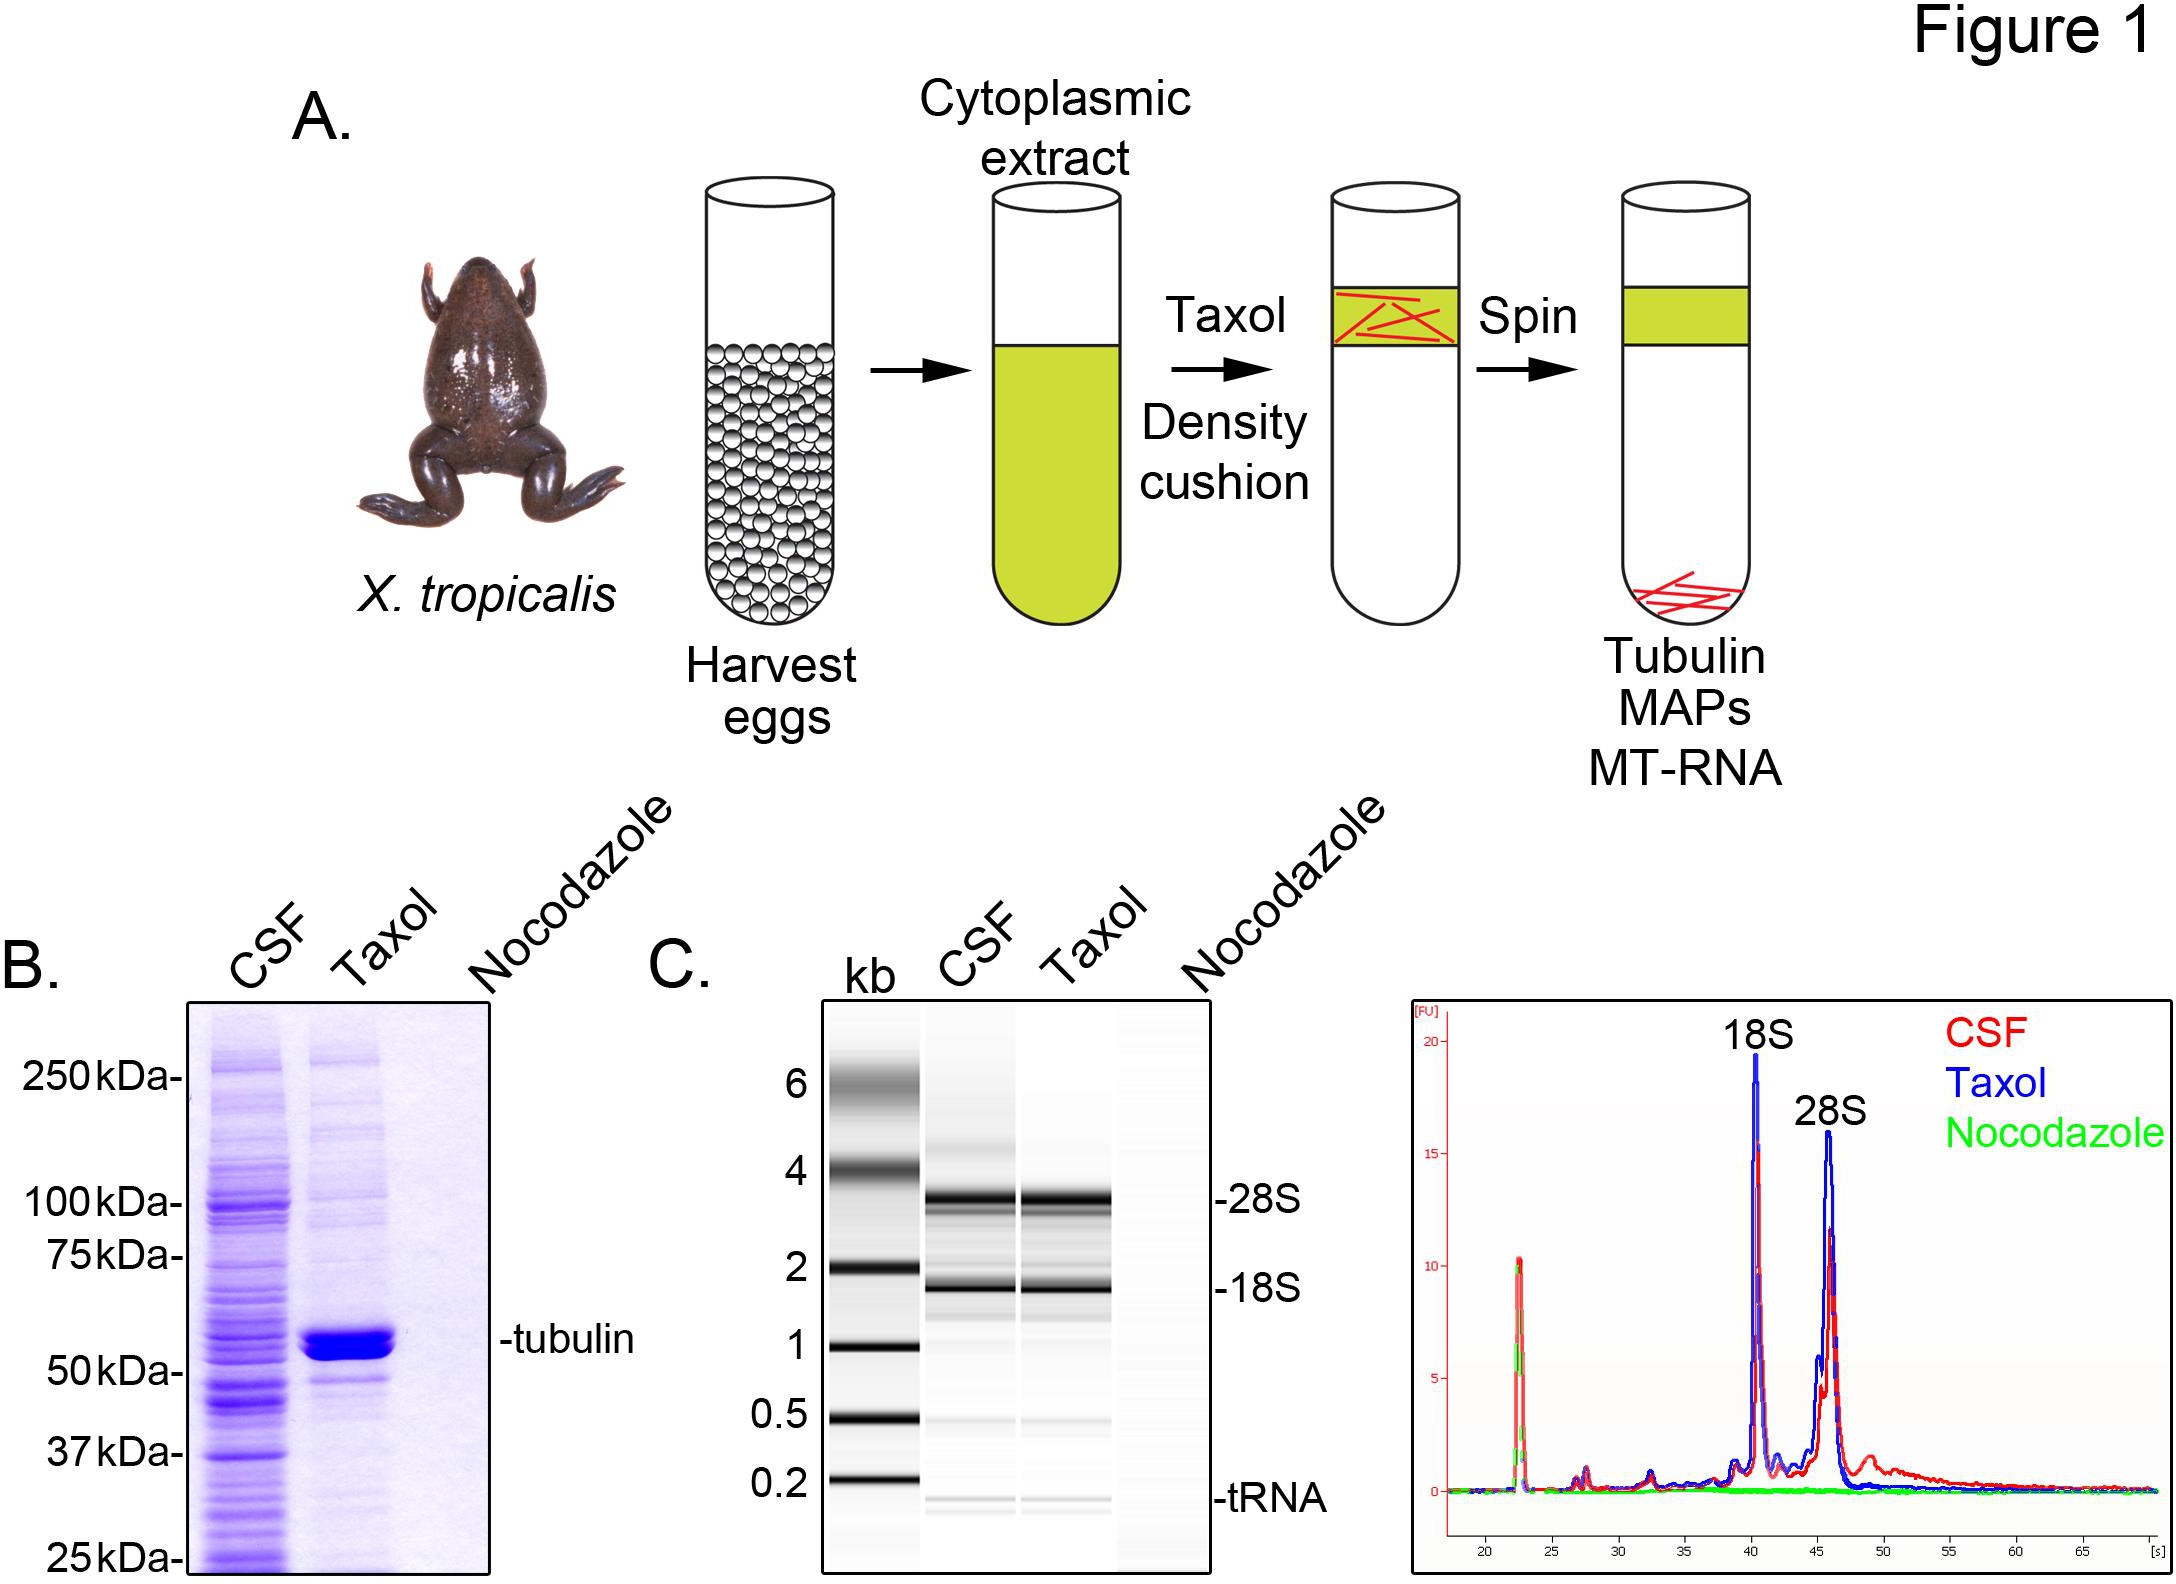
Aby zidentyfikować transkrypty X. tropicalis związane z mikrotubulami, przygotowujemy ekstrakt cytozolowy z niezapłodnionych komórek jajowych zatrzymanych w metafazie mejozy II (CSF). Potraktowanie tego ekstraktu taksolem umożliwia tworzenie stabilnych mikrotubul, które można oczyścić poprzez sedymentację na poduszce glicerolowej (Ryc. 1A). Analiza żelu z Coomassie potwierdza, że α/β-tubulina sedymentuje w sposób zależny od taksolu i stanowi główny gatunek białka odzyskiwany w tych preparatach (Ryc. 1B). W osadzie po taksolu obecne są również niższe poziomy innych białek, których nie stwierdzono w preparatach traktowanych nocodazolem – lekiem depolimeryzującym mikrotubule, co wskazuje, że białka w frakcji taksolowej specyficznie wiążą się z mikrotubulami (MAPs).
Do analizy ogólnego składu RNA we wszystkich frakcjach ekstraktów X. tropicalis wykorzystano analizator Agilent Bioanalyzer (Ryc. 1C). Zarówno rRNA, jak i tRNA występują w ekstrakcie CSF oraz w osadzie po traktowaniu taksolem zawierającym mikrotubule, co jest zgodne z wcześniejszymi ustaleniami, że translacja zachodzi na mikrotubulach i wrzecionach w ekstrakcie z jaj X. laevis5,21. Ślad linii z projekcji żelu wykazuje, że sygnał mRNA jest znacznie słabszy w osadzie po traktowaniu taksolem zawierającym mikrotubule, szczególnie w obszarze migrującym powyżej 28S rRNA, co wskazuje, że podgrupa mRNA współosadza się z mikrotubulami u X. tropicalis. RNA wyizolowane w ten sposób nadaje się do eksperymentów RNA-seq z użyciem dostępnych komercyjnie odczynników.

Rysunek 1. Oczyszczanie MT-RNA do RNA-seq. (A) Schemat oczyszczania w celu izolacji MT-RNA. Jaja są pobierane od samic żab X. tropicalis. Po przygotowaniu ekstraktu cytoplazmatycznego dodaje się taksol, aby wywołać polimeryzację mikrotubul. Mikrotubule i MT-RNA są oczyszczane poprzez sedymentację przez poduszkę glicerolową. (B) Analiza białek izolowanych zgodnie ze schematem opisanym w punkcie (A) za pomocą żelu barwionego Coomassie. Porównanie całkowitego ekstraktu CSF z białkami sedymentującymi w obecności taksolu lub nocodazolu. (C) Analiza żelowa RNA izolowanego zgodnie ze schematem opisanym w punkcie (A) za pomocą bioanalizatora. Porównanie RNA izolowanego z ekstraktu CSF z RNA sedymentującym w obecności taksolu lub nocodazolu. Przedstawiono zarówno projekcję żelu, jak i wykresy liniowe. Przedruk za zgodą Sharp, et al., (2011). Kliknij tutaj, aby wyświetlić powiększony obraz.
Dyskusja
W tym raporcie opisaliśmy prostą metodę wytwarzania ekstraktów jajowych z X. tropicalis19zatrzymanych w płynie mózgowo-rdzeniowym i wykorzystania tego ekstraktu do badania RNA związanych z mikrotubulami7. Podstawowa procedura wytwarzania ekstraktów jajowych z X. tropicalis zatrzymanych w płynie mózgowo-rdzeniowym jest taka sama, jak w przypadku X. laevis , z kilkoma kluczowymi różnicami. Jednym z najtrudniejszych aspektów pracy z żabami X. tropicalis jest uzyskanie wystarczającej ilości wysokiej jakości jaj, aby uzyskać ekstrakt o zarodkowaniu mikrotubul lub aktywności składania wrzecion porównywalnej z ekstraktami z jaj X. laevis . Aby osiągnąć optymalne warunki składania jaj przy jednoczesnym zapobieganiu poślizgowi spowodowanemu zatrzymaniem cyklu komórkowego mejozy II, odstęp między wstrzyknięciami hormonu dla X. tropicalis jest krótszy niż w przypadku X. laevis, a czas od trzeciego wstrzyknięcia hCG do początku składania jaj jest również znacznie krótszy. W przypadku X. laevis czas od wstrzyknięcia hCG do rozpoczęcia składania jaj jest taki, że składanie jaj w nocy do bufora jest wygodne i wydajne. Jednak ze względu na krótszy czas między wstrzyknięciem hCG a złożeniem jaj u X. tropicalis , często konieczne jest ręczne odciąganie jaj żab. Kolejną istotną różnicą między wytwarzaniem ekstraktu z jaj z dwóch różnych żab jest etap dejelli. U X. laevis jaja są tak duże, że łatwo jest określić, kiedy galaretowa powłoka się rozpuściła, obserwując, jak blisko jaja są rozmieszczone w zlewce. Gdy rozpoczyna się reakcja dejelacji, jaja zaczynają gęsto się pakować. Jednak jaja X. tropicalis są znacznie mniejsze i może być dość trudno określić, kiedy galaretowa powłoka rozpuściła się na podstawie samej gęstości upakowania jaj. Odkryliśmy, że najbardziej wiarygodną metodą określenia, kiedy galaretowa powłoka się rozpuściła, jest monitorowanie orientacji biegunów zwierzęcych (czarnych) i roślinnych (białych). Kiedy wszystkie bieguny roślinne zorientują się w kierunku dna zlewki, galaretowa powłoka została usunięta na tyle, aby można było kontynuować ekstrakcję. Wreszcie, podczas gdy ekstrakt z jaj X. laevis może być przechowywany w niskich temperaturach (4-12 °C), zaobserwowaliśmy, że bardzo ważne jest utrzymanie ekstraktu z jaj X. tropicalis w temperaturze pokojowej (20-25 °C) podczas przygotowywania i manipulacji eksperymentalnych w celu zachowania aktywności biochemicznej. Ze względu na różnice w łatwości użycia preferujemy stosowanie żab X. laevis do produkcji ekstraktu z jaj. Jednak w przypadku eksperymentów, które wymagają lub są ułatwiane przez organizm ze zsekwencjonowanym genomem, X. tropicalis jest doskonałym systemem alternatywnym.
Metoda, którą opisaliśmy w tym raporcie, wykorzystuje taksol jako środek stabilizujący mikrotubule do indukowania polimeryzacji mikrotubul. Wybraliśmy tę metodę, ponieważ taksol jest wytrzymałym środkiem stabilizującym mikrotubule, który ułatwia izolację oczyszczonych mikrotubul na dużą skalę. Metoda, którą opisaliśmy, mogłaby prawdopodobnie zostać ulepszona, porównując białka i RNA związane z mikrotubulami przy użyciu alternatywnych metod polimeryzacji mikrotubul. Alternatywą może być polimeryzacja przy użyciu polimeryzacji indukowanej przez GTP (technika klasyczna),22 lub użycie Ran-GTP jako polimeryzatora mikrotubul w celu naśladowania mikrotubul indukowanych przez zespół wrzeciona napędzany chromatyną23. Wreszcie, zastosowanie oczyszczonych jąder plemników do indukcji polimeryzacji mikrotubul byłoby najbliższe naśladowaniu typów mikrotubul, które są zarodkowane podczas mitozy (za pośrednictwem centrosomów, chromatyny i kinetochoru). Wadą tych alternatywnych źródeł zarodkowania mikrotubul jest to, że czynniki zarodkujące nie są tak łatwo dostępne jak taksol i nie zarodkują ani nie stabilizują mikrotubul tak wydajnie jak taksol. Dlatego każda z tych metod byłaby trudniejsza do zastosowania do oczyszczania na dużą skalę. Zaletą porównania wielu różnych typów nukleatorów mikrotubul jest to, że możliwe jest zidentyfikowanie białek i/lub RNA, które są specyficzne dla każdego szlaku zarodkowania mikrotubul.
Metoda, którą tutaj opisaliśmy, wykorzystuje ekstrakty cytoplazmatyczne z. Podejście to można jednak rozszerzyć na wykorzystanie systemu ekstraktów z innych organizmów. Opisano ekstrakty mitotyczne ze zsynchronizowanych komórek hodowli tkanek ludzkich24 , które wiernie odwzorowują wiele aspektów składania mikrotubul. Z powodzeniem wykorzystaliśmy te ekstrakty do identyfikacji RNA związanych z mikrotubulami z komórek HeLa5. Podobne schematy oczyszczania mikrotubul opisano dla wielu różnych organizmów25,26, chociaż RNA związane z mikrotubulami nie zostały zbadane. Opisane tutaj podejście można zastosować do każdego organizmu, który może wytwarzać skoncentrowany ekstrakt cytoplazmatyczny zdolny do zarodkowania mikrotubul.
Wreszcie, chociaż podejście, które tutaj opisujemy, omawia oczyszczanie mikrotubul i związanych z nimi białek i RNA, podejście to można uogólnić na inne struktury subkomórkowe. Podczas gdy większość zlokalizowanych mRNA nie została zidentyfikowana przy użyciu metod biochemicznych, ostatnie postępy w technologiach sekwencjonowania DNA i RNA sprawiają, że podejście to jest atrakcyjną metodą identyfikacji zlokalizowanych RNA. W tym podejściu każda istotna struktura subkomórkowa lub subembrionowa może zostać wyizolowana lub oczyszczona. Następnie powiązane białka i RNA można zidentyfikować w skali całego genomu. RNA można następnie porównać z zawartością RNA w całej komórce lub zarodku w celu zidentyfikowania wzbogaconych zlokalizowanych RNA. Podejście to może być stosowane z całymi jajami (separacja zwierząt i roślin, podobnie jak podejście, które zidentyfikowało pierwsze zlokalizowane RNA w Xenopus27), RNA związane z aktyną, RNA związane z ER, RNA związane z mitochondriami lub do dowolnej struktury subkomórkowej, którą można oczyścić z nienaruszonymi powiązanymi RNA. Na podstawie naszych prac nad RNA związanym z mikrotubulami przewidujemy, że będzie to doskonała metoda odkrywania nowych białek, które funkcjonują w danym miejscu. Co więcej, identyfikacja lokalizacji i zasięgu wszystkich zlokalizowanych RNA dostarczy informacji na temat tego, w jaki sposób komórki i zarodki wykorzystują lokalizację mRNA do kontrolowania ekspresji genów.
Oświadczenia
Nie stwierdzono konfliktu interesów.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| ODCZYNNIKI | |||
| Xenopus tropicalis | NASCO | LM00823MX | |
| ludzka gonadotropina kosmówkowa | Sigma-Aldrich | CG10 | |
| HEPES | Sigma-Aldrich | H4034 | |
| EDTA | Sigma-Aldrich | E5134 | |
| NaCl | Sigma-Aldrich | S3014 | |
| KCl | Sigma-Aldrich | P9541 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| CaCl2 | Sigma-Aldrich | C8106 | |
| sacharoza | Sigma-Aldrich | S0389 | |
| NaOH | Sigma-Aldrich | S5881 | |
| EGTA | Sigma-Aldrich | E3889 | |
| Leupeptin | Sigma-Aldrich | L9783 | |
| Pepstatyna | Sigma-Aldrich | P5318 | |
| Chymostatyna | Sigma-Aldrich | C7268 | |
| Cytochalazyna D | Sigma-Aldrich | C8273 | |
| Żelatyna, skóra wieprzowa | Sigma-Aldrich | G1890 | |
| RURY | Sigma-Aldrich | P6757 | |
| Taxol | Sigma-Aldrich | T7191 | |
| Nocodazole | Sigma-Aldrich | M1404 | |
| Trizol | Invitrogen | 15596-026 | |
| L-Cysteina, wolna baza | USB Corporation | 14030 | |
| Cichlid Lake Salt | Seachem | 47894 | |
| Sól morska | Seachem | SC7111 | |
| NaHCO3 | Sigma-Aldrich | S6014 | |
| EQUIPMENT | |||
| 1 ml strzykawki | BD Biosciences | 309659 | |
| Igły o rozmiarze 18 BD | Biosciences | 305195 | |
| 30 mm | BD Biosciences | 305106 | |
| Rubbermaid Plastikowe wiadro | Amazon | 6306 | |
| Beckman Polyallomer 2 x ½ calowe probówki ultrawirówkowe | Beckman | 326819 | |
| 15 ml okrągłodenne szklane probówki wirówkowe | Fisher Scientific | 45500-15 | |
| Gumowe tuleje adaptera do probówek 15 ml | Kimble-Chase | 45550-15 | |
| 5 ¾ calowe szklane pipety Pasteura | Fisher Scientific | 13-678-20A | |
| Probówka okrągłodenna z polipropylenu o pojemności 14 ml | BD Biosciences | 352059 | |
| Wirnik Sorvall HB-6 | Thermo Scientific | 11860 | |
| Wirówka Sorvall RC-6 | Thermo Scientific | 46910 |
Bibliografia
- Martin, K. C., Ephrussi, A. mRNA localization: gene expression in the spatial dimension. Cell. 136, 719-730 (2009).
- Besse, F., Ephrussi, A. Translational control of localized mRNAs: restricting protein synthesis in space and time. Nat. Rev. Mol. Cell Biol. 9, 971-980 (2008).
- Lawrence, J. B., Singer, R. H. Intracellular localization of messenger RNAs for cytoskeletal proteins. Cell. 45, 407-415 (1986).
- Mingle, L. A., et al. Localization of all seven messenger RNAs for the actin-polymerization nucleator Arp2/3 complex in the protrusions of fibroblasts. J. Cell Sci. 118, 2425-2433 (2005).
- Blower, M. D., Feric, E., Weis, K., Heald, R. Genome-wide analysis demonstrates conserved localization of messenger RNAs to mitotic microtubules. J. Cell Biol. 179, 1365-1373 (2007).
- Eliscovich, C., Peset, I., Vernos, I., Mendez, R. Spindle-localized CPE-mediated translation controls meiotic chromosome segregation. Nat. Cell Biol. 10, 858-865 (2008).
- Sharp, J. A., Plant, J. J., Ohsumi, T. K., Borowsky, M., Blower, M. D. Functional analysis of the microtubule-interacting transcriptome. Mol. Biol Cell. 22, 4312-4323 (2011).
- Lecuyer, E., et al. Global analysis of mRNA localization reveals a prominent role in organizing cellular architecture and function. Cell. 131, 174-187 (2007).
- Mili, S., Moissoglu, K., Macara, I. G. Genome-wide screen reveals APC-associated RNAs enriched in cell protrusions. Nature. 453, 115-119 (2008).
- Holt, C. E., Bullock, S. L. Subcellular mRNA localization in animal cells and why it matters. Science. 326, 1212-1216 (2009).
- Desai, A., Murray, A., Mitchison, T. J., Walczak, C. E. The use of Xenopus egg extracts to study mitotic spindle assembly and function in vitro. Methods Cell Biol. 61, 385-412 (1999).
- Gache, V., Waridel, P., Luche, S., Shevchenko, A., Popov, A. V. Purification and mass spectrometry identification of microtubule-binding proteins from Xenopus egg extracts. Methods Mol. Med. 137, 29-43 (2007).
- Gache, V., et al. Xenopus meiotic microtubule-associated interactome. PLoS One. 5, e9248(2010).
- Cross, M. K., Powers, M. Obtaining eggs from Xenopus laevis females. J. Vis. Exp. (18), e890(2008).
- Cross, M. K., Powers, M. Preparation and fractionation of Xenopus laevis egg extracts. J. Vis. Exp. (18), e891(2008).
- Cross, M., Powers, M. In vitro nuclear assembly using fractionated Xenopus egg extracts. J. Vis. Exp. (19), e908(2008).
- Harland, R. M., Grainger, R. M. Xenopus research: metamorphosed by genetics and genomics. Trends Genet. 27, 507-515 (2011).
- Hellsten, U. The genome of the Western clawed frog Xenopus tropicalis. Science. 328, 633-636 (2010).
- Brown, K. S. Xenopus tropicalis egg extracts provide insight into scaling of the mitotic spindle. J. Cell Biol. 176, 765-770 (2007).
- Godfrey, E. W., Sanders, G. E. Effect of water hardness on oocyte quality and embryo development in the African clawed frog (Xenopus laevis). Comp. Med. 54, 170-175 (2004).
- Groisman, I., et al. CPEB, maskin, and cyclin B1 mRNA at the mitotic apparatus: implications for local translational control of cell division. Cell. 103, 435-447 (2000).
- Budde, P. P., Desai, A., Heald, R. Analysis of microtubule polymerization in vitro and during the cell cycle in Xenopus egg extracts. Methods. 38, 29-34 (2006).
- Kalab, P., Pu, R. T., Dasso, M. The ran GTPase regulates mitotic spindle assembly. Curr. Biol. 9, 481-484 (1999).
- Gaglio, T., Saredi, A., Compton, D. A. NuMA is required for the organization of microtubules into aster-like mitotic arrays. J. Cell Biol. 131, 693-708 (1995).
- Hughes, J. R., et al. A microtubule interactome: complexes with roles in cell cycle and mitosis. PLoS Biol. 6, e98(2008).
- Suprenant, K. A., Tempero, L. B., Hammer, L. E. Association of ribosomes with in vitro assembled microtubules. Cell Motil. Cytoskeleton. 14, 401-415 (1002).
- Rebagliati, M. R., Weeks, D. L., Harvey, R. P., Melton, D. A. Identification and cloning of localized maternal RNAs from Xenopus eggs. Cell. 42, 769-777 (1985).
Przedruki i uprawnienia
