Opisana jest prosta metoda indukcji przejścia nabłonkowego do mezenchymalnego (EMT) w różnych typach komórek. Uwzględniono metody analizy komórek w stanach EMT za pomocą immunocytochemii.
Artykuł metodologiczny
Indukcja i analiza przejścia nabłonkowego do mezenchymalnego
W tym artykule
Podsumowanie
Streszczenie
Przejście nabłonkowe do mezenchymalnego (EMT) jest niezbędne dla prawidłowej morfogenezy podczas rozwoju. Nieprawidłowa regulacja tego procesu została uznana za kluczowe zdarzenie w zwłóknieniu i progresji raka do stanu przerzutowego. Zrozumienie procesów leżących u podstaw EMT jest niezbędne do wczesnej diagnozy i klinicznej kontroli tych stanów chorobowych. Niezawodna indukcja EMT in vitro jest użytecznym narzędziem do odkrywania leków, a także do identyfikacji typowych sygnatur ekspresji genów do celów diagnostycznych. Tutaj demonstrujemy prostą metodę indukcji EMT w różnych typach komórek. Uwzględniono również metody analizy komórek przed i po indukcji EMT za pomocą immunocytochemii. Dodatkowo wykazujemy skuteczność tej metody poprzez analizę macierzy opartą na przeciwciałach i testy migracji/inwazji.
Wprowadzenie
Przejście nabłonkowe do mezenchymalnego (EMT) to proces, w którym spolaryzowana komórka nabłonkowa przechodzi różnorodne zmiany, w wyniku których powstaje wysoce ruchliwa, podobna do fibroblastów komórka mezenchymalna. Proces ten zachodzi częściowo poprzez zmiany ekspresji genów i degradację połączeń adherens, co skutkuje zwiększoną zdolnością do migracji i inwazji. Fizjologicznie EMT odgrywa ważną rolę podczas rozwoju embrionalnego i gojenia się ran. Utrata właściwej kontroli nad EMT może prowadzić do zwłóknienia i przerzutów raka1,2.
Redukcja E-kadheryny na powierzchni komórek nabłonkowych jest krytycznym krokiem w rozwoju komórki przez EMT3,4. E-kadheryna jest białkiem transbłonowym z pojedynczym przejściem, które bezpośrednio oddziałuje z białkami kadheryny na sąsiednich komórkach. Oprócz swojej roli w adhezji komórek, E-kadheryna wpływa na sygnalizację komórkową poprzez interakcje między cytoplazmatycznym ogonem E-kadheryny a różnymi białkami regulatorowymi, zwłaszcza β-kateniną. β-katenina odgrywa rolę w stabilizacji połączeń przylegających. Podczas kanonicznej sygnalizacji Wnt β-katenina jest uwalniana z E-kadheryny i przemieszczana do jądra, gdzie działa jako dalszy czynnik transkrypcyjny w szlaku Wnt3,4,5. Wykazano, że w jądrze β-katenina zwiększa transkrypcję kilku czynników związanych z EMT, w tym Twist, Slug, Fibronectin i różnych metaloproteaz macierzy3,6.
Oprócz Wnts, wykazano, że sygnalizacja TGF-β odgrywa znaczącą rolę w indukcji EMT zarówno podczas normalnego rozwoju, jak i w stanach chorobowych7,8,9. TGF-β bierze udział w EMT, który występuje podczas tworzenia podniebienia i w rozwijającym się sercu10. Jest również zaangażowany w zwłóknienie i progresję raka do przerzutów7.
Opisana tutaj procedura zapewnia konsekwentną indukcję EMT w różnych typach komórek bez potrzeby manipulacji genetycznej. W tej procedurze wykorzystuje się koktajl przeciwciał blokujących E-kadherynę, sFRP-1 i Dkk-1 oraz rekombinowanych białek Wnt-5a i TGF-β1. Ten koktajl został zaprojektowany w celu blokowania adhezji opartej na E-kadherynie, jednocześnie wzmacniając sygnalizację Wnt i TGF-β. Zdolność do solidnej indukcji EMT ma kluczowe znaczenie dla zrozumienia biologii tego procesu i sposobu manipulowania nim w celach terapeutycznych. Obecne powszechne markery EMT, E-kadheryna (obniżona w EMT) i wimentyna (w górę w EMT), mogą ulegać jednoczesnej ekspresji w nowotworach, a zatem nie zapewniają najlepszych markerów diagnostycznych potencjalnych komórek przerzutowych12. Co ważne, analiza różnych typów komórek, które zostały poddane EMT, jest przydatna do opracowania wspólnych sygnatur ekspresji genów, które można wykorzystać do celów diagnostycznych w raku i zwłóknieniu11. Ponadto ostatnie badania wykazały, że EMT może odgrywać rolę w tworzeniu rakowych komórek macierzystych, co sugeruje, że komórki, które przeszły EMT, mogą być przydatne do badań przesiewowych leków w celu identyfikacji związków, które mogą celować w te komórki.
Protokół
1. Indukcja EMT
- Podgrzać pożywkę do temperatury 37 °C w łaźni wodnej. Użyte pożywki hodowlane są takie same, jak pożywki używane do standardowej hodowli komórek będących przedmiotem zainteresowania. Na przykład linia komórkowa ludzkiego raka płuc A549 jest hodowana w F12 Kaighna uzupełniona 10% płodową surowicą bydlęcą i 2 mM glutaminą.
- Zbierz interesujące Cię komórki za pomocą roztworu dysocjacyjnego (np. TrypLE Express).
- Zawiesić komórki we wstępnie ogrzanej pożywce hodowlanej w stożkowej probówce o pojemności 15 ml.
- Odwirować zawiesinę komórek o sile 400 x g przez 5 min.
- Ostrożnie usunąć supernatant, wlewając go do pojemnika na odpady.
- Zawiesić osad komórkowy we wstępnie ogrzanej pożywce hodowlanej.
- Policz żywe komórki za pomocą błękitu trypanowego. Pobrać próbkę zawiesiny komórek i rozcieńczyć w 0,4% roztworze błękitu trypanowego. Umieścić 10 μl rozcieńczonej próbki na hemocytometrze i policzyć żywe komórki (komórki, które nie zmieniają koloru na niebieski). Użyj liczby komórek, aby określić gęstość komórek w roztworze.
- Płytki na płytkach lub kolbach poddanych działaniu hodowli tkankowej w proporcjach 0,9-1,0 x 10⁴ komórki na cm2. Na przykład, 0,5 x 10⁶ komórek posianych na płytce 100 mm w pożywce hodowlanej zawierającej 1X Suplement Pożywki indukującej EMT (6 ml pożywki na płytkę 100 mm).
- Hodowla komórek posianych w inkubatorze o temperaturze 37 °C/5% CO2 . Codziennie monitoruj morfologię komórek.
- Trzy dni po posiewie usuń pożywkę i zastąp ją świeżą, wstępnie podgrzaną pożywką hodowlaną zawierającą 1X Suplement Pożywki indukującej EMT. Kontynuować hodowlę w inkubatorze o temperaturze 37 °C/ 5% CO2 .
- Pięć dni po posiewie komórki są gotowe do analizy. Morfologia komórek jest wizualizowana za pomocą mikroskopii w świetle odwróconym.
2. Analiza ekspresji białek za pomocą immunocytochemii
- Przygotować sterylne szkiełka nakrywkowe o średnicy 12 mm na płytkę 24-dołkową, umieszczając szkiełka nakrywkowe na płytce Petriego zawierającej 95% etanolu. Delikatnie usuń szkiełka nakrywkowe z etanolu za pomocą igły i zakrzywionych kleszczy i sterylizuj płomieniem. Umieść sterylne szkiełko nakrywkowe w jednym dołku na płytce 24-dołkowej. Powtórz z pozostałymi szkiełkami nakrywkowymi.
- Przygotować zawiesinę komórek w sposób opisany w ppkt 1.1 - 1.7.
- Płytka 1,6 x 10⁴ komórki / studzienka w 0,5 ml wstępnie podgrzanej pożywki hodowlanej zawierającej 1X Suplement pożywki indukującej EMT.
- Hoduj i odżywiaj komórki zgodnie z opisem w sekcjach 1.9 - 1.11.
- Pięć dni po posiewie usuń pożywkę i utrwal komórki za pomocą 300 μl / studzienka 4% paraformaldehydu w 1X buforowanej fosforanem soli fizjologicznej (PBS) przez 20 minut w temperaturze pokojowej.
- Usunąć utrwalacz i spłukać komórki 2x za pomocą 1X PBS, 500 μl/studzienkę.
- Inkubować komórki w 400 μl/studzienkę buforu blokującego (1X PBS zawierający 1% albuminy surowicy bydlęcej (BSA), 10% normalnej surowicy osła i 0,3% Triton X-100) przez 1 godzinę w temperaturze pokojowej.
- Inkubować w przeciwciałie pierwszorzędowym w zalecanym przez producenta stężeniu w 400 μl/basenik buforu blokującego przez 3 godziny w temperaturze pokojowej lub przez noc w temperaturze 4 °C. W przypadku stosowania przeciwciała pierwszorzędowego bezpośrednio sprzężonego z fluorochromem, próbki należy inkubować w ciemności.
- Przemyć komórki trzy razy w 500 μl/basenik 1X PBS zawierający 0,1% BSA przez 5 minut każdego płukania. W przypadku stosowania przeciwciała pierwszorzędowego bezpośrednio sprzężonego z fluorochromem należy przejść bezpośrednio do kroku 2.12.
- Inkubować komórki w przeciwciałie drugorzędowym w zalecanym przez producenta stężeniu w 400 μl/basenik 1X PBS zawierającego 1% BSA przez 1 godzinę w temperaturze pokojowej w ciemności.
- Przemyć komórki trzy razy w 500 μl/basenik 1X PBS zawierający 0,1% BSA przez 5 minut każdego płukania.
- W razie potrzeby przeciwbarwić jądra roztworem DAPI.
- Opłucz komórki w wodzie dejonizowanej i zamontuj szkiełka nakrywkowe na szkiełku ekranem do dołu za pomocą mediów montażowych.
Wyniki
Opisane tutaj warunki hodowli indukujące EMT stanowią niezawodną metodę indukcji przejścia epitelialno-mezenchymalnego w wielu typach komórek. Rysunki 1 i 2 przedstawiają morfologię oraz poziomy ekspresji markerów dla 4 różnych ludzkich linii komórkowych: komórek glejaka T98G, komórek gruczolaka przewodowego jelita grubego HT29, komórek raka płuca A549 oraz komórek nabłonkowych gruczołu piersiowego MCF10A. Komórki traktowane suplementem do pożywki indukującej EMT zmieniły klasyczną morfologię nabłonkową (Rysunki 1A - 1D) na mezenchymalną morfologię wrzecionowatą (Rysunki 1E - 1H). Komórki po indukcji EMT wydawały się mniej gęsto upakowane w zwartych koloniach w porównaniu z komórkami nieindukowanymi. Próbki nieindukowanych komórek MCF10A zawierały ściśle upakowane skupiska otoczone przez bardziej rozproszone komórki. Skupiska te były pozytywne pod kątem E-cadherin (Rysunek 2D) i zanikły po zastosowaniu suplementu do pożywki indukującej EMT (Rysunek 2H).
EMT oceniono również poprzez analizę downregulation markerów nabłonkowych i upregulation markerów mezenchymalnych. Downregulation ekspresji E-kadheryny jest zazwyczaj obserwowana po indukcji EMT w różnych typach komórek3,4. Rysunek 2 pokazuje ekspresję powierzchniową E-kadheryny w większości nieleczonych komórek (Rysunki 2A - 2D; czerwony) w porównaniu do jej braku po indukcji EMT (Rysunki 2E - 2H; czerwony). W jednej linii komórkowej, T98G, stwierdzono niezwykle niski podstawowy poziom E-kadheryny przed indukcją EMT, co uniemożliwiło jej analizę. Upregulation markera mezenchymalnego, fibronektyny, była również widoczna po indukcji przy użyciu suplementu do medium indukującego EMT (Rysunki 2A - 2D versus Rysunki 2E - 2H; zielony).
Poziomy ekspresji E-kadheryny i fibronektyny obserwowane w immunocytochemii zostały dodatkowo potwierdzone za pomocą western blotu lizatów całkowitych komórek (Rysunek 3). Western blot potwierdził obniżenie poziomu E-kadheryny oraz zwiększenie ekspresji fibronektyny zaobserwowane w immunocytochemii. Prążki zostały poddane kwantyfikacji metodą densytometrii i znormalizowane względem GAPDH w celu określenia względnej zmiany krotności po indukcji EMT. Poziomy E-kadheryny uległy zmniejszeniu odpowiednio 6,4 i 3,4 krotnie w komórkach A549 i MCF10A. Poziomy fibronektyny wzrosły odpowiednio 4,6, 4,1 i 2,3 krotnie w komórkach T98G, A549 i MCF10A. Chociaż western blot nie wykazuje istotnego zmniejszenia poziomu białka E-kadheryny w komórkach HT29 po indukcji EMT, wyniki immunocytochemii wykazują spadek ekspresji powierzchniowej E-kadheryny (Rysunek 2B w porównaniu do 2F), czego nie można rozróżnić w western blocie lizatów całkowitych komórek.
Aby dalej ocenić status EMT, przeanalizowano dodatkowe znane markery EMT przed i po indukcji EMT. Zgodnie z poprzednimi wynikami, poziom E-kadheryny był obniżony we wszystkich badanych liniach komórkowych, co wskazywało na indukcję EMT. Ponadto markery mezenchymalne, Vimentina i Snail, wykazywały zwiększoną ekspresję w komórkach A549, T98G i MCF10A po zastosowaniu suplementu medium indukującego EMT (Rysunek 4). Linia komórkowa HT29 nie wykazała ekspresji tych markerów mezenchymalnych ani z indukcją EMT, ani bez niej (dane nie zostały przedstawione), co może wskazywać, że komórki te wykorzystują alternatywne szlaki indukcji EMT.
Choć TGF-β jest wystarczający do indukowania EMT w określonych kontekstach komórkowych7,8,9, inne typy komórek nie reagują wyłącznie na dodanie TGF-β14. Doniesiono, że ludzkie komórki raka piersi MCF7 oraz ludzkie komórki raka trzustki PANC-1 nie reagują na samo sygnałowanie TGF-β14. Aby ustalić, czy obie linie mogą przejść EMT in vitro, komórki hodowano w obecności suplementu do pożywki indukującej EMT (EMT Inducing Media Supplement). Komórki stymulowano samym rekombinowanym TGF-β1 w stężeniu zawartym w suplemencie do pożywki indukującej EMT. Komórki te zachowały swoją morfologię nabłonkową, tworząc gęsto upakowane kolonie komórek (dane nie pokazano), a poziom E-kadheryny na powierzchni był zbliżony do poziomu w komórkach kontrolnych (Rycina 5C i 5D w porównaniu z Rysunami 5A i 5B). W przeciwieństwie do nich, komórki stymulowane suplementem do pożywki indukującej EMT wykazały drastyczny spadek poziomu E-kadheryny na powierzchni (Ryciny 5E i 5F). Komórki te uzyskały również bardziej mezenchymalną morfologię, stając się mniej kompaktowe i bardziej wrzecionowate (dane nie pokazano). Wyniki te dowodzą, że opisana tutaj metoda indukcji EMT jest w stanie promować zmiany morfologiczne i ekspresję markerów EMT w komórkach typowo opornych na EMT indukowane przez TGF-β.
Oprócz zmian w ekspresji markerów, kolejną cechą charakterystyczną komórek mezenchymalnych jest ich zdolność do migracji i inwazji. Migrację i inwazję komórek hodowanych z dodatkiem lub bez dodatku suplementu mediów indukujących EMT analizowano za pomocą testu inwazji komórkowej BME w płytkach 96-dołkowych zgodnie z instrukcją producenta. W skrócie, komórki wysiano na płytki 96-dołkowe (50 000 komórek/dołek) zawierające wkłady filtracyjne z porami o średnicy 8,0 μm. Po 48 h oceniono migrację poprzez barwienie calceiną AM komórek, które przedostały się przez filtr. Każdą próbkę badano dwukrotnie w trzech powtórzeniach, uzyskując podobne wyniki. Reprezentatywne wyniki z jednego eksperymentu przedstawiono na Ryc. 6A. Po indukcji EMT zaobserwowano statystycznie istotny wzrost (P-value<0,003) migracji komórek zarówno w przypadku linii A549, jak i PANC-1. Aby ocenić zdolność tych komórek do inwazji (i.e. migracji przez macierz zewnątrzkomórkową), przeprowadzono ten sam test przy użyciu filtra powleczonego ekstraktem błony podstawnej. Komórki po indukcji EMT wykazały statystycznie istotny (P-value<0,001) wzrost zdolności inwazyjnych w porównaniu z komórkami nieleczonymi, co przedstawiono na Ryc. 6B.
Skuteczna indukcja EMT jest przydatna do analizy zmian w ekspresji genów oraz sygnalizacji zachodzącej w tych komórkach. Analiza macierzy oparta na przeciwciałach z wykorzystaniem lizatów z komórek traktowanych i nietraktowanych jest jedną z metod analizy poziomów ekspresji różnorodnych cząsteczek w pojedynczej próbce. Jako przykład przeanalizowaliśmy poziomy fosforylacji członków rodziny MAPK w lizatach z nieindukowanych oraz indukowanych do EMT komórek MCF7 i A549, używając zestawu Proteome Profiler Human Phospho-MAPK Array Kit. Macierz była przeprowadzana dwukrotnie w niezależnych próbach indukcji EMT, dając podobne wyniki. Rysunek 7 przedstawia reprezentatywne dane z jednej macierzy. Oba typy komórek wykazały zwiększoną fosforylację CREB (S133), ERK1 (T202/Y204) oraz ERK2 (T185/Y187) w komórkach z indukowanym EMT w porównaniu do kontroli. Zaobserwowano również różnice w zdarzeniach sygnalizacyjnych pomiędzy dwoma typami komórek. Komórki A549 wykazały wzrost fosforylacji GSK-3 β (S9), natomiast komórki MCF7 wykazały zwiększoną fosforylację p70S6K (T421/S424).

Rysunek 1. Indukcja morfologii mezenchymalnej po stymulacji suplementem do pożywki indukującej EMT. (A - D) Morfologia nabłonkowa w czterech wskazanych typach komórek po 5 dniach hodowli w standardowej pożywce hodowlanej bez suplementu do pożywki indukującej EMT. (E - H) Morfologia mezenchymalna w czterech wskazanych typach komórek hodowanych z suplementem do pożywki indukującej EMT przez 5 dni.

Rycina 2. Obniżenie ekspresji markera nabłonkowego oraz zwiększenie ekspresji markera mezenchymalnego w komórkach poddanych indukcji EMT. Komórki barwiono immunofluorescencyjnie w celu wykrycia ekspresji markera nabłonkowego, E-kadheryny (czerwony), oraz markera mezenchymalnego, fibronektyny (zielony). (A - D) Komórki kontrolne hodowane przez 5 dni bez dodatku indukującego EMT do pożywki. (E - H) Komórki hodowane przez 5 dni z dodatkiem indukującym EMT do pożywki. Wszystkie komórki zostały przeciwbarwione DAPI (niebieski).
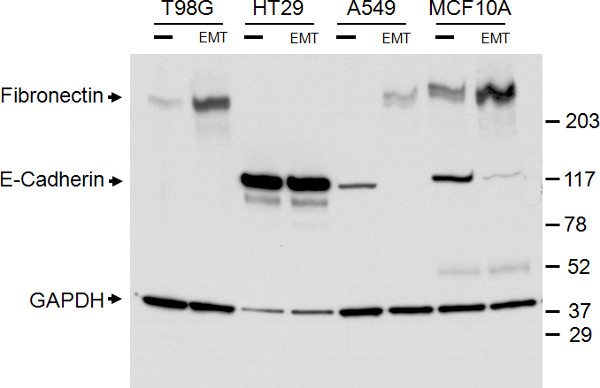
Rysunek 3. Potwierdzenie ekspresji markerów nabłonkowych i mezenchymalnych za pomocą analizy western blot. Western blot całkowitych lizatów czterech wskazanych typów komórek, traktowanych (EMT) lub nietraktowanych (-) suplementem pożywki indukującej EMT przez 5 dni. Prążki dla E-kadheryny, fibronektyny oraz kontroli ładunku GAPDH są wskazane po lewej stronie. Marker wielkości jest wskazany po prawej stronie.

Rycina 4. Podwyższenie poziomu markerów mezenchymalnych, Vimentiny i Snail w komórkach indukowanych do przejścia EMT. Komórki barwiono wielokolorową immunofluorescencją w celu wykrycia ekspresji markera nabłonkowego, E-kadheryny (szary), oraz markerów mezenchymalnych: Vimentiny (zielony) i Snail (czerwony). (A - C) Komórki kontrolne hodowane bez suplementu pożywki indukującej EMT przez 5 dni. (D - F) Komórki hodowane z suplementem pożywki indukującej EMT przez 5 dni.

Rysunek 5. Indukcja EMT w komórkach niewrażliwych na TGF-β1. (A i B) Komórki hodowane w samym medium przez 5 dni. (C i D) Komórki hodowane w medium zawierającym 10 ng/ml TGF-β1 przez 5 dni. (E i F) Komórki hodowane w medium z suplementem indukującym EMT przez 5 dni. Wszystkie komórki przebarwiono pod kątem ekspresji E-kadheryny (czerwony) i przeciwbarwiono DAPI (niebieski).

Rysunek 6. Komórki indukowane przez EMT wykazują zwiększoną zdolność do migracji i inwazji. A. Średnia liczba komórek, które migrowały przez filtr z porami 8 μm po 48 hr inkubacji. B. Średnia liczba komórek, które były zdolne do inwazji przez filtr z porami 8 μm pokryty ekstraktem błony podstawnej po 48 hr inkubacji. Słupki błędów wskazują odchylenie standardowe z 3 studni.

Rycina 7. Analiza ekspresji metodą macierzy przeciwciał po indukcji EMT. Lizaty z komórek A549 (A i C) oraz MCF7 (B i D) hodowanych z dodatkiem lub bez dodatku suplementu medium indukującego EMT zostały wykorzystane do analizy macierzowej z użyciem zestawu Proteome Profiler Human Phospho-MAPK Array Kit. Plamki zaznaczone w A i B zostały następnie ilościowo określone za pomocą densytometrii. Porównania lizatów nieindukowanych i indukowanych do EMT przedstawiono na odpowiadających im wykresach słupkowych poniżej (C i D). Kliknij tutaj, aby wyświetlić powiększoną rycinię.
Dyskusja
Poprzednie metody indukcji EMT na ogół wykorzystywały stymulację TGF-β lub modyfikację genetyczną. Chociaż wykazano, że sam TGF-β indukuje EMT w niektórych typach komórek, obecnie wykazano, że TGF-β jest niezbędny dla EMT, ale nie jest wystarczający we wszystkich typach komórek6,14. Stosowanie modyfikacji genetycznej do indukcji EMT jest czasochłonne i pracochłonne. Opisana tutaj metoda wykorzystuje kombinację czynników, w tym anty-ludzkiej E-kadheryny, anty-ludzkiego sFRP-1, anty-ludzkiego Dkk-1, rekombinowanego ludzkiego Wnt-5a i rekombinowanego ludzkiego TGF-a1, aby niezawodnie indukować EMT. Ta kombinacja czynników ma na celu zablokowanie adhezji opartej na E-kadherynie, co jest krytycznym krokiem dla indukcji EMT4, i wzmocnienie sygnalizacji Wnt poprzez dodanie białka Wnt-5a, a także zastosowanie przeciwciał blokujących inhibitory Wnt, sFRP-1 i Dkk-1. Wykazano, że sygnalizacja Wnt i TGF-β działa w pętli autokrynnej w celu wywołania i utrzymania stanu komórki mezenchymalnej6. Ta metoda indukcji pozwala uniknąć manipulacji genetycznych i jest bardziej skuteczna niż stosowanie samego TGF-β. Co ważne, jesteśmy w stanie zaobserwować indukcję EMT w typach komórek, w tym komórkach MCF7 i PANC-1, które, jak wykazano wcześniej, nie reagują wyłącznie na stymulację TGF-β (Figura 5)14.
Komórki traktowane suplementem pożywki indukującej EMT wykazują mniej zwartą i zwiększoną morfologię wrzecionowatą (ryc. 1). Dodatkowo obserwuje się spadek powierzchniowej ekspresji E-kadheryny równolegle ze wzrostem ekspresji fibronektyny, które są cechami charakterystycznymi EMT (ryc. 2 i 3). Dodatkowe markery mezenchymalne, takie jak wimentyna i ślimak, są również regulowane w górę w komórkach indukowanych EMT w porównaniu z nieindukowanymi kontrolami (ryc. 4). Zwiększona zdolność migracji i inwazji to główne cechy funkcjonalne komórek mezenchymalnych. W testach migracji i inwazji in vitro komórki traktowane suplementem pożywki indukującej EMT wykazały znacznie zwiększoną zdolność do migracji i inwazji (ryc. 6).
Ta prosta metoda indukcji EMT jest przydatna do badania sygnalizacji EMT, jak wykazano przy użyciu danych dotyczących ekspresji matrycy przeciwciał pokazanych na rysunku 7. Można porównać różne typy komórek przed i po indukcji EMT, aby uzyskać wspólne sygnatury ekspresji związane z EMT, takie jak wzrost fosforylowanych CREB i ERK1 / 2 obserwowany zarówno w komórkach indukowanych przez MCF7, jak i A549 EMT. Fosforylacja S133 CREB stymuluje wiązanie DNA i wykazano, że działa poniżej indukowanego przez TGF-a1 EMT15. Wykazano również, że fosforylacja ERK1/2 działa poniżej EMT16 indukowanego przez TGF-β1. Można również wyjaśnić różnice w szlakach sygnałowych między typami komórek, co widać przy wzroście fosforylacji GSK-3β w komórkach A549 w porównaniu z fosforylacją p70S6K w MCF7. Fosforylacja GSK-3β przy serynie 9 zmniejsza jej funkcję, a wykazano, że GSK-3β hamuje czynnik transkrypcyjny pro-EMT, Ślimak17. Natomiast p70S6K indukuje aktywność ślimaka, a jego fosforylacja jest związana z aktywacją tego białka18.
Ogólnie rzecz biorąc, prosta i niezawodna indukcja EMT, szczególnie w komórkach, w których wcześniej wykazano, że nie reagują wyłącznie na TGF-β, jest przydatna do zrozumienia biologii EMT, identyfikacji wspólnych sygnatur ekspresji do wykorzystania jako markery prognostyczne oraz opracowania i oceny nowych metod leczenia raka i choroby zwłóknieniowej.
Oświadczenia
R & D Systems, Inc. jest spółką publiczną nastawioną na zysk.
Produkcja i bezpłatny dostęp do tego artykułu jest sponsorowany przez R&D Systems, Inc.
Podziękowania
Autorzy dziękują Julii Hatler i Martinowi Ramsdenowi (R & D Systems) za pomocną dyskusję i recenzję manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| nas komórki nabłonkowe | Przetestowaliśmy: A431, A549, HT29, T98G, MCF10A, MCF7 i PANC1 | ||
| Suplement pożywki indukującej EMT | R& D Systems | CCM017 | |
| Rekombinowany ludzki TGF-β 1 | R& Systemy D | 240-B | Stosowane przy 10 ng / ml |
| przeciwciało sprzężone anty-E-Kadheryna NL557 | R& D Systems | NL648R | Stosowany w rozcieńczeniu 1:10 do immunocytochemii |
| Anti-E-Cadherin | R& Systemy D | MAB1838 | używane przy 0,1 μ g/ml dla western blot |
| anty-fibronektyny | R& Systemy D | MAB1918 | używane przy 10 μ g/ml dla immunocytochemii; Używany przy 0,5 μ g/ml do western blot |
| Anti-GAPDH | R& D Systems | AF5718 | Używany przy 0,2 μ g / ml dla western blotting |
| Goat Anti-Mouse NL493 Przeciwciało wtórne | R& D Systems | NL009 | Stosowany w rozcieńczeniu 1:200 do immunocytochemii |
| Przeciwciało wtórne Donkey Anti-Goat HRP | R& D Systems | HAF109 | Używany w 1:2000 do western blotting |
| Goat Anti-Mouse HRP Secondary Anti Drugorzędowe przeciwciało | & D Systems | HAF007 | Używany w 1:2000 do western blotting |
| EMT 3-kolorowy zestaw immunocytochemiczny | R& D Systems | SC026 | Używany zgodnie z zaleceniami producenta s instrukcje. Ten zestaw zawiera bezpośrednio sprzężone przeciwciała przeciwko E-kadherynie, wimentynie i ślimakowi. |
| 96 Well: Test inwazji komórek BME | R& D Systems | 3455-096-K | Ten zestaw był używany zgodnie z zaleceniami producenta. |
| Zestaw macierzy Proteome Profiler Human Phospho-MAPK R | & D Systems | ARY002B | Ten zestaw był używany zgodnie z zaleceniami producenta19. |
| Nośniki montażowe | R& D Systems | CTS011 | |
| 0,4% Trypan Blue Solution | Life Technologies | 15350-061 | |
| 1X Sól fizjologiczna buforowana fosforanem (PBS) | |||
| 95% Etanol | |||
| Albumina surowicy bydlęcej | Sigma | A3311 | |
| Normalna surowica osła | Jackson Labs | 017-000-121 | |
| Triton-X-100 | Roche Molecular Biochemicals | 789-704 | Rozcieńczyć w 1X PBS, aby uzyskać 10% roztwór podstawowy |
| Paraformaldehyd | Sigma | P6148 | Rozcieńczyć w 1X PBS do 4% stężenia roboczego. |
| Roztwór DAPI | Sigma | D9542 | Przygotować roztwór podstawowy w temperaturze 14,3 mM, rozpuszczając się w wodzie. Roztwór roboczy to rozcieńczenie roztworu podstawowego w stosunku 1:5000 w 1X PBS. |
| Kleszcze zakrzywione o cienkim spiczastym | Thermo-Fisher Scientific | 08-875 | |
| 12 mm szkiełka nakrywkowe | Carolina Biological | 633009 | |
| Beztłuszczowe mleko | Stosowany w stężeniu 5% w TBST do blokowania w western blotting | ||
| TBST [25mM Tris, pH 7,4, 0,15M NaCl, 0,1% Tween 20] | Do blokowania i mycia western blotting | ||
| Membrana | PVDFDo western blotting | ||
| 4-20% żel | Do podłoża | ||
| ECL | western blotting | ||
| Probówki | |||
| Płytki/kolby, płytki 24-dołkowe poddane | |||
| kultur tkankowych, poddane działaniu | |||
| Pipety / końcówki | do pipet | ||
| Pipet Aid / pipety | |||
| Hemocytometr | |||
| 37 ° C Kąpiel | |||
| 37 ° C/5%CO2 Inkubator | |||
| Wirówka | |||
| odwróconego | |||
| Mikroskop |
Bibliografia
- Kalluri, R., Weinberg, R. A. The basics of epithelial-mesenchymal transition. Journal of Clinical Investigation. 119, 1420-1428 (2009).
- Thiery, J. P. Epithelial-mesenchymal transitions in tumour progression. Nature Reviews Cancer. 2, 442-454 (2002).
- Heuberger, J., Birchmeier, W. Interplay of cadherin-mediated cell adhesion and canonical Wnt signaling. Cold Spring Harbor Perspectives in Biology. 2, 1-23 (2010).
- Onder, T. T. Loss of E-cadherin promotes metastasis via multiple downstream transcriptional pathways. Cancer Research. 68, 3645-3654 (2008).
- Tian, X. E-cadherin/β-catenin complex and the epithelial barrier. Journal of Biomedicine and Biotechnology. 2011, 1-6 (2011).
- Scheel, C. Paracrine and autocrine signals induce and maintain mesenchymal and stem cell states in the breast. Cell. 145, 926-940 (2011).
- Xu, J., Lamouille, S., Derynck, R. TGF-β-induced epithelial to mesenchymal transition. Cell Research. 19, 156-172 (2009).
- Kasai, H. TGF-β1 induces human alveolar epithelial to mesenchymal cell transition. EMT). Respiratory Research. 6, 56-70 (2005).
- Miettinen, P. J., et al. TGF-β induced transdifferentiation of mammary epithelial cells to mesenchymal cells: involvement of type I receptors. Journal of Cell Biology. 127, 2021-2036 (1994).
- Pelton, R. W., et al. Differential expression of genes encoding TGFs β1, β2, and β3 during murine palate formation. Dev. Biol. 141, 456-460 (1990).
- Taube, J. H. Core epithelial-to-mesenchymal transition interactome gene-expression signature is associated with claudin-low and metaplastic breast cancer subtypes. PNAS. 107, 15449-15454 (2010).
- Roussos, E. T., et al. AACR special conference on epithelial-mesenchymal transition and cancer progression and treatment. Cancer Research. 70, 7360-7364 (2010).
- Polyak, K., Weinberg, R. A. Transitions between epithelial and mesenchymal states: acquisition of malignant and stem cell traits. Nature Reviews Cancer. 9, 265-273 (2009).
- Brown, K. A. Induction by transforming growth factor-β1 of epithelial to mesenchymal transition is a rare event in vitro. Breast Cancer Research. 6, 215-231 (2004).
- De Falco, V., et al. CD44 proteolysis increases CREB phosphorylation and sustains proliferation of thyroid cancer cells. Cancer Research. 72, 1449-1458 (2012).
- Xie, L. Activation of the Erk pathway is required for TGF-β1-induced EMT in vitro. Neoplasia. 6, 603-610 (2004).
- Bachelder, R. E., et al. Glycogen synthase kinase-3 is an endogenous inhibitor of Snail transcription: implication for the epithelial-mesenchymal transition. Journal of Cell Biology. 168, 29-33 (2005).
- Pon, Y. L. p70 S6 kinase promotes epithelial to mesenchymal transition through Snail induction in ovarian cancer cells. Cancer Research. 68, 6524-6532 (2008).
- Wegner, G. J., et al. Profiling changes in receptor tyrosine kinase phosphorylation using antibody arrays. J. Vis. Exp. , (2012).
Przedruki i uprawnienia
