Transportowanie błony polega na transporcie białek z błony plazmatycznej do wnętrza komórki (np. endocytoza), a następnie transporcie do lizosomów w celu degradacji lub do błony plazmatycznej w celu recyklingu. Metody opisane w tym artykule mają na celu badanie endocytozy i recyklingu białek błony komórkowej.
Artykuł metodologiczny
Komórkowe testy ochrony L-glutationu do badania endocytozy i recyklingu białek błony komórkowej
W tym artykule
Podsumowanie
Streszczenie
Transportowanie błony polega na transporcie białek z błony plazmatycznej do wnętrza komórki (np. endocytoza), a następnie transporcie do lizosomów w celu degradacji lub do błony plazmatycznej w celu recyklingu. Testy ochrony L-glutationu oparte na komórkach mogą być wykorzystywane do badania endocytozy i recyklingu receptorów białkowych, kanałów, transporterów i cząsteczek adhezyjnych zlokalizowanych na powierzchni komórki. Test endocytarny wymaga znakowania białek powierzchniowych komórek nieprzepuszczalną dla błony komórkowej biotyną zawierającą wiązanie dwusiarczkowe i ester N-hydroksysukcynimidu (NHS) w temperaturze 4 ºC - temperaturze, w której nie zachodzi transport błonowy. Endocytoza biotynylowanych białek błony plazmatycznej jest indukowana przez inkubację w temperaturze 37 ºC. Następnie temperaturę ponownie obniża się do 4 ºC, aby zatrzymać transport endocytarny, a wiązanie dwusiarczkowe w biotynie kowalencyjnie przyłączone do białek, które pozostały na błonie plazmatycznej, jest redukowane za pomocą L-glutationu. W tym momencie tylko białka, które zostały poddane endocytozji, pozostają chronione przed L-glutationem, a tym samym pozostają biotynylowane. Po lizie komórek biotynylowane białka są izolowane za pomocą agarozy streptawidyny, eluowanej z agarozy, a biotynylowane białko będące przedmiotem zainteresowania jest wykrywane przez western blot. Podczas testu recyklingu, po biotynylacji, komórki inkubuje się w temperaturze 37 °C w celu obciążenia pęcherzyków endocytarnych biotynylowanymi białkami, a wiązanie dwusiarczkowe w biotynie kowalencyjnie przyłączone do białek pozostających na błonie plazmatycznej jest redukowane L-glutationem w temperaturze 4 °C, tak jak w teście endocytarnym. Następnie komórki są ponownie inkubowane w temperaturze 37 °C, aby umożliwić biotynylowane białka z pęcherzyków endocytarnych recykling do błony plazmatycznej. Komórki są następnie inkubowane w temperaturze 4 ºC, a wiązanie dwusiarczkowe w biotynie przyłączone do białek, które zostały przetworzone do błon plazmatycznych, jest redukowane za pomocą L-glutationu. Biotynylowane białka chronione przed L-glutationem to te, które nie zostały przetworzone do błony komórkowej.
Wprowadzenie
Wszystkie żywe komórki przetwarzają informacje poprzez transport ładunku, takiego jak ligandy zewnątrzkomórkowe, mikroorganizmy, składniki odżywcze, białka transbłonowe i lipidy z błony komórkowej do pęcherzyków endocytarnych (np. endocytoza). Odwrotny proces zwany recyklingiem równoważy endocytozę i zwraca większość zinternalizowanej błony i ładunku na powierzchnię komórki. Równowaga między endocytozą a recyklingiem kontroluje skład błony plazmatycznej i dostarcza komórkom informacji, które zostały rozwiązane w czasie i przestrzeni. Endocytoza i recykling są głównymi regulatorami różnych funkcji komórkowych, takich jak pobieranie składników odżywczych i metabolizm, rozwój, proliferacja, różnicowanie i polarność, przeprogramowywanie, migracja, adhezja i migracja komórek, cytokineza i neuroprzekaźnictwo1-3. Szlaki endocytarne i recyklingowe są bardzo dynamiczne i wysoce skoordynowane oraz pozwalają komórkom obracać równowartość całej błony plazmatycznej 1-5 razy na godzinę.
Testy ochrony L-glutationu oparte na komórkach są przydatne do badania endocytozy i recyklingu białek transbłonowych, w tym receptorów, kanałów, transporterów i cząsteczek adhezyjnych w komórkach nabłonkowych i nienabłonkowych4-8. Wcześniej badaliśmy endocytozę i recykling przezbłonowego regulatora przewodnictwa mukowiscydozy (CFTR) w ludzkich komórkach nabłonka dróg oddechowych i komórkach HEK2939-15. Testy oparte na biotynylacji opisane w manuskrypcie są zoptymalizowane pod kątem badania endocytozy i recyklingu w komórkach nabłonka hodowanych w warunkach polaryzacyjnych na półprzepuszczalnych podporach wzrostu. Protokoły te można modyfikować w celu zbadania endocytozy i recyklingu białek w komórkach nabłonkowych hodowanych w plastikowych szalkach do hodowli tkanek lub w komórkach nienabłonkowych. Ryciny 1 i 2 zawierają przykłady testów endocytarnych i recyklingowych w komórkach nabłonkowych i nienabłonkowych.
Testy endocytarne są wykonywane zgodnie z wcześniejszym opisem9-15. Komórki są hodowane na półprzepuszczalnych podporach wzrostupokrytych kolagenem 11,14. Alternatywnie, komórki można hodować w pokrytych kolagenem plastikowych naczyniach do hodowli tkanek10,15. Komórki są szybko schładzane do temperatury 4 ºC, aby zatrzymać transport błonowy, a białka błony plazmatycznej są znakowane w temperaturze 4 °C nieprzepuszczalną dla błony komórkowej biotyną. Biotyna reaguje z ε-amina reszt lizyny, a wiązanie dwusiarczkowe jest tiolowo-łupliwe. Po biotynylacji komórki inkubuje się w temperaturze 37 °C w celu indukowania transportu białek i ładowania pęcherzyków endocytarnych przez 2,5, 5,0, 7,5 lub 10 minut. Następnie komórki są schładzane do temperatury 4 °C, a wiązanie dwusiarczkowe w biotynie kowalencyjnie przyłączonej do białek błony plazmatycznej jest redukowane za pomocą L-glutationu (GSH). Na tym etapie protokołu tylko białka, które zostały endocytozowane z błony komórkowej, są chronione przed GSH, a tym samym pozostają biotynylowane. Komórki pozostające w temperaturze 4 °C po biotynylacji bez inkubacji w temperaturze 37 °C lub poddaniu działaniu GSH posłużyłyby do określenia ilości biotynylowanej CFTR w czasie zero. Komórki pozostające w temperaturze 4 °C po biotynylacji bez inkubacji w temperaturze 37 °C, ale z obróbką GSH, posłużyłyby do określenia skuteczności redukcji wiązań dwusiarczkowych. Po wyżej opisanych zabiegach komórki są poddawane lizie, biotynylowane białka są izolowane przez agarozę streptawidyny, eluowane do buforu próbki SDS i rozdzielane przez SDS-PAGE. Białko będące przedmiotem zainteresowania jest wykrywane w biotynylowanych próbkach za pomocą western blot. Za 100% uważa się ilość biotynylowanego białka w temperaturze 4 ºC w czasie zero (bez ocieplenia o 37 ºC). Ilość białka pozostałego biotynylowanego po podaniu działaniu GSH w temperaturze 4 ºC uznaje się za tło i odejmuje się od ilości białka pozostałego biotynylowanego po podgrzaniu do 37 ºC w różnych punktach czasowych. Endocytozę białkową oblicza się po odjęciu tła i wyraża się ją jako procent biotynylowanego białka w każdym punkcie czasowym po podgrzaniu do 37 ºC w porównaniu z ilością biotynylowanego białka obecnego w czasie zero.
Testy recyklingu są wykonywane zgodnie z wcześniejszym opisem11,16. Komórki są hodowane na półprzepuszczalnych podporach wzrostu pokrytych kolagenem11. Alternatywnie, komórki można hodować na pokrytych kolagenem plastikowych naczyniach do hodowli tkanek13. Po biotynylacji komórki są ogrzewane do 37 °C w celu obciążenia pęcherzyków endocytarnych biotynylowanymi białkami. Czas pierwszej inkubacji w temperaturze 37 °C określa się na podstawie czasu, w którym endocytoza białka będącego przedmiotem zainteresowania osiąga maksimum podczas liniowego wzrostu sygnału endocytarnego. Czas ten jest zależny od białka i może zależeć od typu komórki i warunków hodowli komórkowej. Z naszego doświadczenia wynika, że endocytoza CFTR osiąga maksimum po 5,0 lub 7,5 min13,14 (ryc. 1 i 2). Następnie komórki są natychmiast schładzane do temperatury 4 °C, a wiązanie dwusiarczkowe w biotynie przyłączonej do białek błony plazmatycznej jest redukowane za pomocą GSH. Następnie komórki są poddawane lizie w celu określenia ilości interesującego nas białka endocytozowego lub ponownie podgrzewane do 37 °C przez różne okresy czasu, aby umożliwić endocytozowanemu biotynylowanemu białku będącemu przedmiotem zainteresowania recykling do błony komórkowej. Komórki są następnie ponownie schładzane do temperatury 4 °C, a wiązanie dwusiarczkowe na biotynie przyłączone do białek zawracanych do błon plazmatycznych jest redukowane za pomocą GSH. Recykling białka będącego przedmiotem zainteresowania określa się na podstawie różnicy między ilością biotynylowanego białka po pierwszym i drugim podaniu działaniu GSH.
Wykonalność testów endocytarnych i recyklingowych zależy od kilku czynników. Po pierwsze, tworzenie monowarstw komórkowych jest warunkiem wstępnym, a komórki, które nie tworzą monowarstwy lub nie rosną jako wielowarstwowe, nie nadają się do testów opisanych w tym manuskrypcie. Po drugie, krytyczna jest obfitość interesującego białka na powierzchni komórki i obecność przeciwciała wykrywającego białko za pomocą western blotting. Zalecamy, aby obfitość białka w stanie stacjonarnym została najpierw określona w lizatach całych komórek (WCL). Po trzecie, należy przetestować zdolność do biotynylacji specyficznego białka powierzchniowego komórki. Biotyna przyłącza się do reszt lizyny. Tak więc skuteczność biotynylacji zależy częściowo od liczby reszt lizyny w domenie zewnątrzkomórkowej białka. W związku z tym zalecamy badanie przesiewowe sekwencji białka w celu ustalenia, czy reszty lizyny są obecne w domenie (domenach) zewnątrzkomórkowej. Nie wszystkie reszty lizyny w domenie zewnątrzkomórkowej mogą być jednakowo dostępne dla biotyny ze względu na fałdowanie białek. W związku z tym należy przeprowadzić biotynylację białek w stanie stacjonarnym, a następnie western blotting, nie tylko w celu określenia obfitości białka w stanie stacjonarnym na powierzchni komórki, ale także w celu zbadania wykonalności testów opartych na biotynylacji dla białka będącego przedmiotem zainteresowania.
Ten protokół jest zoptymalizowany do badania endocytozy i recyklingu dzikiego typu CFTR w ludzkich komórkach nabłonka dróg oddechowych CFBE41o- hodowany na 24 mm półprzepuszczalnych podporach wzrostu na granicy powietrze-ciecz9,10,13-15. CFTR polaryzuje się do domeny błony wierzchołkowej; W związku z tym protokół opisuje biotynylację domeny błony wierzchołkowej. Biotynylacja domeny błony podstawno-bocznej będzie wymagana do badania endocytozy i recyklingu białek polaryzujących się z błoną podstawno-boczną. Protokół testu endocytarnego opisany w tym manuskrypcie ma 6 warunków: tylko biotynylacja (BT = czas zero; próbka a); kontrola GSH (GSH; próbka b); oraz endocytarne punkty czasowe 2,5, 5,0, 7,5 lub 10 minut (próbki c; Tabela 1). Liczba i/lub długość endocytarnych punktów czasowych w protokole może być modyfikowana w razie potrzeby.
Test recyklingu jest wykonywany po określeniu punktu czasowego, w którym endocytoza interesującego nas białka osiąga maksimum podczas liniowego wzrostu sygnału endocytarnego. Ten punkt czasowy zostanie wykorzystany do załadowania pęcherzyków endocytarnych białkiem będącym przedmiotem zainteresowania przed wywołaniem recyklingu. Czas ten jest zależny od białka i może się różnić w zależności od typu komórki i warunków hodowli15. Wcześniej ustaliliśmy, że endocytoza CFTR osiągnęła plateau w punkcie czasowym 7,5 minuty w ludzkich komórkach nabłonka dróg oddechowych CFBE41o- stabilnie eksprymując CFTR15. Natomiast endocytoza CFTR osiągnęła plateau w punkcie czasowym 5,0 min w komórkach HEK293 stabilnie eksprymujących CFTR13. Protokół testu recyklingu opisany w tym manuskrypcie ma 5 warunków: tylko biotynylacja (BT = czas zero; próbka a); kontrola GSH (GSH; próbka b); 5,0 min endocytoza (Endo; próbka c), 5,0 min endocytoza, a następnie 2,5 lub 5,0 min punkty czasowe recyklingu (Rec; próbki d; Tabela 2). Liczba i/lub długość punktów czasowych recyklingu w protokole może być modyfikowana w zależności od potrzeb.
Protokół
1. Komórki rozsiewające
- Wstępnie potraktuj filtry 24 mm 10% kolagenem I (przygotuj 10% kolagenu I w Minimal Essential Medium (MEM), pokryj całą powierzchnię filtra roztworem kolagenu, inkubuj w świetle UV w temperaturze pokojowej przez 30 min, a następnie w inkubatorze do hodowli komórkowych w temperaturze 37 ºC przez 1 godzinę, odessaj nadmiar kolagenu po inkubacji).
- Przygotować pożywkę do hodowli komórkowych (MEM zagazowany CO2 przez 20 min, 10% płodowa surowica bydlęca (FBS), 50 U/ml penicyliny, 50 U/ml streptomycyny, 2 mM L-glutamina, 0,5 μg/ml puromycyny)
- Wysiewaj komórki CFBE41o- na sześciu filtrach 24 mm odpowiednio do endocytozy i recyklingu przy 1 x 10⁶ / filtr.
- Usuń pożywkę wierzchołkową następnego dnia po wysiewie i podawaj codziennie tylko od strony podstawno-bocznej.
- Podawać selekcyjną pożywkę antybiotykowo-ujemną na 24 godziny przed eksperymentem. Przeprowadzić doświadczenie na komórkach CFBE41o- 6-10 dni po wysianiu.
2. Przygotowania przed eksperymentem (podobne dla testu endocytozy i recyklingu)
- Ustaw miejsce na ławce w chłodni. Testy endocytarne i badania recyklingu powinny być przeprowadzane w chłodni, z wyjątkiem inkubacji w temperaturze 37 °C. Płytki zawierające filtry o średnicy 24 mm powinny być umieszczone bezpośrednio na blacie stołu w chłodni.
- Włączyć inkubator o temperaturze 37 ºC.
- Przygotować 500 ml PBS++ o pH 8,2 (sól fizjologiczna buforowana fosforanami (PBS) firmy Dulbecco, 1 mM chlorek magnezu i 0,1 mM chlorek wapnia, pH 8,2) i przechowywać 250 ml w temperaturze 37 °C w inkubatorze i 250 ml w temperaturze 4 °C w chłodni.
- Napełnić studzienki na płytce 6-dołkowej PBS++, pH 8,2, 37 °C i przechowywać w inkubatorze w temperaturze 37 °C.
- Napełnić studzienki na kolejnej płytce 6-dołkowej PBS++, pH 8,2, 4 °C i przechowywać w chłodni w temperaturze 4 °C.
- Przygotować 100 ml PBS++ o pH 8,6 w temperaturze 4 °C i przechowywać w chłodni.
- W ciągu 30 minut od etapu biotynylacji przygotować biotynę zawierającą wiązanie dwusiarczkowe i ester NHS o stężeniu 0,8 mg/ml w PBS++, pH 8,2, 4 °C (objętość buforu biotyny powinna pokrywać całkowicie całą powierzchnię filtra); zalecamy filtr 1,5 ml/24 mm.
- Przygotować 100 ml buforu GSH w wodzie o pH 8,6 i schłodzić do 4 ºC (75 mM chlorku sodu, 1 mM chlorku magnezu i 0,1 mM chlorku wapnia, 50 mM GSH, 80 mM wodorotlenku sodu i 10% FBS). GSH i wodorotlenek sodu należy dodać tuż przed eksperymentem. Sprawdź pH i dostosuj do 8,6; Wodorotlenek sodu neutralizuje grupy karboksylowe i deprotonuje połowę reszt cysteiny zawartych w glutationie. Jest silnie buforowany w pKa tej cysteiny, które wynosi 8,64. (Przygotować tę samą objętość buforu GSH do testu recyklingu).
- Przygotować 50 ml buforu do lizy o pH 8,2 i utrzymywać w temperaturze 4 °C (25 mM HEPES, pH 8,2, 1% (v/v) Triton X-100, 10% (v/v) glicerolu); dodać Complete koktajl inhibitorów proteazy na 50 ml buforu do lizy i schłodzić do 4 °C; sprawdzić pH po dodaniu Complete, ponieważ może wystąpić spadek pH.
- Przygotować bufor próbek Laemli z 100 mM naziemnej telewizji cyfrowej.
- Przygotuj 1x Bufor do biegania (100 ml 10x Bufor do biegania, 900 ml wody).
- Przygotować 1x bufor transferowy i schłodzić do 4 ºC (100 ml 10x buforu transferowego bez dodecylosiarczanu sodu (SDS), 200 ml metanolu, 700 ml wody).
3. Test endocytarny
CFTR polaryzuje się do domeny błony wierzchołkowej; w ten sposób protokół opisuje biotynylację domeny błony wierzchołkowej. Biotynylacja domeny błony podstawno-bocznej będzie wymagana do badania endocytozy białek polaryzujących się z błoną podstawno-boczną.
Przebieg pracy: Biotynylacja białek powierzchniowych komórek w temperaturze 4 ºC → Ogrzewanie do 37 ºC w celu obciążenia pęcherzyków endocytarnych białkami biotynylowanymi → Chłodzenie do 4 ºC w celu zatrzymania transportu endocytarnego → Redukcja wiązania dwusiarczkowego w biotynie przyłączonej do białek, które pozostały na powierzchni komórki → → Liza komórek Izolacja biotynylowanych (tj. endocytozy) białka ze streptawidyną agarozą → Elucja biotynylowanych białek z agarozy streptawidyny → Elektroforeza białek i western blotting.
- Przenieść płytkę zawierającą sześć filtrów 24 mm (tabela 1: próbki a-c) z inkubatora do hodowli komórkowych i szybko przenieść na płytkę wypełnioną zimnym (4 °C) PBS++, pH 8,2 na lodzie.
- Pozwól, aby PBS++ przelał się przez powierzchnię wierzchołkową, aby szybko pokryć całą powierzchnię. Przynieś talerz na lodzie do chłodni i ustaw na blacie.
- Szybko wyjmij PBS++, obracając płytkę do góry nogami, przytrzymując filtry na miejscu, aby zapobiec wypadnięciu. Dodać ~2 ml PBS++ po stronie wierzchołkowej i podstawno-bocznej.
- Umyj filtry ~2 ml zimnego PBS++, pH 8,2 3x przez 2 min. Odsysaj płukanie z jednej strony na raz, wierzchołkowo lub podstawno-bocznie i dodawaj świeży PBS++, pH 8,2 z jednej strony na raz.
- Odessać ostatnie płukanie i dodać 1 ml PBS++ o pH 8,2 po stronie podstawno-bocznej. Dodać 1,5 ml buforu biotyny na stronę wierzchołkową i inkubować w ciemności przez 30 minut. Unikaj rozlewania na stronę przeciwległą.
- Odessać bufor biotyny od strony wierzchołkowej i przemywać PBS++, pH 8,2 3x przez 2 min.
- Odłożyć na inną płytkę dwa filtry (tabela 1: próbki a i b), dodać ~2 ml PBS++ o pH 8,2 po stronie wierzchołkowej i podstawno-bocznej i przechowywać w chłodni. Pozostałe 4 filtry należy umieścić na jednej płytce (Tabela 1: próbki c) i dodać ~2 ml PBS++ pH 8,2 po stronie wierzchołkowej i podstawno-bocznej każdego filtra. Umieścić płytkę na lodzie i przyłożyć do blatu obok inkubatora o temperaturze 37 °C.
- Szybko przenieś filtry z lodu na płytkę w inkubatorze o temperaturze 37 ºC wypełnionym wstępnie podgrzanym PBS++ o pH 8,2 i inkubuj dokładnie po jednym filtrze przez 2,5, 5,0, 7,5 lub 10 minut, pokrywając całą powierzchnię każdego filtra ciepłym PBS++ pH 8,2.
- Podczas inkubacji całkowicie napełnić cztery studzienki w płytce na lodzie zimnym (4 ºC) PBS++ pH 8,2.
- Po wskazanym czasie inkubacji obrócić każdy filtr do góry nogami, aby opróżnić ciepły (37 ºC) PBS++, pH 8,2 i przenieść na płytkę na lodzie. Dodaj zimny PBS++, pH 8,2, aby przelać się przez stronę wierzchołkową i szybko pokryć całą powierzchnię każdego filtra.
- Po przeniesieniu filtrów do lodu przenieś płytkę do chłodni i ustaw na blacie.
- Odessać PBS++ z obu stron we wszystkich filtrach (próbki a-c) i napełnić stronę podstawno-boczną 1 ml PBS++ pH 8,6. Dodać 1,5 ml PBS++ o pH 8,6 na wierzchołkową stronę filtra a (Tabela 1: próbka a).
- Zredukować wiązanie dwusiarczkowe w biotynie przyłączonej do wierzchołkowych białek błonowych za pomocą buforu GSH (pH 8,6) w filtrach b i c (Tabela 1: próbka b i c).
- Dodać 1,5 ml buforu GSH na stronę wierzchołkową, inkubować przez 15 minut i powtórzyć sześć razy.
- Utrzymuj 1 ml PBS++ pH 8,6 po stronie podstawno-bocznej. Unikaj rozlewania bufora na stronę podstawno-boczną.
- Po zakończeniu procedury 3.15 przemyć wszystkie filtry (Tabela 1: próbki a, b i c) krótko PBS++ pH 8,2 2x, odessać płukanie od strony wierzchołkowej i podstawno-bocznej i ustawić płytkę z filtrami pod kątem 45°, aby ponownie odsączyć cały płyn i odsysanie.
- Umieść płytkę płasko na blacie stołu i dodaj 500 μl buforu do lizy po wierzchołkowej stronie każdego filtra i inkubuj w chłodni, wstrząsając przez 15 minut.
- Zeskrob komórki gumowym policjantem i zbierz je do probówki Eppendorf o pojemności 1,5 ml.
- Wirować z prędkością 14 000 x g przez 10 minut w temperaturze 4 °C.
- Przenieść supernatanty do świeżych probówek o pojemności 1,5 ml i wyrzucić granulki. Supernatanty nazywane są obecnie lizatami całokomórkowymi (WCL).
- Dodać 100 μl buforu do próbek Laemli z naziemną telewizją cyfrową do 50 μl WCL (10% całego WCL) i inkubować w temperaturze 37 °C przez 30 minut (próbki WCL).
- Przygotować 200 μl podwielokrotności 50% agarozy streptawidyny i usunąć cały bufor do przemywania za pomocą igły 27 G podłączonej do ssania: przemyć 2x 1 ml PBS, kulki granulek z pulsacyjnym wirowaniem między płukaniami; przemyć raz 1 ml buforu do lizy w celu zrównoważenia przed dodaniem WCL; wysuszyć agarozę przed dodaniem WCL.
- Pozostałą ilość WCL inkubować z przemytą agarozą streptawidyny (zwiększyć objętość do 1,2 ml za pomocą buforu do lizy i obracać w ciemności przez co najmniej 2 godziny lub O/N w chłodni).
- Przemyć kompleksy białkowe agarozy i biotynylu streptawidyny trzykrotnie 1 ml buforu do lizy (bufor do lizy nie musi zawierać Complete podczas mycia), pulsacyjnie odwirować agarozę między praniami i odessać do sucha po ostatnim płukaniu.
- Inkubować kompleksy białkowe streptawidyny agarozy i biotynylu z 65 μl buforu próbki Laemli z DTT w temperaturze 85 °C przez 5 minut.
- Pulsacyjnie wirować i zbierać eluowane biotynylowane kompleksy białkowe.
- Załadować 7,5% żeli 40 μl próbek WCL i całą objętość próbek biotynylowanych (BT) na studzienkę.
- Uruchom żele pod napięciem 120 V w SDS zawierającym bufor do pracy.
- Przenieś białka do membrany PVDF pod napięciem 90-95 V przez 1,5 godziny (do <400 A) w buforze transferowym bez SDS.
- Zablokuj 5% beztłuszczowego mleka w TBS-T 0,1% O/N. Osusz obie błony mysim przeciwciałem monoklonalnym anty-CFTR CFF596 i kozim przeciwciałem drugorzędowym sprzężonym z HRP.
- Wykonaj chemiluminescencję. Ponownie przebadać obie błony przeciwciałem anty-ezrynowym lub anty-aktyną.
4. Test recyklingu
Workflow: Biotynylacja białek powierzchniowych komórek w temperaturze 4 ºC → Ogrzewanie do 37 ºC w celu załadowania pęcherzyków endocytarnych biotynylowanymi białkami → Chłodzenie do 4 ºC w celu zatrzymania transportu endocytarnego → Redukcja wiązania dwusiarczkowego w biotynie przyłączonym do białek, które pozostały na powierzchni komórki → Ogrzewanie do 37 °C, aby umożliwić biotynylowane białka z pęcherzyków endocytarnych na powierzchnię komórki → Chłodzenie do 4 ºC w celu zatrzymania transportu endocytarnego → Redukcja wiązania dwusiarczkowego w biotynie przyłączonej do białek, które poddały się recyklingowi na powierzchnię komórki → Liza komórek → Izolacja białek biotynylowanych (tj. tych, które nie zostały poddane recyklingowi) za pomocą agarozy streptawidyny → Elucja biotynylowanych białek z agarozy streptawidyny → Elektroforeza białek i western blotting.
- Biotynylować wierzchołkowe białka powierzchniowe w pięciu filtrach 24 mm (Tabela 2: próbki a-d) zgodnie z procedurą opisaną w teście endocytarnym (sekcja 3.1-3.6).
- W komorze chłodniczej umieścić na nowej płytce dwa filtry (tabela 2: próbki a i b), dodać ~2 ml PBS++ o pH 8,2 po stronie wierzchołkowej i podstawno-bocznej i przechowywać w chłodni .
- Pozostałe 3 filtry należy przechowywać na jednej płytce (Tabela 2: próbki c i d) w ~2 ml PBS++ pH 8,2 po wierzchołkowej i podstawno-bocznej stronie każdego filtra. Umieścić płytkę z filtrami c i d na lodzie i przynieść, aby ułożyć ją na stole przed inkubatorem o temperaturze 37 °C.
- Szybko przenieść filtry z płytki na lodzie na płytkę wypełnioną wstępnie podgrzanym PBS++ o pH 8,2 w inkubatorze i przechowywać przez 5,0 min.
- Podczas inkubacji napełnić 3 dołki płytki lodem zimnym (4 ºC) PBS++ pH 8,2.
- Po 5,0 minutach inkubacji w temperaturze 37 °C przenieść filtry na płytkę na lodzie. Pozwól, aby zimny PBS++ o pH 8,2 przelał się przez stronę wierzchołkową i szybko pokrył całą powierzchnię każdego filtra.
- Przynieś talerz na lodzie do chłodni i ustaw na blacie.
- Odessać PBS++ pH 8,2 z obu stron filtrów a, b, c i d i dodać 1 ml PBS++ pH 8,6 po stronie podstawno-bocznej.
- Filtry a i b należy przechowywać oddzielnie od filtrów c i d. Dodać 1 ml PBS++ pH 8,6 do wierzchołkowej strony filtrów a i b.
- Zredukuj wiązanie dwusiarczkowe w biotynie pozostające na powierzchni komórki w filtrach b, c i d, postępując zgodnie z procedurą opisaną w teście endocytarnym (kroki 3.13-3.15).
- Umyj krótko filtry b, c i d PBS++ pH 8,2 2x i zastąp świeżym PBS++, pH 8,2. Umieścić filtry d na nowej płytce i przyłożyć lód do blatu stołu na zewnątrz inkubatora o temperaturze 37 °C.
- Szybko przenieść filtry z płytki na lodzie na płytkę w inkubatorze wypełnionym wstępnie podgrzanym PBS++ o pH 8,2 i inkubować po jednym filtrze dokładnie przez 2,5 lub 5,0 minut, jak opisano powyżej w krokach 4.4-4.9.
- Zredukować wiązanie dwusiarczkowe w biotynie przyłączonej do wierzchołkowych białek błonowych za pomocą buforu GSH po drugiej inkubacji w temperaturze 37 °C w filtrach d, jak opisano w ppkt 4.4, z wyjątkiem tego, że podczas tego etapu zostaną wykonane tylko trzy 15-minutowe inkubacje z buforem GSH. Podczas tego kroku utrzymuj filtry a, b i c o pH PBS++ 8,6 po stronie wierzchołkowej i podstawno-bocznej.
- W przypadku lizy komórek i Western blot postępuj zgodnie z procedurami opisanymi w teście endocytarnym (kroki 3.16-3.31).
Wyniki
Endocytozę CFTR badano w komórkach CFBE41o-, hodowanych na filtrach pokrytych kolagenem (Ryc. 1). Oznakowany biotyną CFTR wizualizowano za pomocą western blottingu przy użyciu monoklonalnego przeciwciała mysiego, klon 596, oraz przeciwciała anty-mysiego sprzężonego z peroksydazą chrzanu, stosując system wykrywania western blottingu, a następnie chemiluminescencji. Ilościowe oznaczenie CFTR oznakowanego biotyną przeprowadzono metodą densytometryczną, wykorzystując ekspozycje mieszczące się w zakresie liniowym dynamiki filmu. Endocytozę CFTR obliczano po odjęciu tła i wyrażano jako procent oznakowanego biotyną CFTR w poszczególnych punktach czasowych po ogrzaniu do 37 ºC w porównaniu z ilością oznakowanego biotyną CFTR obecnego w czasie zero (Ryc. 1A i 1B). Endocytoza CFTR była liniowa w przedziale 0–7,5 min. Doświadczenia, w których tło CFTR było >10%, wykluczono z powodu niewystarczającej skuteczności leczenia GSH (Ryc. 1D).
Recykling CFTR badano w komórkach HEK293 hodowanych w szalkach do hodowli tkankowej pokrytych kolagenem (Rycina 2). Endocytoza CFTR była liniowa w przedziale od 0,0 do 5,0 min i osiągnęła maksimum w punkcie czasowym 5,0 min (Rycina 2A), dlatego komórki inkubowano przez 5,0 min w 37 ºC w celu załadowania pęcherzyków endocytycznych białkami biotynylowanymi, w tym CFTR (Ryciny 2B i 2C). Recykling endocytozowanego CFTR obliczano jako różnicę między ilością biotynylowanego CFTR po pierwszym i drugim zabiegu z GSH.
Tabela 1. Testy endocytozy.
| Endocytoza | BT | GSH | Endo-2,5 | Endo-5,0 | Endo-7,5 | Endo-10,0 |
| Próbka | a | b | c2,5 | c5,0 | c7,5 | c10,0 |
| Biotyna | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2,5 min | 5,0 min | 7,5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tabela 2. Test recyklingu.
| Recykling | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| Próbka | a | b | c | d2.5 | d5.0 |
| Biotyna | + | + | + | + | + |
| 1. 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1. GSH | (-) | (-) | + | + | + |
| 2. 37 ºC | (-) | (-) | + | + | + |
| 2. GSH | (-) | (-) | (-) | 2.5 min | 5 min |
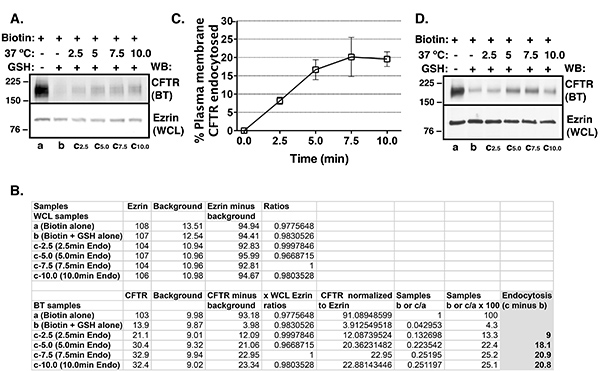
Rycina 1. Podsumowanie testów endocytozy przeprowadzonych w celu określenia endocytozy CFTR w komórkach CFBE41o-. Komórki hodowano na filtrach pokrytych kolagenem. Przykładowe wyniki western blot (A), reprezentatywne wartości densytometrii (B) oraz podsumowanie eksperymentów (C) demonstrujące endocytozę CFTR jako funkcję czasu. Do określenia ilości CFTR w błonie komórkowej zastosowano selektywną biotynylację powierzchni komórek oraz western blot. Ilość białka oznaczono densytometrycznie, wykorzystując ekspozycje mieszczące się w zakresie liniowym filmu. W czasie zero ilość biotynylowanego (BT) CFTR uznano za 100% (Tabela 1: próbka a). W czasie zero ilość BT CFTR pozostała po traktowaniu GSH uznano za tło (próbka b; proszę zwrócić uwagę, że jest to inne tło niż to, które odejmowano od wszystkich próbek, jak pokazano na Ryc. 1B). Tło CFTR wynosiło 6,7 ± 0,9% (średnia ± SEM) w eksperymentach włączonych do analizy. Tło CFTR odejmowano od BT CFTR po 2,5, 5,0, 7,5 lub 10 minutach ogrzewania w 37 ºC (próbka c minus próbka b). Endocytozę CFTR wyrażono jako procent CFTR pozostającego biotynylowanego w punktach czasowych 2,5, 5,0, 7,5 lub 10 minut po odjęciu tła. Endocytoza CFTR była liniowa w przedziale od 0 do 7,5 minuty. Ilość ezyryny w całych lizatach komórkowych (WCL) użyto jako kontrolę obciążenia. 4 eksperymenty/grupa. Eksperymenty, w których tło CFTR było >10%, wykluczono z powodu niewystarczającego traktowania GSH (D). Ilość biotynylowanego CFTR w kontroli z GSH (próbka b) w wykluczonym eksperymencie wyniosła 14,5%.
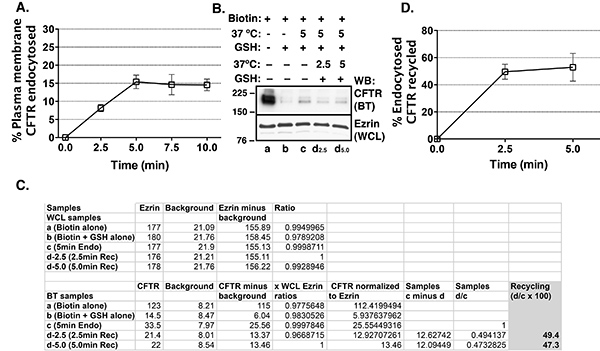
Rycina 2. Podsumowanie prób endocytozy i recyklingu przeprowadzonych w komórkach HEK293 stabilnie eksprymujących CFTR. Komórki hodowano w płytach do hodowli tkankowej pokrytych kolagenem. Podsumowanie danych pokazujących, że endocytoza CFTR była liniowa w przedziale 0–5 min (A). W związku z tym w próbach recyklingu pęcherzyki endocytozalne były obciążane biotynylowanymi (BT) białkami, w tym CFTR, poprzez podgrzanie do 37 ºC przez 5 min. Ilość białka oznaczano densytometrycznie, stosując ekspozycje mieszczące się w zakresie liniowym dynamiki filmu. Przedstawicielnikowy western blot (B), przykładowe wartości densytometrii (C) oraz podsumowanie eksperymentów (D) demonstrujące recykling CFTR w funkcji czasu. W czasie zero ilość BT CFTR uznano za 100% (Tabela 2: próbka a). W czasie zero ilość BT CFTR pozostała po leczeniu GSH uznano za tło CFTR (próbka b; należy zauważyć, że jest to inne tło niż to, które odejmowano od wszystkich próbek, jak pokazano na C). Eksperymenty, w których tło CFTR było >10%, wykluczono z powodu niewystarczającej skuteczności leczenia GSH. Pęcherzyki endocytozalne były obciążane BT białkami, w tym CFTR, poprzez inkubację w 37 ºC przez 5 min, po której stosowano leczenie GSH w celu odcięcia biotyny od białek pozostałych w błonie komórkowej (próbki c i d). Ilość BT CFTR po 5 min podgrzewania w 37 ºC i po leczeniu GSH reprezentuje CFTR endocytozowany (próbka c). Po 5 min podgrzewania w 37 ºC i pierwszym leczeniu GSH komórki ponownie podgrzewano w 37 ºC przez 2,5 lub 5,0 min, aby umożliwić recykling endocytozowanych białek do błony komórkowej, a biotynę na zrecyklowanym CFTR usuwano za pomocą drugiego leczenia GSH (próbki d). W tym momencie jedynie CFTR, który nie uległ recyklingowi z endosomów do błony komórkowej, pozostał biotynylowany (próbki d). Recykling CFTR obliczano jako różnicę między BT CFTR po pierwszym leczeniu GSH (próbka c) a po drugim leczeniu GSH po 2,5 i 5,0 min (próbki d) i wyrażano jako procent endocytozowanego CFTR. Recykling CFTR był szybki i osiągnął maksimum po 2,5 min. Ilość ezryny w całych lizatach komórkowych (WCL) użyto jako kontrolę obciążenia. 3 eksperymenty/grupa.
Dyskusja
Powodzenie testów endocytarnych i recyklingu zależy od skutecznej biotynylacji CFTR w błonie plazmatycznej. Biotyna musi być przygotowana bezpośrednio przed użyciem, ponieważ ugrupowanie estrowe NHS łatwo ulega hydrolizie i staje się niereaktywne. Co więcej, etap biotynylacji wymaga ścisłej kontroli temperatury na poziomie 4 ºC, aby zatrzymać transport białek. Jeśli temperatura zostanie podniesiona na etapie biotynylacji powyżej 4 ºC, może dojść do transportu białek, co prowadzi do biotynylacji zmiennych ilości CFTR.
Powodzenie testów endocytarnych i recyklingowych zależy również od skutecznej redukcji wiązania dwusiarczkowego w biotynylowanym CFTR pozostałym na błonie plazmatycznej. Ilość CFTR pozostającej biotynylowana po leczeniu GSH powinna wynosić <10% całkowitego biotynylowanego CFTR w czasie zero. Eksperymenty, w których ilość biotynylowanego CFTR wynosi >10% w próbce kontrolnej GSH, powinny być wyłączone. Rysunek 1D pokazuje "nieudany" eksperyment, w którym ilość biotynylowanego CFTR w kontroli GSH wynosiła 14,5%. Niedostateczna redukcja wiązania dwusiarczkowego w biotynylowanym CFTR może być wtórna do słabej kontroli temperatury podczas eksperymentu. Jeśli temperatura zostanie podniesiona podczas obróbki GSH powyżej 4 ºC, może dojść do transportu białek, a biotynylowany CFTR endocytozowany w wyniku niezamierzonego wzrostu temperatury zwiększy tło CFTR. Alternatywnie, niewystarczająca redukcja wiązania dwusiarczkowego w biotynylowanym CFTR może wynikać ze skrócenia okresu półtrwania GSH w roztworze wodnym spowodowanego utlenianiem w powietrzu lub niewłaściwym pH. Jak wcześniej ustalono, GSH pozostaje silnie buforowany przy pH 8,64. Z naszego doświadczenia wynika, że sześć 15-minutowych zabiegów buforem GSH zmniejszyło wiązanie dwusiarczkowe o ponad 90%, skuteczniej niż jeden 90-minutowy zabieg.
Hodowla komórkowa wymaga szczególnej uwagi. Biotyna musi dotrzeć do domeny błony komórkowej w nienaruszonych komórkach, w których dochodzi do ekspresji białka będącego przedmiotem zainteresowania. Wykorzystaliśmy testy endocytarne i recyklingowe oparte na biotynylacji do zbadania endocytozy i recyklingu CFTR ulegającego ekspresji w domenie błony wierzchołkowej. Testy te mogą być również wykorzystywane do badania endocytarnego transportu białek zlokalizowanych w domenie błony podstawno-bocznej w komórkach hodowanych na półprzepuszczalnych podporach wzrostu. Komórki nabłonkowe, które tworzą wielowarstwy, nie nadają się do tych testów, ponieważ biotyny i GSH dotrą tylko do górnej warstwy komórek, aby wykryć białka błony wierzchołkowej lub dolnej warstwy, aby wykryć białka błony podstawnej. Komórki nabłonkowe hodowane na plastiku mogą być bardziej podatne na zmywanie podczas testów. Losowa utrata komórek podczas eksperymentu pogorszy wyniki. Zalecamy okresowe badanie integralności monowarstwy pod mikroskopem w eksperymentach, w których komórki są hodowane w plastikowych naczyniach do hodowli tkankowych. Powlekanie naczyń z kultur tkankowych kolagenem może zwiększyć przyleganie komórek.
Próbki białek biotynylowanych powinny być rutynowo badane pod kątem zanieczyszczenia białkami wewnątrzkomórkowymi. Wykrycie białek wewnątrzkomórkowych w próbkach białek biotynylowanych może wskazywać na niewystarczające przemycie kompleksów białkowych agaroza–biotynylacja streptawidyny po inkubacji z WCL. Dlatego pierwszym krokiem jest zwiększenie wydajności prania. Co więcej, obecność komórek z naruszoną integralnością błony komórkowej umożliwi dostęp biotyny do białek wewnątrzkomórkowych. Western blot dla białka ulegającego ekspresji wyłącznie w przedziale wewnątrzkomórkowym, takim jak retikulum endoplazmatyczne, może być wykorzystany do wykrycia biotynylacji białek wewnątrzkomórkowych. Alternatywnie, białka cytoszkieletu, takie jak aktyna lub ezryna, mogą być używane do badania pod kątem zanieczyszczenia próbek białek biotynylowanych białkami wewnątrzkomórkowymi. Białka cytoszkieletu mogą tworzyć kompleksy z białkami transbłonowymi, a niewielkie ilości białek cytoszkieletu mogą być wykrywane w próbkach białek biotynylowanych. Jednak z naszego doświadczenia wynika, że stosunek biotynylowanej/WCL ezryny lub aktyny wynosi <1:1,000, a zatem białka te są odpowiednie do określania integralności błony komórkowej w testach opartych na biotynylacji.
Reakcję biotynylacji można wygasić glicyną lub Tris w celu usunięcia nieprzereagowanego odczynnika biotynylacji, jak wcześniej opisano17. Ponadto GSH można hartować jodoacetamidem6. Z naszego doświadczenia wynika, że nieprzereagowany odczynnik biotynylacyjny i GSH można skutecznie usunąć poprzez delikatne przemycie PBS++ bez użycia odczynników hartujących.
Wybór streptawidyny w porównaniu z agarozą neutrawidyny w celu wyizolowania biotynylowanych kompleksów białkowych powinien być ustalany indywidualnie dla każdego przypadku. Z naszego doświadczenia wynika, że agaroza streptawidyny zapewnia skuteczną izolację biotynylowanych kompleksów białkowych przy minimalnym wiązaniu białek niebiotynylowanych, w przeciwieństwie do agarozy neutrawidyny, gdzie niespecyficzne wiązanie występuje na poziomach zakłócających wyniki testu (obserwacja niepublikowana).
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
To badanie było wspierane przez granty U.S. National Institutes of Health (NIH) R01HL090767, R01HL090767-02S1, P30 DK06010, oraz The NepCure Foundation Established Investigator New Direction Grant, (dla A.S.-U.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Odniesienie do komórek | 10,11,13,14,15 | ||
| HEK293 | komórka referencyjna 13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamina | Cellgro | 25-005-CL | |
| Penicylina | Sigma | P0781 | |
| Streptomycyna | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol Kolagen bydlęcy Rozwiązanie Odczynniki | |||
| s Sól fizjologiczna buforowana fosforanami (PBS) | Gibco | 14190 | |
| Chlorek wapnia | Sigma | C3306 | |
| Chlorek magnezu | Sigma | M2670 | |
| Chlorek sodu | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotyna | Pierce | 21331 | |
| Zredukowany L-glutation (GSH) | Sigma | G6529 | |
| Żywica pareptawidyno-agarozowa | Thermo Fisher | 20353 | |
| Wodorotlenek sodu | Sigma | 224165 | |
| Surowica bydlęca płodu | Gemini Bioscience | 100-106 | |
| Milli-Q woda | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glicerol | FisherScientific | G33 | |
| Laemli Bufor do próbek | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Kompletna proteaza Koktajl inhibitorowy | Roche | 1697498 | |
| kulki streptawidyny | Thermo Scientific | 20353 | |
| Chemiluminescencja | Perkin Elmer | NEL104001EA | |
| Odczynniki Odtłuszczone | |||
| mleko w proszku | Goździk | Nie | |
| Tween-20 | BioRad | 170-6539 | |
| Sól fizjologiczna buforowana trisem (TBS) | BioRad | 170-6435 | |
| Albumina surowicy bydlęcej (BSA) | Gibco | 15120 | |
| Pierwotna i wtórna | |||
| Przeciwciała przeciwko monoklonalnemu przeciwciału anty-CFTR 596 dla myszy | Blotting | ||
| Bufor roboczy 10x | BioRad | 161-0772 | |
| Bufor transferowy 10x ( bez SDS) | BioRad | 161-0771 | |
| Metanol | Fisher | A4129 | |
| Licznik redlic | Beckman Coulter | Z1Redlica Redlica | |
| Standardowa komórka Sprzęt do | |||
| Kaptur do hodowli komórkowych ze światłem | |||
| Kolby | |||
| Filtry Transwell-24mm | Corning | 3412 | |
| cm naczynia | |||
| pH-metr | |||
| 15 ml i 50 ml stożkowe probówki | |||
| Probówki | |||
| Gumowy policjant | |||
| Chłodnia | |||
| Wiaderka do lodu i lód | |||
| 27 G Igły | |||
| 37 º C Inkubator | |||
| Termometr | |||
| Wirówka | |||
| Wirówka | |||
| Sprzęt | |||
| Film deweloperski | |||
| GE | Amersham | 28-9068-36 | |
| Membrana | PVDFOprogramowanie Millipore | IPVH00010 | |
| ImageJ | NIH |
Bibliografia
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Przedruki i uprawnienia
