Metoda "cut-open Vaseline gap" służy do uzyskiwania niskoszumowych zapisów prądów jonowych i bramkujących z zależnych od napięcia kanałów jonowych wyrażonych w oocytach Xenopus z wysoką rozdzielczością kinetyki szybkich kanałów. Przy niewielkich modyfikacjach fluorometria cęgów napięciowych może być sprzężona z protokołem rozcięcia oocytów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Technika zacisku napięciowego z otwartą szczeliną wazelinową Xenopus z fluorometrią
W tym artykule
Podsumowanie
Streszczenie
Technika zacisku napięcia z przerwą wazelinową oocytów (COVG) pozwala na analizę właściwości elektrofizjologicznych i kinetycznych heterologicznych kanałów jonowych w oocytach. Nagrania z konfiguracji cut-open są szczególnie przydatne do rozwiązywania prądów bramkowania o niskiej wielkości, szybkiej aktywacji i dezaktywacji prądów jonowych. Główne zalety w porównaniu z techniką dwuelektrodowego zacisku napięciowego (TEVC) obejmują zwiększoną prędkość cęgowania, lepszy stosunek sygnału do szumu oraz możliwość modulowania środowiska wewnątrzkomórkowego i zewnątrzkomórkowego.
Tutaj wykorzystujemy kanał sodowy ludzkiego serca (hNaV1.5), wyrażany w oocytach Xenopus, aby zademonstrować układ i protokół typu cut-open, a także modyfikacje, które są wymagane do dodania możliwości fluorometrii zacisków napięciowych.
Właściwości szybko aktywujących kanałów jonowych, takich jak hNaV1.5, nie mogą być w pełni rozwiązane w pobliżu temperatury pokojowej za pomocą TEVC, w którym cała błona oocytu jest zaciśnięta, co utrudnia kontrolę napięcia. Jednak w technice cut-open izolacja tylko niewielkiej części błony komórkowej pozwala na szybkie zaciskanie wymagane do dokładnego rejestrowania szybkiej kinetyki, jednocześnie zapobiegając spływaniu kanału w dół związanym z technikami zaciskania krosowego.
W połączeniu z techniką COVG, kinetyka kanałów jonowych i właściwości elektrofizjologiczne mogą być dalej badane za pomocą fluorometrii zacisków napięcia, gdzie ruch białka jest śledzony poprzez koniugację cysteiny z zewnątrzkomórkowo zaaplikowanymi fluoroforami, insercję genetycznie kodowanych białek fluorescencyjnych lub włączenie nienaturalnych aminokwasów do obszaru zainteresowania1. Te dodatkowe dane dostarczają informacji kinetycznych na temat zależnych od napięcia reorganizacji konformacyjnych białka poprzez zmiany w mikrośrodowisku otaczającym cząsteczkę fluorescencyjną.
Wprowadzenie
Specjalistyczne techniki zaciskania napięcia pozwalają na rejestrację prądów jonowych przy kontrolowanych potencjałach błonowych. Powszechnie stosowane techniki zaciskania napięcia dwuelektrodowego (TEVC) oraz patch clamp dostarczają wiarygodnych informacji elektrofizjologicznych na temat właściwości wielu kanałów jonowych. Jednak obie te metody posiadają wady, które uniemożliwiają pozyskanie wiarygodnych danych dla szybkich napięciowo zależnych kanałów sodowych oraz innych szybko aktywujących się kanałów w błonach, takich jak błony oocytów Xenopus. W związku z tym laboratoria Bezanilli i Stefaniego opracowały technikę zaciskania napięcia z przerwą wazelinową w oocytach rozciętym (COVG)2. Technika ta była szeroko stosowana do rejestracji kanałów Na+, K+ i Ca2+3-8.
Podczas rejestracji COVG membrana oocyta wykazującego ekspresję białka heterologicznego jest podzielona na trzy regiony. Dane dotyczące prądu jonowego są rejestrowane z górnego regionu oocyta, podczas gdy kąpiel otaczająca ten region jest utrwalona do potencjału sterującego, który można łatwo i szybko zmieniać. Region środkowy zapobiega prądom upływu poprzez utrwalenie go do tego samego potencjału co region górny9. Region dolny to miejsce, w którym następuje otwarcie oocyta (metoda cut-open) przy użyciu roztworu saponiny lub kaniuli. Chemiczne lub manualne otwarcie membrany w regionie dolnym umożliwia kontrolę potencjału wewnętrznego, który jest utrwalony do masy, i sprawia, że wnętrze komórki staje się ciągłe z roztworem w dolnej komorze. Perfuzja roztworów do dolnej komory pozwala na regulację właściwości środowiska wewnętrznego, natomiast wymiana roztworu w górnej komorze zmienia otoczenie zewnętrzne.
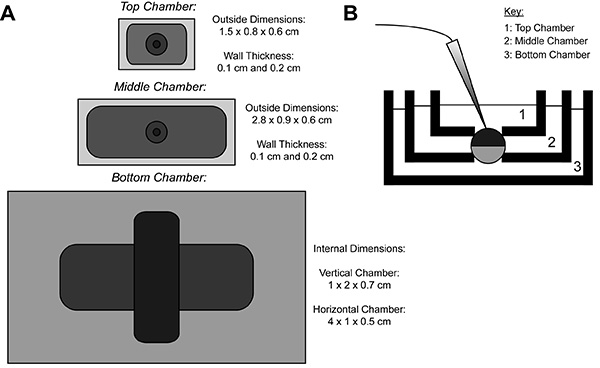
Rycina 1. Schemat układu kąpieli do utrwalania napięcia z otwartym oocytem (Cut-Open Voltage-Clamp). (A) Widok z góry na trzy oddzielone od siebie kąpiele. Wymiary komór dla COVG są przedstawione na rysunku. (B) Widok z boku układu kąpieli w pozycji testowej. Kliknij tutaj, aby wyświetlić większy obraz.
Zalety techniki COVG obejmują niski szum prądowy (1 nA przy 3 kHz), kontrolę składu jonowego mediów zewnętrznych, możliwość modulowania mediów wewnętrznych, wysoką rozdzielczość czasową (stała czasu zaniku przejściowego pojemności wynosząca 20-100 μsec) oraz stabilne rejestracje przez kilka godzin9. Wadami jest konieczność zastosowania specjalistycznego sprzętu oraz większy stopień trudności w wykonaniu w porównaniu do dwuelektrodowej rejestracji napięciowej (TEVC)10.
Chociaż podejście COVG wymaga wysoce specjalistycznego sprzętu i skomplikowanych elementów proceduralnych, pozwala ono na pozyskanie cennych danych elektrofizjologicznych. Dane te, takie jak prądy bramkowania o szybkiej kinetyce oraz prądy ogonowe4, mogą być rejestrowane bez niektórych problemów związanych z innymi protokołami clampingu napięciowego, w tym bez zjawiska run-downu kanałów. Niewielkie modyfikacje układu COVG mogą umożliwić zastosowanie kontrolerów temperatury oraz fluorometrii z clampingiem napięciowym (VCF). Włączenie elementów fluorometrii z clampingiem napięciowym do zestawu COVG może zwiększyć ilość uzyskanych danych, zapewniając możliwość monitorowania zmian konformacyjnych białek przy jednoczesnej rejestracji prądu11-13.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Wstępna konfiguracja sprzętu
- Umieść stół oraz manipulator mikroelektrod na systemie izolacji drgań (np. stole pneumatycznym) z otaczającą klatką Faradaya, aby zapobiec zakłóceniom elektrycznym i mechanicznym.
- Przylutuj sześć granulek Ag/AgCl do sześciocalowych odcinków przewodu 24 AWG. W jednym z tych odcinków (który zostanie podłączony do P1) wpleć drugi przewód, tworząc kształt litery „Y”. Na końcach każdego przewodu przylutuj złoty pin BNC, dołączony do wzmacniacza.
- Podłącz pięć granulek Ag/AgCl przylutowanych do przewodów 24 AWG do przedwzmacniacza Bath/Guard (P1, P2, CC, GS1 oraz GS2). Podłącz granulkę Ag/AgCl „I” do przedwzmacniacza „I”, a drugi przewód wychodzący z P1 do przedwzmacniacza V2.
- Podłącz wzmacniacz do jednostki akwizycji danych zgodnie z instrukcjami w instrukcjach obsługi sprzętu.
- Umieść i przyklej żywicą epoksydową termistory kontrolera temperatury. Przeciągnij termistor bloku przez otwór w metalowym stelażu bezpośrednio nad centrum elementu grzewczego/chłodzącego. Umieść i przyklej żywicą epoksydową termistor kąpieli w otworze wywierconym w korpusie przewodzącej temperaturze komory dolnej, bardzo blisko, ale nie dotykając roztworu.
2. Oocyt i przygotowanie wstępne
- Aby zarejestrować kanał ekspresowany heterologicznie, taki jak hNaV1.5, należy zsyntezować mRNA (pochodzące z hSCN5a) i wstrzyknąć je do oocytu Xenopus około 4-5 dni przed przeprowadzeniem Protokołu 4. W przypadku hSCN5a maksymalna ekspresja jest uzyskiwana po inkubacji przez 4-5 dni w temperaturze 19 °C. Szczegółowe instrukcje dotyczące przygotowania oocytów i mRNA oraz wstrzykiwania do oocytów znajdują się w pracach Richardsa i Dempskiego14 oraz Cohen et al.15.
- Przed rozpoczęciem Protokołu 4 należy przeprowadzić chlorkowanie drutu AgCl i granulek AgCl. W tym celu jeden koniec drutu oraz granulki należy umieścić w wybielaczu na co najmniej 20 min, a najlepiej przez całą noc (O/N). Po zachlorkowaniu granulki należy przymocować do rozdzielacza za pomocą kleju.
Uwaga: Do chlorkowania drutu i granulek można również wykorzystać przepływ prądu przez druty. Technika ta zwiększy szybkość chlorkowania, ale wymaga użycia większej ilości sprzętu. Dalsze instrukcje znajdują się w sekcji Techniki chlorkowania drutów srebrnych16.
3. Przygotowanie mostka agarowego
- Przygotuj co najmniej sześć mostków agarowych, rozgrzewając jeden koniec kapilary borokrzemianowej w płomieniu palnika. Upewnij się, że koniec rurki kapilarnej znajduje się w górnej części niebieskiego płomienia. Wykonaj dodatkowe mostki na wypadek uszkodzenia pierwotnych.
- Po rozgrzaniu rurki kapilarnej użyj pęsety, aby zagiąć rurkę pod kątem 90°. Staraj się uzyskać łagodne zakrzywienie zamiast gwałtownego załamania, ponieważ może to znacząco zmniejszyć średnicę wewnętrzną szkła, co utrudni napełnianie i zwiększy oporność mostka.
- Postępując w ten sam sposób, wykonaj drugie zgięcie pod kątem 90° w tym samym kierunku, 25 mm poniżej pierwszego zgięcia rurki kapilarnej.
Uwaga: Dokładna długość mostka nie ma znaczenia, pod warunkiem, że rozmiary mostków są spójne, jednak docelowo długości powinny być odpowiednie dla zestawu, w którym będą używane. Należy pamiętać, że oporność mostka jest proporcjonalna do jego długości i powinna być zminimalizowana. - Po ostygnięciu rurek kapilarnych użyj przecinaka do szkła z diamentową końcówką, aby przyciąć „odnogi” mostka do długości około 5 mm.
- Wsuń kawałki drutu platynowego do rurek kapilarnych trzech mostków „dostarczających prąd”, aby poprawić wydajność poprzez zmniejszenie oporności agaru17. Odetnij nadmiar drutu platynowego tak, aby żaden fragment nie wystawał poza rurkę.
Uwaga: Ze względu na wysoką cenę platyny, odzyskuj i ponownie wykorzystuj drut z uszkodzonych mostków. - Wciśnij drut platynowy głębiej do rurki kapilarnej za pomocą narzędzia z cienką końcówką, np. końcówki mikropipety, tak aby drut był o 1 mm krótszy od szkła na obu końcach rurki kapilarnej.
- Przygotuj 100 ml 1 M NMDG buforowanego 1,2 g HEPES. Użyj pH-metru i dodawaj proszek wodnego MES, aż do uzyskania pH 7,4 (~10 g). Po osiągnięciu pH 7,4 wyjmij elektrodę pH. Odstaw 40 ml roztworu jako roztwór do przechowywania.
- Dodaj agar granulowany, aby uzyskać 2-3% mieszaninę agarową. Mieszaj i podgrzewaj, aż roztwór agaru się rozpuści i stanie się przejrzysty. Nie przegrzewaj ani nie doprowadzaj roztworu do wrzenia, ponieważ stanie się on zbyt lepki, co utrudni napełnianie mostków.
- Przelej roztwór agaru do nowego zlewka i dodaj mały mieszadło magnetyczne. Kontynuuj podgrzewanie i mieszanie z umiarkowaną prędkością.
- Wkładaj mostki kapilarne pojedynczo, odnogami do góry. Z czasem mostki wypełnią się agarem. Alternatywnie można napełnić mostki, wtłaczając roztwór agaru za pomocą strzykawki z dołączoną małą końcówką pipety.
- Gdy w mostkach nie będzie już pęcherzyków powietrza, wyjmij je z roztworu agaru i połóż na ręczniku papierowym do wyschnięcia. Mostki z pozostałymi pęcherzykami można potrząsać pęsetą, aby ułatwić ich wydostanie się.
Uwaga: Zastygły agar z pęcherzykami można całkowicie usunąć, zanurzając mostki w wrzącej wodzie. Po usunięciu agaru użyj linii próżniowej, aby usunąć pozostałą wodę. Mostki mogą być następnie ponownie wykorzystane do zabiegu agarowego. - Po wyschnięciu usuń nadmiar agaru z mostków. Dodaj 60 ml wody do 40 ml roztworu rezerwowego i umieść mostki w roztworze do przechowywania.
4. Przygotowanie stanowiska do nacięcia
- Włącz dopływ wody do kontrolera temperatury, a następnie przełącznik zasilania kontrolera temperatury. Odczekaj, aż temperatura kąpieli osiągnie określoną wartość (19 °C).
- Wytnij mikroelektrody z kapilar borokrzemianowych za pomocą wyciągacza mikroelektrod, aby uzyskać oporność 0,2-0,5 MΩ.
Uwaga: Obniżenie oporności pipety przyspiesza czas stabilizacji potencjału (clamping). Jednak pipety o niższej oporności częściej uszkadzają oocyt. Należy przeprowadzić eksperymenty, aby określić optymalną wartość oporności pipety dla każdego zastosowania. - Przygotuj roztwór saponiny, mieszając 0,125 g suchej saponiny z 50 ml roztworu wewnętrznego. Pozwoli to uzyskać roztwór 0,25%. Delikatnie odwróć naczynie, aby wymieszać zawartość.
- Pod mikroskopem stereoskopowym nanieś niewielką ilość wazeliny wokół krawędzi otworu na górnej ściance komory środkowej oraz na dolnej ściance komory górnej, używając przedmiotu o bardzo cienkim czubku.
Uwaga: „Pierścień” z wazeliny pomoże utrzymać oocyt w miejscu nad otworem i ułatwi utworzenie uszczelnienia. Jednak zbyt duża ilość wazeliny może uwięzić pęcherzyki powietrza i uniemożliwić dotarcie roztworów do powierzchni oocytu. - Wlej roztwór 3 M KCl do szczelin w kolektorze utrzymującym pastylki Ag/AgCl w taki sposób, aby roztwór nie wypływał ze szczelin, ale pastylki i końce nóżek mostków były przykryte. Usuń nadmiar kropel KCl, aby zapobiec niepożądanym połączeniom elektrycznym między szczelinami.
- Wlej roztwór zewnętrzny do dolnej i środkowej komory kąpieli.
- Umieść mostki agarowe w szczelinach kolektora z pastylkami AgCl tak, aby jedna nóżka każdego mostka znajdowała się w każdej szczelinie. Drugą nóżkę mostków umieści się później w odpowiednich komorach (P1, P2, CC góra; GS1, GS2 środek (ochronna); I dół). Upewnij się, że w szczelinach GS2, P2 i I znajdują się mostki z drutu platynowego.
Uwaga: Przed włożeniem do kąpieli w komorze upewnij się, że mostki są przemyte wodą destylowaną i całkowicie suche. - Włącz system akwizycji danych oraz komputer. Uruchom oprogramowanie do rejestracji.
5. Procedura otwarcia
- Zainstaluj górną i środkową komorę dla oocytów bez oocytu. Przesuń górną komorę poza oś, aby otwory w obu komorach nie pokrywały się. Wypełnij wszystkie komory roztworem zewnętrznym i umieść wszystkie elektrody w ich odpowiednich komorach.
Uwaga: Podczas instalacji komór nie dociskaj górnej komory do samego końca. Upewnij się, że między obiema komorami pozostaje bardzo mała szczelina. Przesunięcie komór zwiększa rezystancję układu komór, aby lepiej symulować obecność komórki. Proces ten, nazywany „bilansowaniem mostków”, kompensuje potencjały przesunięcia, które mogą wynikać z niejednorodności mostków agarowych.- Wyłącz polecenie zewnętrzne (external command) oraz oba zaciski (clamps). Sprawdź odczyt prądu na wzmacniaczu. Za pomocą małego śrubokręta wyreguluj offset P z tyłu głowicy bath/guard do zera prądu.
- Przełącz przełącznik bath/guard na wzmacniaczu na tryb aktywny (active) i wyreguluj offset GS, aby uzyskać zerowy prąd.
- Powtarzaj operację między trybem „aktywnym” a „pasywnym”, aż oba będą blisko zera (< 100 nA).
- Zdejmij górną komorę i przenieś oocyt do środkowej komory kąpieli za pomocą pompki pipetującej. Upewnij się, że oocyt jest ustawiony nad otworem w centrum kąpieli.
Uwaga: Przygotowując oocyt do VCF, umieść oznakowaną komórkę w komorze biegunem zwierzęcym (ciemniejszą stroną) skierowanym do góry. Orientacja komórki nie ma znaczenia, jeśli VCF nie jest wykonywane. - Usuń nadmiar roztworu zewnętrznego z dolnej kąpieli za pomocą aspiratora, aby stworzyć uszczelnienie między oocytem a powierzchnią kąpieli.
- Umieść górną komorę kąpieli nad oocytem tak, aby otwór w komorze znajdował się centralnie nad oocytem. Kciukiem i środkowym palcem powoli wywieraj nacisk na komorę, aż zostanie ona mocno dociśnięta do oocytu, tak aby tylko niewielka część błony była wystawiona na działanie górnej kąpieli przez otwór.
Uwaga: Oocyt może wybrzuszyć się pod naciskiem górnej komory. Nie przykładaj nadmiernej siły do górnej komory, ponieważ spowoduje to pęknięcie oocytu. Jako alternatywę dla palców do wywierania nacisku w dół można zastosować końcówki pęsety umieszczone w przeciwległych rogach górnej komory. - Dodaj roztwór zewnętrzny do górnej i dolnej kąpieli, aż będą prawie pełne.
- Umieść wolne końce mostków agarowych w roztworze zewnętrznym każdej kąpieli, jak pokazano na Rysunku 2 (rozmieszczenie mostków). Upewnij się, że każdy mostek spoczywa w prawidłowym miejscu kąpieli. (Mostek I w dolnej kąpieli, mostki GS1 i GS2 w środkowej kąpieli oraz mostki P1, P2 i CC w górnej kąpieli). Przełącz przełącznik bath/guard na wzmacniaczu na tryb aktywny.
Uwaga: Upewnij się, że nie ma połączeń 3 M KCl między mostkami, ich wgłębieniami a komorami rejestracyjnymi. Ponadto upewnij się, że mostki są ukształtowane tak, aby były uniesione ponad roztworami w komorze rejestracyjnej.
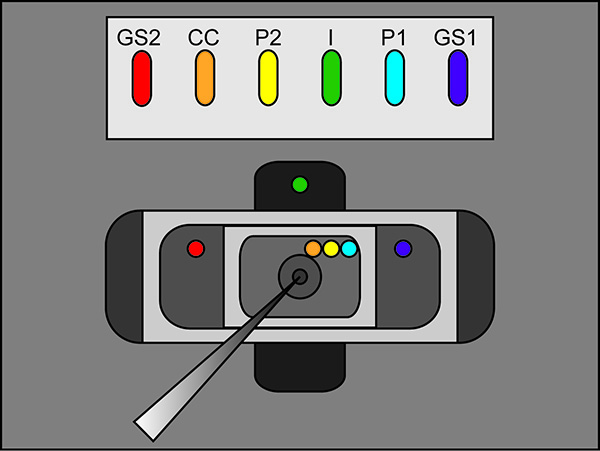
Rysunek 2. Diagram rozmieszczenia mostków agarowych. Miejsca rozmieszczenia wolnych końców mostków agarowych w poszczególnych kąpielach. Kliknij tutaj, aby wyświetlić większy obraz. - Uruchom protokół testowy w oprogramowaniu rejestrującym. Jeśli impuls przy zastosowaniu 100 mV wykazuje przemieszczenie pionowe poziomego odcinka między dwoma szczytami, które jest większe niż 100 nA (co odpowiada 0,3 MΩ przy ustawieniu bath/guard na pasywny), zwiększ szczelność pokrywy kąpieli. Przykład idealnego impulsu testowego znajduje się na Rysunku 3.
Uwaga: Protokół testowy emituje impuls napięcia, aby sprawdzić, czy pokrywa kąpieli jest wystarczająco szczelna i czy wszystkie komponenty zostały poprawnie zmontowane. Alternatywnie można użyć funkcji testowej wzmacniacza.
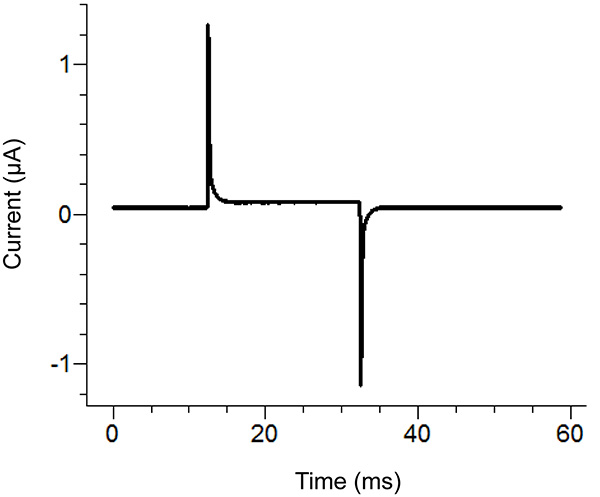
Rysunek 3. Idealny impuls testowy z oprogramowania rejestrującego. Impuls testowy powinien wyglądać podobnie do powyższego, w zależności od zastosowanego protokołu. Prąd podtrzymujący (centralna linia bazowa) powinien być bliski zeru. Kliknij tutaj, aby wyświetlić większy obraz. - Usuń roztwór zewnętrzny z dolnej kąpieli i zastąp go roztworem saponiny. Zachowaj ostrożność, aby uniknąć tworzenia pęcherzyków podczas dodawania saponiny. Aby zapewnić maksymalną wymianę, zastosuj ssanie na przeciwległym końcu dolnej kąpieli podczas dodawania roztworu.
- Po dodaniu roztworu saponiny obserwuj powtarzający się impuls testowy. Jeśli szczyt protokołu testowego zmniejszy się lub zniknie, jest to znak, że pod oocytem znajduje się pęcherzyk powietrza. W takim przypadku całkowicie usuń roztwór saponiny, a następnie go zastąp.
Uwaga: Permeabilizacja jest zazwyczaj kompletna w ciągu 30 s przy użyciu świeżego roztworu saponiny. Roztwory mogą mieć trudności z dotarciem do komórki, jeśli obecne są uwięzione pęcherzyki lub jeśli warstwa pęcherzykowa pozostaje na słabo strawionym oocycie. Oocyt został spermeabilizowany (otwarty), gdy nachylenie skoku napięcia maleje (wzrost stałej czasowej zaniku).
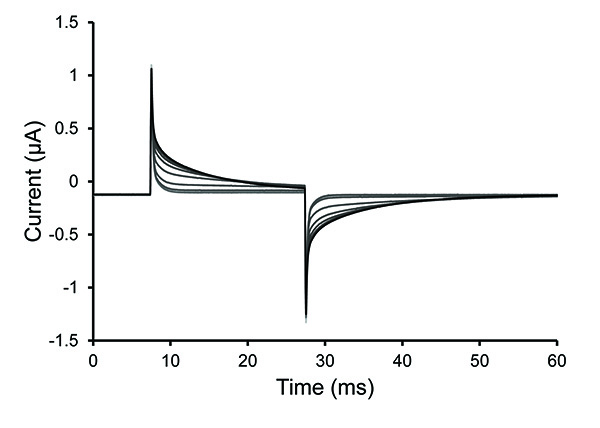
Rysunek 4. Przebiegi impulsu testowego podczas permeabilizacji oocytu. Wybrane przebiegi z protokołu impulsu testowego po wprowadzeniu 0,25% roztworu saponiny do dolnej komory oocytu. Wzrost stałej czasowej zaniku widoczny na przebiegach świadczy o zwiększeniu permeabilizacji oocytu. Kliknij tutaj, aby wyświetlić większy obraz. - Po spermeabilizowaniu komórki usuń roztwór saponiny i wypełnij kąpiel roztworem wewnętrznym. Zatrzymaj protokół testowy.
Uwaga: Chociaż saponina umożliwia dostęp do wnętrza komórki poprzez permeabilizację błony, wyrównanie stężeń jonów między dolną kąpielą a cytoplazmą oocytu drogą dyfuzji jest procesem bardzo powolnym. Proces ten może trwać kilkanaście minut w zależności od warunków (Rysunek 5). - Sprawdź, czy w kąpielach nie ma zbyt wysokiego poziomu roztworu, a między wgłębieniami kolektora nie ma skrystalizowanego KCl, ponieważ mogą one powodować zwarcia i nieprawidłowe działanie.
- Użyj zmodyfikowanej strzykawki, aby wstrzyknąć 3 M KCl do mikroelektrody. Kilkakrotnie uderz palcem w mikroelektrodę, podtrzymując ją pozostałymi palcami.
Uwaga: Krok ten jest niezbędny do usunięcia wszelkich uwięzionych pęcherzyków powietrza wewnątrz mikroelektrody. - Zamontuj elektrodę wypełnioną KCl na ramieniu mikromanipulatora, wsuwając drucik w otwarty koniec mikroelektrody. Wciśnij koniec mikroelektrody w uchwyt drucika i upewnij się, że elektroda nie jest luźna. Dokręć mocowanie elektrody.
Uwaga: Upewnij się, że drucik ma równomierną powłokę AgCl, aby elektroda działała prawidłowo. - Przesuń ramię w pozycję nad kąpielami oocytów i dokręć zaciski, aby zapobiec dalszemu ruchowi ramienia.
- Za pomocą pokręteł manipulatora powoli opuszczaj elektrodę do kąpieli. Upewnij się, że w tym momencie nie jest stosowany żaden impuls testowy i funkcja testu błony nie jest aktywowana.
Uwaga: Zanim końcówka elektrody zostanie zanurzona w cieczy, V1-V2 w clampie napięciowym wskaże dodatnie napięcie. Po zanurzeniu końcówki elektrody w cieczy, woltomierz w clampie napięciowym powinien zmienić wartość na bliską zeru. W przypadku pomiarów VCF elektroda musi zbliżać się do komórki pod dość małym kątem, aby zostawić miejsce dla obiektywu. Nakłucie komórki elektrodą poza centrum, bliżej krawędzi wyizolowanego fragmentu błony, pomaga również uniknąć kolizji obiektywu z elektrodą. - Zatrzymaj opuszczanie elektrody. Ustaw potencjał offsetowy elektrody na zero, naciskając przycisk V1, a następnie redukując napięcie V1 do zera poprzez regulację offsetu V1. Dodatkowo wykonaj taką samą regulację dla V2. Różnica potencjałów V1-V2 powinna wynosić 000 mV.
- Przełącz z powrotem na V1 i włącz test Z (Z-test), aby zmierzyć rezystancję elektrody. Wartość będzie stopniowo spadać i zbliżać się do rzeczywistej rezystancji. Dąż do uzyskania wartości rezystancji 0,2-0,5 MΩ.
- Kontynuuj opuszczanie elektrody w kierunku widocznego fragmentu oocytu w górnej kąpieli. Gdy mikroelektroda znajdzie się bardzo blisko oocytu, obserwuj odczyt V1-V2, aby zobaczyć, kiedy elektroda wnika do oocytu; napięcie V1-V2 stanie się ujemne w momencie wniknięcia mikroelektrody do komórki.
Uwaga: Wartość wyświetlana w tym momencie jest potencjałem błonowym komórki i będzie zależeć od ekspresjonowanych kanałów oraz użytych roztworów. Zbyt głębokie wprowadzenie mikroelektrody uszkodzi błonę komórkową. - Otwórz protokół zbierania danych w oprogramowaniu rejestrującym.
- Włącz przełącznik clampa w clampie napięciowym i dostosuj potencjał do wartości polecenia (np. -100 mV), regulując pokrętło znajdujące się na głowicy „I”.
- Włącz przełącznik kompensacji pojemności i rezystancji.
- Włącz przełącznik „Test” w obszarze „Commands” clampa napięciowego. Użyj oscyloskopu do wizualizacji sygnału. Wyreguluj pokrętła kompensacji Cm w segmencie kondycjonowania sygnału, aby zredukować przejściowe efekty pojemnościowe na oscyloskopie. Nie kompensuj szczytów nadmiernie, do stopnia, w którym pojawiają się dodatkowe szczyty odwrotne lub szczyty zaczynają rozwijać krzywiznę sigmoidalną, co może wprowadzić artefakty do pomiaru.
- Gdy pojemność zostanie ręcznie zredukowana do zadowalającego poziomu, wyłącz przełącznik testowy.
- Rozpocznij protokół rejestracji danych w oprogramowaniu rejestrującym.
6. Prace porządkowe
- Po zakończeniu rejestracji wyłącz wszystkie przełączniki w clampie napięciowej, w tym przełącznik clamp oraz przełączniki kąpieli/osłony (bath/guard).
- Za pomocą pęsety usuń mostki agarowe z poszczególnych kąpieli.
- Zdejmij górną kąpiel, a następnie odessij wszystkie roztwory i oocyty ze wszystkich kąpieli.
- Użyj butelki z wodą dejonizowaną, aby wypłukać wszystkie kąpiele, a następnie odessij ciecz za pomocą odkurzacza laboratoryjnego. Powtórz ten krok 3-5 razy.
- Usuń skrystalizowane KCl z mostków i umieść mostki w roztworze do przechowywania. Mostki można ponownie wykorzystywać przez wiele tygodni, pod warunkiem ich prawidłowego przechowywania.
- Odessij roztwór KCl z otworów manifoldu i kilkukrotnie wypłucz manifold wodą dejonizowaną.
- Wyłącz całe wyposażenie, w tym system kontroli temperatury oraz oprogramowanie do rejestracji.
7. Dodanie fluorometrii z zaciskiem napięciowym
- Należy postępować zgodnie z krokami od sekcji 1 do 6 w wcześniej opublikowanym protokole JoVE16 Examining the Conformational Dynamics of Membrane Proteins in situ with Site-directed Fluorescence Labeling: Kliknij tutaj, aby wyświetlić stronę.
- Należy wykonać kroki od sekcji 4 do 5.22 wspomnianego protokołu COVG, używając mikroskopu VCF ustawionego na powiększeniu 4X.
Uwaga: Pomiary VCF wymagają większych komór kąpielowych dla oocytów niż pomiary COVG. (Wymiary niestandardowych komór VCF znajdują się na liście materiałów). Ta większa komora VCF musi umożliwiać jednoczesne umieszczenie obiektywu, mikroelektrody i mostków agarowych. Dodatkowo, aby uzyskać niskie tło podczas zapisów VCF, biegun zwierzęcy (ciemna strona oocytu) musi być skierowany ku górze w komorze.) - Należy ustawić ostrość na górną część oocytu, używając obiektywu imersyjnego 40X.
Uwaga: Przełączenie z obiektywu 4X na 40X wymaga specyficznej geometrii przeciętych komponentów oraz szczególnej ostrożności, aby nie uderzyć w elektrodę, mostki lub komory podczas opuszczania obiektywu 40X. Ponadto, ze względu na zwiększoną objętość w górnej osłonie, należy upewnić się, że objętość kąpieli z górnej osłony nie łączy się z osłoną środkową po ustawieniu obiektywu 40X.) - Należy ustawić ostrość na pierścień wokół obwodu odsłoniętej powierzchni oocytu, tak aby sam szczyt oocytu znajdował się nieco powyżej płaszczyzny ostrości.
Uwaga: Może być konieczna regulacja w płaszczyźnie x-y, aby pole widzenia było w większości wypełnione błoną, a nie komorą. Przesunięcie X-Y najłatwiej osiągnąć, umieszczając mikroskop na stole przesuwnym.) - Należy wprowadzić kostkę filtra do toru optycznego i przełączyć tor światła z okularu na detektor (diodę).
- Należy włączyć źródło światła VCF.
- Należy wyłączyć oświetlenie górne, iluminator światłowodowy oraz inne źródła światła.
Uwaga: Idealnie pomiary VCF powinny być wykonywane w całkowicie ciemnym pomieszczeniu. - Należy uruchomić protokół fluorescencji w oprogramowaniu do rejestracji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rysunek 4 przedstawia zmianę przepuszczalności oocytu po naniesieniu roztworu saponiny na dolną część oocytu. Rysunek 5 obrazuje tempo wymiany roztworu wewnątrzkomórkowego drogą dyfuzji po permeabilizacji saponiną. Do osiągnięcia stanu stacjonarnego wymagane jest 20-40 min2,18.
Rycina 6A przedstawia przebiegi uzyskane zgodnie z protokołem rejestracji. Na rycinie widoczne są prądy jonowe (po odjęciu prądu przeciekowego P/-8) w odpowi...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Technika zacisku napięciowego z przerwą wazelinową w oocytach pozwala na szybkie rozdzielenie danych, niski poziom szumów, zwiększoną kontrolę nad wewnętrznym i zewnętrznym składem roztworu oraz stabilne zapisy w stosunkowo długich protokołach19. Te zalety odróżniają tę technikę od standardowych technik dwuelektrodowych zacisków napięciowych i zacisków krosowych. Chociaż wymagany jest specjalistyczny sprzęt, a protokół jest stosunkowo trudny, po zoptymalizowaniu systemu pojawia się bardzo niewiele problemów. P...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Wszyscy członkowie Laboratorium Inżynierii Molekularnej Uniwersytetu Waszyngtońskiego w St. Louis. Nagroda Burroughs Welcome Fund Career Award na Scientific Interface - 1010299 (dla J.S.).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| katalogowy | marki rozwiązania zewnętrznego | [ostateczna], waga lub objętość | |
| N-metylo-D-glukamina (NMDG) | Sigma-Aldrich | M2004 | 25mM |
| MES Sól sodowa | Sigma-Aldrich | M5057 | 90mM |
| HEPES | Research Products International | H75030 | 20mM |
| Wodorotlenek wapnia | Sigma-Aldrich | 239232 | 2mM |
| MES Hydrat | Sigma-Aldrich | M8250 | zmienna (pH do 7,4) |
| Roztwór | |||
| N-metylo-D-glukamina (NMDG) | Sigma-Aldrich | M2004 | 105mM |
| MES Sól sodowa | Sigma-Aldrich | M5057 | 10mM |
| HEPES | Research Products International | H75030 | 20mM |
| Kwas glikolu etylenowego-bis(2-aminoetyloeter)-N,N,N',N'-tetraoctowy (EGTA) | Sigma-Aldrich | E4378 | 2mM |
| MES Hydrat | Sigma-Aldrich | M8250 | zmienny (pH do 7,4) |
| Roztwór | |||
| KCl | Sigma-Aldrich | 221473 | 110mM |
| Chlorek magnezu | Sigma-Aldrich | M8266 | 1,5mM |
| Keson chlorku wapnia | C021 | 0,8 mM | |
| HEPES | Research Products International | H75030 | 10mM |
| roztwór do pipet | |||
| KCl | Sigma-Aldrich | 221473 | 3M |
| roztwór | |||
| Saponina | Sigma-Aldrich | 47036 | 0,125g |
| wewnętrzna Roztwór | Patrz wyżej | 50 ml | |
| roztworu | |||
| N-metylo-D-glukamina (NMDG) | Sigma-Aldrich | M2004 | 100 ml 1M |
| HEPES | Research Products International | H75030 | 1,2 g |
| MES Hydrat | Sigma-Aldrich | M8250 | zmienna (pH do 7,4) |
| z agaru granulowanego | Międzynarodowy | ||
| NMDG, HEPES, MES Roztwór hydratu | patrz wyżej | 40 ml | |
| wody | 60 ml | ||
| Nazwa materiału / sprzętu | Firma | Numer katalogowy | Komentarze/Opis |
| Wysokowydajny zacisk oocytów | Dagan | CA-1B | |
| System akwizycji danych | Axon CNS& | nbsp; Oscyloskop Digidata 1440A | |
| Tektronix | TDS 210 | ||
| Filtr zasilania do montażu w szafie | APC | G5 | |
| Regulator temperatury kąpieli grzewczej/chłodzącej | Dagan | HCC-100A | |
| PC | Dell | Optiplex 990 | |
| pCLAMP 10.3 Oprogramowanie do cęgów napięciowych | Molecular Devices, LLC | pCLAMP10.3 | |
| TMC Platforma stołowa do kontroli wibracji | TMC | SERIA | |
| TMC Stół powietrzny do kontroli wibracji | TMC | 20 Kolektor danych elektrody | |
| V1/I | Dagan | część mikromanipulatora CA-1B | |
| MX10L | Siskiyou | MX10L | |
| Bath/Guard (I/V) Headstage (z odpowiednimi złączami) | Dagan | część mikroskopu CA-1B | |
| Omano | OM2300S-JW11 | ||
| Kąpiel z kontrolą temperatury | Custom lub Dagan | Custom lub HE-204C | Komora niestandardowa wykonana z materiałów z Cool Polymers (seria D). Dagan zapewnia również etap prefeabrowany (HE-204C). |
| Niestandardowy pojemnik na pelety AgCl | Niestandardowy Niestandardowy | Specjalnie obrabiana | |
| elektroda Ag / AgCl, pelety, 2,0 mm | Warner | E-206 | |
| Zewnętrzna kąpiel oocytów | Niestandardowa lub Dagan | Niestandardowa lub CC-1-T-LB | Niestandardowa obrabiana lub zakupiona od Dagan |
| Internal Oocyte Bath | Custom lub | Dagan Custom lub CC-TG-ND | Niestandardowa obrobiona lub zakupiona od Dagan |
| Kapilary do mostków agarowych i elektrod ciągniętych | Warner | G150T-4 | |
| Obrotowe mocowania do mikroskopu, mikromanipulatora i kąpieli | Siskiyou | SD-1280P | |
| Fiber-Lite | Dolan-Jenner | LMI-600 | |
| Regularny wybielacz | Clorox | 470174-764 | |
| Oocyty Xenopus laevis | Nasco | LM535M (dojrzałe płciowo samice) | |
| 90 Na+ Rozwiązanie zewnętrzne | Zobacz kartę | ||
| 10 Na+ Rozwiązanie wewnętrzne | Zobacz kartę | ||
| 3 M KCL | Zobacz kartę | ||
| Saponin | Sigma-Aldrich | 47036 | |
| NMDG Storage Solution | Zobacz kartę rozwiązań | ||
| Pigazki transferowe 5 ml | SciMart | GS-52 | |
| Zmodyfikowany wtryskiwacz elektrod KCl | BD | 309659 | Plastikowa końcówka strzykawki stopiona, aby umożliwić wstrzykiwanie roztworu do elektrod. Alternatywnie można zakupić Microfil firmy WPI. |
| Microvaccum | Niestandardowe | niestandardowe | |
| kleszcze | VWR | 63040-458 | |
| Narzędzia do obsługi oocytów (pompa do pipet) | VWR | 53502-222 | |
| Butelka z dejonizowaną wodą do spryskiwania | VWR | 16649-911 | |
| Wazelina Petroleum Jelly | Fisher Scientific | 19-086-291 | |
| Dodatkowe materiały wymagane do nagrań VCF: | |||
| Mikroskop VCF | Nikon | Eclipse FN1 | |
| Nikon CFI APO 40XW NIR Obiektyw System | Nikon | N40X-NIR | |
| X-Y do mikroskopów pionowych Sutter | Instruments | MT500-586 | |
| Zewnętrzna kąpiel oocytów VCF | na zamówienie | Obrabiane na zamówienie. Wymiary komory to 2,7 x 1,9 x 0,4 cm. | |
| Wewnętrzna kąpiel oocytów VCF | Niestandardowa | obrabiana na zamówienie. Wymiary komory to 1,6 x 1,6 x 0,4 cm. | |
| Zmodyfikowana kąpiel z kontrolą temperatury | Niestandardowa | komora wykonana z materiałów z chłodnych polimerów (seria D). Wymiary komory wanny ze zmodyfikowanym regulatorem temperatury wynoszą 2,7 x 1,9 x 0,3 cm dla komory poziomej i 1 x 2,5 x 0,5 cm dla komory pionowej. |
Bibliografia
- Kalstrup, T., Blunck, R. Dynamics of internal pore opening in KV channels probed by a fluorescent unnatural amino acid. Proc. Natl. Acad. Sci. U.S.A. 110, 8272-8277 (2013).
- Stefani, E., Bezanilla, F. Cut-open oocyte voltage-clamp technique. Methods Enzymol. 293, 300-318 (1998).
- Muroi, Y., Chanda, B. Local anesthetics disrupt energetic coupling between the voltage-sensing segments of a sodium channel. J. Gen. Physiol. 133, 1-15 (2009).
- Stefani, E., Toro, L., Perozo, E., Bezanilla, F. Gating of Shaker K+ channels: I. Ionic and gating currents. Biophys. J. 66, 996-1010 (1994).
- Wang, S., Liu, S., Morales, M. J., Strauss, H. C., Rasmusson, R. L. A quantitative analysis of the activation and inactivation kinetics of HERG expressed in Xenopus oocytes. J. Physiolt. 502 (Pt 1), 45-60 (1997).
- Neely, A., Garcia-Olivares, J., Voswinkel, S., Horstkott, H., Hidalgo, P. Folding of active calcium channel beta(1b) -subunit by size-exclusion chromatography and its role on channel function. J. Biol. Chem. 279, 21689-21694 (2004).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels I: wild-type skeletal muscle. Na(V)1.4. J. Gen. Physiol. 141, 309-321 (2013).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels II: a periodic paralysis mutation in Na(V)1.4 (L689I). J. Gen. Physiol. 141, 323-334 (2013).
- Taglialatela, M., Toro, L., Stefani, E. Novel voltage clamp to record small, fast currents from ion channels expressed in Xenopus oocytes. Biophys. J. 61, 78-82 (1992).
- Clare, J. J., Trezise, D. J. Expression and analysis of recombinant ion channels : from structural studies to pharmacological screening. , Wiley-VCH. (2006).
- Susan, G. A. Methods in enzymology. 296, Academic Press. 566-578 (1998).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. 3rd edn. , Springer. (2006).
- Cha, A., Bezanilla, F. Characterizing voltage-dependent conformational changes in the Shaker K+ channel with fluorescence. Neuron. 19, 1127-1140 (1997).
- Richards, R., Dempski, R. E. Examining the conformational dynamics of membrane proteins in situ with site-directed fluorescence labeling. J. Vis. Exp. , (2011).
- Cohen, S., Au, S., Pante, N. Microinjection of Xenopus laevis oocytes. J. Vis. Exp. , (2009).
- Techniques for Chloriding Silver Wires. , Available from: http://www.warneronline.com/pdf/whitepapers/chloriding_wire.pdf (1999).
- Raynauld, J. P., Laviolette, J. R. The silver-silver chloride electrode: a possible generator of offset voltages and currents. J. Neurosci. Methods. 19, 249-255 (1987).
- Gagnon, D. G., Bissonnette, P., Lapointe, J. Y. Identification of a disulfide bridge linking the fourth and the seventh extracellular loops of the Na+/glucose cotransporter. J. Gen. Physiol. 127, 145-158 (2006).
- Pantazis, A., Olcese, R. Cut-Open Oocyte Voltage-Clamp Technique. In: Roberts G. (Ed.) Encyclopedia of Biophysics: SpringerReference. Roberts, G. , Springer-Verlag Berlin Heidelberg. New York. (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
