Zapalenie płuc jest jednym z głównych problemów opieki zdrowotnej w krajach rozwijających się i uprzemysłowionych i wiąże się ze znaczną zachorowalnością i śmiertelnością. Pomimo postępów w wiedzy na temat tej choroby, dostępności oddziałów intensywnej terapii (OIOM) oraz stosowania silnych środków przeciwdrobnoustrojowych i skutecznych szczepionek, wskaźniki śmiertelności pozostają wysokie1. Streptococcus pneumoniae jest głównym patogenem pozaszpitalnego zapalenia płuc (CAP) i jedną z najczęstszych przyczyn bakteriemii u ludzi. Patogen ten wyposażony jest w arsenał powierzchniowo eksponowanych adhezyn i czynników wirulencji przyczyniających się do zapalenia płuc i inwazyjnej choroby pneumokokowej (IChP). Ocena roli in vivo czynników przydatności lub wirulencji bakterii ma ogromne znaczenie dla rozwikłania mechanizmów patogeniczności S. pneumoniae. Mysie modele zapalenia płuc, bakteriemii i zapalenia opon mózgowych są wykorzystywane do określenia wpływu czynników pneumokokowych na różnych etapach infekcji. W tym miejscu opisujemy protokół monitorowania rozprzestrzeniania się pneumokoków w czasie rzeczywistym u myszy po infekcjach donosowych lub dootrzewnowych bakteriami bioluminescencyjnymi. Wyniki wskazują na namnażanie i rozprzestrzenianie się pneumokoków w dolnych drogach oddechowych i krwi, które można uwidocznić i ocenić za pomocą systemu obrazowania i dołączonego oprogramowania analitycznego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Śledzenie w czasie rzeczywistym wpływu czynników wirulencji pneumokoków w modelu ostrego mysiego zapalenia płuc z wykorzystaniem bakterii bioluminescencyjnych
W tym artykule
Podsumowanie
Streszczenie
Wprowadzenie
Infekcje dróg oddechowych wywołane przez wirusy lub bakterie pozostają jednym z najczęstszych problemów nabytych przez społeczność lub klinicznych na całym świecie, powodując około jednej trzeciej wszystkich zgonów na świecie. Kluczowymi gatunkami bakterii są Haemophilus influenzae i Streptococcus pneumoniae2. Jednak te gatunki bakterii są zwykle powszechnymi składnikami naturalnej flory dróg oddechowych. W związku z tym nosicielstwo bakterii wiąże się również z pewnym ryzykiem choroby inwazyjnej i zależy od stanu odporności lub predyspozycji poszczególnych osób. Bezobjawowa kolonizacja jest wywoływana przez infekcje inwazyjne. Streptococcus pneumoniae jest głównym patogenem pozaszpitalnego zapalenia płuc (CAP) i jedną z najczęstszych przyczyn bakteriemii u ludzi. U zdrowych osób S. pneumoniae (pneumokoki) są często bezobjawowymi i nieszkodliwymi kolonizatorami górnych dróg oddechowych, gdzie mają do czynienia z niepatogennymi bakteriami zamieszkującej flory, ale także z patogenami, takimi jak Haemophilus spp. lub Staphylococcus aureus i pierwsza linia układu odpornościowego człowieka. Wskaźniki przewozów są najwyższe wśród małych dzieci (37%), a jeszcze wyższe w zatłoczonych ośrodkach opieki dziennej (58%)3-5. Najmłodsza populacja i osoby starsze, otrzymujące pneumokoki poprzez przenoszenie aerozolu od nosicieli i wydzieliny z nosogardzieli6, należą do grup wysokiego ryzyka, a szczepienie jedną ze skoniugowanych szczepionek przeciwko pneumokokom (PCV10 lub PCV13 u dzieci i 23-walentny polisacharyd PPSV23 u dorosłych) jest zalecane w Stanach Zjednoczonych (USA) i wielu krajach europejskich4. PPSV23 obejmuje serotypy odpowiedzialne za ~90% bakteriemicznych chorób pneumokokowych w USA i Europie, zapobiegając tym samym skutecznie inwazyjnym chorobom pneumokokowym (IChP) u dorosłych, podczas gdy PCV obejmują najbardziej rozpowszechnione serotypy u dzieci. W związku z tym IChP wywołane typami szczepionek (VT) są zmniejszone, ale pojawiły się nieszczepionkowe serotypy wykazujące wysoki potencjał wirulencji i oporność na antybiotyki4,7-12. Nosogardziel jako rezerwuar jest punktem wyjścia dla pneumokoków do rozprzestrzeniania się do zatok lub ucha środkowego, inicjując szkodliwe infekcje miejscowe. Co ważniejsze, pneumokoki rozprzestrzeniają się bezpośrednio przez drogi oddechowe do oskrzeli i płuc, powodując zagrażający życiu CAP4,13. Zakażeniom płuc często towarzyszy niszczenie tkanek i bariery pokarmowej, co umożliwia rozprzestrzenianie się patogenu do krwi i powoduje IChP. Częstość występowania CAP i IChP jest najwyższa u osób z obniżoną odpornością lub w skrajnym wieku4,13 lat. Okoliczności odpowiedzialne za przekształcenie się z komensala w patogen o wysokiej zjadliwości są nadal przedmiotem dyskusji. Jednak oprócz zmian w podatności gospodarza i adaptacji ewolucyjnej, którym towarzyszy wyższa zjadliwość i wzrost oporności na antybiotyki, sugeruje się, że decydujący wpływ na infekcje pneumokokowemają 14-16.
Patogen jest wyposażony w wiele zrostów pośredniczących w bliskim kontakcie z komórkami nabłonka błony śluzowej. Po pokonaniu śluzu dróg oddechowych, pneumokokowe przyleganie do komórek gospodarza jest ułatwione poprzez bezpośrednie oddziaływania adhezyn eksponowanych powierzchniowo z receptorami komórkowymi oraz poprzez wykorzystanie składników macierzy zewnątrzkomórkowej lub białek surowicy jako cząsteczek pomostowych4,17,18. Jako wszechstronne patogeny, pneumokoki są również wyposażone w czynniki biorące udział w unikaniu mechanizmów obrony immunologicznej gospodarza. Ponadto mają zdolność przystosowania się do różnych środowisk gospodarza, takich jak płuca, krew i płyn mózgowo-rdzeniowy (CSF), odpowiednio5,17,19,20.
Wpływ czynników bakteryjnych na patogenezę i reakcje zapalne gospodarza jest badany w eksperymentalnych modelach zwierzęcych zapalenia płuc, bakteriemii lub zapalenia opon mózgowych21-25. Pomimo tego, że jest to ludzki patogen, modele te są dobrze ugruntowane w rozszyfrowywaniu tropizmu tkanek pneumokokowych, mechanizmów wirulencji lub ochrony kandydatów na szczepionki przeciwko pneumokokom. Podłoże genetyczne wsobnych szczepów myszy decyduje o podatności na pneumokoki. Stwierdzono, że myszy BALB/c donosowo zakażone pneumokokami są oporne, podczas gdy myszy CBA/Ca i SJL były bardziej podatne na infekcje pneumokokowe22. Oznacza to, że podobnie jak w przypadku ludzi, tło genetyczne i mechanizmy obronne gospodarza determinują wynik infekcji. W związku z tym konieczne są dalsze wysiłki w celu rozwikłania loci oporności w genomie myszy mniej podatnych na infekcje pneumokokowe. Odkrycia doprowadziły do zmian w protokołach wirulencji in vivo. Zamiast wsobnych myszy BALB/c, często używanych w przeszłości, wysoce podatne szczepy myszy niekrewniaczych CD-1 / MF1 są obecnie często wykorzystywane do badania wpływu utraty funkcji zjadliwości pneumokoków lub czynników sprawności26-28. Co więcej, dostępność bioluminescencyjnych pneumokoków i technik obrazowania optycznego pozwala na bioobrazowanie infekcji bioluminescencyjnych w czasie rzeczywistym. W pneumokokach zoptymalizowana kaseta genu luxABCDE (plazmid pAUL-A Tn4001 luxABCDE Kmr) została wprowadzona do pojedynczego miejsca integracji chromosomu za pomocą mutagenezy transpozonów. Bioluminescencyjne pneumokoki zastosowano do oceny tłumienia mutantów pneumokoków z niedoborem czynników zjadliwości lub dopasowania oraz ich translokacji z jednego miejsca anatomicznego do drugiego26,28-31.
Tutaj udostępniamy protokół do obrazowania bioobrazowania zakażeń pneumokokami w mysim modelu zapalenia płuc lub sepsy. Amplifikację i rozprzestrzenianie się bioluminescencyjnych pneumokoków u myszy zakażonych donosowo lub dootrzewnowo można łatwo monitorować w czasie za pomocą systemu obrazowania optycznego i tego samego zwierzęcia w różnych punktach czasowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Opisane tutaj eksperymenty z infekcjami zwierząt muszą być przeprowadzone w ścisłej zgodności z lokalnymi i międzynarodowymi (np. europejskim prawem zdrowotnym Federacji Stowarzyszeń Nauk o Zwierzętach Laboratoryjnych (FELASA)) wytycznymi i przepisami dotyczącymi wykorzystania kręgowców. Eksperymenty muszą zostać zatwierdzone przez lokalną komisję etyczną oraz Instytucjonalny Komitet ds. Opieki nad Zwierzętami. Wszystkie eksperymenty z S. pneumoniae w laboratorium lub infekcje zwierząt są przeprowadzane w komorze bezpieczeństwa biologicznego klasy II.
1. Przygotowanie zakaźnego zapasu bioluminescencyjnych pneumokoków
- Przygotować kultury stokowe pneumokoków w bulionie Todd-Hewitt uzupełnionym o 1% (w/v) ekstraktu drożdżowego i końcowym stężeniem 20% glicerolu w celu przechowywania w temperaturze -80 °C.
- Wysiać niewielką ilość głęboko zamrożonej kultury stokowej pneumokoków na płytkę z agarem z krwią i inkubować bakterie przez 10 hr w temperaturze 37 °C w atmosferze 5% CO2. Płytka z agarem z krwią zawiera odpowiednie antybiotyki, takie jak kanamycyna (150 µg/ml), w przypadku insercji transpozonu kasety genowej luxABCDE do genomu.
- Przesiać świeżą kolonię na nową płytkę z agarem z krwią na maksymalnie 10 hr.
- Zaszczepić pneumokokami podłoże THY uzupełnione o 10% (v/v) inaktywowaną termicznie (30 min w 56 °C) płodową surowicą bydlęcą (FBS) i rozpocząć hodowlę przy OD600 wynoszącej 0,05-0,07.
- Inkubować pneumokoki bez wytrząsania w temperaturze 37 °C i 5% CO2, aż kultura osiągnie OD600 na poziomie 0,35-0,40. Wzrost potrwa od 3 do 4 hr.
- Zebrać pneumokoki poprzez wirowanie przy 3 750 x g przez 10 min i resuspender bioluminescencyjne pneumokoki w solance fosforanowej pH 7,4 (PBS) uzupełnionej o 0,5% FBS.
- Dostosować stężenie inokulum do pożądanej wartości w PBS/10% FBS. Dawka infekcyjna zależy od użytego szczepu pneumokokowego oraz tła genetycznego myszy. Aby zainfekować donosowo myszy CD-1 (outbred) szczepem S. pneumoniae D39lux, dawkę infekcyjną należy dostosować do 1 x 10⁷ CFU w zawiesinie 20 µl uzupełnionej o 90 jednostek hialuronidazy. Nie wstrząsać i nie mieszać pneumokoków w vortexie, ponieważ może to wywołać autolizę.
- Zweryfikować stężenie inokulum poprzez wysianie 10-krotnych rozcieńczeń seryjnych na agar z krwią i zliczenie kolonii po nocnym wzrostu w temperaturze 37 °C w 5% CO2.
- Zweryfikować bioluminescencję inokulum pneumokokowego, mierząc bioluminescencję za pomocą systemu obrazowania optycznego.
2. Infekcja donosowa i doszczepowa myszy bioluminescencyjnymi pneumokokami
- Do modelu ostrego zapalenia płuc i sepsy należy użyć samic myszy outbred w wieku 7-10 tygodni. Masa tych myszy powinna wynosić od 20-30 g.
- Myszy należy znieczulić poprzez doszpikowe wstrzyknięcie ketaminy i ksylazyny. Przygotuj mieszaninę 1,0 mg ketaminy i 0,1 mg ksylazyny w 100 µl sterylnego 0,9 % (w/v) chlorku sodu dla myszy o masie ciała 20 g. Odpowiada to dawce 50 mg/kg masy ciała dla ketaminy oraz 5 mg/kg masy ciała dla ksylazyny. Aby zachować dokładność, należy zważyć myszy przed podaniem środków znieczulających.
- Wstrzyknij mieszaninę do jamy otrzewnej i umieść zwierzęta z powrotem w klatce do czasu zadziałania środków znieczulających i wprowadzenia zwierząt w narkozę. Oddech myszy stanie się bardzo powolny i regularny. Myszy muszą być w pełni znieczulone, aby inokulacja donosowa i inhalacja zawiesiny bakteryjnej nie wywołały kichania, a w konsekwencji utraty inokulum. Można to ocenić, uszczypiając mysz na końcu ogona; w pełni znieczulona mysz nie będzie reagować.
- Delikatnie weź znieczuloną mysz i przytrzymaj ją między palcami a kciukiem z nosem skierowanym do góry (Rycina 1).
- Używając pipety z długimi, wąskimi końcówkami (końcówki do ładowania żelu), nanieś bioluminescencyjne pneumokoki w postaci wielu małych kropli na nozdrza myszy (10 µl/nozdrze)26-29. Mysz nieświadomie wdycha bakterie. Przytrzymaj mysz w pozycji pionowej przez 1-2 min i zaobserwuj, czy mysz kicha, czy zachowuje inokulum.
- Zakaź donosowo myszy CD-1 w wieku 7-10 tygodni dawką zakaźną odpowiednio 1 x 10⁷ lub 7,5 x 10⁷ pneumokoków szczepu D39 i TIGR4, aby monitorować infekcję w czasie rzeczywistym. Granica detekcji dla systemu bez absorpcji przez tkankę gospodarza wynosi około 1 x 10⁶ bakterii bioluminescencyjnych.
- Zakaź myszy doprzewnie (I.P.), aby ocenić i zobrazować bioobrazowo wirulencję pneumokoków w mysim modelu infekcji sepsą. Użyj 5 x 10³ CFU w 100 µl szczepu D39 oraz 1 x 10⁴ szczepu TIGR4. W przypadku podania drogą I.P. myszy nie są znieczulane.
- Zaszczep myszy kontrolne roztworem PBS.

Rycina 1. Zakażenie donosowe myszy CD-1 S. pneumoniae. Kliknij tutaj, aby wyświetlić powiększony obraz.
3. Wizualizacja rozprzestrzeniania się pneumokoków do płuc i krwi za pomocą systemu obrazowania
Obrazowanie rozprzestrzeniania się pneumokoków po infekcji donosowej u samic myszy outbred CD1 w czasie rzeczywistym z wykorzystaniem systemu obrazowania in vivo.
- Włącz system obrazowania i uruchom oprogramowanie do analizy obrazu znajdujące się na skonfigurowanym komputerze.
- System obrazowania inicjuje się automatycznie, a kamera CCD zostaje schłodzona termoelektrycznie do 90 °C przed aktywacją.
- Ustawienia i binning zależą od liczby myszy badanych jednocześnie oraz od natężenia sygnału bioluminescencyjnego. Pole widzenia (FOV) służące do monitorowania bioluminescencji zwierząt jest zmienne, a powiększenie mieści się w zakresie od FOV wynoszącego 22.5 cm do pomiaru pięciu myszy, do FOV wynoszącego 3.9 cm do pomiaru pojedynczej myszy lub wybranych części ciała, takich jak klatka piersiowa lub głowa.
- Rutynowo stosuj czas ekspozycji 1 min, średni stopień binningu oraz FOV wynoszące 22.5 cm (ustawienie D). Najpierw wybierz tryb obrazowania luminescencyjnego, a następnie ustaw parametry obrazowania.
- Emisja sygnału może zależeć od użytego szczepu bakteryjnego, szczepu myszy oraz pigmentacji myszy. W przypadku stosowania np. myszy C57BL/6 należy ogolić klatkę piersiową, co może być korzystne podczas obrazowania rozwoju zapalenia płuc u tych zwierząt.
- Wykonuj obrazowanie zakażonych myszy w wybranych odstępach czasu. W modelu ostrego zapalenia płuc mierz bioluminescencję myszy w odstępach czasu maksymalnie 8-12 hr. Monitoruj również stan dobrostanu zakażonych myszy, obserwując ich wygląd i zachowanie oraz określając ubytek masy ciała.
- Przed pomiarami w komorze znieczul myszy w komorze narkotycznej systemu anestezji urządzenia do obrazowania. Rozpocznij inhalację mieszaniny izofluranu i tlenu i poczekaj, aż myszy będą oddychać powoli i regularnie.
- Umieść znieczulone zwierzęta w komorze obrazowania systemu w pozycji grzbietnej. Kamera CCD znajdująca się na górze komory wykona wówczas obraz dróg oddechowych myszy.
- Umieść nosy zwierząt w rurkach, aby umożliwić inhalację środków znieczulających.
- Dopuszcza się dopływ izofluranu do komory obrazowania via przewód gazowy w celu podtrzymania znieczulenia.
- Aby aktywować kamerę CCD na górze komory i rozpocząć optyczne obrazowanie bioluminescencyjne, naciśnij „Acquire” w oprogramowaniu do obrazowania. Na ekranie natychmiast pojawi się zdjęcie myszy w zamkniętej komorze. Po jednej minucie pomiaru wyświetlane jest nałożenie danych bioluminescencyjnych na zdjęcie.
- Przerwij znieczulenie po pojawieniu się nałożonego obrazu w oknie oprogramowania i umieść myszy z powrotem w klatkach.
- Myszy są monitorowane do czasu wybudzenia.
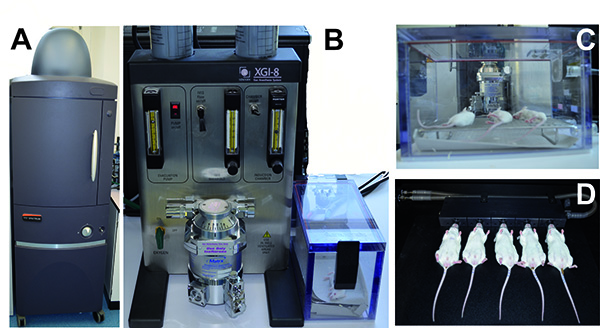
Rycina 2. Znieczulanie i monitorowanie myszy zakażonych bioluminescencyjnymi pneumokokami przy użyciu odpowiednio systemu znieczulania IVIS oraz systemu IVIS Spectrum.A) System obrazowania IVIS Spectrum. B) System znieczulania IVIS z komorą inkubacyjną. C) Myszy znieczulone w komorze inkubacyjnej. D) Myszy znajdujące się w komorze obrazowania IVIS Spectrum z nosami wdychającymi środek znieczulający. Kliknij tutaj, aby wyświetlić większy obraz.
4. Ilościowe oznaczenie i ocena bioluminescencji myszy zainfekowanych bioluminescencyjnym S. pneumoniae
- Wyznacz intensywność bioluminescencji myszy lub wybranego obszaru ciała myszy poprzez ilościowe określenie całkowitej emisji fotonów (photons/sec) przy użyciu oprogramowania do analizy obrazu.
- Wykorzystaj wartości emisji fotonów zawarte w arkuszu danych Excel do przygotowania wykresu. Ze względu na często występującą wysoką zmienność danych w grupach myszy, wygeneruj wykres pudełkowy, aby przedstawić różnice między myszami zakażonymi różnymi szczepami pneumokoków.
- Przedstaw wyniki jako liczbę fotonów na mysz lub alternatywnie jako średnią radiancję (photons/sec/cm2/sr) z wybranego obszaru.
- Dane pomiarowe ROI (obszaru zainteresowania) w trybie fotonowym mogą być ilościowo porównywane między różnymi systemami obrazowania in vivo o różnych ustawieniach kamer, ponieważ pomiary w jednostkach radiancji automatycznie uwzględniają parametry kamery (np. czas integracji, binning, przysłonę f/stop oraz pole widzenia).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Pozyskiwanie i pobieranie metioniny ma kluczowe znaczenie dla utrzymania sprawności pneumokoków w niszy gospodarza32,33. Lipoproteina transportera ABC metioniny jest kodowana w szczepie D39 przez gen spd_0151 (TIGR4: sp_0149) i nazwano ją MetQ 32. Pneumokoki produkują ponadto enzymy biosyntezy metioniny (D39: Spd_0510 – Spd_0511; TIGR4 Sp_0585 – Sp_0586, MetE i MetF). Brak metioniny w chemicznie zdefiniowanym podłożu wpływa na wzrost pneumokoków, podobnie jak brak wiążącej...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wszystkie eksperymenty przeprowadzane na zwierzętach muszą być zatwierdzone przez lokalne władze i komisje bioetyczne. W doświadczeniach dotyczących infekcji in vivo obciążenie bakteryjne w różnych niszach żywicielskich zakażonych zwierząt musi zostać określone w różnych punktach czasowych po zakażeniu. W tych warunkach doświadczalnych zwierzęta muszą zostać uśmiercone przed wyizolowaniem bakterii z krwi, nosogardzieli, płukania oskrzelowo-pęcherzowego lub narządów, takich jak płuca, śledziona i mózg. Aby oblicz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badania w laboratorium były wspierane przez granty z Deutsche Forschungsgemeinschaft (DFG HA 3125/3-2, DFG HA 3125/4-2) oraz Federalnego Ministerstwa Edukacji i Badań Naukowych (BMBF) Medical Infection Genomics (FKZ 0315828A) dla SH.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Rosół Todda Hewitta | Carl Roth, Karlsruhe, Niemcy | X936.1 | |
| Ekstrakt drożdżowy | Carl Roth, Karlsruhe, Niemcy | 2363.2 | |
| Płytki agarowe z krwią | Oxoid, Wesel, Niemcy | PB5039A | |
| Kanamycin | Carl Roth, Karlsruhe, Niemcy | T832.2 | |
| Erytromycyna | Sigma-Aldrich,Taufkirchen, Niemcy | E6376 | |
| Płodowa surowica bydlęca (FBS) | PAA Laboratories, Coelbe, Niemcy | A11-151 | |
| Myszy CD-1, samica | Charles River, Sulzfeld, Niemcy | CD1SIFE06W08W | samice myszy CD-1, sześć do ośmiu tygodni |
| Ketamin 500 mg, roztwór do wstrzykiwań Curamed | Schwabe-Curamed, Karlsruhe, Niemcy | ||
| Rompun 2%, roztwór do wstrzykiwań | Bayer Animal Health, Monheim, Niemcy | ||
| Strzykawki BD Plastipak 1 ml | Becton Dickinson, Heidelberg, Niemcy | 300015 | sterylne strzykawki Luer-Lok z igłą |
| Końcówki do ładowania żelu | PeqLab | 81-13790 | Mµ ltiFlex |
| Końcówki Hialuronidaza | Sigma-Aldrich | H3884-100mg | Hialuronidaza typu IV-S z testu bydlęcego |
| Oxygen | Air Liquide, Dü sseldorf, Niemcy | M1001L50R2A001 | |
| Isoflurane | Baxter, Unterschleiß heim, Niemcy | ||
| pGEM-T Easy | Promega, Mannheim, Niemcy | ||
| Oligonukleotydy | Eurofins MWG, Ebersberg, Niemcy | ||
| Zestaw Qiaprep Spin Midiprep | Qiagen, Hilden, Niemcy | 27104 | |
| Zestaw do oczyszczania DNA PCR | Qiagen, Hilden, Niemcy | 28106 | |
| Oprogramowanie Living Image 4.1 | Caliper Life Sciences/PerkinElmer, Rodgau, Niemcy | ||
| XGI-8 Zacisk systemu znieczulenia gazowego | Nauki przyrodnicze/PerkinElmer, Rodgau, Niemcy | ||
| System obrazowania widma IVIS | Caliper Life Sciences/PerkinElmer, Rodgau, Niemcy | ||
| Biofotometr | Eppendorf AG, Hamburg, Niemcy |
Bibliografia
- Niederman, M. S., et al. Guidelines for the management of adults with community-acquired pneumonia. Diagnosis, assessment of severity, antimicrobial therapy, and prevention. Am. J. Respir. Crit. Care Med. 163, 1730-1754 (2001).
- WHO, The global burden of disease: 2004 update. World Health Organization. , (2008).
- Bogaert, D., et al. Colonisation by Streptococcus pneumoniae and Staphylococcus aureus in healthy children. Lancet. 363, 1871-1872 (2004).
- Gamez, G., Hammerschmidt, S. Combat pneumococcal infections: adhesins as candidates for protein-based vaccine development. Curr. Drug Targets. 13, 323-337 (2012).
- Mook-Kanamori, B. B., Geldhoff, M., vander Poll, T., Dvan de Beek, D. Pathogenesis and pathophysiology of pneumococcal meningitis. Clin. Microbiol. Rev. 24, 557-591 (2011).
- Musher, D. M. How contagious are common respiratory tract infections. N. Engl. J. Med. 348, 1256-1266 (2003).
- Brueggemann, A. B., Pai, R., Crook, D. W., Beall, B. Vaccine escape recombinants emerge after pneumococcal vaccination in the United States. PLoS Pathog. 3, (2007).
- Munoz-Almagro, C., et al. Emergence of invasive pneumococcal disease caused by nonvaccine serotypes in the era of 7-valent conjugate vaccine. Clin. Infect. Dis. 46, 174-182 (2008).
- Whitney, C. G. Impact of conjugate pneumococcal vaccines. Pediatr. Infect. Dis. J. 24, 729-730 (2005).
- Whitney, C. G., et al. Decline in invasive pneumococcal disease after the introduction of protein-polysaccharide conjugate vaccine. N. Engl. J. Med. 348, 1737-1746 (2003).
- Lynch, J. P. 3rd, Zhanel, G. G. Streptococcus pneumoniae: epidemiology and risk factors, evolution of antimicrobial resistance, and impact of vaccines. Curr. Opin. Pulm. Med. 16, 217-225 (2010).
- Singleton, R. J., et al. Invasive pneumococcal disease caused by nonvaccine serotypes among Alaska native children with high levels of 7-valent pneumococcal conjugate vaccine coverage. JAMA. 297, 1784-1792 (2007).
- Dockrell, D. H., Whyte, M. K., Mitchell, T. J. Pneumococcal pneumonia: mechanisms of infection and resolution. Chest. 142, 482-491 (2012).
- Lieberman, T. D., et al. Parallel bacterial evolution within multiple patients identifies candidate pathogenicity genes. Nat. Genet. 43, 1275-1280 (2011).
- Yang, J., Tauschek, M., Robins-Browne, R. M. Control of bacterial virulence by AraC-like regulators that respond to chemical signals. Trends Microbiol. 19, 128-135 (2011).
- Young, B. C., et al. Evolutionary dynamics of Staphylococcus aureus during progression from carriage to disease. Proc. Natl. Acad. Sci. U.S.A. 109, 4550-4555 (2012).
- Kadioglu, A., Weiser, J. N., Paton, J. C., Andrew, P. W. The role of Streptococcus pneumoniae virulence factors in host respiratory colonization and disease. Nat. Rev. Microbiol. 6, 288-301 (2008).
- Voss, S., Gamez, G., Hammerschmidt, S. Impact of pneumococcal microbial surface components recognizing adhesive matrix molecules on colonization. Mol. Oral Microbiol. 27, 246-256 (2012).
- Koppe, U., Suttorp, N., Opitz, B. Recognition of Streptococcus pneumoniae by the innate immune system. Cell. Microbiol. 14, 460-466 (2012).
- Paterson, G. K., Mitchell, T. J. Innate immunity and the pneumococcus. Microbiology. 152, 285-293 (2006).
- Gerber, J., et al. A mouse model of Streptococcus pneumoniae meningitis mimicking several features of human disease. Acta Neuropathol. 101, 499-508 (2001).
- Gingles, N. A., et al. Role of genetic resistance in invasive pneumococcal infection: identification and study of susceptibility and resistance in inbred mouse strains. Infect. Immun. 69, 426-434 (2001).
- Holmes, A. R., et al. The pavA gene of Streptococcus pneumoniae encodes a fibronectin-binding protein that is essential for virulence. Mol. Microbiol. 41, 1395-1408 (2001).
- Koedel, U., Klein, M., Pfister, H. W. New understandings on the pathophysiology of bacterial meningitis. Curr. Opin. Infect. Dis. 23, 217-223 (2010).
- Medina, E. Murine model of pneumococcal pneumonia. Methods Mol. Biol. 602, 405-410 (2010).
- Hartel, T., et al. Impact of glutamine transporters on pneumococcal fitness under infection-related conditions. Infect. Immun. 79, 44-58 (2011).
- Hermans, P. W., et al. The streptococcal lipoprotein rotamase A (SlrA) is a functional peptidyl-prolyl isomerase involved in pneumococcal colonization. J. Biol. Chem. 281, 968-976 (2006).
- Jensch, I., et al. PavB is a surface-exposed adhesin of Streptococcus pneumoniae contributing to nasopharyngeal colonization and airways infections. Mol. Microbiol. 77, 22-43 (2010).
- Kadioglu, A., et al. Pneumococcal protein PavA is important for nasopharyngeal carriage and development of sepsis. Mol. Oral Microbiol. 25, 50-60 (2010).
- Orihuela, C. J., Gao, G., Francis, K. P., Yu, J., Tuomanen, E. I. Tissue-specific contributions of pneumococcal virulence factors to pathogenesis. J. Infect. Dis. 190, 1661-1669 (2004).
- Francis, K. P., et al. Visualizing pneumococcal infections in the lungs of live mice using bioluminescent Streptococcus pneumoniae transformed with a novel gram-positive lux transposon. Infect. Immun. 69, 3350-3358 (2001).
- Basavanna, S., et al. The effects of methionine acquisition and synthesis on Streptococcus pneumoniae growth and virulence. PLoS One. 8, (2013).
- Hartel, T., et al. Characterization of central carbon metabolism of Streptococcus pneumoniae by isotopologue profiling. J. Biol. Chem. 287, 4260-4274 (2012).
- Hammerschmidt, S., et al. The host immune regulator factor H interacts via two contact sites with the PspC protein of Streptococcus pneumoniae and mediates adhesion to host epithelial cells. J. Immunol. 178, 5848-5858 (2007).
- Voss, S., et al. The choline-binding protein PspC of Streptococcus pneumoniae interacts with the C-terminal heparin-binding domain of vitronectin. J. Biol. Chem. , (2013).
- Cartwright, K. Pneumococcal disease in western Europe: burden of disease, antibiotic resistance and management. Eur. J. Pediatr. 161, 188-195 (2002).
- vander Linden, M., Al-Lahham, A., Nicklas, W., Reinert, R. R. Molecular characterization of pneumococcal isolates from pets and laboratory animals. PLoS One. 4, (2009).
- Brehm,, et al. Sequence of the adenine methylase gene of the Streptococcus faecalis plasmid pAM beta 1. Nucleic Acids Res. 15, 3177 (1987).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
