Prezentujemy w tym artykule nowatorską platformę rozciągającą, która może być wykorzystana do badania reakcji pojedynczych komórek na złożone anizotropowe dwuosiowe deformacje mechaniczne i ilościowego określania właściwości mechanicznych tkanek biologicznych.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Nowatorska platforma do rozciągania do zastosowań w mechanobiologii komórek i tkanek
W tym artykule
Podsumowanie
Streszczenie
Narzędzia, które pozwalają na zastosowanie sił mechanicznych do komórek i tkanek lub które mogą określić ilościowo właściwości mechaniczne tkanek biologicznych, znacznie przyczyniły się do zrozumienia podstaw mechanobiologii. Techniki te były szeroko stosowane w celu pokazania, w jaki sposób na początek i postęp różnych chorób duży wpływ mają sygnały mechaniczne. W artykule przedstawiono wielofunkcyjną platformę do rozciągania dwuosiowego (BAXS), która może mechanicznie stymulować pojedyncze komórki lub określać ilościowo sztywność mechaniczną tkanek. Platforma BAXS składa się z czterech silników z cewkami drgającymi, które mogą być sterowane niezależnie. Pojedyncze komórki mogą być hodowane na elastycznym podłożu, które można przymocować do silników, co pozwala na wystawienie komórek na złożone, dynamiczne i przestrzennie zmieniające się pola odkształceń. I odwrotnie, włączając ogniwo obciążnikowe siłowe, można również określić ilościowo właściwości mechaniczne tkanek pierwotnych, gdy są one narażone na cykle deformacji. W obu przypadkach należy zaprojektować odpowiedni zestaw zacisków i zamontować je na silnikach platformy BAXS, aby mocno utrzymać elastyczne podłoże lub tkankę będącą przedmiotem zainteresowania. Platforma BAXS może być zamontowana na mikroskopie odwróconym w celu jednoczesnego obrazowania w świetle przechodzącym i/lub fluorescencji w celu zbadania odpowiedzi strukturalnej lub biochemicznej próbki podczas eksperymentów rozciągania. Niniejszy artykuł zawiera szczegółowe informacje eksperymentalne dotyczące projektowania i wykorzystania platformy BAXS oraz przedstawia wyniki badań nad pojedynczymi komórkami i całymi tkankami. Platforma BAXS została wykorzystana do pomiaru deformacji jąder w pojedynczych komórkach mioblastów myszy w odpowiedzi na odkształcenie substratu oraz do pomiaru sztywności izolowanych aort myszy. Platforma BAXS to wszechstronne narzędzie, które można łączyć z różnymi mikroskopiami optycznymi w celu uzyskania nowatorskich informacji mechanobiologicznych na poziomie subkomórkowym, komórkowym i całych tkanek.
Wprowadzenie
Mechaniczne mikrootoczenie odgrywa istotną rolę w wielu funkcjach komórkowych, takich jak proliferacja, migracja i różnicowanie, co ma głęboki wpływ na rozwój i homeostazę tkanek, a także na przebieg chorób1-6. Na przestrzeni lat wykorzystywano szereg narzędzi eksperymentalnych do mechanicznej stymulacji komórek lub tkanek oraz pomiaru właściwości mechanicznych tkanek biologicznych, mając na celu pogłębienie wiedzy z zakresu podstawowej mechanobiologii oraz badanie początków i progresji chorób6-17. Często jednak konieczne jest korzystanie z kilku różnych urządzeń eksperymentalnych, aby osiągnąć cele konkretnego badania. Niniejszy artykuł przedstawia pojedynczą, wielofunkcyjną platformę do rozciągania dwuosiowego (BAXS), która umożliwia prowadzenie badań nad rolą właściwości mechanicznych i sił mechanicznych w biologii, w skalach od podkomórkowych po całe tkanki. Platforma BAXS nie tylko pozwala na ilościowe określenie właściwości mechanicznych izolowanych tkanek, ale także umożliwia stosowanie prostych, złożonych i dynamicznych pól odkształceń w odniesieniu do żywych komórek, aby zrozumieć ich reakcje na rozciąganie występujące in vivo. Platforma BAXS pozwala również na prowadzenie mikroskopii żywych komórek podczas testów mechanicznych i perturbacji komórek oraz tkanek.
Platforma BAXS to specjalistyczne urządzenie, które może być wykorzystywane do badania wpływu deformacji podłoża na poziomie komórkowym oraz do przeprowadzania testów rozciągania tkanek biologicznych (Rysunek 1A). Wykonano aluminiowy podgrzewacz przystosowany do standardowej szalki Petriego o średnicy 10 cm, który dzięki sterownikowi temperatury i grzałkom kaptonowym utrzymuje roztwory fizjologiczne w temperaturze 37 °C (Rysunek 1B). Platforma BAXS może zostać zintegrowana z odwróconym mikroskopem fazokontrastowym i/lub fluorescencyjnym, co umożliwia jednoczesne obrazowanie (Rysunek 1C). W skrócie, platforma BAXS składa się z czterech liniowych silników cewkowych, których części ruchome są zamontowane na miniaturowych liniowych prowadnicach kulkowych zorientowanych wzdłuż dwóch prostopadłych osi (Rysunek 1D). Do każdego z czterech silników przymocowano liniowy stół pozycjonujący, umożliwiający pionowy ruch stosowanego systemu zaciskowego (Rysunek 1E). Pozycja każdego silnika jest monitorowana przez enkoder optyczny o rozdzielczości 500 nm (Rysunek 1F). Wszystkie cztery silniki są sterowane niezależnie przez kontroler ruchu wykorzystujący sprzężenie zwrotne z enkodera optycznego do wykonywania poleceń ruchu (Rysunek 1G). Interfejs LabVIEW zapewnia pełną kontrolę nad wielkością przemieszczenia, prędkością i przyspieszeniem każdego silnika, co pozwala na generowanie w pełni konfigurowalnych, statycznych i dynamicznych deformacji komórek lub próbek tkanek.
Technika stosowana do indukowania deformacji komórek polega na umożliwieniu komórkom silnej adhezji do elastycznego i przezroczystego podłoża, a następnie rozciągnięciu tego podłoża za pomocą czterech silników platformy BAXS. Platforma BAXS umożliwia montaż dowolnego, niestandardowego zestawu zacisków do przytwierdzenia podłoża do silników cewkowych. W tym celu zaprojektowaliśmy zestaw zacisków, do których można przymocować elastyczne i przezroczyste podłoże wykonane z polidimetylosiloksanu (PDMS) (Rysunki 2A-C oraz Rysunek 3). Ponieważ zaciski będą wystawione na działanie roztworów fizjologicznych, wszystkie części zostały wykonane ze stali nierdzewnej, aby umożliwić sterylizację. Zaciski te zostały starannie zaprojektowane tak, aby przybliżyć podłoże jak najbardziej do obiektywu mikroskopu w celu poprawy jakości obrazu, przy jednoczesnym zminimalizowaniu naprężeń podłoża podczas rozciągania (Rysunek 2D).
Ta sama platforma BAXS może być również wykorzystana do ilościowego określenia sztywności małych próbek tkanek, przy użyciu odpowiedniego zestawu zacisków z dostosowanymi podkładkami dla próbek tkanek oraz ogniwa obciążnika do monitorowania sił. Można zastosować kilka podejść do zamocowania tkanki do silników platformy BAXS; w tym przypadku stalowe szpilki entomologiczne typu minutiens mogą zostać zahaczone przez otwory w tkankach naczyniowych w celu przeprowadzenia testów rozciągania (Ryciny 4A-B). Alternatywnie, w przypadku tkanek grubych bez naturalnych otworów, krawędzie tkanki mogą być albo utrzymywane w pozycji za pomocą zacisków przymocowanych do silników cewkowych, albo przyklejone do małych szkiełek przedmiotowych za pomocą kleju biologicznego i przymocowane do silników za pomocą zacisków. Do przeprowadzenia testów rozciągania wymagane jest miniaturowe ogniwo obciążnika, które można łatwo wbudować w silniki platformy BAXS i wykorzystać do pomiaru siły działającej na tkankę podczas cyklu rozciągania (Rycina 4C). Ponieważ platforma BAXS składa się z czterech silników, wprowadzenie drugiego ogniwa obciążnika pozwala na przeprowadzenie testów rozciągania w dwóch ortogonalnych kierunkach. Zdolność ta umożliwia ilościowe określenie sztywności mechanicznej pojedynczej tkanki w dwóch prostopadłych kierunkach podczas tego samego eksperymentu.
Co istotne, we wszystkich konfiguracjach komórki lub próbki tkanek są zawsze utrzymywane w kąpieli z kontrolowaną temperaturą, która jest dostępna dla użytkownika. Możliwość ta pozwala na wprowadzanie czynników farmakologicznych podczas rozciągania próbki w celu zbadania odpowiedzi czasowej próbki. Ponadto, ponieważ oś optyczna mikroskopu odwróconego pozostaje nieprzesłonięta, wszystkie formy mikroskopii są nadal dostępne dla użytkownika. Wreszcie, ponieważ wszystkie cztery silniki platformy BAXS są niezależne, możliwe jest zastosowanie wysoce konfigurowalnych pól odkształceń w badanej próbce. Komórki i tkanki in vivo są narażone na złożone i anizotropowe rozciąganie, które można dokładniej odwzorować na tej platformie w przeciwieństwie do tradycyjnych platform rozciągania jednowymiarowego7,13,15,18,19. Co więcej, fizyczne charakterystyki pola odkształceń mogą być zmieniane w czasie rzeczywistym podczas eksperymentu. Możliwości te pozwalają użytkownikowi badać odpowiedź na poziomie komórkowym i tkankowym na szeroki zakres wysoce złożonych, anizotropowych, zmiennych w czasie i przestrzeni pól odkształceń. Niniejszy artykuł opisuje zalety i ograniczenia platformy BAXS, a także jej konstrukcję, zasady działania oraz szczegóły eksperymentalne dla doświadczeń na pojedynczych komórkach i całych tkankach.

Rysunek 1. Przegląd platformy BAXS. A) Widok z góry platformy BAXS przedstawiający cztery silniki cewkowe. B) Szczegółowe zdjęcie podgrzewacza do szalek Petriego, służącego do utrzymywania komórek i tkanek w temperaturze 37 °C. C) Platforma może zostać zamontowana na mikroskopie odwróconym w celu obrazowania żywych komórek podczas eksperymentów z rozciąganiem. D) Szczegółowe zdjęcie silnika cewkowego; ruchomej części platformy. E) Szczegółowe zdjęcie liniowego stołu pozycjonującego umożliwiającego pionowe przemieszczanie systemów zaciskowych. F) Szczegółowe zdjęcie enkodera optycznego, który przekazuje w czasie rzeczywistym pozycję silnika do kontrolera ruchu. G) Szczegółowe zdjęcie kontrolera ruchu przedstawiające cztery wejścia enkodera optycznego oraz wyjścia zasilania dla czterech silników cewkowych.

Rycina 2. System zaciskowy do eksperymentów z rozciąganiem komórek. A-B) Zdjęcia przedstawiające szczegóły zacisków używanych do mocowania podłoża z PDMS do silników cewkowych w celu rozciągania. C) Podłoże jest owinięte wokół cylindrycznej części zacisku, a jego elementy kotwiczące znajdują się w rowku na górze. Następnie podłoże jest zabezpieczane za pomocą śrub imbusowych, które dociskają podłoże/elementy kotwiczące do górnego rowka. D) Ilustracja platformy BAXS z zaciskami utrzymującymi podłoże na miejscu. Wstawka przedstawia szczegółowy widok podłoża z przytwierdzonymi do niego komórkami, znajdującego się bezpośrednio nad szkiełkiem nakrywkowym i obiektywem mikroskopu.

Rysunek 3. Wykaz materiałów membrany i jej systemu mocowania. Rysunki przedstawiające wymiary głównych części zintegrowanych z platformą dwuosiową do przeprowadzania eksperymentów z rozciąganiem komórek.

Rycina 4. Przykład systemu zaciskowego do oceny sztywności naczyń małego kalibru. A-B) Szczegółowe zdjęcia systemu zaciskowego użytego do wywołania odkształcenia w aorcie mysiej o średnicy 1 mm. Śruby ze stali nierdzewnej zostały starannie uformowane w otwarte trójkąty, aby naczynie mogło przesuwać się po obu bolcach. C) Ilustracja platformy BAXS z zaciskami utrzymującymi naczynie oraz ogniwem obciążenia zamocowanym pomiędzy nieruchomym silnikiem a lewym zaciskiem. Wstawka przedstawia szczegółowy widok z góry naczynia zamontowanego na bolcach.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Odkształcanie mechaniczne pojedynczych komórek
- Wytwarzanie podłoża z PDMS z zatopionymi kuleczkami fluorescencyjnymi
Przed wytwarzaniem podłoża mikrokuleczki fluorescencyjne w roztworze wodnym resuspenduje się w izopropanolu, aby poprawić mieszanie kuleczek w PDMS ze względu na jego hydrofobową naturę.- Pipetować 500 μl mikrokuleczek fluorescencyjnych do probówki mikrocentryfugacyjnej o pojemności 1,5 ml i wirować przy 16 200 x g przez 10 min.
- Usunąć nadsącz i dodać 500 μl izopropanolu, a następnie mieszać w wortexie przez 5 min. Odstawić fiolkę na noc w ciemne miejsce, aby umożliwić sedymentację dużych agregatów cząstek.
- Następnego ranka ostrożnie przenieść nadsącz do czystej probówki mikrocentryfugacyjnej. Ten roztwór kuleczek można wykorzystać do wytworzenia więcej niż 5 podłoży. UWAGA: Roztwór kuleczek będzie sedymentował przez kolejne 3 dni. Należy uważać, aby nie resuspendować osadu.
- Odważyć 0,5 g utwardzacza dostarczonego w zestawie PDMS do probówki mikrocentryfugacyjnej o pojemności 1,5 ml za pomocą wagi analitycznej. W kolejnych krokach dodać łącznie 90 μl kuleczek (w sześciu dodaniach po 15 μl), mieszając w wortexie przez 1 min po każdym dodaniu. Odstawić.
- Odważyć 10 g PDMS i mieszać przez co najmniej 12 min z 0,5 g utwardzacza uzupełnionego o kuleczki fluorescencyjne.
- Wytworzyć formę w kształcie krzyża z SU-8 2050, stosując standardowe techniki fotolitografii zgodnie z instrukcjami producenta. Użyta forma ma wysokość 320 μm i powierzchnię 13,4 cm2 (Rysunek 3). Forma może pomieścić 428 μl lub 440 mg PDMS.
- Wlać 400 mg PDMS z kuleczkami do formy w kształcie krzyża za pomocą pipety transferowej i utwardzać przez 2 h w temperaturze 80 °C. Po utwardzeniu oddzielić podłoże od formy (Rysunek 5A). Podłoże można przechowywać w czarce Petriego w temperaturze pokojowej przez 2 tygodnie bez znaczących zmian właściwości mechanicznych.
- Wylać krople PDMS (stosunek utwardzacz:PDMS 1:20) do czarki Petriego, tak aby uzyskały końcową średnicę około 4 mm, i utwardzać je w pozycji odwróconej przez 2 h w temperaturze 80 °C (Rysunek 5B). Te elementy kotwiczące można przechowywać w czarce Petriego przez wiele tygodni. UWAGA: Należy utrzymać czarkę w pozycji odwróconej, aby zapobiec spłaszczaniu się kropli podczas procesu utwardzania.
- Poddać działaniu plazmy powietrznej (30 s przy 30 W) podłoże oraz 8 elementów kotwiczących. Przymocować elementy na każdym końcu podłoża w odległości 4 mm od kwadratowego wgłębienia znajdującego się na podłożu (Rysunek 5C).
- Montaż membrany w zaciskach
- Owinąć każdy koniec podłoża wokół rowkowanej części cylindrycznej zacisków i zabezpieczyć w miejscu za pomocą 2 śrub imbusowych od góry (Rysunek 2B oraz Rysunki 5D-E).
- Przykręcić 4 zaciski do uchwytu zacisków i wlać PDMS (stosunek 1:20) za pomocą jednorazowej pipety transferowej na styk między podłoże a rowkowaną część cylindryczną zacisków. Rozprowadzić nieutwardzony PDMS wokół rowkowanej części cylindrycznej za pomocą klucza imbusowego 1,5 mm.
- Wlać PDMS (1:20) w rowki, aż zostaną całkowicie wypełnione przez działanie kapilarne, i utwardzać cały zespół w temperaturze 80 °C przez 2 h (Rysunek 5F).
- Sianie komórek na membranie
- Poddać działaniu plazmy powietrznej (30 s przy 30 W) cały zespół, aby wysterylizować i funkcjonalizować podłoże, umożliwiając powlekanie kolagenem.
- Funkcjonalizować obszar podłoża, na którym będą siały komórki, za pomocą 1 ml 0,02 M kwasu octowego uzupełnionego o 16 μg/ml kolagenu z ogona szczura w temperaturze pokojowej przez 1 h. Pożądana końcowa gęstość kolagenu wynosi 5 μg/cm2.
- Przepłukać podłoże 3x buforem fosforanowym i pozostawić do wyschnięcia w temperaturze pokojowej przez co najmniej 10 min.
- Dodać 40 μl pożywki hodowlanej uzupełnionej o 10% płodowej surowicy bydlęcej i 1% penicyliny-streptomycyny, zawierającej 2 000 komórek, do środkowej części podłoża, aby pokryć obszar 1 cm2 (gęstość komórek: 20 komórek/mm2). Gęstość komórek można zmienić zgodnie z wymaganiami eksperymentalnymi.
- Umieścić cały zespół w standardowym inkubatorze do hodowli komórkowych z podłożem skierowanym do góry, z kroplą pożywki hodowlanej zawierającej komórki. UWAGA: Zespół musi być utrzymywany z podłożem skierowanym do góry przez co najmniej 3 h, aby umożliwić komórkom trwałe przytwierdzenie. Aby zapobiec odparowywaniu, co 45 min przez 3 h dodaje się 30 μl ciepłej pożywki hodowlanej do kropli na podłożu.
- Po 3 h odwrócić cały zespół do czarki Petriego wypełnionej świeżą pożywką hodowlaną, aby zanurzyć podłoże, i inkubować przez noc, umożliwiając proliferację komórek.
- Następnego dnia przygotować roztwór soli buforowanej HEPES-em (HBSS; 20 mM Hepesu, 120 mM NaCl, 5,3 mM KCl, 0,8 mM MgSO4, 1,8 mM CaCl2 oraz 11,1 mM dekstrozy). Dostosować pH do 7,4. UWAGA: Roztwór HBSS musi być przygotowywany codziennie i utrzymywany w temperaturze 37 °C podczas eksperymentów. Ten roztwór fizjologiczny jest używany do utrzymania komórek na stoliku mikroskopu poprzez naśladowanie naturalnego środowiska tkankowego/krwi.
- Zamontować układ na odwróconym mikroskopie fazokontrastowym lub fluorescencyjnym. Zamontować zespół zacisk-podłoże na platformie i silnikach BAXS. Wypełnić czarkę Petriego wewnątrz grzałki do czarek Petriego buforem HEPES (Rysunek 2D).
2. Pomiar sztywności naczyń małej średnicy
- Przygotowanie
- Fizjologiczny roztwór Krebsa: Przygotować roztwór zawierający 118,1 mM NaCl, 11,1 mM D-glukozy, 25 mM NaHCO3, 4,7 mM KCl, 1,2 mM MgSO4, 1,2 mM KH2PO4 oraz 2,5 mM CaCl2. Dostosować pH do wartości 7,4 i napowietrzać roztwór gazem medycznym carbogen (95% O2/5% CO2) przez 30 min. UWAGA: Roztwór Krebsa musi być przygotowywany codziennie i utrzymywany w temperaturze 37 °C podczas eksperymentów. Ten roztwór fizjologiczny służy do utrzymania tkanek przy życiu poprzez naśladowanie naturalnego środowiska tkankowego/krwi.
- Przygotować instrumentarium do wycięcia i mechanicznej oceny naczyń aorty: nożyczki chirurgiczne, pęsetę zgiętą, mikronożyczki, chirurgiczny mikroskop stereoskopowy, polipropylowe probówki wirówkowe o pojemności 50 ml oraz pipety serologiczne 10 ml. Procedura chirurgiczna i eksperymentalna nie wymagają warunków sterylnych. Wcześniej zamontować zaciski platformy BAXS wraz z ogniwem pomiarowym.
- Izolacja i preparowanie tkanki
Wszystkie procedury eksperymentalne z udziałem zwierząt laboratoryjnych muszą zostać zatwierdzone przez Komisję ds. Opieki i Wykorzystania Zwierząt w instytucji użytkownika, zgodnie z wytycznymi dotyczącymi opieki i wykorzystania zwierząt laboratoryjnych obowiązującymi w kraju użytkownika.- Przeprowadzić eutanazję myszy poprzez inhalację 99% CO2 (7 psi) w komorze z pleksiglasu (Rysunek 6A).
- Otworzyć jamę brzuszną myszy i przeciąć aortę piersiową, aby doprowadzić do upuszczenia krwi.
- Usunąć przeponę, klatkę piersiową oraz płaty płuc (Rysunek 6B). UWAGA: Aby zminimalizować ryzyko uszkodzenia tkanki, należy pozostawić serce przytwierdzone do aorty i unikać bezpośredniego dotykania naczynia, manipulując nim za pomocą serca.
- Usunąć serce, początek aorty i aortę piersiową, delikatnie przecinając tkanki między naczyniem a kręgosłupem. UWAGA: Podczas wycinania nie należy dopuścić do rozciągnięcia naczynia, aby zachować nienaruszoną wewnętrzną strukturę tkanki (Rysunek 6C).
- Natychmiast zanurzyć serce i aortę w roztworze Krebsa i tam je przechowywać.
- Przeciąć i starannie wypłukać aortę w roztworze Krebsa, aby usunąć skrzepy krwi. Usunąć tkankę łączną za pomocą mikronożyczek, pęsety i chirurgicznego mikroskopu stereoskopowego (Rysunek 6D-E). UWAGA: Zachować całą długość naczynia i wykorzystać początek aorty do określenia orientacji naczynia.
- Wyznaczenie wymiarów naczynia i montaż
Aby wyznaczyć sztywność naczynia, wymagane są wymiary naczynia w stanie nieobciążonym, które można wyznaczyć za pomocą skalibrowanego mikroskopu.- Wyciąć pierścień aorty o długości około 2 mm i precyzyjnie zmierzyć jego długość, korzystając z ustawień skalibrowanego mikroskopu (Rysunki 6F-G). Odłożyć ten segment do roztworu Krebsa.
- Wyciąć kolejny, jak najmniejszy pierścień aorty pomiędzy każdym z 2-milimetrowych segmentów (Rysunek 6F). Położyć ten mały segment na szkiełku mikroskopowym światłem skierowanym do góry i zmierzyć grubość ściany za pomocą ustawień skalibrowanego mikroskopu (Rysunek 6H).
- Napełnić czarenkę Petriego na platformie BAXS roztworem Krebsa i umieścić 2-milimetrowy segment pierścienia aorty na pinach naciągowych (wstawka na Rysunku 4C).

Rysunek 5. Wytwarzanie i montaż podłoża z PDMS. A) Po utwardzeniu podłoże jest ostrożnie oddzielane od formy SU-8 2050 i odkładane do szalki Petriego. B) Elementy kotwiczące wykonane z PDMS, które pomagają zabezpieczyć podłoże w zaciskach. C) Podłoże z elementami kotwiczącymi przygotowane do montażu. D) Podłoże jest montowane na 4 zaciskach, które następnie są mocowane w uchwycie zacisków (patrz wstawka). E) Szczegółowe zdjęcie podłoża zamontowanego na 4 zaciskach. F) Procedura wlewania PDMS w rowek pod podłożem. Strzałka pokazuje powolne wypełnianie rowka przez PDMS w wyniku kapilarności.
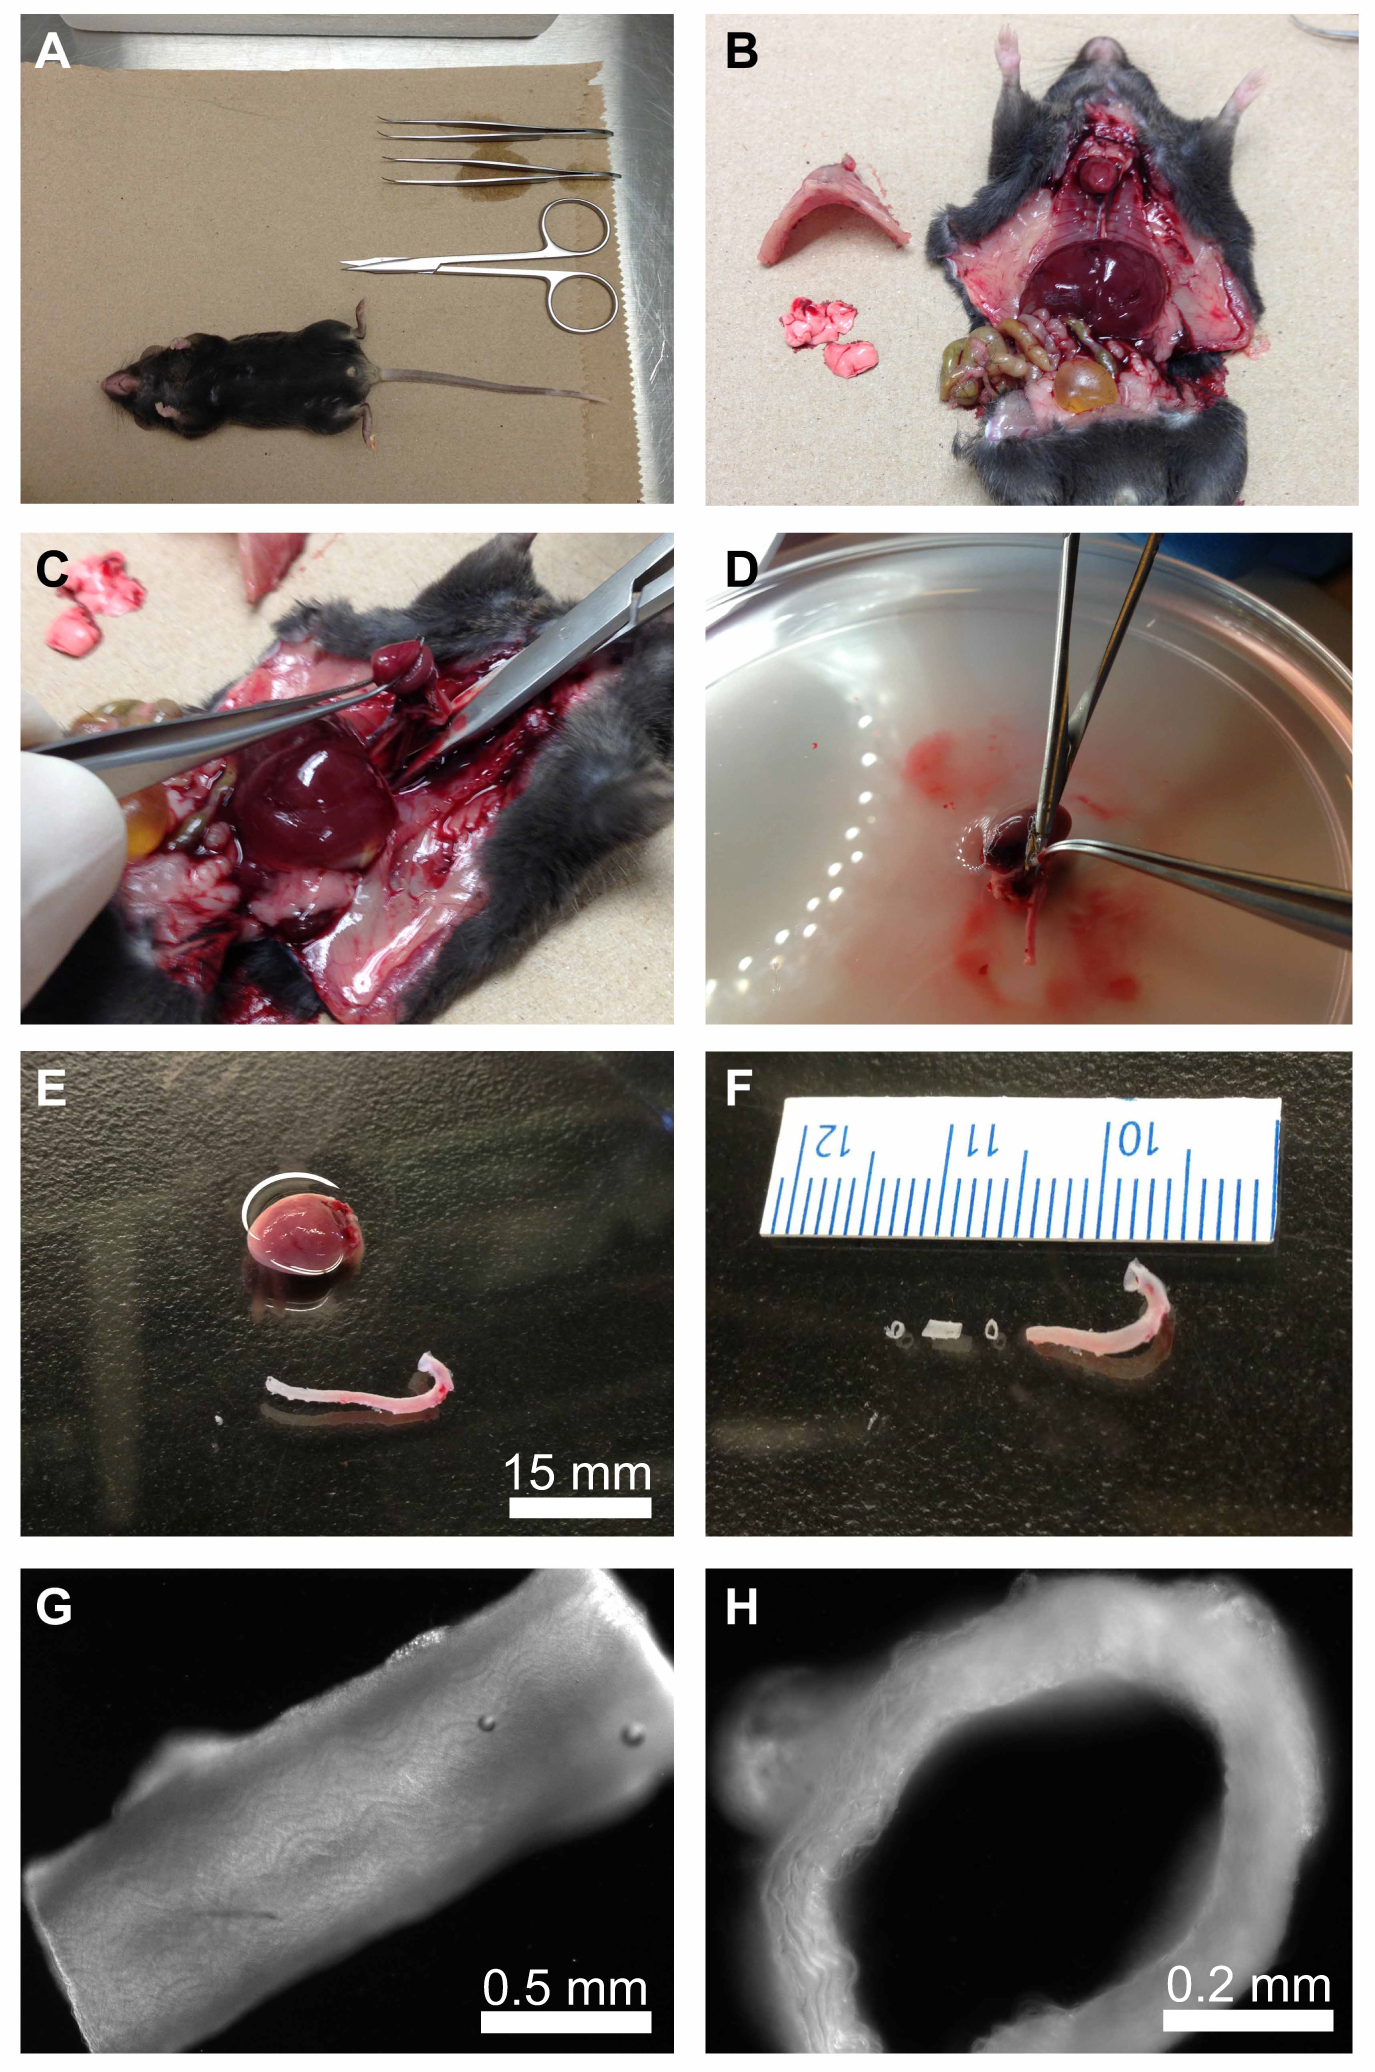
Rycina 6. Przygotowanie i izolacja aorty piersiowej. A) Przygotowanie narzędzi chirurgicznych i uśpionej myszy. B) Poprzez podłużne nacięcie brzucha usunięto klatkę piersiową i płaty płuc. C) Aortę ostrożnie wyjęto, wykorzystując serce do manipulacji tkanką. D) Serce i aortę umieszczono w fizjologicznym roztworze Krebsa. Aortę oczyszczono poprzez usunięcie wszystkich tkanek łącznych. E) Szczegółowe zdjęcie przedstawiające serce i aortę. F) Segment aorty wykorzystany do oceny sztywności wraz z małymi segmentami używanymi do pomiaru grubości. G-H) Dokładną długość (G) i grubość (H) każdego z segmentów naczyń oceniono przy użyciu mikroskopu odwróconego i programu analitycznego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rozciąganie komórek
Platforma BAXS została wykorzystana do zbadania odpowiedzi mechanicznej jądra w pojedynczych mioblastach myszy (C2C12) poddanych odkształceniu podłoża o wartości 25%. Mioblasty występują w tkance mięśniowej i in vivo są nieustannie narażone na rozciąganie i ściskanie mechaniczne. Wykazano, że kształt i właściwości mechaniczne jądra komórkowego odgrywają główną rolę w regulacji ekspresji genów i aktywności transkrypcyjnej20,21, a także w ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Prezentowana tu platforma BAXS ułatwia prowadzenie licznych eksperymentów w zakresie mechanobiologii, od badań pojedynczych komórek po całe tkanki. Ponadto platforma jest bardzo elastyczna i konfigurowalna, co pozwala na liczne eksperymenty ze stymulacją mechaniczną i wieloosiowe próby rozciągania. Platforma umożliwia również utrzymanie komórek i tkanek w warunkach fizjologicznych oraz pozwala na jednoczesną mikroskopię podczas eksperymentów rozciągających. Dwa eksperymenty opisane w poprzednich rozdziałach pokazują wsze...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
DT było wspierane przez staż podoktorski od le Fonds de Recherche du Québec-Nature et Technologies (FQRNT) oraz stypendium strategiczne MITACS Elevate. CMC było wspierane przez stypendium podoktorskie z le Fonds de Recherche en Santé du Québec (FRSQ) oraz stypendium badawcze Ernesta i Margaret Fordów z University of Ottawa Heart Institute. EOB był wspierany przez granty operacyjne MOP80204 z Kanadyjskiego Instytutu Badań nad Zdrowiem (CIHR) oraz T6335 z Fundacji Serca i Udaru Mózgu w Ontario. CIHR i Medtronic wspólnie zapewniają EOB recenzowaną Katedrę Badań (URC #57093). AEP jest finansowany przez Natural Sciences and Engineering Research Council (NSERC) Discovery Grant, NSERC Discovery Accelerator Supplement i z wdzięcznością dziękuje za wsparcie programu Canada Research Chairs (CRC) oraz Early Researcher Award od prowincji Ontario.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PDMS | Ellsworth Adhesives | 184 SIL ELAST KIT 0,5 KG | Stosunek podstawy do sieciownika zastosowany w tym protokole wynosi 20:1. Wymieszaj w okapie laminarnym, aby zapobiec zanieczyszczeniu kurzu |
| Mikrosfery fluorescencyjne FluoSpheres | Invitrogen | F8810 | Przechowywać z dala od światła. |
| Cewka liniowa | Moticont | LVCM-051-051-01 | Motro składa się z dwóch części (magnes i cewka). Aby działał, musi być zamontowany na łożysku kulkowym. |
| Prowadnica kulkowa | Edmund Optics | NT37-360 | Miniaturowe i małe prowadnice kulkowe o ruchu liniowym |
| Stolik pozycjonowania liniowego | Edmund Optics | 38-960 | Napęd centralny 1,25 "Kwadratowe stoliki translacji liniowej |
| Enkoder optyczny | GSI microE | systemy Merkury II 1600S - | refleksyjny enkoder inkrementalny |
| Kontroler ruchu | Galil | DMC-2143(DIN)-DC48 z AMP-20440 | Sterownik 4-osiowy ze wzmacniaczem 4-osiowym |
| Ogniwo obciążnikowe | Honeywell | 31 niskie | miniaturowe ogniwo obciążnikowe o zakresie 0-150 g |
| Szpilki do minizacji owadów (0,20 mm) | Serwis sworzni Austerlitz Szpilki | Kołki ze stali nierdzewnej, które są wygięte w kształcie otwartego trójkąta | |
| SU-8 2050 | Micro Chem | SU-8 2050 | Trwały fotorezystor epoksydowy negatywowy. Przechowywać z dala od źródeł ciepła i światła |
| System obróbki plazmą powietrzną | Glowresearch | Autoglow Oxygen Plasma System | |
| Kolagen ze szczurzego ogona | Invitrogen | A10483-01 | Kolagen I, Rat Tail 5 mg / ml |
| Hoechst 33342 | Invitrogen | R37605 | Barwnik fluorescencyjny specyficzny dla DNA. Przechowywać w lodówce. |
| Elastyczne grzejniki izolowane kaptonem (folia poliimidowa) | omega.ca | KHLV-0504/(10)-P | 28 V; mogą być dostarczane z regulatorami temperatury i procesu 24 V |
| 1/16 DIN Autotune | omega.ca | CN63200-R1-LV | ; zasilanie 24 V. |
| Pożywka hodowlana DMEM | Hyclone | SH3024301 | Dulbecco" s Zmodyfikowany 30 Eagle Medium. Trzymaj się 4 ° C |
| Hyklon | penicyliny-streptomycyny | SV30010 | Przechowywać zapasy w stanie zamrożonym. Utrzymuj roztwór roboczy w temperaturze 4 °C. |
| Płodowa surowica bydlęca (FBS) | Hyklon | SH3039603C | przechowywać w stanie zamrożonym. |
| Trypsyna 0,05% | Hyclon | SH30236,02 | Przechowywać w stanie zamrożonym. Trawienie białek przyłączających do komórek do subhodowli |
| Hepes | Bisent Inc | 330-050-EL | HEPES-buforowany roztwór soli |
| NaCl | Fisher Scientific | BP358-1 | HEPES-buforowany roztwór soli / roztwór fizjologiczny Krebsa |
| KCl | Fisher Scientific | BP366-500 | HEPES buforowany roztwór soli / Krebs roztwór fizjologiczny |
| MgSO4 | Fisher Scientific | M65-500 | HEPS - buforowany roztwór soli / roztwór fizjologiczny Krebsa |
| CaCl2 | Fisher Scientific | C614-500 | HEPS buforowany roztwór soli / roztwór fizjologiczny Krebsa |
| Dekstroza | Fisher Scientific | BP220-1 | HEPES buforowany roztwór soli / Fizjologiczny roztwór Krebsa |
| NaHCO3 | Fisher Scientific | BP328-1 | Fizjologiczny roztwór Krebsa |
| KH2PO4 | Fisher Scientific | BP362-500 | Roztwór fizjologiczny Krebsa |
| Karbogen 95% O2/5% CO2 | Lindle | DIN:02154749 | Natlenienie roztworu fizjologicznego Krebsa |
| Nocodazole | Sigma | M1404 | Środek depolimeryzujący mikrotubul |
| Cytochalazyna-D | Sigma | C8273 | Środek depolimeryzujący włókna aktynowe |
| Anty-&alfa;- SMA-FITC | Sigma | F3777 | Służy do barwienia i ilościowego oznaczania zawartości komórek mięśni gładkich |
| Czerwona plama Picrosirius | Fluka | 43665 | Służy do barwienia i ilościowego określania zawartości kolagenu |
Bibliografia
- Yim, E. K., Sheetz, M. P. Force-dependent cell signaling in stem cell differentiation. Stem Cell Res Ther. 3, (2012).
- Vogel, V., Sheetz, M. Local force and geometry sensing regulate cell functions. Nat Rev Mol Cell Biol. 7, 265-275 (2006).
- Wang, N., Tytell, J. D., Ingber, D. E. Mechanotransduction at a distance: mechanically coupling the extracellular matrix with the nucleus. Nat Rev Mol Cell Biol. 10, 75-82 (2009).
- Ingber, D. E. Mechanobiology and diseases of mechanotransduction. Ann Med. 35, 564-577 (2003).
- Janmey, P. A., Miller, R. T. Mechanisms of mechanical signaling in development and disease. J Cell Sci. 124, 9-18 (2011).
- Bukoreshtliev, N. V., Haase, K., Pelling, A. E. Mechanical cues in cellular signalling and communication. Cell Tissue Res. 352, 77-94 (2013).
- Chen, Y., Pasapera, A. M., Koretsky, A. P., Waterman, C. M. Orientation-specific responses to sustained uniaxial stretching in focal adhesion growth and turnover. Proc Natl Acad Sci USA. 110, (2013).
- Rosenzweig, D. H., Matmati, M., Khayat, G., Chaudhry, S., Hinz, B., Quinn, T. M. Culture of Primary Bovine Chondrocytes on a Continuously Expanding Surface Inhibits Dedifferentiation. Tissue Eng Part A. 18, 2466-2476 (2012).
- Balachandran, K., et al. Cyclic strain induces dual-mode endothelial-mesenchymal transformation of the cardiac valve. Proc Natl Acad Sci USA. 108, 19943-19948 (1994).
- Steward, R., Cheng, C. M., Ye, J., Bellin, R., LeDuc, P. Mechanical stretch and shear flow induced reorganization and recruitment of fibronectin in fibroblasts. Sci Rep. 1, (2011).
- Wang, D., Xie, Y., Yuan, B., Xu, J., Gong, P., Jiang, X. A stretching device for imaging real-time molecular dynamics of live cells adhering to elastic membranes on inverted microscopes during the entire process of the stretch. Integr Biol (Camb). 2, 288-293 (2010).
- Haskett, D., Johnson, G., Zhou, A., Utzinger, U., Van de Geest, J. Microstructural and biomechanical alterations of the human aorta as a function of age and location. Biomech Model Mechanobiol. 9, 725-736 (2010).
- Duprey, A., Khanafer, K., Schlicht, M., Avril, S., Williams, D., Berguer, R. In vitro characterisation of physiological and maximum elastic modulus of ascending thoracic aortic aneurysms using uniaxial tensile testing. Eur J Vasc Endovasc Surg. 39, 700-707 (2010).
- Tremblay, D., et al. A comparison of mechanical properties of materials used in aortic arch reconstruction. Ann Thorac Surg. 88, 1484-1491 (2009).
- Khanafer, K., Duprey, A., Zainal, M., Schlicht, M., Williams, D., Berguer, R. Determination of the elastic modulus of ascending thoracic aortic aneurysm at different ranges of pressure using uniaxial tensile testing. The Journal of thoracic and cardiovascular surgery. 142, 682-686 (2011).
- Van de Geest, J. P., Sacks, M. S., Vorp, D. A. The effects of aneurysm on the biaxial mechanical behavior of human abdominal aorta. J Biomech. 39, 1324-1334 (2006).
- Guolla, L., Bertrand, M., Haase, K., Pelling, A. E. Force transduction and strain dynamics in actin stress fibres in response to nanonewton forces. J Cell Sci. 125, 603-613 (2012).
- Wang, J. H., Goldschmidt-Clermont, P., Wille, J., Yin, F. C. Specificity of endothelial cell reorientation in response to cyclic mechanical stretching. J Biomech. 34, 1563-1572 (2001).
- Jungbauer, S., Gao, H., Spatz, J. P., Kemkemer, R. Two characteristic regimes in frequency-dependent dynamic reorientation of fibroblasts on cyclically stretched substrates. Biophys J. 95, 3470-3478 (2008).
- Dahl, K. N., Ribeiro, A. J. S., Lammerding, J. Nuclear shape, mechanics, and mechanotransduction. Circ Res. 102, 1307-1318 (2008).
- Shivashankar, G. V. Mechanosignaling to the cell nucleus and gene regulation. Annu Rev Biophys. 40, 361-378 (2011).
- Chiquet, M., Gelman, L., Lutz, R., Maier, S. From mechanotransduction to extracellular matrix gene expression in fibroblasts. Biochim Biophys Acta. 1793, 911-920 (2009).
- Sullivan, T., et al. Loss of A-type lamin expression compromises nuclear envelope integrity leading to muscular dystrophy. J Cell Biol. 147, 913-920 (1999).
- Lammerding, J., et al. Lamin A/C deficiency causes defective nuclear mechanics and mechanotransduction. J Clin Invest. 113, 370-378 (2004).
- Tremblay, D., Andrzejewski, L., Leclerc, A., Pelling, A. E. Actin and microtubules play distinct roles in governing the anisotropic deformation of cell nuclei in response to substrate strain. Cytoskeleton. , (2013).
- Cuerrier, C. M., et al. Chronic over-expression of heat shock protein 27 attenuates atherogenesis and enhances plaque remodeling: a combined histological and mechanical assessment of aortic lesions. PLoS ONE. 8, (2013).
- Tremblay, D., Cartier, R., Mongrain, R., Leask, R. L. Regional dependency of the vascular smooth muscle cell contribution to the mechanical properties of the pig ascending aortic tissue. J Biomech. 43, 2448-2451 (2010).
- Barker, A. J., Lanning, C., Shandas, R. Quantification of hemodynamic wall shear stress in patients with bicuspid aortic valve using phase-contrast MRI. Ann Biomed Eng. 38, 788-800 (2010).
- Haga, J. H., Li, Y. S. J., Chien, S. Molecular basis of the effects of mechanical stretch on vascular smooth muscle cells. J Biomech. 40, 947-960 (2007).
- Frydrychowicz, A., et al. Time-resolved magnetic resonance angiography and flow-sensitive 4-dimensional magnetic resonance imaging at 3 Tesla for blood flow and wall shear stress analysis. The Journal of thoracic and cardiovascular surgery. 136, 400-407 (2008).
- Boccafoschi, F., Mosca, C., Bosetti, M., Cannas, M. The role of mechanical stretching in the activation and localization of adhesion proteins and related intracellular molecules. J Cell Biochem. 112, 1403-1409 (2011).
- Yang, G., Crawford, R. C., Wang, J. H. C. Proliferation and collagen production of human patellar tendon fibroblasts in response to cyclic uniaxial stretching in serum-free conditions. J Biomech. 37, 1543-1550 (2004).
- Goldyn, A. M., Rioja, B. A., Spatz, J. P., Ballestrem, C., Kemkemer, R. Force-induced cell polarisation is linked to RhoA-driven microtubule-independent focal-adhesion sliding. J Cell Sci. 122, 3644-3651 (2009).
- Heo, S. J., et al. Fiber stretch and reorientation modulates mesenchymal stem cell morphology and fibrous gene expression on oriented nanofibrous microenvironments. Ann Biomed Eng. 39, 2780-2790 (2011).
- Zdero, R., et al. Linear and torsional mechanical characteristics of intact and reconstructed scapholunate ligaments. J Biomech Eng. 131, (2009).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
