Izotermiczna kalorymetria miareczkowa mierzy przepływ ciepła uwalnianego lub pochłanianego w reakcjach chemicznych. Metoda ta może być stosowana do ilościowego określania katalizy enzymatycznej. W tym artykule ogólnie opisano protokół konfiguracji instrumentalnej, prowadzenia eksperymentu i analizy danych, który jest stosowany do charakterystyki enzymatycznej hydrolizy mocznika za pomocą ureazy fasoli jack
.Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Gorąca kataliza biologiczna: kalorymetria miareczkowa izotermiczna w celu scharakteryzowania reakcji enzymatycznych
W tym artykule
Podsumowanie
Streszczenie
Izotermiczna kalorymetria miareczkowa (ITC) to dobrze opisana technika, która mierzy ciepło uwalniane lub pochłaniane podczas reakcji chemicznej, używając jej jako wewnętrznej sondy do scharakteryzowania praktycznie każdego procesu chemicznego. Obecnie technika ta jest szeroko stosowana do wyznaczania parametrów termodynamicznych biomolekularnych równowag wiązania. Ponadto wykazano, że ITC jest w stanie bezpośrednio mierzyć kinetykę i parametry termodynamiczne (kcat, KM, ΔH) reakcji enzymatycznych, mimo że zastosowanie to jest nadal niedostatecznie wykorzystywane. Ponieważ zmiany ciepła zachodzą spontanicznie podczas katalizy enzymatycznej, ITC nie wymaga żadnej modyfikacji ani znakowania analizowanego systemu i może być przeprowadzany w roztworze. Co więcej, metoda wymaga niewielkiej ilości materiału. Właściwości te sprawiają, że ITC jest nieocenionym, potężnym i unikalnym narzędziem do badania kinetyki enzymów w wielu zastosowaniach, takich jak na przykład odkrywanie leków.
W tej pracy eksperymentalna metoda oparta na ITC do ilościowego określania kinetyki i termodynamiki reakcji enzymatycznych jest dokładnie opisana. Metodę tę stosuje się do oznaczania kcat i KM enzymatycznej hydrolizy mocznika przez ureazę Canavalia ensiformis (fasola jack). Przeprowadza się obliczanie wewnętrznej entalpii molowej (ΔHint) reakcji. Uzyskane w ten sposób wartości są zgodne z wcześniejszymi danymi przedstawionymi w literaturze, co świadczy o wiarygodności metodologii.
Wprowadzenie
Ilościowe oznaczanie reakcji biochemicznych dostarcza wglądu w procesy biologiczne stanowiące podstawę życia. Kalorymetria oferuje metodologię bez użycia znaczników do ilościowej charakterystyki praktycznie każdej reakcji chemicznej w roztworze. Technika ta mierzy ciepło wydzielane lub pochłaniane w czasie, co czyni ją uniwersalnym systemem detekcji i bardzo wygodną metodologią do określania ilości reagujących cząsteczek (t.j. termodynamiki wiązania), a także do pomiaru szybkości reakcji (t.j. kinetyki). W szczególności izotermiczna kalorymetria miareczkowa (ITC) została przyjęta jako metoda z wyboru do charakterystyki termodynamiki równowag biomolekularnych, obejmujących oddziaływania białko-ligand, białko-białko, białko-jony metali oraz białko-DNA1-6. Ponadto zdolność ITC do dostarczania informacji kinetycznych sprawia, że jest to bardzo potężny system do pomiaru katalizy enzymatycznej, choć potencjał tego zastosowania jest wciąż niedoceniany7-9.
Równanie Michaelisa-Menten10 stanowi ilościowy opis reakcji enzymatycznych, ponieważ określa zależność między szybkością reakcji a stężeniem substratu, w zależności od dwóch parametrów kinetycznych: stałej Michaelisa (KM) oraz stałej szybkości katalitycznej (kcat). Stosunek kcat/KM określa się jako wydajność katalityczną enzymu. W praktyce wyznaczenie KM oraz kcat dla konkretnej reakcji zapewnia pełny opis katalizy.
W typowej reakcji enzymatycznej (Rysunek 1) substrat (S) oddziałuje z enzymem (E), tworząc kompleks enzym-substrat (ES), który następnie zostaje aktywowany do stanu przejściowego (ES*). Ten ostatni przekształca się w kompleks enzym-produkt (EP), który ostatecznie ulega dysocjacji. Etapy te są opisane przez następującą reakcję.
 (1)
gdzie k1 jest stałą szybkości tworzenia kompleksu ES, k-1 jest stałą szybkości dysocjacji kompleksu ES, a kcat jest katalityczną stałą szybkości lub liczbą obrotów.
Zgodnie z równaniem Michaelisa-Menten10, szybkość reakcji można obliczyć jako:
 (2)
w której KM = (k-1 + kcat)/k1 oraz kcat = vmax/[E], gdzie vmax to maksymalna prędkość osiągana, gdy cały enzym jest związany z substratem.
Izotermiczny kalorymetr miareczkowy to instrument wykorzystany w niniejszym badaniu do charakterystyki enzymatycznej hydrolizy mocznika. Instrument ten składa się z osłony adiabatycznej zawierającej dwie komórki w kształcie monety (Rycina 1). Są one połączone z zewnątrz za pomocą wąskich rurek doprowadzających. Komórkę z próbką (ca. 1.4 ml) wypełnia się roztworem enzymu, natomiast komórkę referencyjną zazwyczaj wypełnia się wodą lub rozpuszczalnikiem użytym do analizy. Na komórce z próbką zamontowana jest obrotowa strzykawka z długą igłą i dołączonym mieszadłem, zawierająca zazwyczaj ca. 0.3 ml roztworu substratu. Urządzenie termoelektryczne mierzy różnicę temperatur między komórką z próbką a komórką referencyjną i, wykorzystując „układ sprzężenia zwrotnego komórki”, utrzymuje tę różnicę na poziomie zera poprzez dodawanie lub odbieranie ciepła. Podczas eksperymentu substrat jest wstrzykiwany do roztworu enzymu w stałej, wybranej temperaturze. Gdy zachodzi reakcja enzymatyczna, ilość wydzielonego lub pochłoniętego ciepła jest proporcjonalna do liczby cząsteczek substratu przekształconych w cząsteczki produktu. Dodatkowo szybkość przepływu ciepła jest bezpośrednio powiązana z szybkością reakcji. Zmierzone dane, widoczne jako odchylenie krzywej ciepła od początkowej linii bazowej (Rycina 1), reprezentują moc cieplną (μcal/sec) dostarczaną przez instrument do komórki z próbką, która jest proporcjonalna do przepływu ciepła zachodzącego w komórce z próbką w czasie.

Rycina 1. Schematyczna reprezentacja izotermicznego kalorymetru miareczkowego do badania reakcji enzymatycznych. Reakcja enzymatyczna zachodząca podczas miareczkowania substratu (w strzykawce dozującej) do roztworu enzymu (w ogniwie próbkowym) prowadzi do zmiany mocy cieplnej uwalnianej przez kalorymetr, niezbędnej do utrzymania stałej różnicy temperatury między ogniwem próbkowym a ogniwem referencyjnym. Kliknij tutaj, aby wyświetlić większy obraz.
Ogólnie zmiana ciepła (Q) jest proporcjonalna do molowej entalpii reakcji (ΔH) oraz liczby moli powstałego produktu (n), która z kolei jest określana przez iloczyn całkowitej objętości i stężenia:
 (3)
Tworzenie produktu w czasie (dP/dt), które odpowiada szybkości reakcji, można zatem powiązać z ilością ciepła wydzielonego w tym samym czasie (dQ/dt) za pomocą zależności:
 (4)
Zgodnie z tym równaniem, aby uzyskać wykres Michaelisa-Menten, konieczne jest pomierzenie i) całkowitej entalpii molowej ΔH oraz ii) strumienia ciepła dQ/dt przy różnych stężeniach substratu. Zazwyczaj wykonuje się to w dwóch różnych doświadczeniach: w pierwszym doświadczeniu (Metoda 1, M1) substrat jest wstrzykiwany do roztworu enzymu i mierzone jest ciepło towarzyszące całkowitej konwersji substratu; w drugim doświadczeniu (Metoda 2, M2) wykonuje się wielokrotne wstrzyknięcia substratu i mierzy się szybkość wydzielania ciepła przy różnych stężeniach substratu. Te dwa zestawy danych są wystarczające do wyznaczenia parametrów kinetycznych KM oraz kcat.
W niniejszym artykule opisano ogólny protokół wyznaczania parametrów kinetycznych dla reakcji enzymatycznych przeprowadzanych za pomocą ITC. Metodę tę zastosowano w układzie referencyjnym do hydrolizy mocznika przez ureazę z Canavalia ensiformis. Dobra zgodność wyników uzyskanych tą metodą z danymi raportowanymi w literaturze potwierdza niezawodność tego podejścia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie próbek
- Przygotować 2 ml roztworu enzymu i 0,5 ml roztworu substratu dla każdego pomiaru eksperymentalnego. Rozcieńczyć stężone roztwory stokowe enzymu i substratu w roztworach buforowych o identycznym składzie, aby zminimalizować ciepło rozcieńczenia i mieszania podczas dodawania substratu.
- Wybrać warunki buforowe odpowiednie do zapobiegania zmianom pH podczas eksperymentu. Na przykład 20 mM HEPES pH 7 jest odpowiedni dla pomiarów przy neutralnym pH.
UWAGA: Jeśli zachodzi wymiana protonów, należy uwzględnić entalpie protonowania stosowanych buforów, ponieważ wpływają one na mierzone ΔH reakcji. Należy wziąć pod uwagę możliwe specyficzne efekty cząsteczek buforu lub dodatków na analizowany układ. Jeśli w roztworze enzymu znajdują się rozpuszczalniki organiczne (np. DMSO), należy dodać je w dokładnie takim samym stężeniu do roztworu substratu. - W przypadku eksperymentu M1 należy zacząć od stężenia enzymu w zakresie nM (np. 1 nM) oraz stężenia substratu co najmniej o trzy rzędy wielkości wyższego niż stężenie enzymu i powyżej KM.
- W przypadku eksperymentu M2 należy zacząć od stężenia enzymu w zakresie pM-nM (np. 15 pM). Stężenie substratu w strzykawce powinno znajdować się w zakresie mM (np. 400 mM).
UWAGA: W eksperymencie M1 z pojedynczą injekcją stężenia powinny być odpowiednie, aby osiągnąć całkowitą konwersję substratu w produkt w czasie eksperymentu. Zatem stężenie enzymu zależy od szybkości działania enzymu: jeśli badane są enzymy o niskim kcat, należy zastosować wyższe stężenia enzymu (do 10 µM). Z drugiej strony, stężenia enzymu stosowane w eksperymencie M2 muszą zapewniać, że wstrzyknięty substrat zostanie zużyty jedynie w niewielkim stopniu (mniej niż 5%) i że reakcja enzymatyczna przebiega w stanie stacjonarnym. Z tego powodu im wyższa wydajność enzymu, tym niższe wymagane stężenie enzymu. Na koniec eksperymentu stężenie substratu w komórce pomiarowej powinno być wyższe niż KM.
- Wybrać warunki buforowe odpowiednie do zapobiegania zmianom pH podczas eksperymentu. Na przykład 20 mM HEPES pH 7 jest odpowiedni dla pomiarów przy neutralnym pH.
- Dokładnie sprawdzić stężenia enzymu i substratu za pomocą odpowiedniej procedury analitycznej (np. absorbancja przy 280 nm, metody kolorymetryczne, testy BCA11). Jest to niezbędne do uzyskania dokładnych i wiarygodnych obliczeń parametrów termodynamicznych i kinetycznych.
- Zmierzyć pH roztworów i zweryfikować, czy różnica pH obu roztworów (enzymu i substratu) w warunkach eksperymentalnych jest minimalna (±0,05 jednostki pH).
2. Przeprowadzenie eksperymentu
UWAGA: Tę samą procedurę należy zastosować zarówno w eksperymencie M1, jak i M2, które są wykonywane jeden po drugim.
- Należy upewnić się, że ogniwo z próbką i strzykawka do iniekcji zostały oczyszczone zgodnie z instrukcjami producenta. Strzykawkę do napełniania dołączoną do instrumentu należy wypełnić wodą destylowaną, ostrożnie wprowadzić igłę do ogniwa z próbką, napełnić ogniwo, a następnie usunąć ciecz za pomocą tej samej strzykawki. Stosując tę metodę, należy dwukrotnie przemyć ogniwo z próbką wodą destylowaną i dwukrotnie buforem.
- Za pomocą strzykawki do napełniania należy wprowadzić do ogniwa z próbką 2 ml roztworu enzymu, uważając, aby nie powstały pęcherzyki powietrza. Roztwór należy powoli wstrzykiwać do ogniwa, aż wypłynie on górą trzpienia ogniwa. Należy doprowadzić do wypłynięcia ok. 0,25 ml roztworu z ogniwa. Czynność tę należy powtórzyć dwukrotnie. Krok ten pozwala usunąć pęcherzyki powietrza uwięzione w ogniwie z próbką.
- Igłę strzykawki do napełniania należy umieścić na krawędzi między trzpieniem a otworem ogniwa i usunąć nadmiar roztworu.
- Należy uruchomić program VP-Viewer i za pomocą interfejsu komputerowego ustabilizować temperaturę instrumentu ITC na wartość o 3 °C niższą od pożądanej temperatury eksperymentalnej. Jest to konieczne, aby uniknąć długich okresów equilibracji przed eksperymentem ze względu na pasywne urządzenie chłodzące instrument.
- Ogniwo referencyjne należy napełnić wodą destylowaną zgodnie z powyższą procedurą. W przypadku stosowania w roztworze próbki buforów o wysokiej sile jonowej lub wysokiej osmolalności, jako roztwór referencyjny należy użyć tego samego buforu.
- Za pomocą cienkiej rurki silikonowej należy połączyć plastikową strzykawkę z otworem napełniającym strzykawki do iniekcji. Należy napełnić strzykawkę do iniekcji, umieszczając końcówkę igły w wodzie i zasysając ciecz, aż woda wypłynie z górnego otworu napełniającego, co wskazuje na pełne wypełnienie strzykawki. Następnie należy wyjąć końcówkę strzykawki z wody i zassać powietrze, aby opróżnić strzykawkę do iniekcji. W ten sposób należy przemyć strzykawkę do iniekcji buforem i przepuścić powietrze przez system. Następnie igłę do iniekcji należy umieścić w wąskiej probówce zawierającej 0,5 ml roztworu substratu, ostrożnie zassać i całkowicie napełnić strzykawkę do iniekcji, pozostawiając niewielką ilość roztworu na dnie probówki.
- W interfejsie komputerowym należy nacisnąć „Close fill port”. Następnie należy usunąć silikonową rurkę do napełniania. Należy nacisnąć przycisk „Purge and refill”, aby umożliwić usunięcie pęcherzyków powietrza ze strzykawki do iniekcji i ich wypchnięcie z powrotem do głównego roztworu. Czynność tę należy powtórzyć dwukrotnie.
- Należy przesunąć strzykawkę do iniekcji, przetrzeć jej boki, aby usunąć krople, a następnie umieścić igłę strzykawki w ogniwie z próbką.
- Na komputerze należy ustawić odpowiednie parametry pomiaru. Można wskazać eksperymentalne stężenia enzymu i substratu.
- W eksperymencie M1 należy ustawić co najmniej dwa dodatki (5-30 µl) substratu w celu weryfikacji powtarzalności. Odstęp czasu między poszczególnymi iniekcjami (np. 1000 s) powinien być na tyle duży, aby sygnał cieplny powrócił do linii bazowej przed kolejnym dodatkiem.
- W eksperymencie M2 należy ustawić wielokrotne (np. 15 x 5-10 µl) iniekcje. Należy ustawić odstęp między iniekcjami (np. 180 s), umożliwiający systemowi ustabilizowanie mocy termicznej do nowej linii bazowej po każdej iniekcji.
UWAGA: Odstęp czasu między iniekcjami w eksperymencie M2 powinien być na tyle krótki, aby uniknąć konwersji znacznej ilości substratu, co pozwoli na przeprowadzenie pomiarów w warunkach stanu stacjonarnego. - W eksperymencie M2 do pierwszej iniekcji należy użyć małych objętości (np. 2 μl), których odpowiadająca wartość jest odrzucana podczas późniejszej analizy danych. Wynika to z faktu, że często występują artefakty spowodowane początkową dyfuzją substratu przez końcówkę strzykawki oraz obecnością pęcherzyków powietrza uwięzionych w igle strzykawki.
- Moc referencyjną (przybliżony poziom linii bazowej przed rozpoczęciem reakcji) należy ustawić na wartość 20. Następnie należy określić eksperymentalne stężenia enzymu i substratu oraz wybrać nazwę eksperymentu.
- Należy określić temperaturę eksperymentalną, zazwyczaj 25 °C. ITC pozwala na pracę w temperaturach od 2 °C do 80 °C. Eksperyment jest gotowy do przeprowadzenia. Należy nacisnąć przycisk „Start”, aby rozpocząć pomiar.
- Po zakończeniu eksperymentu należy oczyścić ogniwo z próbką i strzykawkę zgodnie z instrukcjami producenta.
- Należy powtórzyć eksperyment co najmniej jeden lub dwa razy, aby sprawdzić powtarzalność danych.
3. Analiza danych
- W programie analitycznym kliknij przycisk „Read data” i przejdź do folderu, w którym znajduje się plik .itc przeprowadzonego eksperymentu M2. Kliknij strzałkę rozwijania w polu „Files of type” i wybierz „Enzyme Assay (it?)”. Następnie kliknij i otwórz plik .itc eksperymentu M2.
- Wyznacz ΔH reakcji poprzez całkowanie krzywej eksperymentu M1 zgodnie z równaniem 5.
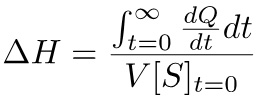 (5)
- Kliknij przycisk „Read data” i wybierz plik .itc przeprowadzonego eksperymentu M1. Używając programu Origin, podziel zapis na różne części zawierające po jednym piku i zapisz każdy pik jako plik .opj. Otwórz plik odpowiadający pierwszemu piku, wynikającemu z odchylenia linii bazowej na termogramie eksperymentu M1 z pojedynczym wtryskiem, zintegruj go i podziel uzyskaną wartość pola, wyrażoną w µcal, przez końcowe stężenie substratu w komórce z próbką, wyrażone w µM, oraz przez objętość komórki wyrażoną w litrach, wyznaczając zgodnie z równaniem 5 ΔH reakcji.
- Powtórz tę samą procedurę dla drugiego piku eksperymentu M1 i oblicz średnią wartość z dwóch pomiarów ΔH.
- Wyznacz dQ/dt z eksperymentu M2, mierząc różnicę między pierwotną linią bazową a nową linią bazową po każdym wtrysku. Przelicz dane eksperymentalne na szybkości reakcji zgodnie z równaniem 4, używając wartości entalpii uzyskanej w eksperymencie M1, a następnie dopasuj dane do równania Michaelisa-Menten.
- W programie analitycznym kliknij przycisk „Read data” i wybierz plik .itc przeprowadzonego eksperymentu M2. Kliknij strzałkę rozwijania w polu „Files of type” i wybierz „Enzyme Assay (it?)”.
- Otworzy się okno dialogowe Enzyme Assay, umożliwiające wybór jednego z czterech modeli. Z okna wybierz „Method 2 - Substrate only”.
- W oknie ΔH wprowadź wartość ΔH uzyskaną w kroku 4.2.
- Kliknij przycisk „Concentration”, aby sprawdzić wartości stężeń, które zostaną użyte w procedurze dopasowania. Kliknij przycisk „Average Time (P)”. Otworzy się okno dialogowe dające możliwość zmiany lub zaakceptowania wartości domyślnej. Wartość ta reprezentuje czas przed każdym wtryskiem, w którym instrument uśrednia sygnał mocy w celu określenia poziomu mocy dla każdego stężenia substratu. Kliknij OK, aby potwierdzić wartość domyślną.
- Kliknij przycisk „Zero Y Axis”. Kursor zmieni się w celownik, co pozwoli na dwukrotne kliknięcie punktu w celu ustawienia go na y=0. Kliknij dwukrotnie tuż przed punktem pierwszego wtrysku.
- Kliknij przycisk Calculate Rate. Szybkość zostanie naniesiona względem stężenia substratu, wyznaczonego poprzez podzielenie ilości substratu dodanego podczas miareczkowania przez objętość komórki z próbką (uwzględniając efekty rozcieńczenia). Operacja ta daje typowy wykres Michaelisa-Menten, który można dopasować w celu wyznaczenia KM i kcat.
- Jeśli niektóre punkty wymagają usunięcia, wybierz przycisk „Truncate Data” . Przesuń markery danych, aby wykluczyć błędne punkty danych, a następnie kliknij dwukrotnie jeden z markerów lub naciśnij enter.
- Użyj funkcji „Fit to model”, aby dopasować krzywą i uzyskać stałe kinetyczne.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Ureaza (EC 3.5.1.5; amidohydrolaza mocznika) jest wielopodjednostkowym enzymem zawierającym nikiel, występującym u archeonów, bakterii, jednokomórkowych eukariotów oraz roślin. Białko to bierze udział w ostatnim etapie mineralizacji organicznego azotu, katalizując hydrolizę mocznika do amoniaku i karbamianu, który ulega spontanicznemu rozkładowi, tworząc drugą cząsteczkę amoniaku oraz wodorowęglan (Równanie 6)12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Znaczenie ITC w badaniu aktywności enzymatycznej w odniesieniu do istniejących metod
Oprócz klasycznych zastosowań w badaniu równowag wiązania, izotermiczna kalorymetria miareczkowa (ITC) zapewnia niezawodną i szybką metodę charakteryzacji reakcji enzymatycznych w roztworach, wykorzystując ciepło reakcji jako wskaźnik, bez konieczności modyfikacji systemu lub znakowania. Parametry kinetyczne kcat oraz KM są zazwyczaj wyznaczane poprzez z...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Firma Specjalistycznych Produktów Nawozowych (SFP) jest wdzięczna za dostarczenie funduszy niezbędnych do przeprowadzenia tego badania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| HEPES | Sigma | H3375 | rozpuszczanie w wodzie i dostosowywanie pH za pomocą NaOH |
| TRIZMA-Base | Sigma | T1503 | rozpuszczanie w wodzie i dostosowywanie pH za pomocą HCl |
| Diwodorofosforan sodu | Riedel-de-Haen | 4270 | rozpuszczanie w wodzie |
| Fosforan sodu dwuzasadowy | Riedel-de-Haen | 30427 | rozpuszczający się w wodzie |
| Mocznik | Sigma | U4128 | rozpuszcza się w wodzie w temperaturze 40 & stopni; C |
| Canavalia ensiformis ureaza (typ C-3) | Sigma | U0251 | rozpuszcza się w 20 mM HEPES pH 7 i jest przechowywana w temperaturze -80 &; C |
| VP-ITC on Origin 7.0 | MicroCal (GE Healthcare) | SYS13901 | instrument |
| VPViewer2000 1.30.00 w oprogramowaniu do | MicroCal (GE Healthcare) | dostarczonym z urządzeniem |
Bibliografia
- Leavitt, S., Freire, E. Direct measurement of protein binding energetics by isothermal titration calorimetry. Curr. Opin. Struct. Biol. 11, 560-566 (2001).
- Ladbury, J. E. Application of isothermal titration calorimetry in the biological sciences: things are heating up! BioTechniques. 37, 885-887 (2004).
- Zambelli, B., Bellucci, M., Danielli, A., Scarlato, V., Ciurli, S. The Ni2+ binding properties of Helicobacter pylori NikR. Chem. Commun. , 3649-3651 (2007).
- Zambelli, B., et al. High-affinity Ni2+ binding selectively promotes binding of Helicobacter pylori NikR to its target urease promoter. J. Mol. Biol. 383, 1129-1143 (2008).
- Duff, M. R., Grubbs, J., Howell, E. E. Isothermal titration calorimetry for measuring macromolecule-ligand affinity. J. Vis. Exp. , (2011).
- Ghai, R., Falconer, R. J., Collins, B. M. Applications of isothermal titration calorimetry in pure and applied research--survey of the literature from 2010. J. Mol. Recognit. 25, 32-52 (2012).
- Todd, M. J., Gomez, J. Enzyme kinetics determined using calorimetry: a general assay for enzyme activity. Anal. Biochem. 296, 179-187 (2001).
- Bianconi, M. L. Calorimetry of enzyme-catalyzed reactions. Biophys. Chem. 126, 59-64 (2007).
- Demarse, N. A., Killian, M. C., Hansen, L. D., Quinn, C. F. Determining enzyme kinetics via isothermal titration calorimetry. Methods Mol. Biol. 978, 21-30 (2013).
- Michaelis, L., Menten, M. Die kinetik der invertinwirkung. Biochem. Z. 49, 333-369 (1913).
- Walker, J. Principle and techniques of practical biochemistry. Wilson, K., Walker, J. , Cambridge University Press. 312-356 (2000).
- Ciurli, S. Nickel and its surprising impact in nature. Sigel, A., Sigel, H., Sigel, R. K. O. 2, John Wiley & Sons. 241-278 (2007).
- Zambelli, B., Musiani, F., Benini, S., Ciurli, S. Chemistry of Ni2+ in urease: sensing, trafficking, and catalysis. Acc. Chem. Res. 44, 520-530 (2011).
- Zonia, L. E., Stebbins, N. E., Polacco, J. C. Essential role of urease in germination of nitrogen-limited Arabidopsis thaliana seeds. Plant Physiol. 107, 1097-1103 (1995).
- Follmer, C. Insights into the role and structure of plant ureases. Phytochemistry. 69, 18-28 (2008).
- Sumner, J. B. The isolation and crystallization of the enzyme urease. J. Biol. Chem. 69, 435-441 (1926).
- Krajewska, B. Ureases I. Functional, catalytic and kinetic properties: A review. J. Mol. Cat. B. 59, 9-21 (2009).
- Callahan, B. P., Yuan, Y., Wolfenden, R. The burden borne by urease. J. Am. Chem. Soc. 127, 10828-10829 (2005).
- Krajewska, B., van Eldik, R., Brindell, M. Temperature- and pressure-dependent stopped-flow kinetic studies of jack bean urease. Implications for the catalytic mechanism. J. Biol. Inorg. Chem. 17, 1123-1134 (2012).
- Hausinger, R. P., Karplus, P. A. Handbook of Metalloproteins. Huber, R., Poulos, T., Wieghardt, K. , John Wiley & Sons. 867-879 (2001).
- Goldberg, R., Kishore, N., Lennen, R. Thermodynamic quantities for the ionization reactions of buffers. J. Phys. Chem. Ref. Data. 31, 231-370 (2002).
- Baumann, M. J., et al. Advantages of isothermal titration calorimetry for xylanase kinetics in comparison to chemical-reducing-end assays. Anal. Biochem. 410, 19-26 (2011).
- Noske, R., Cornelius, F., Clarke, R. J. Investigation of the enzymatic activity of the Na+,K+-ATPase via isothermal titration microcalorimetry. Biochim. Biophys. Acta. 1797, 1540-1545 (2010).
- Harmon, K. M., Niemann, C. The competitive inhibition of the urease-catalyzed hydrolysis of urea by phosphate. J. Biol. Chem. 177, 601-605 (1949).
- Benini, S., Rypniewski, W. R., Wilson, K. S., Ciurli, S., Mangani, S. Structure-based rationalization of urease inhibition by phosphate: novel insights into the enzyme mechanism. J. Biol. Inorg. Chem. 6, 778-790 (2001).
- Segel, I. H. Enzyme kinetics: behavior and analysis of rapid equilibrium and steady-state enzyme systems. , Wiley, NY. (1993).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
