Upośledzenie funkcji węchu jest powszechną cechą wielu zaburzeń neurodegeneracyjnych, w tym chorób Parkinsona, Alzheimera i Huntingtona. W niniejszym artykule opisujemy zestaw testów do oceny dyskryminacji i wykrywania węchu u myszy, które można wykorzystać do pomiaru zdolności węchowych w mysich modelach chorób neurodegeneracyjnych.
Artykuł metodologiczny
Testy węchowe dla mysich modeli choroby neurodegeneracyjnej
W tym artykule
Podsumowanie
Streszczenie
W wielu chorobach neurodegeneracyjnych, a szczególnie w chorobie Parkinsona, deficyty węchu występują na wczesnym etapie procesu chorobowego i mogą być użytecznym markerem behawioralnym do wczesnego wykrywania. Wcześniejsze wykrycie choroby neurodegeneracyjnej jest głównym celem w tej dziedzinie, ponieważ to właśnie wtedy terapie neuroprotekcyjne mają największy potencjał, aby być skuteczne. Dlatego w badaniach przedklinicznych testujących nowe strategie neuroprotekcyjne w modelach choroby neurodegeneracyjnej u gryzoni, ocena węchu może być bardzo przydatna w określaniu potencjału terapeutycznego związków i ich przełożeniu do praktyki klinicznej. W niniejszym badaniu opisujemy baterię testów węchowych, które są przydatne w pomiarze funkcji węchowych u myszy. Testy przedstawione w tym badaniu zostały wybrane, ponieważ mierzą zdolności węchowe myszy związane z zapachami żywności, zapachami społecznymi i zapachami niespołecznymi. Testy te okazały się przydatne w charakteryzowaniu nowych mysich modeli genetycznych choroby Parkinsona, a także w testowaniu potencjalnych terapii modyfikujących przebieg choroby.
Wprowadzenie
Dysfunkcja węchu jest związana z wieloma zaburzeniami neurodegeneracyjnymi, w tym z chorobą Parkinsona (PD), chorobą Alzheimera i chorobą Huntingtona1. W chorobie Parkinsona zaburzenia węchu obejmują deficyty w rozpoznawaniu, wykrywaniu i rozróżnianiu zapachów i występują nawet u 70-95% pacjentóww wieku 2-5 lat. Deficyty te mogą poprzedzać główne objawy motoryczne PD nawet o 4 lata, co wskazuje, że dysfunkcja węchu może sygnalizować wczesne stadia PD6-10. Wczesne występowanie deficytów węchowych w chorobie Parkinsona doprowadziło do dużego zainteresowania dysfunkcją węchu i związanymi z nią mechanizmami. W badaniach przedklinicznych na gryzoniach dysfunkcja węchu może być czułą miarą wyników do przewidywania potencjału terapeutycznego nowych strategii terapeutycznych.
Wiele testów zostało zaprojektowanych i szeroko wykorzystywanych do charakteryzowania zaburzeń sensomotorycznych w modelach PD u gryzoni oraz do testowania potencjału terapeutycznego nowych terapii11-15. Mimo że deficyty węchu są dobrze udokumentowane w PD, funkcja węchu nie była rutynowo mierzona w wielu modelach. Pogląd ten zmienia się jednak wraz z odkryciem genetycznych form choroby Parkinsona i bardziej akceptowanym poglądem, że choroba Parkinsona jest zaburzeniem ogólnoustrojowym wpływającym nie tylko na funkcje sensomotoryczne. Obecnie prowadzone są liczne badania na genetycznych mysich modelach PD i innych zaburzeń neurodegeneracyjnych, które obejmują analizę węchu w charakterystyce16-24. Biorąc pod uwagę rosnące zainteresowanie dysfunkcją węchu w zaburzeniach neurodegeneracyjnych, staraliśmy się zebrać baterię testów węchowych, które można wykorzystać do scharakteryzowania nowych modeli neurodegeneracji, a także do przetestowania potencjalnych terapii modyfikujących przebieg choroby w badaniach przedklinicznych. Testy opisane w niniejszym badaniu zostały wykorzystane zarówno w badaniach charakterystycznych, jak i przedklinicznych18,25.
Testy wyróżnione w tym badaniu okazały się czułe w wykrywaniu dysfunkcji węchu w często używanym mysim modelu choroby Parkinsona z nadekspresją alfa-synukleiny18. Obejmują one test zakopanych kulek26,27, dostosowaną wersję testu blokowego23,24,28,29 oraz test przyzwyczajenia/dehabituacji30. Ważne jest, aby zauważyć, że istnieje kilka adaptacji testów opisanych w tym badaniu, które są czułymi miarami funkcji węchowych u myszy, a te, na które zwrócono uwagę w tym badaniu, to testy, z którymi nasze laboratorium ma największe doświadczenie i rutynowo je stosuje.
Protokół
Wszystkie kroki protokołu są zgodne z wytycznymi i przepisami dotyczącymi opieki nad zwierzętami i ich użytkowania określonymi przez IACUC Uniwersytetu w Cincinnati.
1. Uwagi ogólne
- Jeśli to możliwe, przetestuj myszy podczas ich aktywnej fazy w ciemnym cyklu. Zazwyczaj wykonuj testy przy słabym oświetleniu i co najmniej 1 godzinę w ciemnym cyklu. Jeśli jednak testowanie w cyklu ciemnym nie jest wykonalne, wykonaj wszystkie trzy testy podczas cyklu światła. Należy pamiętać, że czas węchania może się skrócić, gdy myszy są testowane podczas cyklu snu. UWAGA: Chociaż testy można wykonać podczas cyklu snu, myszy mogą wykazywać mniejsze zainteresowanie zakopanym granulem, blokami lub wkładem zapachowym.
- Aby zmniejszyć jakikolwiek wpływ zewnętrznych sygnałów węchowych, noś podstawową parę rękawiczek przez cały czas trwania każdego testu, a następnie umieść czystą parę rękawiczek na parze podstawowych dla każdej myszy i każdej próby. Z reguły w razie wątpliwości załóż czysty zestaw rękawiczek. Miej pod ręką pudełko rękawiczek, ponieważ będą one często zmieniane. UWAGA: Do pracy ze zwierzętami używamy rękawic nitrylowych.
- Czyszczenie materiałów testowych i klatek między badanymi za pomocą środka dezynfekującego/sterylizującego jest również ważnym krokiem w tej baterii testów w celu zmniejszenia potencjału rozprzestrzeniania się choroby, a także usunięcia niepożądanych sygnałów węchowych.
2. Test zakopanych granulek
- Co najmniej dwa dni przed badaniem zapisz wagę każdej myszy, a następnie ogranicz jedzenie do 90% masy ciała. Przed badaniem i w trakcie ograniczania jedzenia należy dać każdej myszy 1-2 sztuki granulek, które mają być użyte podczas testu (np. kawałek słodzonych płatków zbożowych). Nie pomijaj tego kroku, ponieważ myszy są neofobiczne w stosunku do jedzenia i mogą nie szukać granulki podczas testu, jeśli wcześniej jej nie jadły.
- We wszystkie dni testowe przyzwyczajaj myszy na 1 godzinę przed testem, umieszczając ich klatkę w pomieszczeniu testowym bez butelki z wodą lub pojemnika na karmnik. Umieść je w domowej klatce z tylko górną pokrywą filtra.
- Podczas habituacji wypełnij czystą klatkę dla myszy o wysokości ~3 cm czystą ściółką, upewniając się, że ściółka jest równomiernie rozłożona w klatce. Ustaw minutnik na 5 minut.
- Po 1 godzinie przyzwyczajenia zakop 1 słodzony granulat zbożowy 0,5 cm poniżej ściółki, tak aby nie był widoczny.
- Wyjmij mysz testową z klatki domowej, umieść ją na środku klatki testowej, umieść górną pokrywę filtra na klatce i uruchom timer.
- Zatrzymaj stoper, gdy mysz odkryje kulkę i zacznie ją jeść. Zanotuj czas odsłonięcia zakopanego granulatu.
- Jeśli mysz nie znajdzie kulki w ciągu 5 minut, zakończ próbę i zanotuj wynik 300 sekund dla tej myszy. Przenieś granulkę na wierzch ściółki, aby mysz miała do niej dostęp, i pozwól myszy zjeść granulkę.
- Po zakończeniu próby przywróć mysz do jej klatki domowej.
- Opróżnij ściółkę z klatki testowej i wyczyść klatkę roztworem do czyszczenia pomieszczeń dla zwierząt.
- Powtórz kroki od 2.4 do 2.9 dla każdej myszy i zmień rękawice przed i po każdej myszy.
- Po przetestowaniu wszystkich myszy podaj im tylko tyle jedzenia, aby utrzymać je na poziomie 90% masy ciała.
- Wykonaj test w dniach 2-5 w taki sam sposób, jak w dniu testu 1, z jednym wyjątkiem; zakop osad w innym miejscu w klatce dla każdej próby.
- W dniu testowania 6 wykonaj próbę granulek powierzchniowych.
- W przypadku próby granulek powierzchniowych postępuj zgodnie z tą samą procedurą dla dnia testu 1, ale zamiast zakopywać granulat pod ściółką, umieść go na wierzchu ściółki. Zapisz czas, w którym mysz znajduje i zaczyna jeść granulkę.
3. Test blokowy
- Pojedynczo trzymaj myszy w czystych klatkach i umieść w klatce 5 klocków (oznaczonych A-E), zmieniając rękawiczki przed ustawieniem każdej klatki.
- Wykonaj test 24 godziny później. Przenieś myszy testowe do obszaru testowego, wyjmij butelkę z wodą i pojemnik na karmnik, a następnie umieść wszystkie 5 bloków z klatki wraz z garścią ściółki w plastikowej torbie oznaczonej identyfikacją zwierzęcia. Umieść zapieczętowaną plastikową torbę na domowej klatce myszy.
- Przyzwyczaj zwierzęta do ich domowej klatki bez butelki z wodą, kosza na karmnik i bloków przez 1 godzinę przed badaniem.
- Zmieniaj rękawiczki między każdą klatką, aby zapachy nie były wymieniane między zwierzętami/klockami.
- Ustaw klatki myszy obok siebie na stole z zachowaniem co najmniej 10 cm odstępu między każdą klatką. Ustaw kamerę wideo tak, aby przód klatki (a nie dłuższy bok klatki) był dobrze widoczny.
- Ustaw minutnik na 30 sekund i oznacz kartę ważnymi szczegółami eksperymentu (data, identyfikator myszy, próba itp.). Nagraj etykietę na wideo przez 2-3 sekundy.
- Wyjmij klocki A-D z plastikowej torby z identyfikatorem myszy i umieść je na środku klatki, tak aby były wyraźnie widoczne na kamerze wideo. Upewnij się, że między każdym z klocków jest ~1 cm odstępu. Umieść górną część filtra z powrotem na klatce. Uruchom minutnik i taśmę wideo na 30 sekund.
- Po 30 sekundach przerwij nagrywanie i wyjmij klocki z klatki i umieść je z powrotem w plastikowej torbie.
- Zmień rękawiczki, a następnie przejdź do następnej myszy, powtarzając tę samą procedurę, która została użyta w pierwszej próbie. Zrób to, aby uzyskać w sumie 6 prób dla każdej myszy, upewniając się, że interwał między próbami wynosi ~5 minut.
- W siódmej próbie postępuj zgodnie z tą samą procedurą dla prób 1-6, z wyjątkiem tego, że zamiast umieszczać blok D z własnej klatki myszy, dodaj blok E z klatki innej myszy, tak aby mysz była wystawiona na bloki A, B i C z własnej klatki domowej i blok E z klatki innej myszy. Odnotuj w książce laboratoryjnej, na czyj blok E narażona jest każda mysz i naprzemiennie, gdzie blok E jest umieszczony w klatce każdej myszy (np. ABCE lub AEBC). Weź blok E od myszy tej samej płci, ale nie od oryginalnego współwięźnia. Kaseta wideo na 30 sek.
- Po wykonaniu 7 prób zwróć zwierzęta do nowej, czystej klatki z ich oryginalnymi współtowarzyszami. Oczyść bloki użyte w teście łagodnym detergentem i wodą i pozostaw do wyschnięcia na powietrzu do użycia w późniejszych testach.
4. Przyzwyczajenie/Odzwyczajenie
- Wykonaj test habituacji/dezhabituacji w podobny sposób jak test blokowy, ale zamiast używać bloków, które mają zapach myszy, użyj wkładów z bibułkami zawierającymi bawełnę pachnącą różnymi parami ekstraktów.
- Wykonaj kroki 3.1-3.4, używając pojedynczego, bezzapachowego wkładu z chusteczką zamiast bloków.
- Przyzwyczaj myszy w pomieszczeniu testowym.
- Przygotuj pachnące wkłady chusteczki w oddzielnym pomieszczeniu. Umieść mały wacik w czystym kartuszu, a następnie dodaj 5 μl ekstraktu (np. ekstraktu z migdałów) do bawełny. Zatrzaśnij górną część wkładu na bawełnie i umieść w dedykowanym pudełku lub torbie oznaczonej tym zapachem.
- Wykonaj tę samą procedurę dla drugiego zapachu (np. ekstraktu z anyżu). Zmieniaj rękawiczki między obchodzeniem się z różnymi zapachami. Upewnij się, że wacik jest całkowicie zamknięty we wkładzie z chusteczką. UWAGA: Odsłonięte włókna z wacika mogą spowodować, że zwierzę zainteresuje się wacikiem w celach gniazdowych, a nie samym zapachem.
- Następnie wykonaj kroki 3.6-3.10, używając jednego pachnącego wkładu z tkanką w pierwszych sześciu próbach i drugiego pachnącego wkładu z tkanką w siódmym badaniu.
5. Analiza taśm wideo
- W przypadku testów bloku i habituacji/dezhabituacji, poproś oceniającego, który jest ślepy na warunki eksperymentalne, aby zmierzył czas spędzony na wąchaniu każdego bloku, przy czym wąchanie definiuje się jako kontakt nosowy z tym blokiem. W razie potrzeby zmierz inne zachowania, takie jak czas zbliżania się do nowego bloku (E) podczas próby 7 i całkowita aktywność (liczba ruchów wykonanych wzdłuż długości i szerokości klatki domowej) podczas każdej próby. Oceń czas spędzony na węszeniu i czas podejścia z taśmy wideo za pomocą stopera.
- Podobnie, w przypadku testu habituacji/dezhabituacji, poproś oceniającego, który jest ślepy na warunki eksperymentalne, aby zmierzył czas spędzony na wąchaniu wkładu, czas zbliżania się do wkładu i aktywność lokomotoryczną.
6. Statystyki
- Przeanalizuj test zakopanych granulek przy użyciu statystyk nieparametrycznych, ponieważ opóźnienie w znalezieniu wyników granulek ma tendencję do wykazywania niejednorodności wariancji. Uśrednij opóźnienie, aby zlokalizować osad w dniach 3-5, a następnie porównaj grupy myszy za pomocą testu U-Manna-Whitneya. Podobnie, w przypadku części testu dotyczącej powierzchniowych granulek, przeanalizuj opóźnienie, aby znaleźć osad za pomocą testu U Manna-Whitneya w celu porównania genotypów.
- W teście blokowym przeanalizuj dane z Próby 7 (wprowadzenie bloku o nowym zapachu). Zazwyczaj stosuje się analizy nieparametryczne, aby uwzględnić niejednorodność wariancji. Aby przeanalizować różnice w czasie spędzonym na wąchaniu nowego bloku, a także w czasie zbliżania się do bloków dla różnych grup eksperymentalnych, użyj testu U-Manna-Whitneya. Użyj testu Wilcoxon Signed Rank, aby porównać czas spędzony na wąchaniu nowego bloku z czasem spędzonym na wąchaniu znanych bloków.
- W przypadku testu habituacji/dezhabituacji należy przeprowadzić analizy parametryczne w próbach 1, 6 i 7, podobnie jak w poprzednich badaniach20. Jeśli myszy wykazują niewielkie lub żadne podsłuchiwanie, należy użyć analiz nieparametrycznych.
Wyniki
Testy zakopanego pelletu, bloku oraz habituacji/dishabituacji są bardzo korzystnymi metodami oceny węchu u myszy. Wykorzystując te testy, stwierdziliśmy istotne zmiany w funkcji węchu w wielu genetycznych modelach mysich choroby Parkinsona, w tym u myszy z nadekspresją alfa-synukleiny (Thy1-aSyn)18 oraz myszy z nokautem Atp13a2. Zarówno myszy Thy1-aSyn, jak i myszy z nokautem Atp13a2 potrzebują więcej czasu na odnalezienie zakopanego pelletu niż grupa kontrolna18. Ryciny 1-3 przedstawiają dane zebrane od myszy typu dzikiego oraz myszy z nokautem Atp13a2. W teście zakopanego pelletu myszy z nokautem Atp13a2 wykazują zwiększony czas opóźnienia w odnalezieniu zakopanego pelletu w porównaniu z myszami kontrolnymi typu dzikiego (Rycina 1). W teście bloku zarówno myszy typu dzikiego, jak i myszy z nokautem Atp13a2 węszą nowym blokiem z klatki innej myszy w porównaniu do bloków z ich własnej klatki domowej (Rycina 2). W teście habituacji/dishabituacji myszy typu dzikiego wykazują habituację do jednego zapachu, a następnie zwiększoną aktywność węszenia po wprowadzeniu nowego zapachu (Rycina 3).

Rysunek 1. Test zakopanej granulki. Czas opóźnienia do znalezienia granulki u typu dzikiego (n = 10) i Atp13a2 KO (n = 14) w wieku 20-27 m. * p < 0.05, test U Manna-Whitneya.
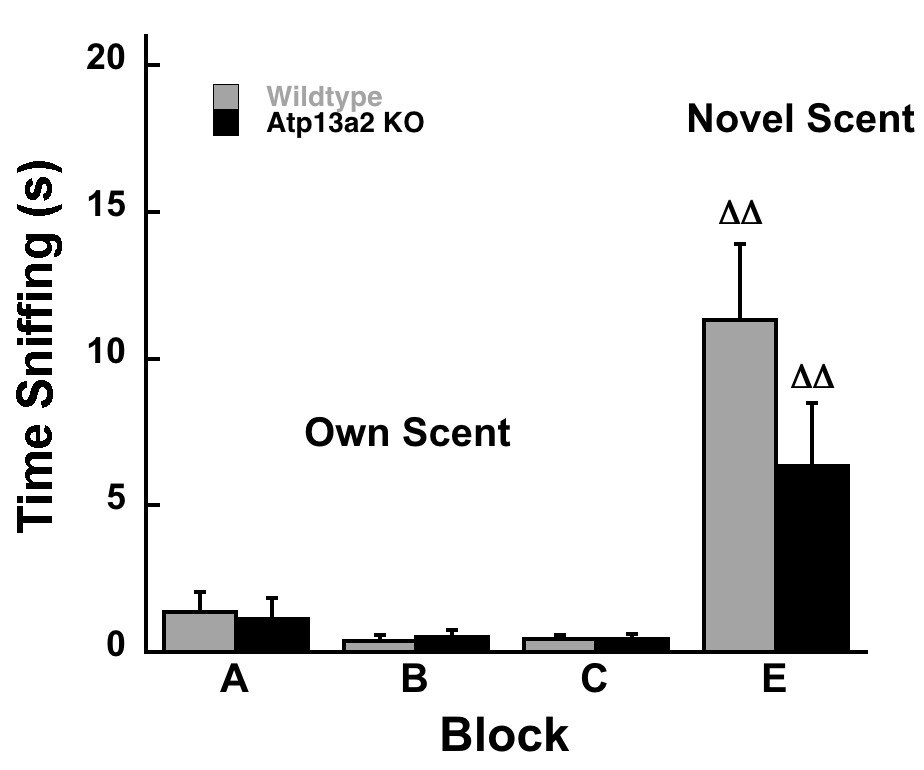
Rycina 2. Test blokowy. Czas węszenia nowego bloku (E) w teście blokowym u samic myszy typu dzikiego (n = 10) i Atp13a2 KO (n = 12) w wieku 20 - 27m. ΔΔ oznacza p < 0,01 w porównaniu do bloków A, B i C w obrębie tego samego genotypu. Test U Manna-Whitneya.
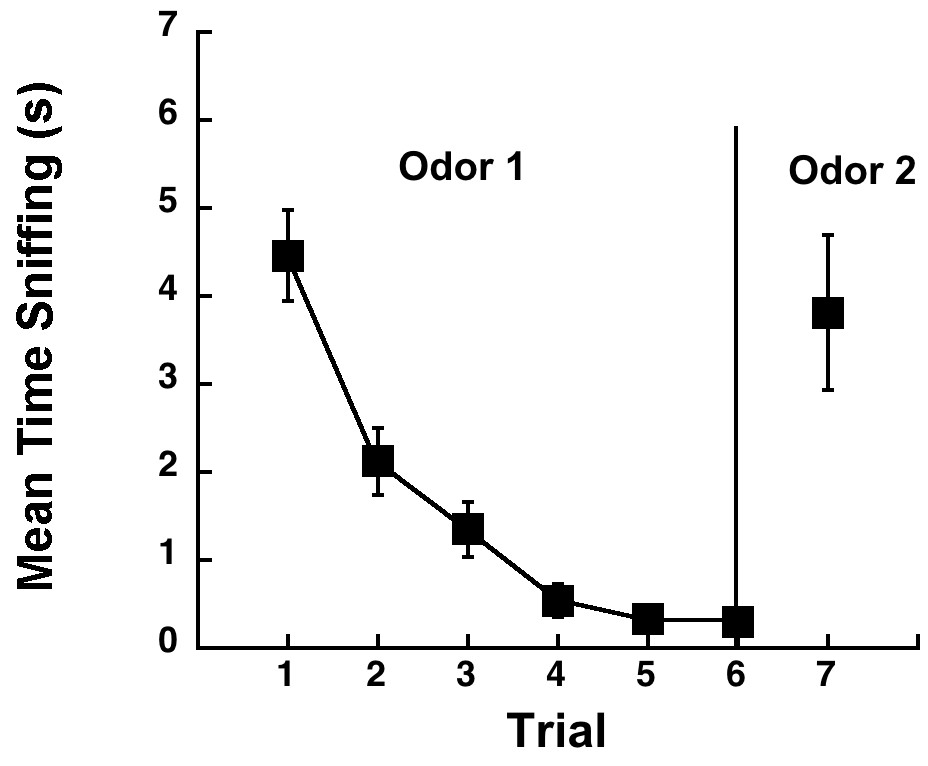
Rycina 3. Test habituacji/dehabituacji. Średni czas węszenia aromatycznego wkładu u myszy typu dzikiego (wiek 9 m, n = 7) w ciągu 6 prób oraz wprowadzenie wkładu z nowym zapachem w próbie 7.
Dyskusja
Każdy z testów opisanych w tym badaniu mierzy różne aspekty funkcji węchowych u myszy. Test zakopanych granulek mierzy aspekt motywacji żywieniowej węchu, testując zdolność głodnych (z ograniczeniami pokarmowymi, a nie pozbawionych jedzenia) myszy do wykrycia smacznego kawałka słodzonego zboża zakopanego pod ściółką. Test blokowy mierzy bardziej społeczny aspekt funkcji węchowych, testując zdolność myszy do rozróżniania własnego zapachu od zapachu współplemieńca. Test przyzwyczajenia/dezhabituacji ocenia zdolność myszy do rozróżniania znanych i nowych, nieszkodliwych zapachów. Stosowanie wielu testów jest ważne przy charakteryzowaniu nowego modelu, ponieważ anomalie w motywacji żywieniowej lub strachu mogą przyczyniać się do różnic obserwowanych u zmutowanych myszy w porównaniu z grupą kontrolną. Na przykład, jeśli wykonywany jest tylko test blokowy i obserwuje się zmniejszone wąchanie bloku, który ma zapach innej myszy, nie jest jasne, czy występuje deficyt węchowy, czy zwiększona reakcja strachu na przedstawiciela tego gatunku, która może prowadzić do uniknięcia tego bloku. Gdy przeprowadza się wiele testów i obserwuje się deficyty we wszystkich testach, zdecydowanie wspiera to interpretację upośledzenia węchu. Jeśli jednak różnice zaobserwuje się tylko w jednym teście, ale nie w pozostałych, może wystąpić bardziej subtelne upośledzenie węchu, ale konieczne będzie wykluczenie innych wyjaśnień (tj. zwiększonego strachu lub zmniejszonej motywacji do jedzenia). Dodatkowe ważne czynniki, o których należy pamiętać podczas testowania myszy z funkcjami węchowymi, obejmują tło, szczep i płeć myszy. Różne szczepy tła genetycznego (tj. C57BL/6, DBA itp.) mogą mieć głęboki wpływ na zachowanie myszy, dlatego zaleca się dostosowanie każdego protokołu u myszy typu dzikiego o tym samym pochodzeniu przed przeprowadzeniem całego eksperymentu. Zaleca się również, aby samce i samice myszy były testowane oddzielnie od siebie, ponieważ męski układ węchowy jest bardzo wrażliwy na samice w rui, a wykrycie węchu samicy w rui może zakłócać wydajność we wszystkich trzech testach.
Niektóre kroki są absolutnie niezbędne do wykonania podczas testowania węchu u myszy. Ważne jest, aby zwracać uwagę na zapachy, które eksperymentator wprowadza do zwierząt. Noszenie rękawiczek podczas zabiegów jest niezbędne i wymagana jest częsta zmiana rękawiczek między zwierzętami. Zawsze dobrą praktyką dla eksperymentatora jest nie używanie wody kolońskiej ani perfum w dni testów węchowych. Podczas gdy niektóre części procedury są nieelastyczne, istnieją inne części, które można modyfikować i dostosowywać bez zmniejszania ważności lub czułości testu. Na przykład liczba prób habituacji może być zwiększana lub zmniejszana w zależności od szczepu badanych myszy i tego, jak szybko przyzwyczajają się do bodźców. Głównym ograniczeniem tych testów jest to, że wszystkie są napędzane jakąś formą motywacji, czy to żywieniowej, czy społecznej, co utrudnia całkowite wykluczenie anomalii w motywacji jako wyjaśnienia, gdy zaobserwowano zmienioną reakcję. Można to zminimalizować, analizując dodatkowe parametry, takie jak aktywność podczas testowania i czas zbliżania się do bodźców.
Po opanowaniu testy mogą być łatwo wykorzystane do badania fenotypu nowych mysich modeli chorób neurodegeneracyjnych. Ponadto testy, które mają największą moc, mogą być włączone do badań przedklinicznych testujących potencjalne terapie (na przykład patrz odnośnik 25).
Oświadczenia
Nie mamy konfliktu interesów.
Podziękowania
Ten protokół jest zgodny ze wszystkimi wytycznymi i przepisami dotyczącymi opieki nad zwierzętami i ich użytkowania ustalonymi przez IACUC na Uniwersytecie w Cincinnati. Praca ta jest finansowana przez NIH/NINDS NS07722 oraz Gardner Family Center for Parkinson's Disease and Movement Disorders.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Cap'n Crunch | Quaker Oats | 30000065310 | |
| Drewniane Klocki | Lara's Crafts | 10144 | |
| Ekstrakt o smaku migdałowym | Kroger | 011110664716 | |
| Ekstrakt o smaku anyżu | Kroger | 011110615619 | |
| Ekstrakt o smaku bananowym | Kroger | 011110669919 | |
| Ekstrakt o smaku kokosowym | Kroger | 011110669889 | |
| Ekstrakt o smaku cytrynowym Ekstrakt | o | 011110669957 | |
| 0011110669964 | |||
| chusteczki higieniczne | Sigma-Aldrich | Z672122-500EA | Wyprodukowane przez Simport nr: M490-2 |
| Waciki | Kroger | 11110793119 | |
| Klatki dla myszy | Ancare | Kamera 19 x 29 x 12,7 cm | |
| Taśmy Sony | HDR-HC9 | ||
| MiniDV Sony | DVC premium | 27242523432 | 60-minutowy czas odtwarzania |
Bibliografia
- Hawkes, C. Olfaction in neurodegenerative disorder. Adv. Otorhinolaryngol. 63, 133-151 (2006).
- Ward, C., Hess, W., Calne, D. Olfactory impairment in Parkinson's disease. Neurology. 33, 943-946 (1983).
- Doty, R., Stern, M., Pfeiffer, C., Gollomp, S., Hurtig, H. Bilateral olfactory dysfunction in early stage treated and untreated idiopathic Parkinson's disease. J. Neurol. Neurosurg. Psychiatry. 55, 138-142 (1992).
- Doty, R., Deems, D., Stellar, S. Olfactory dysfunction in parkinsonism: a general deficit unrelated to neurologic signs, disease stage, or disease duration. Neurology. 38, 1237-1244 (1988).
- Tissingh, G., et al. Loss of olfaction in de novo and treated Parkinson's disease: possible implications for early diagnosis. Movement Disorders. 16 (1), 41-46 (2001).
- Montgomery, E., Baker, K., Lyons, K., Koller, W. Abnormal performance on the PD test battery by asymptomatic first-degree relatives. Neurology. 52, 757-762 (1999).
- Berendse, H., et al. Subclinical dopaminergic dysfunction in asymptomatic Parkinson's disease patients' relatives with a decreased sense of smell. Ann. Neurol. 50 (1), 34-41 (2001).
- Ponsen, M., Stoffers, D., Booij, J., van Eck-Smit, B., Wolters, E., Berendse, H. Idiopathic hyposmia as a preclinical sign of Parkinson's disease. Ann. Neurol. 56, 173-181 (2004).
- Langston, J. The Parkinson's complex: parkinsonism is just the tip of the iceberg. Ann. Neurol. 59 (4), 591-596 (2006).
- Ross, G., et al. Association of olfactory dysfunction with risk for future Parkinson's disease. Ann. Neurol. 63, 167-173 (2008).
- Fleming, S., et al. Early and progressive sensorimotor anomalies in mice overexpressing wild-type human alpha-synuclein. J. Neurosci. 24, 9434-9440 (2004).
- Fleming, S., Ekhator, O., Ghisays, V. Assessment of sensorimotor function in mouse models of Parkinson's disease. J. Vis. Exp. , e50303(2013).
- Schallert, T., Tillerson, J. L. Intervention strategies for degeneration of DA neurons in parkinsonism: Optimizing behavioral assessment of outcome. Central Nervous System Diseases. , 131-151 (2000).
- Whishaw, I., O'Connor, W., Dunnett, S. The contributions of motor cortex, nigrostriatal dopamine and caudate-putamen to skilled forelimb use in the rat. Brain. 109 (5), 805-843 (1986).
- Schwarting, R., Huston, J. The unilateral 6-hydroxydopamine lesion model in behavioral brain research. Analysis of functional deficits, recovery and treatments. Prog Neurobiol. 49 (3), 215-266 (1996).
- Glasl, L., et al. Pink1-deficiency in mice impairs gait, olfaction and serotonergic innervation of the olfactory bulb. Experimental Neurology. 235, 214-227 (2012).
- Kim, Y., Lussier, S., Rane, A., Choi, S., Andersen, J. Inducible dopaminergic glutathione depletion in an α-synuclein transgenic mouse model results in age-related olfactory dysfunction. Neuroscience. 172, 379-386 (2011).
- Fleming, S., Tetreault, N., Mulligan, C., Huston, C., Masliah, E., Chesselet, M. Olfactory deficits in mice overexpressing human wildtype alpha-synuclein. The European Journal of Neuroscience. 28 (2), 247-256 (2008).
- Nuber, S., et al. A progressive dopaminergic phenotype associated with neurotoxic conversion of α-synuclein in BAC-transgenic rats. Brain. 136 (2), 412-432 (2013).
- Macknin, J., Higuchi, M., Lee, V., Trojanowski, J., Doty, R. Olfactory dysfunction occurs in transgenic mice overexpressing human tau protein. Brain Res. 1000, 174-178 (2004).
- Lazic, S., et al. Olfactory abnormalities in Huntington's disease: decreased plasticity in the primary olfactory cortex of R6/1 transgenic mice and reduced olfactory discrimination in patients. Brain Res. 1151, 219-226 (2007).
- Wesson, D., Wilson, D., Nixon, R. Should olfactory dysfunction be used as a biomarker of Alzheimer's disease? Expert Review of Neurotherapeutics. 10 (5), 633-635 (2010).
- Taylor, T., Caudle, W., Miller, G. VMAT2-deficient mice display nigral and extranigral pathology and motor and nonmotor symptoms of Parkinson's disease. Parkinsons Dis. 2011, 124-165 (2011).
- Tillerson, J., Caudle, W., Parent, J., Gong, C., Schallert, T., Miller, G. Olfactory discrimination deficits in mice lacking the dopamine transporter or the D2 dopamine receptor. Behav. Brain Res. 172, 97-105 (2006).
- Fleming, S., et al. A pilot trial of the microtubule-interacting peptide (NAP) in mice overexpressing alpha-synuclein shows improvement in motor function and reduction of alpha-synuclein inclusions. Mol. Cell. Neurosci. 4, 597-606 (2011).
- Crawley, J. What's Wrong with My Mouse? Behavioral Phenotyping of Transgenic and Knockout Mice. , Wiley-Liss. NY. (2000).
- Nathan, B., Yost, J., Litherland, M., Struble, R., Switzer, P. Olfactory function in apoE knockout mice. Behav. Brain Res. 150, 1-7 (2004).
- Spinetta, M. A simple and sensitive odor recognition test for rats and mice detects retrograde amnesia caused by ethanol or other drugs that interfere with memory consolidation. Society for Neuroscience. , Washington, D.C. (2005).
- Spinetta, M., et al. Alcohol-induced retrograde memory impairment in rats: prevention by caffeine. Psychopharmacology. 201 (3), 361-371 (2008).
- Bielsky, I., Hu, S., Szegda, K., Westphal, H., Young, L. Profound impairment in social recognition and reduction in anxiety-like behavior in vasopressin V1a receptor knockout mice. Neuropsychopharmacology. 29, 483-493 (2004).
Przedruki i uprawnienia
