Aby kompleksowo zbadać różnorodność glikanów sprzężonych z O, nowa procedura redukcyjnej eliminacji β w żelu, połączona z permetylacją i metodą szybkiego podziału fazy, jest stosowana do analizy glikanów sprzężonych z O, bezpośrednio uwalnianych z glikoprotein rozdzielonych przez SDS-PAGE i podatnych na późniejszą analizę glikomiczną za pomocą spektrometrii mas.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ulepszona redukcyjna eliminacja β w żelu dla kompleksowych O-sprzężonych i sulfoglikomów za pomocą spektrometrii mas
W tym artykule
Podsumowanie
Streszczenie
Separacja białek za pomocą SDS-PAGE, a następnie proteolityczne trawienie w żelu rozdzielonych prążków białkowych pozwoliło na przeprowadzenie analizy proteomicznej próbek biologicznych w wysokiej rozdzielczości. Podobne podejścia, które pozwoliłyby na dogłębną analizę glikanów przenoszonych przez glikoproteiny rozdzielone przez SDS-PAGE, wymagają specjalnych rozważań w celu maksymalizacji odzysku i czułości przy użyciu spektrometrii mas (MS) jako metody wykrywania. Główną przeszkodą, którą należy pokonać w celu uzyskania wysokiej jakości danych, jest usunięcie zanieczyszczeń pochodzących z żelu, które zakłócają analizę stwardnienia rozsianego. Przedstawiony tutaj przepływ pracy próbki jest solidny, wydajny i eliminuje potrzebę czyszczenia HPLC na linii produkcyjnej przed stwardnieniem rozsianym. Kawałki żelu zawierające białka docelowe są myte w acetonitrylu, wodzie i octanie etylu w celu usunięcia zanieczyszczeń, w tym fragmentów polimerowego akrylamidu. Glikany sprzężone z O są uwalniane z białek docelowych przez redukcyjną eliminację β w żelu i odzyskiwane za pomocą solidnych, prostych procedur oczyszczania. Zaletą tego przepływu pracy jest to, że poprawia czułość wykrywania i charakteryzowania siarczanowanych glikanów. Procedury te pozwalają na skuteczne oddzielenie siarczanowych permetylowanych glikanów od niesiarczanowych (sjalowanych i obojętnych) permetylowanych glikanów poprzez szybki podział fazowy przed analizą MS, a tym samym usprawniają analizy glikomiczne i sulfoglikomiczne glikoprotein rozpoznawanych przez SDS-PAGE.
Wprowadzenie
Glikozylacja jest niezbędnym białkiem po modyfikacji, przyczyniającym się do fizjologii organizmu, patologii tkanek i rozpoznawania komórkowego 1-3. Pomimo znacznych postępów w glikonauce analitycznej, scharakteryzowanie pełnej różnorodności glikanów na określonym białku pozostaje niezwykle trudnym zadaniem, zwłaszcza w przypadku białek wyizolowanych z pierwotnych źródeł biologicznych. Niemniej jednak mikroheterogeniczność glikanów glikoproteinowych często wpływa na funkcjonalne interakcje z innymi białkami. Dlatego charakterystyka różnorodności glikanów jest niezbędna do zrozumienia fizjologicznego znaczenia glikozylacji komórkowej i tkankowej 4,5. Aby zrozumieć wpływ glikozylacji glikoproteiny na fizjologię i patofizjologię tkanek, coraz ważniejsze stają się solidne, czułe i kompleksowe techniki analizy glikomicznej. W analizie proteomicznej identyfikacja białek jest na ogół osiągana za pomocą analizy LC-MS/MS peptydów tryptycznych 6. Trawienie białek można przeprowadzić przy użyciu oczyszczonego białka lub białek rozpuszczonych przez SDS-PAGE po trawieniu w żelu z proteazami, takimi jak trypsyna 7-9. Wstępne wzbogacenie mieszanki białkowej przez SDS-PAGE zwiększa głębię i dokładność identyfikacji białek. Opracowanie analogicznych strategii analizy glikomicznej glikozylacji glikoproteiny leży w czołówce glikonauki.
Dwie główne klasy glikanów są przyłączone do szkieletu białkowego poprzez N-sprzężenie lub O-wiązanie. Glikany związane z N są przyłączone do reszt asparaginy (Asn) znajdujących się jako część sekwonu zdefiniowanego jako Asn-X-Ser / Thr / Cys (X to dowolny aminokwas z wyjątkiem proliny) i mogą być uwalniane przez trawienie enzymatyczne z peptydo-N-glikanazą (PNGaseF lub A), w roztworze, w żelu lub na blot 10-12. Glikany związane z O są głównie przyłączone do reszt seryny (Ser) lub treoniny (Thr). Jednak zidentyfikowano tylko jeden enzym, który jest zdolny do uwalniania glikanów związanych z O z glikoproteiny i ma bardzo ograniczoną specyficzność glikanową, uwalniając tylko najprostsze glikany związane z O. Strategie uwalniania chemicznego pozostają metodą z wyboru w celu kompleksowego uwalniania glikanów sprzężonych z O-z glikoprotein. Redukcyjna lub nieredukcyjna eliminacja β lub hydrazynoliza są dobrze scharakteryzowanymi technikami uwalniania chemicznego i są obecnie najczęściej stosowanymi metodami uwalniania glikanów sprzężonych z O z glikoprotein 13,14. Chociaż redukcyjna eliminacja β została zastosowana do uwolnienia glikanów sprzężonych z O z glikoprotein oddzielonych przez SDS-PAGE, poprzednie podejścia wymagały separacji HPLC do późniejszej analizy 15-17.
Wielowymiarowa analiza MS (MS n) stanowi obecnie najbogatsze źródło danych strukturalnych do charakteryzowania glikanów uwalnianych z glikoprotein izolowanych w ilościach oczekiwanych z większości źródeł biologicznych. Głębokość charakterystyki strukturalnej opartej na stwardnieniu rozsianym jest znacznie ułatwiona przez permetylację uwolnionych glikanów przed ich analizą. Permetylacja zwiększa jonizację i ma tendencję do wyrównywania odpowiedzi sygnału molowego w szerokim zakresie struktur glikanowych 18,19. Ponadto permetylacja jednoznacznie oznacza końcowe i podstawione ugrupowania monosacharydowe charakterystycznymi masami, zwiększając w ten sposób wyjaśnienie strukturalne 20-23. Na przykład kwaśne glikany są na ogół trudne do wykrycia przez stwardnienie rozsiane jako gatunki niepermetylowane. Chociaż kwaśne glikany mogą być wykrywane w trybie jonów ujemnych przez MS, niemożliwe jest wykrycie zarówno kwaśnych, jak i obojętnych glikanów w tym samym trybie jonowym. Główną zaletą permetylacji glikanów jest to, że wszystkie wolne grupy hydroksylowe (OH) na podstawnikach monosacharydowych glikanu zostaną pokryte grupą metylową (OCH3 lub OMe), dzięki czemu ładunki glikanu sjalowanego są neutralizowane, dzięki czemu są tak samo wykrywalne jak permetylowane neutralne (azjatyckie) glikany. Jednak hydroksylowe ugrupowania siarczanowe na sulfoglikanach są odporne na permetylację, co powoduje zatrzymanie ładunku anionowego, co hamuje jonizację i zmniejsza czułość. Ta supresja uniemożliwia obecnie kompleksową analizę glikomiczną bardzo złożonych glikoprotein, takich jak mucyny, które zawierają dużą ilość siarczanowych glikanów 24-26.
Ostatnie doniesienia na temat oczyszczania siarczanowych glikanów używały naładowanej, odwróconej chromatografii fazowej do oczyszczania i oddzielania permetylowanych glikanów przed analizą MALDI. Metoda ta polega na całkowitym oddzieleniu glikanów siarczanowych i niesiarczanowych przy użyciu różnych faz ruchomych do elucji, co jak stwierdziliśmy, jest mniej rygorystyczne niż podział faz organicznych. W związku z tym przedstawiono nowe techniki odpowiednie do wykrywania i wzbogacania sulfoglikanów. Techniki te pozwalają na ilościowy odzysk siarczanowanych glikanów w fazie wodnej po ekstrakcji woda:DCM (dichlorometan), która jest rutynowo wykonywana pod koniec reakcji permetylacji glikanów 27. Co ważne, to solidne oddzielenie permetylowanych sulfoglikanów od mieszaniny permetylowanych glikanów niesiarczanowych jednocześnie wzbogaca o naładowane gatunki, jednocześnie upraszczając wzorce fragmentacji MS2. Przedstawiono również kompleksowy protokół ulepszonej analizy glikanów sprzężonych z O-żelem w żelu. Ulepszony protokół zwiększa odzysk glikanów, zwiększa ilość informacji strukturalnych możliwych do uzyskania dzięki analizie permetylowanych glikanów za pomocą MSn oraz poprawia czułość analiz sulfoglykomicznych stosowanych do niezbędnych glikoprotein wyizolowanych ze źródeł biologicznych.
Ten protokół jest przeznaczony do analizy całych ekstraktów glikoproteinowych lub specyficznej glikoproteiny o znaczeniu zmiennym rozpoznanej przez SDS-PAGE i składa się z trzech procedur eksperymentalnych; A) oczyszczanie żelem, B) redukcyjna eliminacja β w żelu oraz C) permetylacja glikanów. Celem jest uzyskanie kompleksowych danych glikomicznych sprzężonych z O, dla glikoprotein zebranych z pierwotnych źródeł o znaczeniu biologicznym (ryc. 1). Glikoproteiny oddzielone za pomocą SDS-PAGE są wizualizowane przez barwienie, a interesujące prążki są wycinane, a powstała opaska żelowa jest krojona na małe kawałki. Kawałki żelu są odbarwiane i poddawane płukaniu octanem etylu w celu usunięcia zanieczyszczeń żelowych (rysunek 2A). Uwalnianie glikanów osiąga się poprzez redukcyjną eliminację β w żelu (ryc. 2B), a uwolnione glikany są permetylowane. Ekstrakcja wodno-organiczna po permetylacji ilościowo oddziela anionowe siarczanowane glikany od niesiarczanowych glikanów obojętnych (ryc. 2C). Redukcyjna eliminacja β w żelu w połączeniu z ekstrakcją wodno-organiczną umożliwia scharakteryzowanie glikanów i sulfoglikanów sprzężonych z O, uwalnianych z niewielkich ilości glikoproteiny oddzielonych przez SDS-PAGE. Przegląd strategiczny podsumowano na rysunku 1, a szczegóły przedstawiono na rysunku 2. Ponadto część odbarwionych i przemytych kawałków żelu może być wykorzystana do identyfikacji białek za pomocą standardowych technik proteomicznych LC-MS/MS.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Kwestie bezpieczeństwa w laboratorium
Zgodnie ze standardowymi zasadami dobrej praktyki laboratoryjnej, należy przestrzegać następujących wytycznych. Wszystkie rozpuszczalniki organiczne należy przechowywać w odpowiednich miejscach. Wszystkie odpady należy umieszczać w pojemnikach na odpady chemiczne z wyraźnym oznakowaniem ich składu chemicznego. Ponieważ niektóre z odczynników stosowanych w tych protokołach są potencjalnymi kancerogenami lub generują lotne gazy palne, wszystkie odczynniki należy obsługiwać w dygestorium z systemem wentylacyjnym. Podczas pracy z rozpuszczalnikami organicznymi należy stosować środki ochrony indywidualnej, takie jak rękawiczki, fartuch laboratoryjny i ochrona oczu.
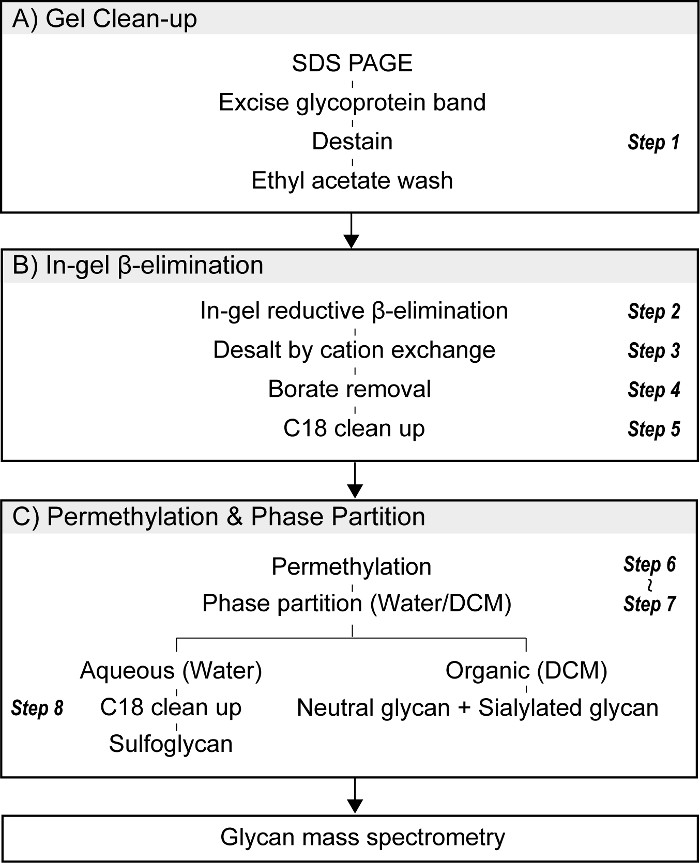
Rycina 1. Procedura O-glikomiki w żelu. (A) Białka docelowe są rozdzielane za pomocą SDS-PAGE, wykrywane odpowiednimi metodami barwienia (Coomassie lub srebrem) i wycinane. Wycięte fragmenty żelu są cięte na małe kostki, odbarwiane i płukane octanem etylu w celu zmniejszenia ilości zanieczyszczeń utrudniających późniejszą analizę MS. Część fragmentu żelu może zostać zarezerwowana do trawienia trypsyną w żelu i późniejszej charakterystyki proteomicznej za pomocą LC-MS/MS. (B) Glikany typu O są uwalniane z rozdzielonych glikoprotein poprzez redukcyjną β-eliminację w żelu. Kluczowe etapy obejmują odsolenie i usuwanie boranu poprzez tworzenie azeotropu z metanolem. (C) Glikany typu O uwalniane przez redukcyjną β-eliminację są permetylowane, a następnie rozdzielane na fazę wodną i organiczną. Sulfoglikany są ilościowo odzyskiwane z górnej (wodnej) fazy, natomiast glikany neutralne i sialilowane przechodzą do dolnej warstwy (DCM).
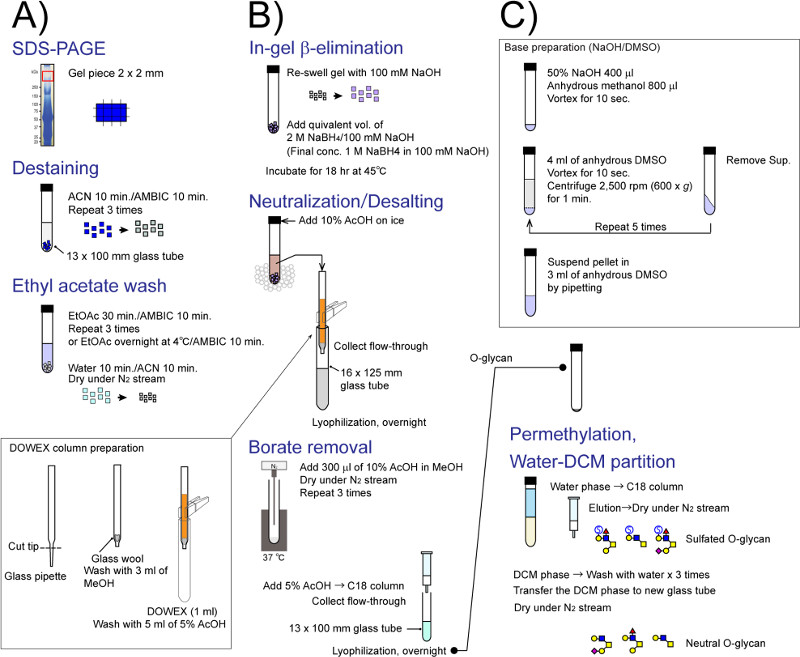
Rysunek 2. Szczegółowy schemat blokowy glikomiki in-gel. Każdy krok eksperymentalny przedstawiony na Rysunku 1 jest zilustrowany indywidualnie. (A) odbarwianie żelu i ekstrakcja EtOAc, (B) bezpośrednia redukcyjna β-eliminacja w żelu w celu uwolnienia glikanów typu O oraz (C) permetylacja i rozdział faz. Kliknij tutaj, aby zobaczyć powiększoną wersję rysunku.
1. Wycinanie żelu i usuwanie zanieczyszczeń pochodzących z żelu
- Przed rozpoczęciem procedury należy przygotować odczynniki chemiczne wymienione w liście materiałów.
- Rozdziel białka na żelu SDS-PAGE, korzystając ze standardowych układów buforowych Tris-glicyna. Rozdzielone białka zabarw barwnikiem Coomassie Brilliant Blue lub metodą srebrzenia. Zazwyczaj odzysk glikanów typu O z żeli zabarwionych srebrem wynosi około 80–90% odzysku uzyskiwanego z żeli zabarwionych Coomassie.
- Po elektroforezie umieść żel na szklanej płytce i wytnij interesujący obszar, używając czystego skalpela lub żyletki.
- Aby zwiększyć wydajność O-glikanów, przenieś interesujący prążek żelu na inną szklaną płytkę i potnij wycięty fragment żelu na kostki o rozmiarze około 2 mm. Unikaj tworzenia fragmentów żelu mniejszych niż kostki 1 mm, ponieważ zmniejsza to odzysk glikanów. Przenieś małe fragmenty żelu do szklanej probówki z nakrętką (13 x 100 mm) za pomocą stalowej mikroszpatułki.
- Dodaj 1 ml 25 mM wodorowęglanu amonu (AMBIC, NH4HCO3) do probówki z próbką, zakręć probówkę zakrętką z podkładką teflonową i delikatnie wymieszaj, stukując w probówkę, a następnie odstaw na 10 min. Nie stosuj energicznego wytrząsania, aby uniknąć rozrywania fragmentów żelu.
- Ostrożnie usuń AMBIC z szklanej probówki, używając szklanej pipety Pasteura lub pipety z dodatkowo długim plastikowym końcem. Unikaj zgniatania i przenoszenia małych fragmentów żelu podczas usuwania roztworu AMBIC.
- Dodaj 1 ml acetonitrylu (ACN) do szklanej probówki, zakręć i delikatnie wymieszaj, stukując w probówkę, a następnie odstaw na 10 min. Upewnij się, że fragmenty żelu są całkowicie pokryte rozpuszczalnikiem. W razie potrzeby odsuń fragmenty żelu od ścianki probówki do rozpuszczalnika końcem pipety.
- Odsaj lni ACN z szklanej probówki i powtarzaj kroki 1.5–1.7, aż jasnoniebieski kolor zniknie. W razie potrzeby powtórz minimum pięć sekwencyjnych przemyć AMBIC/ACN. W przypadku żeli zabarwionych srebrem użyj zestawu do odbarwiania. Przejdź do następnego kroku, gdy fragment żelu w ACN stanie się jednorodnie biały.
- Odsaj lni cały płyn z szklanej probówki, zakręć probówkę, dodaj 1 ml AMBIC i odstaw na 5 min.
- Usuń AMBIC i dodaj 2 ml octanu etylu (EtOAc) do szklanej probówki. Zakręć probówkę zakrętką z podkładką teflonową i pozostaw w 4 °C przez noc z wytrząsaniem typu end-over-end lub alternatywnie wykonaj trzy przemycia EtOAc w temperaturze pokojowej przez 30 min każde. Im dłuższe przemywanie EtOAc, tym skuteczniejsze usuwanie zanieczyszczeń.
- Usuń ostatnią porcję EtOAc i wykonaj trzy przemycia, każde 2 ml H2O. Całkowite usunięcie EtOAc zapewni prawidłowy przebieg reakcji redukcyjnej β-eliminacji.
- Odsaj lni H2O i odwodnij żel, przemywając go raz 1 ml ACN.
UWAGA: Po wysuszeniu odwodnione żele są gotowe do β-eliminacji w żelu. Odwodnione fragmenty żelu można przechowywać w -20 °C do czasu użycia. - Proces przemywania można przerwać na dowolnym etapie i przechowywać fragmenty żelu w 4 °C przez noc, niezależnie od tego, który bufor lub roztwór został zastosowany do żelu (AMBIC, ACN, H2O). Przygotowywanie próbek można wznowić w dowolnym momencie w ciągu następnych 2 dni.
- Część odbarwionych i odwodnionych fragmentów żelu wykorzystaj do identyfikacji białek za pomocą standardowych metod proteomicznych.
2. Uwalnianie O-glikanów w żelu poprzez redukcyjną β-eliminację
- Przygotować roztwór stokowy 1 M wodorotlenku sodu (NaOH), używając 50% NaOH lub stałego NaOH, i przechowywać w temperaturze 4 °C do momentu użycia.
- Odmierzyć 5,2 ml 50% NaOH (lub 4 g stałego NaOH) i uzupełnić objętość do 100 ml, aby otrzymać roztwór 1 M NaOH. Rozcieńczyć roztwór stokowy 1 M NaOH do stężenia 100 mM NaOH; można go przechowywać w temperaturze 4 °C do 6 miesięcy bez utraty wydajności w reakcjach redukcyjnej β-eliminacji.
- Przygotować 2 M borowodorek sodu (NaBH4) w 100 mM NaOH. Rozpuścić 38 mg NaBH4 w 0,5 ml 100 mM NaOH. Zazwyczaj do każdej próbki należy użyć 0,5–1,0 ml roztworu borowodorku. Objętość roztworu reakcyjnego należy dostosować do ilości wysuszonych fragmentów żelu przygotowanych w kroku 1. Przewiduje się zużycie 0,5 ml roztworu borowodorku na 1–2 wycięte fragmenty żelu (krok 1.3).
- Dodać 500 µl 100 mM NaOH do odwodnionych fragmentów żelu i pozostawić na 3–5 min na lodzie, aby zrównoważyć żel z warunkami zasadowymi, które zwiększają odzysk glikanów.
- Dodać 500 µl 2 M NaBH4 w 100 mM NaOH, co daje stężenia końcowe 1 M NaBH4 w 100 mM NaOH. Delikatnie wymieszać zawartość probówki i inkubować w temperaturze 45 °C przez 18 h.
- Podczas pierwszej godziny inkubacji delikatnie mieszać probówkę co 15 min. Należy unikać silnego wstrząsania, ponieważ może ono doprowadzić do fragmentacji kawałków żelu. Reakcję należy przeprowadzić w dobrze ustabilizowanej temperaturowo inkubatorze/piecu lub w bloku grzejnym. Należy upewnić się, że fragmenty żelu są całkowicie przykryte roztworem reakcyjnym.
- Zatrzymać reakcję, wyjmując probówkę z próbką z inkubatora lub bloku grzejnego i umieszczając ją na lodzie.
UWAGA: Po przeprowadzeniu reakcji β-eliminacji przez 18 h, proces odsalania musi zostać wykonany tego samego dnia.
3. Odsalanie za pomocą chromatografii wymiany kationowej
- Utrzymując probówkę z próbką w lodzie, aby zapobiec nadmiernemu wydzielaniu ciepła, powoli dodawaj kroplami 10% kwas octowy (AcOH) w celu neutralizacji zasady. Pomiędzy kolejnymi porcjami AcOH delikatnie mieszaj próbkę na wirówce typu vortex. Należy uważać, aby dodawać kwas powoli i kroplami, ponieważ jego dodawanie spowoduje powstanie „wulkanu” pęcherzyków. W razie potrzeby odwiruj probówkę, aby usunąć pęcherzyki i zapobiec przelaniu zawartości.
- Aby usunąć dużą ilość sodu z mieszaniny reakcyjnej, przeprowadź mieszaninę przez małą kolumnę wymiany kationowej (żywica Dowex lub AG-50W-X8, forma H+).
- Przed użyciem przemyj żywicę wymiany kationowej 1 M NaOH i 1 M HCl, aby usunąć zanieczyszczenia zakłócające analizę MS, nawet jeśli żywica jest klasy analitycznej.
- Namocz żywicę w 1 M NaOH i usuń roztwór przez dekantację. Dodaj wodę dejonizowaną, usuń wodę, a następnie dodaj 1 M HCl.
- Powtarzaj te kroki, aż roztwór nad żywicą stanie się bezbarwny. Przemyj oczyszczoną żywicę wodą dejonizowaną i przechowuj w 5% AcOH w temperaturze 4 °C.
- Aby wykonać małą kolumnę szklaną, narysuj rysę i przełam końcówkę szklanej pipety Pasteura za pomocą przecinaka ceramicznego tak, aby stożek końcówki pipety miał około 1 cm długości. Rozluźnij czop z waty szklanej i dopychaj go w stronę końcówki, tworząc podparcie dla złoża żywicy. Przymocuj kolumnę z pipety zaciskiem lub klamrą do bielizny i umieść nad szklaną probówką.
- Przemyj pustą pipetę 1 ml metanolu (MeOH) i 3 ml 5% AcOH. Zamieszaj zawiesinę żywicy wymiany kationowej H+ Dowex lub AG50 przechowywaną w 5% AcOH i przenieś odpowiednią ilość zawiesiny, aby uzyskać objętość złoża 1 ml w kolumnie z pipety Pasteura.
- Przepłucz kolumnę pięcioma objętościami 5% AcOH. Sprawdź, czy w eluacie nie pojawiają się cząstki żywicy; nie używaj kolumny, jeśli wykryto żywicę.
- Umieść kolumnę nad nową szklaną probówką z nakrętką (16 x 125 mm) i nanieś próbkę. Zbierz eluat i wypłucz glikany co najmniej 3 objętościami 5% AcOH do tej samej probówki.
- Zakryj probówkę Parafilmem i wykonaj igłą niewielkie otwory. Umieść probówkę z próbką w temperaturze -80 °C lub na suchym lodzie. Po zamrożeniu osusz próbkę poprzez liofilizację. Przechowuj wysuszony materiał w temperaturze -20 °C do czasu użycia.
4. Usuwanie boranów
- Przygotować 10% AcOH w MeOH. Odmierzyć 10 ml octowego kwasu lodowatego i uzupełnić objętość do 100 ml za pomocą metanolu. Przechowywać ten odczyn w szklanej butelce z zakrętką wyłożoną teflonem przez maksymalnie 6 miesięcy.
- Dodać 300 µl 10% AcOH w MeOH do wysuszonej, liofilizowanej probówki z próbką i wymieszać w wortexie. Usunąć powstały boroboran trimetylu poprzez odparowanie w strumieniu N2.
UWAGA: Mieszanie soli boranu z metanolem w warunkach kwasowych prowadzi do powstania boroboranu trimetylu, który jest związkiem lotnym. - Suszyć w strumieniu N2 w temperaturze 37 °C. Po wysuszeniu dodać kolejną porcję AcOH w MeOH zgodnie z opisem w kroku 4.2. Suszyć ciecz przez 5 min w strumieniu azotu (N2) w temperaturze 37 °C.
- Powtórzyć resuspensję i suszenie co najmniej 3 razy. Przechowywać wysuszony materiał w temperaturze -20 °C do momentu użycia.
5. Oczyszczanie na kolumnie C18
- Równoważyć kolumnę z wkładem C18 (rozmiar 1 ml, 100 mg żywicy), stosując trzy objętości ACN i pięć objętości 5% AcOH. Przyspieszyć przepływ roztworów równoważących poprzez zastosowanie umiarkowanego dodatniego ciśnienia powietrza.
- Dodać 500 µl 5% AcOH do probówki z próbką odsoloną i wolną od boranów, a następnie rozpuścić za pomocą wortexa.
- Nanieść resuspendowaną próbkę na zrównoważoną kolumnę C18 i zebrać przelew do szklanej probówki z nakrętką (13 x 100 mm). Eluować O-glikany za pomocą 3 ml 5% AcOH do tej samej probówki.
- Zabezpieczyć probówkę folią Parafilm, wykonać małe otwory cienką igłą lub użyć lekko dokręconej zakrętki z wyściółką PTFE do przykrycia probówki, a następnie zamrozić próbkę w temperaturze -80 °C lub na suchym lodzie. Usunąć rozpuszczalnik poprzez liofilizację. Przechowywać wysuszoną próbkę w temperaturze -20 °C do czasu użycia.
6. Przygotowanie zasady do permetylacji
UWAGA: Aby uzyskać skuteczną permetylację, należy przygotować świeżą zawiesinę NaOH. Wszystkie naczynia szklane używane do reakcji permetylacji powinny zostać dokładnie oczyszczone.
- Aby przygotować odczynnik zasadowy do permetylacji, należy dodać 400 µl 50% NaOH do czystej szklanej probówki z nakrętką (13 x 100 mm). Następnie dodać 800 µl bezwodnego MeOH i wymieszać w wirówce typu vortex.
- Dodać 4 ml bezwodnego dimetylosulfotlenku (DMSO) i wymieszać w vortexie do uzyskania białego osadu.
- Wirować z prędkością 600 x g przez 1 min, aby zebrać osad na dnie. Odpipetować nadsącz i go usunąć. Do osadu dodać kolejne 4 ml bezwodnego DMSO. Wymieszać w vortexie.
- Powtórzyć kroki 6.2 i 6.3 co najmniej trzy razy lub do momentu, aż przestanie powstawać biały osad.
- Rozpuścić zebrany osad zasady w 3 ml bezwodnego DMSO i delikatnie wymieszać, pipetując ciecz w górę i w dół za pomocą czystej pipety Pasteura.
- Zasady nie można przechowywać, dlatego należy jej użyć niezwłocznie w poniższej reakcji permetylacji.
7. Permetylacja uwolnionych glikanów
- Do próbki oczyszczonej na kolumnie C18 dodać 200 µl bezwodnego DMSO, a następnie wymieszać na wortexie lub w kąpieli ultradźwiękowej w celu resuspensji.
- Do próbki dodać 300 µl resuspendowanej zawiesiny zasadowej i natychmiast dodać 100 µl jodku metylu (MeI). Zamknąć probówkę zakrętką z powłoką teflonową i intensywnie mieszać na wortexie przez 5 min.
- Aby zatrzymać reakcję permetylacji, dodać 2 ml 5% AcOH w lodzie i wymieszać na wortexie. Przenieść roztwór pipetą kilka razy w górę i w dół (5 razy), aby zmniejszyć pozostałą objętość MeI poprzez odparowanie.
UWAGA: AcOH neutralizuje roztwór, a usunięcie MeI zwiększa wydajność ekstrakcji siarczanowanych glikanów do fazy wodnej podczas rozdziału faz. - Dodać 2 ml dichlorometanu (DCM) i wymieszać na wortexie. Odwirurować przy 600 x g przez 1 min w temperaturze pokojowej, aby rozdzielić fazy wodną i organiczną.
- Przenieść górną warstwę (fazę wodną zawierającą większość permetylowanych glikanów siarczanowanych) do nowej szklanej probówki (13 x 100 mm).
- Do fazy organicznej dodać 2 ml H2O i wymieszać na wortexie. Odwirurować przy 600 x g przez 1 min, aby rozdzielić fazy wodną i organiczną, a następnie połączyć tę drugą fazę wodną z pierwszą fazą wodną (krok 7.5).
- Powtórzyć kroki 7.6 i 7.5 jeszcze trzy razy, jednak nie ma potrzeby zachowywania faz wodnych otrzymanych z kolejnych rozdziałów.
- Jak najdokładniej usunąć końcową górną warstwę (fazę wodną) z dolnej warstwy (fazy organicznej) i przenieść dolną warstwę (fazę organiczną) do osobnej nowej szklanej probówki za pomocą czystej pipety Pasteura.
- Osuszyć fazę organiczną pod strumieniem N2 w temperaturze 42 °C.
- Zakryć probówkę Parafilmem i przechowywać w temperaturze -20 °C do momentu użycia.
8. Oczyszczanie permetylowanych siarczanowanych O-glikanów z fazy wodnej na kolumnie C18
- Równoważyć kolumnę z kartridżem C18 za pomocą trzech objętości ACN i pięciu objętości 5% AcOH.
- Nanieść na kolumnę zebrane i połączone fazy wodne z etapów 7.5 i 7.6.
- Przemyć kolumnę 10 ml H2O w celu odsolenia.
- Eluować permetylowane siarkowane O-glikany do nowej szklanej probówki za pomocą 2 ml 50% ACN. Przeprowadzić dodatkową elucję za pomocą 85% ACN, aby zwiększyć odzysk permetylowanych siarkowanych O-glikanów w przypadku większych oligosacharydów.
- Wysuszyć eluatu pod strumieniem azotu w temperaturze 42 °C.
- Przechowywać wysuszony materiał w temperaturze -20 °C do 6 miesięcy przed analizą MS.
9. Spektrometria mas permetylowanych O-glikanów
- Analizę permetylowanych O-glikanów przeprowadź poprzez bezpośrednią infuzję do odpowiedniego spektrometru mas, stosując źródło nanoelektrospray przy prędkości przepływu z Applying strzykawki 0,40–0,60 µl/min i temperaturze kapilary 210 °C. W przypadku fragmentacji metodą CID w trybach MS/MS oraz MSn w instrumencie z pułapką jonową, zastosuj energię kolizyjną na poziomie 30–40%.
- Dla trybu jonów ujemnych rozpuść permetylowane siarkowane O-glikany w 50 μl mieszaniny metanol/2-propanol/1-propanol/13 mM wodnego octanu amonu (16:3:3:2 objętościowo). Dla trybu jonów dodatnich rozpuść permetylowane neutralne/sjalilowane O-glikany w 50 µl 1 mM wodorotlenku sodu w mieszaninie metanol/woda (1:1).
- W celu charakterystyki poszczególnych struktur O-glikanów wykorzystaj funkcjonalność całkowitego mapowania jonów (TIM) oraz skanowanie strat neutralnych (NL scan) w pakiecie oprogramowania Xcalibur w wersji 2.0 podczas analizy MSn 13,19.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wpływ traktowania octanem etylu przed redukcyjną β-eliminacją w żelu
Reprezentatywne widmo masowe próbek permetylowanych glikanów typu O-linked, uwolnionych z mucyny bydlęcej za pomocą redukcyjnej β-eliminacji w żelu, przedstawiono na Rysunku 3. Przemycie fragmentów żelu EtOAc skutecznie usuwa SDS oraz zanieczyszczenia poliakrylowe, które zakłócają późniejszą analizę MS 27.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Połączenie redukcyjnej eliminacji β w żelu z ekstrakcją wodno-organiczną zwiększa czułość i głębię danych strukturalnych, które można uzyskać w celu scharakteryzowania siarczanowych i niesiarczanowych glikanów sprzężonych z O, zebranych z niewielkich ilości glikoprotein typu mucynowego oddzielonych od innych białek za pomocą SDS-PAGE. Zasadnicze postępy w zakresie podejść technicznych przedstawionych w tym badaniu to: (a) łatwe usuwanie zanieczyszczeń pochodzących z żelu za pomocą prostych etapów mycia; b) odzysk ilościo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez P01HL107151 grantowe od NHLBI/NIH. Autorzy wyrażają również wdzięczność za wsparcie i dostęp do oprzyrządowania zapewnione dzięki P41GM103490 grantowej z NIGMS/NIH.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Woda, woda dejonizowana | Sigma-Aldrich | 270733-4L | - CHROMASOLV - do HPLC |
| Kwas octowy, Glacial | Fisher | A38-500 | Certyfikowany ACS ≥ 99,7% w/w |
| Metanol | Sigma-Aldrich | 34860-4L-R | CHROMASOLV, do HPLC, ≥ 99,9% |
| Wodorowęglan amonu | Fluka | 09830-500G | BioUltra, ≥ 99,5% (t), Etap 1 |
| Acetonitryl | Sigma-Aldrich | 34998-4L | CHROMASOLV Plus, do HPLC, ≥ 99,9%, Krok 1 |
| Octan etylu | Fluka | 34972-1L-R | LC-MS CHROMASOLV, Krok 1 |
| Borowodorek sodu | Aldrich | 213462-25G | ReagentPlus, 99%, Etap 2 |
| Jodometan | Sigma-Aldrich | 289566-100G | ReagentPlus, 99,5%, Krok 6. Przechowywać w temperaturze 4 & deg; C do momentu użycia. Przed użyciem usiąść w temperaturze pokojowej. |
| Wodorotlenek sodu, 50% w/w | Fisher | SS254-1 | , Krok 6 |
| Dimetylosulfotlenek, bezwodny | Sigma-Aldrich | 276855-1L | Bezwodny, ≥ 99,9%, Step 6 |
| Metanol, bezwodny | Sigma-Aldrich | 322415-100ML | Bezwodny, 99,8%, Krok 6 |
| Dichlorometan | Sigma-Aldrich | 34856-4L | CHROMASOL®, do HPLC, ≥ 99,8%, zawiera amylen jako stabilizator, Krok 7 |
| Dowex 50WX8 wodór w postaci 100-200 siatka | Sigma-Aldrich | 217506-500G | Step 3 |
| AG 50W-X8 Żywica | Bio-Rad | 142-1441 | Krok 3 |
| BAKERBOND spe 1 ml x 100 mg Kolumna ekstrakcyjna do fazy stałej, PP, oktadecyl (C18) Odwrócona faza | JT Baker | JT-7020-01 | Krok 5 i 8 |
| 7,5% Mini-PROTEAN TGX Prefabrykowany żel | Bio-Rad | Step 1 | |
| Bio-bezpieczna plama Coomassie | Bio-Rad | 161-0786 | G-250, Step 1 |
| Zestaw srebrnych barwników do spektrometrii mas | Pierce | 24600 | Step 1 |
| Zestaw oligosacharydów (maltotrioza, Dp3: R474140) | Supelco | 47265 | |
| Zestaw oligosacharydów (maltotetraoza, Dp4: R474135) | Supelco | 47265 | |
| Jednorazowe pipety Pasteura, szklane, z krótką końcówką | VWR | 14673-010 | Umyć przed użyciem |
| PYREX 13 x 100 mm Jednorazowe rurki hodowlane z okrągłym dnem | Corning | 99447-13 | Umyć przed użyciem |
| PYREX 16 x 125 mm Jednorazowe rurki hodowlane z okrągłym dnem | Corning | 99447-16 | Umyć przed użyciem |
| Fenolowe nakrętki/zamknięcia z gumową wkładką pokrytą PTFE | Kimble | 45066C-13 | Umyć przed użyciem |
| Fenolowe nakrętki/zamknięcia z gumową wkładką pokrytą PTFE | Kimble | 45066C-15 | Umyć przed użyciem |
| Strzykawka Hamilton HPLC | HAMILTON | 81265 | objętość 500 μ l, rozmiar igły 22 G |
| Strzykawka Hamilton HPLC | HAMILTON | 81165 | objętość 250 μ l, rozmiar igły 22 G |
| Strzykawka Hamilton HPLC | HAMILTON | 81065 | objętość 100 μ l, rozmiar igły 22s G |
| Strzykawka Hamilton HPLC | HAMILTON | 80965 | objętość 50 μ l, rozmiar igły 22s G |
| Strzykawki kalibrowane Hamilton | HAMILTON | 80300 | objętość 10 μ l, rozmiar igły 26s G |
| Szkło do szalek Petriego 100 mm x 15 mm | GSC INTERNATIONAL INC | 1500-4 | Umyć przed użyciem, Krok 1 |
| Ostrza chirurgiczne Bard-Parker | Fisher | 371310 | Krok 1 |
| Moduł grzewczy/mieszający Reacti-Therm | Pierce | 18870 | Krok 1, 4 i 7 |
| Bloki grzewcze | Fisher | 125D | Krok 2 |
| Wełna borokrzemianowa z włókna szklanego Pyrex o wielkości porów 8 μ m | Aldrich | CLS3950 | Step 3 |
| Nóż do topionej krzemionkiObcinak do rurek | alltech | 3194 | Step 3 |
| Wirówki wielorurowe | VWR | 444-7063 | Krok 6 |
| Liofilizator 25EL Freezemobile | Wirówka Virtis | 25EL | |
| VWR | Clinical 50 | ||
| LTQ Orbitrap Discovery | Thermo Fisher Scientific |
Bibliografia
- Varki, A. Biological roles of oligosaccharides: all of the theories are correct. Glycobiology. 3 (2), 97-130 (1993).
- Ohtsubo, K., Marth, J. D. Glycosylation in cellular mechanisms of health and disease. Cell. 126 (5), 855-867 (2006).
- Moremen, K. W., Tiemeyer, M., Nairn, A. V. Vertebrate protein glycosylation: diversity, synthesis and function. Nat. Rev. Mol. Cell Biol. 13 (7), 448-462 (2012).
- Lowe, J. B., Marth, J. D. A genetic approach to Mammalian glycan function. Annu. Rev. Biochem. 72, 643-691 (2003).
- Yan, A., Lennarz, W. J. Unraveling the mechanism of protein N-glycosylation. J. Biol. Chem. 280 (5), 3121-3124 (2005).
- Washburn, M. P. Utilisation of proteomics datasets generated via multidimensional protein identification technology (MudPIT). Brief Funct. Genomic Proteomic. 3 (3), 280-286 (2004).
- Rosenfeld, J., Capdevielle, J., Guillemot, J. C., Ferrara, P. In-gel digestion of proteins for internal sequence analysis after one- or two-dimensional gel electrophoresis. Anal. Biochem. 203 (1), 173-179 (1992).
- Hellman, U., Wernstedt, C., Gonez, J., Heldin, C. H. Improvement of an 'In-Gel' digestion procedure for the micropreparation of internal protein fragments for amino acid sequencing. Anal. Biochem. 224 (1), 451-455 (1995).
- Morelle, W., Canis, K., Chirat, F., Faid, V., Michalski, J. C. The use of mass spectrometry for the proteomic analysis of glycosylation. Proteomics. 6 (14), 3993-4015 (2006).
- Mortz, E., Sareneva, T., Haebel, S., Julkunen, I., Roepstorff, P. Mass spectrometric characterization of glycosylated interferon-gamma variants separated by gel electrophoresis. Electrophoresis. 17 (5), 925-931 (1996).
- Kuster, B., Wheeler, S. F., Hunter, A. P., Dwek, R. A., Harvey, D. J. Sequencing of N-linked oligosaccharides directly from protein gels: in-gel deglycosylation followed by matrix-assisted laser desorption/ionization mass spectrometry and normal-phase high-performance liquid chromatography. Anal. Biochem. 250 (1), 82-101 (1997).
- Kuster, B., Mann, M. 18O-labeling of N-glycosylation sites to improve the identification of gel-separated glycoproteins using peptide mass mapping and database searching. Anal. Chem. 71 (7), 1431-1440 (1999).
- Aoki, K., et al. The diversity of O-linked glycans expressed during Drosophila melanogaster development reflects stage- and tissue-specific requirements for cell signaling. J. Biol. Chem. 283 (44), 30385-30400 (2008).
- Kozak, R. P., Royle, L., Gardner, R. A., Fernandes, D. L., Wuhrer, M. Suppression of peeling during the release of O-glycans by hydrazinolysis. Anal. Biochem. 423 (1), 119-128 (2012).
- Schulz, B. L., Packer, N. H., Karlsson, N. G. Small-scale analysis of O-linked oligosaccharides from glycoproteins and mucins separated by gel electrophoresis. Anal. Chem. 74 (23), 6088-6097 (2002).
- Thomsson, K. A., Schulz, B. L., Packer, N. H., Karlsson, N. G. MUC5B glycosylation in human saliva reflects blood group and secretor status. Glycobiology. 15 (8), 791-804 (2005).
- Taylor, A. M., Holst, O., Thomas-Oates, J. Mass spectrometric profiling of O-linked glycans released directly from glycoproteins in gels using in-gel reductive β-elimination. Proteomics. 6 (10), 2936-2946 (2006).
- Anumula, K. R., Taylor, P. B. A comprehensive procedure for preparation of partially methylated alditol acetates from glycoprotein carbohydrates. Anal. Biochem. 203 (1), 101-108 (1992).
- Aoki, K., Perlman, M., Lim, J. M., Cantu, R., Wells, L., Tiemeyer, M. Dynamic developmental elaboration of N-linked glycan complexity in the Drosophila melanogaster embryo. J. Biol. Chem. 282 (12), 9127-9142 (2007).
- Domon, B., Costello, C. E. A Systematic Nomenclature for Carbohydrate Fragmentations in Fab-Ms Ms Spectra of Glycoconjugates. Glycoconj. J. 5 (4), 397-409 (1988).
- Ashline, D., Singh, S., Hanneman, A., Reinhold, V. Congruent strategies for carbohydrate sequencing. 1. Mining structural details by MSn. Anal. Chem. 77 (19), 6250-6262 (2005).
- Lapadula, A. J., et al. Congruent strategies for carbohydrate sequencing. 3. OSCAR: an algorithm for assigning oligosaccharide topology from MSn data. Anal. Chem. 77 (19), 6271-6279 (2005).
- Ashline, D. J., et al. Carbohydrate structural isomers analyzed by sequential mass spectrometry. Anal. Chem. 79 (10), 3830-3842 (2007).
- Thomsson, K. A., et al. The salivary mucin MG1 (MUC5B) carries a repertoire of unique oligosaccharides that is large and diverse. Glycobiology. 12 (1), 1-14 (2002).
- Yu, S. Y., Wu, S. W., Hsiao, H. H., Khoo, K. H. Enabling techniques and strategic workflow for sulfoglycomics based on mass spectrometry mapping and sequencing of permethylated sulfated glycans. Glycobiology. 19 (10), 1136-1149 (2009).
- Yu, S. Y., et al. Priming mass spectrometry-based sulfoglycomic mapping for identification of terminal sulfated lacdiNAc glycotope. Glycoconj J. 30 (2), 183-194 (2013).
- Kumagai, T., Katoh, T., Nix, D. B., Tiemeyer, M., Aoki, K. In-gel β-elimination and aqueous-organic partition for improved O- and sulfoglycomics. Anal. Chem. 85 (18), 8692-8699 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
