Zdolność do izolowania komórek śródbłonka zastawki serca (VEC) jest kluczowa dla zrozumienia mechanizmów rozwoju, utrzymania i choroby zastawki. W tym miejscu opisujemy izolację VEC od embrionalnych i dorosłych myszy Tie2-GFP za pomocą FACS, co pozwoli na badania określające udział VEC w procesach rozwojowych i chorobowych.
Artykuł metodologiczny
Izolacja komórek śródbłonka mysiej zastawki
W tym artykule
Podsumowanie
Streszczenie
Normalne struktury zastawki składają się z warstwowych warstw wyspecjalizowanej macierzy zewnątrzkomórkowej (ECM) przeplatanych komórkami śródmiąższowymi zastawki (VIC) i otoczonych monowarstwą komórek śródbłonka zastawki (VEC). VEC odgrywają zasadniczą rolę w tworzeniu struktur zastawek podczas rozwoju embrionalnego i są ważne dla utrzymania integralności i funkcji zastawki przez całe życie. W przeciwieństwie do ciągłego śródbłonka nad powierzchnią zdrowych płatków zastawki, zakłócenie VEC jest powszechnie obserwowane w nieprawidłowo funkcjonujących zastawkach i jest związane z procesami patologicznymi, które sprzyjają chorobom i dysfunkcji zastawek. Pomimo znaczenia klinicznego, ukierunkowane badania określające udział VEC w rozwoju i procesach chorobowych są ograniczone. Izolacja VEC od modeli zwierzęcych pozwoliłaby na eksperymenty specyficzne dla komórek. VEC zostały wyizolowane z dużych dorosłych modeli zwierzęcych, ale ze względu na ich małą liczebność populacji, kruchość i brak specyficznych markerów, nie zgłoszono doniesień o izolacjach VEC w zarodkach lub dorosłych modelach małych zwierząt. W tym artykule opisujemy nowatorską metodę, która pozwala na bezpośrednią izolację VEC od myszy w stadium embrionalnym i dorosłym. Wykorzystując model reporterowy Tie2-GFP, który znakuje wszystkie komórki śródbłonka zielonym białkiem fluorescencyjnym (GFP), udało nam się wyizolować komórki GFP-dodatnie (i ujemne) z obszarów zastawki półksiężycowatej i przedsionkowo-komorowej za pomocą sortowania komórek aktywowanego fluorescencją (FACS). Wyizolowane VEC GFP-dodatnie są wzbogacone o markery śródbłonka, w tym CD31 i czynnik von Willebranda (vWF), i zachowują ekspresję komórek śródbłonka podczas hodowli; podczas gdy komórki GFP-ujemne wykazują profile molekularne i kształty komórek zgodne z fenotypami VIC. Zdolność do izolowania embrionalnych i dorosłych mysich VEC pozwala na przeprowadzenie wcześniej nieosiągalnych badań molekularnych i funkcjonalnych na określonej populacji komórek zastawki, co znacznie poprawi naszą wiedzę na temat rozwoju zastawek i mechanizmów chorobowych.
Wprowadzenie
Dojrzała zastawka składa się z trzech warstwowych warstw wyspecjalizowanej macierzy zewnątrzkomórkowej (ECM) przeplatanych komórkami śródmiąższowymi zastawki (VIC) i otoczonych pojedynczą warstwą komórek śródbłonka zastawki serca (VEC)1. Rolą ECM jest zapewnienie wszystkich niezbędnych właściwości biomechanicznych, aby wytrzymać ciągłe zmiany siły hemodynamicznej podczas cyklu pracy serca. Obrót ECM zastawki w zastawce osoby dorosłej jest ściśle regulowany przez VIC, które są w dużej mierze spoczynkowe i podobne do fibroblastów przy braku choroby. Oprócz populacji VIC, komórki śródbłonka zastawki serca (VEC) tworzą nieprzerwany śródbłonek na powierzchni guzków zastawki2. Podczas gdy znaczenie ECM i VIC dla struktury i funkcji zaworów zostało opisane przez nas i innych, rola VEC jest mniej znana. Jednak ta stosunkowo mała populacja komórek ma kluczowe znaczenie dla tworzenia zastawki w zarodku i jest opisywana jako dysfunkcyjna w chorobie zastawek.
Tworzenie się zastawki serca w zarodku zaczyna się, gdy podzbiór komórek śródbłonka w obrębie kanału przedsionkowo-komorowego i obszarów drogi odpływu przechodzi transformację śródbłonka w mezenchymalną (EMT) i tworzy obrzęki znane jako poduszki wsierdziowe1,3. Nowo przekształcone komórki mezenchymalne w tych strukturach różnicują się później w VIC i tworzą dojrzałe zastawki. Gdy EMT jest kompletny, komórki śródbłonka otaczające poduszki, zwane VEC, tworzą nieprzerwaną warstwę komórek śródbłonka, która chroni dojrzałą zastawkę przed uszkodzeniem. Ponadto VEC wyczuwają środowisko hemodynamiczne i wykazano, że molekularnie komunikują się z leżącymi u ich podstaw VIC w celu regulacji homeostazy ECM1,3. W chorych zastawkach monowarstwa VEC jest rozerwana w związku z nieprawidłowymi zmianami w organizacji ECM i zmienioną biomechaniką4,5. Ponadto badania na modelach mysich sugerują, że dysfunkcja VEC jest podstawową przyczyną choroby zastawek1,6-9. Ponieważ VEC odgrywają ważną rolę w rozwoju, utrzymaniu i chorobie zastawek, ważne jest, abyśmy w pełni zdefiniowali ich fenotypy czasowe, aby posunąć się naprzód w tej dziedzinie i zrozumieć mechanizmy choroby.
Poprzednie prace kilku laboratoriów skutecznie wyizolowały VEC z modeli świń i owiec10-12. Ze względu na duży rozmiar tych zastawek, izolacje poprzez pobieranie wymazów i / lub trawienie enzymatyczne, a następnie szereg różnych metod izolacji, w tym separację komórek z kulkami magnetycznymi i ekspansję klonalną pojedynczych komórek, okazały się skuteczne w generowaniu czystych populacji11-13. Modele te mogą być jednak restrykcyjne ze względu na niekompletną adnotację genomów świń i owiec, co oprócz wysokich kosztów ogranicza dostępność narzędzi molekularnych. W związku z tym eksperymentowanie z VEC świń i owiec po izolacji może być restrykcyjne. Modele mysie są preferowane ze względu na wiele możliwości manipulacji genetycznej i narzędzi molekularnych u zarodków i dorosłych, ale do tej pory nie zgłoszono żadnych izolacji VEC w małych modelach zwierzęcych. Jest to prawdopodobnie spowodowane trudnościami w pracy z małymi próbkami tkanek, które obejmują populację komórek mniejszościowych, które obecnie nie mają unikalnej tożsamości markerów specyficznych dla VEC, co uniemożliwia metody izolacji oparte na przeciwciałach.
W tym artykule opisujemy nową metodę bezpośredniej izolacji mysich VEC w stadium embrionalnym i dorosłym. Protokół ten wykorzystuje myszy Tie2-GFP, które wyrażają GFP we wszystkich typach komórek śródbłonka i są szeroko stosowane do badania populacji komórek śródbłonka14. Jednak nowością tego obecnego badania jest to, że myszy te po raz pierwszy zostały wykorzystane do wyizolowania komórek śródbłonka z zastawek. Poprzez staranne wypreparowanie tkanki zastawki i serię dziewięciu trawień enzymatycznych, po których następuje sortowanie FACS, VEC można wyizolować i wykorzystać do różnych technik eksperymentalnych, w tym ekstrakcji RNA i hodowli, bezpośrednio po sortowaniu.
Protokół
1. Przygotowanie sprzętu i rozwiązań
- Wysterylizuj narzędzia do preparowania - cienkie nożyczki do tkanek do ekstrakcji dorosłych serc i 2 cienkie kleszcze do wypreparowania okolicy zastawkowej - przez autoklawowanie w zakrytej tacy na narzędzia. Spryskaj narzędzia 70% etanolem (EtOH) przed preparacją.
- Przygotuj wszystkie roztwory bezpośrednio przed eksperymentem i wysterylizuj roztwory, przepuszczając je przez sterylny filtr 0,2 μm. Roztwory należy przechowywać na lodzie do czasu użycia.
- Sterylny bufor dysocjacyjny (15 ml ogółem/próbkę). Połącz 1,2 ml kolagenazy dożylnej, 300 μl 2,5% trypsyny i 150 μl surowicy z kurczaka. Zwiększyć objętość do 15 ml za pomocą Hank's Balanced Salt Solution (HBSS).
- Sterylny bufor sortujący (łącznie 12 ml). Połączyć 25 μl 0,5 M kwasu etylenodiaminotetraoctowego (EDTA) i 12 μl DNazy I (bez RNazy). Zwiększyć objętość do 12 ml za pomocą HBSS.
- Pożywki hodowlane VEC. Wymieszaj pożywkę do wzrostu śródbłonka zgodnie z instrukcjami producenta (patrz arkusz kalkulacyjny materiału), dodając podane składniki z zestawu do 500 ml pożywki EBM2.
- Pożywki hodowlane GFP ujemne (pożywki komórkowe nieśródbłonkowe). Wymieszać 445 ml Pożywki 199 1x z 5 ml penicyliny/streptomycyny (wstrzykiwacz/paciorkowiec) (1% stężenie końcowe) i 50 ml FBS (10% stężenie końcowe).
2. Sekcja zastawek od dorosłych myszy i zarodków E14.5
- Wszystkie zabiegi na zwierzętach zostały zatwierdzone i wykonane zgodnie z wytycznymi IACUC Nationwide Children's Hospital Research Institute.
- Myszy Tie2-GFP zakupiono w Jackson Laboratories (numer zapasowy 003658)14 i utrzymywano je jako homozygotyczne genotypy na tle FVB / N, zapewniając w ten sposób, że całe potomstwo wykazuje ekspresję GFP w komórkach śródbłonka Tie2-dodatnich.
- Do sortowania FACS należy przygotować jedną próbkę ujemną dopasowaną wiekowo, która nie zawiera GFP, taką jak C57/Bl6, aby ustawić parametry bramki GFP dla sortowania FACS. UWAGA: Ten protokół i reprezentatywne wyniki opierają się na wykorzystaniu trzech czteromiesięcznych dorosłych myszy lub jednego miotu w dniu embrionalnym (E) 14.5.
- Dorosłe myszy: Bezpośrednio po uśmierceniu przez anoksję CO2 użyj nożyczek preparacyjnych, aby delikatnie otworzyć jamę klatki piersiowej i odsłonić serce i płuca. Po odsłonięciu chwyć serce kleszczami za wielkie tętnice i odsuń się od ciała. Usuń tkankę płucną, jeśli jest nienaruszona, i umieść serca w zimnym HBSS do spłukania. Usuń komorę i odciągnij przedsionki, pozostawiając nienaruszony "pierścień" kanału przedsionkowo-komorowego i obszary aorty. Wykonaj jedno nacięcie z boku kanału przedsionkowo-komorowego, aby otworzyć "pierścień" i odsłonić struktury zastawkowe. Usuń mięsień sercowy i obszary proksymalnej aorty, delikatnie drażniąc kleszczami. Zidentyfikuj ulotki zastawki jako białą, gęstą tkankę nad różowym mięśniem sercowym. Delikatnie odłącz struny ścięgniste od zastawek przedsionkowo-komorowych i usuń jak najwięcej pozostałego mięśnia sercowego. Uważaj, aby nie ciągnąć ani nie skrobać ulotek zaworu podczas tego procesu, ponieważ VEC mogą zostać przemieszczone. Umieść przycięte obszary zastawkowe w 1,5 ml probówce eppendorf zawierającej 1 ml HBSS i trzymaj na lodzie. UWAGA: Staranna sekcja ma kluczowe znaczenie dla wyeliminowania niezastawkowych komórek śródbłonka, które mogłyby zanieczyścić próbkę.
- Zarodki: Samice myszy należy złożyć w ofierze 14,0 dni po zaobserwowaniu czopa kopulacyjnego (poranek czopa kopulacyjnego = 0,5 dnia).
- Bezpośrednio po złożeniu w ofierze należy przeprowadzić sekcję macicy (zawierającej zarodki) i umyć w zimnym HBSS. Wypreparuj poszczególne zarodki z macicy i usuń embrionalny woreczek żółtkowy otaczający każdy zarodek. Usuń serca z każdego z zarodków i postępuj zgodnie z krokiem 2.1. (UWAGA: delikatne ściskanie zarodka kleszczami tuż poniżej górnych przydatków powinno pomóc w odsłonięciu serca i ułatwić usunięcie.)
3. Dysocjacja komórek i przygotowanie do FACS
- Za pomocą sterylnych końcówek do pipet usunąć HBSS z probówki eppendorf zawierającej obszary zastawkowe.
- Zastąp 1 ml buforu dysocjacyjnego i 4 μl DNazy I.
- Obracać probówki w temperaturze 37 °C przez 7 minut.
- Pipetować w górę i w dół 3 razy, a następnie pozostawić próbkę na 15 sekund. Zebrać supernatant (zawierający zdysocjowane komórki) do stożkowej probówki o pojemności 15 ml.
- Aby zatrzymać reakcję kolagenazy, dodaj 125 μl końskiej surowicy do probówki zbiorczej. Trzymaj probówkę zbiorczą na lodzie.
- Powtórz kroki dysocjacji (3,2 - 3,5) dziewięć razy, aby zebrać dziewięć frakcji supernatantu.
- Przepuść frakcjonowaną kolekcję przez nylonowy filtr 70 μm do nowej probówki zbiorczej, aby zapewnić zawieszenie pojedynczej komórki, usuwając wszelkie zanieczyszczenia i grudki.
- Obracać zawiesinę o masie 400 g przez 5 minut, aby otoczkować komórki.
- Zawiesić osad komórkowy w 1 ml buforu sortującego i trzymać na lodzie do czasu FACS.
4. FACS Sortowanie dodatnich VEC GFP
- Ustaw bramki dla rozproszenia do przodu i z boku, aby wykluczyć szczątki i przechwycić pojedyncze komórki; wyklucz dublety, używając bramkowania z dyskryminacją dubletów. Zapisz ujemną próbkę kontrolną i zdefiniuj ustawienia bramki w celu porównania i dokładnego zdefiniowania populacji komórek GFP-dodatnich w próbce Tie2-GFP.
- Analizuj dodatnie komórki GFP za pomocą FACS i doprecyzuj ustawienia bramki.
- Posortuj próbkę Tie2-GFP i zbierz zarówno komórki GFP-dodatnie, jak i GFP-ujemne. Jeśli komórki będą używane do ekstrakcji RNA, sortuj bezpośrednio do bufora sortującego. Aby wyhodować komórki po FACS, zebrać komórki GFP dodatnie w sterylnej probówce zawierającej 1 ml pożywki VEC z 1 ml FBS, a następnie zebrać komórki GFP ujemne w 1 ml pożywki nieśródbłonkowej z 1 ml FBS. Użyj tej kombinacji 50% pożywki/50% surowicy, aby poprawić żywotność komórek. Trzymaj na lodzie do czasu analizy FACS.
5. Analiza po FACS
- Ekstrakcja RNA:
- Bezpośrednio po FACS odwirować dodatnie i ujemne komórki GFP przy 1 500 x g przez 8 minut.
- Ostrożnie odpipetować supernatant (bufor sortujący) i wyrzucić.
- Zawiesić osad komórkowy (osad nie jest widoczny dla zalecanych tutaj rozmiarów próbek) w 200 μl Trizolu.
- Zamrozić w temperaturze -80 °C lub rozpocząć standardową ekstrakcję fenolowo-chloroformową w celu wyizolowania całkowitego mRNA, jak opisano wcześniej przez nasze laboratorium15.
- Użyj 50-200 ng RNA do syntezy cDNA za pomocą Mastermixa zgodnie z instrukcjami producenta.
- Poddaj cDNA ilościowej amplifikacji PCR przy użyciu sond qPCR IDT Primetime przeciwko markerom komórek śródbłonka myszy (CD31, czynnik von Willebranda (vWF)), markerom komórek śródmiąższowych zastawki (aktyna mięśni gładkich α (α-SMA), periostyna (Postn)), markery miocytów (Mhc6, Mhc7) i GAPDH.
- Hodowla myszy VEC:
- Po posortowaniu metodą FACS i pobraniu komórek (krok 4.3) należy odwirować komórki o sile 300 x g przez 5 minut.
- Ostrożnie odpipetować supernatant (bufor sortujący + pożywka) i wyrzucić.
- Zawiesić osad komórek GFP-dodatnich w 1 ml pożywki VEC, a osad GFP-ujemny w 1 ml pożywki nieśródbłonkowej.
- Umieść każdą próbkę w jednym dołku w plastikowym szkiełku komorowym i rosnąć aż do zlewania się. Hodowla przez około 1 tydzień, aby komórki GFP ujemne stały się zlewające się i ponad 2 tygodnie, aby komórki GFP dodatnie stały się zlewające (z próbki 3 dorosłych myszy). Zmieniaj nośniki co dwa dni.
- Barwienie immunofluorescencyjne:
- Usunąć pożywkę z komórek i utrwalić w 4% paraformaldehydzie (PFA) przez 30 minut w temperaturze pokojowej. Umyć utrwalone komórki trzy razy po 5 minut w buforowanym fosforanie roztworze soli fizjologicznej (PBS).
- Usunąć studzienki komorowe ze szkiełka i zablokować w 5% albuminie surowicy bydlęcej/1x PBS przez 1 godzinę w temperaturze pokojowej.
- Inkubować szkiełka podstawowe O/N w temperaturze 4 °C z pierwszorzędowymi przeciwciałami (CD31, 1:1,000 lub aktyna α-mięśni gładkich (α-SMA), 1:100). Prać 3x przez 5 min w PBS.
- Rozcieńczyć przeciwciało drugorzędowe (Alexa-Fluor 568 Goat anti-Rat) w stosunku 1:400 w PBS, dodać do szkiełek i inkubować przez 1 godzinę w temperaturze pokojowej. Płukać szkiełka 3x przez 5 minut w PBS.
- Zamontuj w DAPI zawierającym Vectashield i inkubuj przez 1 godzinę w temperaturze 4°C przed oglądaniem.
Wyniki
Komórki Tie2-GFP kolokalizują z markerami komórek śródbłonka w zastawkach serca zarodkowego i dorosłego.
Aby potwierdzić specyficzność ekspresji Tie2-GFP w VEC myszy embrionalnych i dorosłych, przeprowadzono immunofluorescencję w celu określenia ko-lokalizacji z markerem komórek śródbłonkowych, CD31, w przekrojach tkanek przygotowanych z myszy Tie2-GFP w stadium E14.5 oraz dorosłych w wieku 3 miesięcy, stosując metody opublikowane wcześniej przez nasz zespół16. Jak pokazano na Rycynie 1, VEC ko-ekspresują GFP (Rycina 1 A,B,E,F) i CD31 (Rycina 1 C,D,E,F) zarówno w stadium dorosłym (Rycina 1 B,D,F), jak i embrionalnym (Rycina 1 A,C,E), co potwierdza zasadność zastosowania naszego modelu do późniejszej izolacji VEC.
Analiza FACS zidentyfikowała odrębne populacje komórek GFP-dodatnich i GFP-ujemnych w zastawkach serca zarodkowego i dorosłego izolowanych od myszy Tie2-GFP.
Do ustalenia parametrów GFP wykorzystano myszy szczepu C57/Bl6 typu dzikiego; analiza FACS w próbkach zarodkowych i dorosłych wykazała, że około 2% pojedynczo bramkowanych komórek z myszy Tie2-GFP wykazuje znaczące wzbogacenie w komórki GFP-dodatnie (Rysunek 2). Na podstawie badań kolokalizacji przedstawionych na Rysunku 1, komórki te uznano za VEC, których średnia liczba wyniosła 61 800 komórek łącznie (zakres dla próbek: 39 000-77 000 komórek/próbkę) w próbkach dorosłych (n = 3) oraz 8 928 komórek (8 015-11 000 komórek/miót) z jednego miotu embrionów E14.5.
Analiza PCR potwierdza wzbogacenie markerów komórek śródbłonka w komórkach GFP-dodatnich oraz markerów komórek śródmiąższowych zastawek w komórkach GFP-ujemnych wyizolowanych z myszy Tie2-GFP.
Analiza ekspresji genów w populacjach komórek GFP-dodatnich i GFP-ujemnych za pomocą qPCR po sortowaniu FACS wykazała odmienne profile molekularne. W porównaniu z populacjami komórek GFP-ujemnych wyizolowanych z embrionów i osobników dorosłych Tie2-GFP, w komórkach GFP-dodatnich stwierdzono zwiększoną ekspresję markerów komórek śródbłonka CD31 oraz vWF (Rycina 3). Ponadto ekspresja markerów miocytów (Myh6, Myh7) w tych populacjach komórek jest bardzo niska, co świadczy o minimalnym zanieczyszczeniu komórkami nieśródbłonkowymi. Z kolei komórki GFP-ujemne wyizolowane z dorosłych myszy Tie2-GFP oraz embrionów w stadium E14.5 wykazują zwiększoną ekspresję markerów komórek śródmiąższowych zastawki (VIC), α-sma oraz Periostin (POSTN), w stosunku do komórek GFP-dodatnich. Wzbogacenie w te markery jest wyższe w komórkach GFP-ujemnych wyizolowanych z próbek E14.5 w porównaniu z osobnikami dorosłymi, co wynika z fenotypu spoczynkowego dorosłych komórek VIC i w konsekwencji niskiej ekspresji markerów aktywacji.
Komórki GFP-dodatnie wyizolowane z dorosłych myszy Tie2-GFP mogą być hodowane in vitro.
Zbadano zdolność do hodowli komórek GFP-dodatnich i GFP-ujemnych wyizolowanych z próbek dorosłych osobników na podstawie morfologii komórek i barwienia immunohistochemicznego. Stosując protokoły opisane przez nas wcześniej17, pokazujemy na Rysunku 4, że komórki GFP-dodatnie mają okrągłą morfologię (Rysunek 4A) i po dwóch tygodniach hodowli wykazują koekspresję GFP z markerem komórek śródbłonka CD31 (Rysunek 4C). W przeciwieństwie do nich, komórki nienależące do śródbłonka są GFP-ujemne, wykazują morfologię przypominającą komórki mezenchymalne (Rysunek 4B) i po dziewięciu dniach wykazują ekspresję markera VIC α-SMA (Rysunek 4D).

Rycina 1. Komórki Tie2-GFP-dodatnie współlokalizują z CD31 w zastawkach serca embrionów i osobników dorosłych. Immunofluorescencja wykazująca powiązanie ekspresji (Tie2-)GFP (A, B) z markerem komórek śródbłonka CD31 (C, D) w płatkach przegrodowych zastawki mitralnej w stadium E14.5 (A, C, E) oraz w stadium dorosłym (B, D, F). Obszar zastawki został wyróżniony w A, C, E. (E, F) Obrazy po nałożeniu (merged). Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 2. VEC-y dodatnie pod kątem Tie2-GFP można zidentyfikować za pomocą FACS. W porównaniu do kontroli C57/Bl6 w tym samym wieku (A, C), zastawki wyizolowane z embrionów Tie2-GFP (B) oraz osobników dorosłych (D) zawierają wyraźną populację komórek GFP-dodatnich, zaznaczoną na zielono. Zdarzenia GFP-ujemne, pokazane na czerwono, zostały zebrane jako kontrola. Liczby w (B) i (D) wskazują średni % komórek GFP-dodatnich z całkowitej liczby zdarzeń posortowanych metodą FACS (n = 3). Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 3. Komórki GFP-dodatnie są wzbogacone w markery komórek śródbłonka, podczas gdy komórki GFP-ujemne wykazują ekspresję genów związanych z komórkami śródmiąższowymi zastawek. Reprezentatywna analiza qPCR markerów komórek śródbłonka (CD31, von Willebrand Factor (vWF)) oraz markerów miocytów dorosłych (Myh6) i płodowych (Myh7) w komórkach GFP-dodatnich wyizolowanych z obszarów zastawek u myszy Tie2-GFP w stadium E14.5 (A) i u osobników dorosłych (B). Zauważalne jest wzbogacenie markerów komórek śródbłonka oraz bardzo niskie poziomy genów związanych z miocytami. (C, D) Krotność zmian w ekspresji markerów komórek śródmiąższowych zastawek α-sma oraz Postn w wyizolowanych komórkach GFP-ujemnych u myszy Tie2-GFP w stadium E14.5 (C) i u osobników dorosłych (D). Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
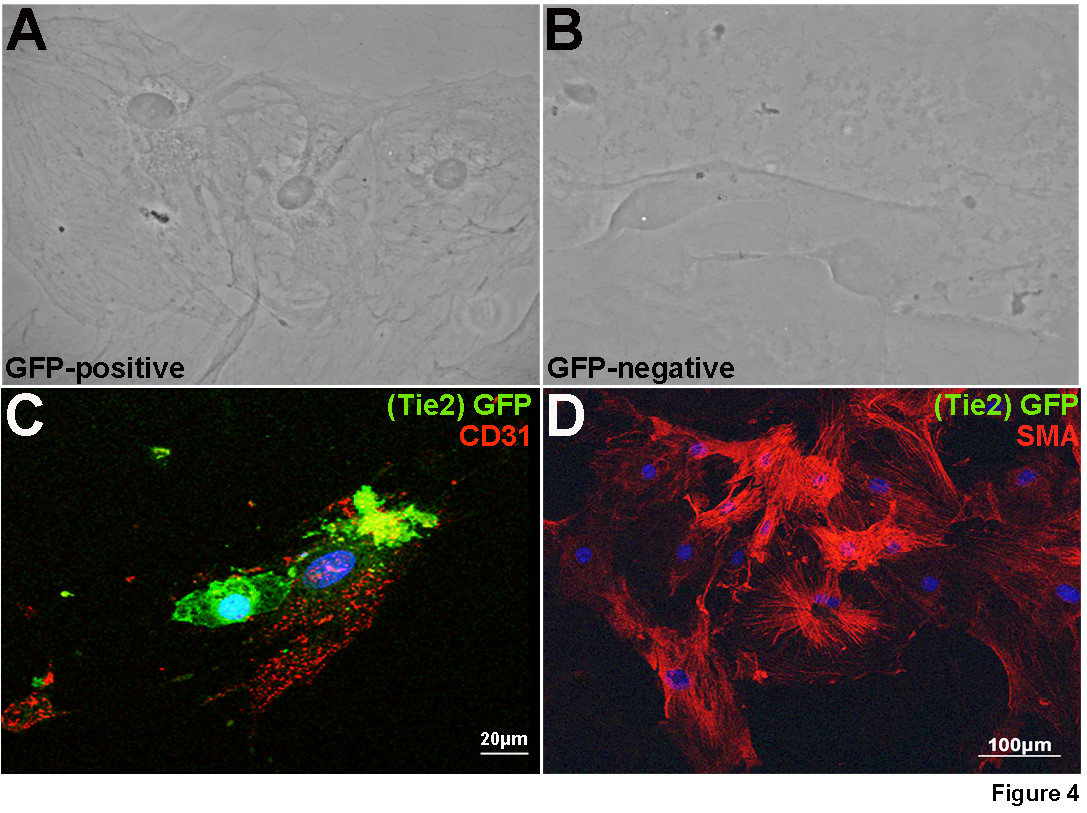
Rycina 4. Komórki Tie2-GFP-dodatnie utrzymują ekspresję markerów komórek śródbłonka in vitro. Po FACS populacje komórek GFP-dodatnich (A, C) i ujemnych (B, D) pochodzące od dorosłych myszy hodowano do uzyskania konfluencji, a następnie poddano obrazowaniu w kontraście fazowym (A, B) oraz fluorescencyjnemu barwieniu immunologicznemu (C, D). Komórki GFP-dodatnie wykazują ekspresję CD31 (czerwony) (C) po 10 dniach hodowli. W przeciwieństwie do nich, w populacji komórek ujemnych nie stwierdzono ekspresji GFP, natomiast wykazano one dodatni wynik barwienia na α-SMA, marker aktywowanych VIC (D).
Dyskusja
Tutaj po raz pierwszy opisujemy nowatorską metodę izolacji embrionalnych i dorosłych mysich VEC od myszy Tie2-GFP . Chociaż ta linia myszy była szeroko stosowana do izolacji populacji komórek śródbłonka, jest to pierwszy raport pokazujący selektywną izolację VEC. Ze względu na kruchość populacji VEC opracowaliśmy rygorystyczny protokół, który pozwala na izolację pojedynczych komórek GFP dodatnich (i GFP ujemnych) z zastawek serca embrionalnych i dorosłych myszy. W porównaniu z oryginalną publikacją z użyciem całych zarodków lub narządów myszy Tie2-GFP14, zoptymalizowaliśmy etapy kolagenazy i sekcji w oparciu o niską liczebność tej delikatnej populacji komórek śródbłonka, aby wyizolować wybraną populację komórek.
Izolacje VEC były wcześniej zgłaszane tylko w dużych modelach zwierzęcych z ograniczonymi narzędziami genetycznymi i biomolekularnymi. Narzędzia te są dobrze ugruntowane u myszy, a zatem zdolność do izolowania mysich VEC pozwala na wykorzystanie rozszerzonego zestawu projektów eksperymentalnych do badań nad zastawkami serca. Dlatego istotną zaletą tego podejścia jest to, że VEC można czasowo izolować od myszy typu dzikiego oraz modeli chorób i uszkodzeń zastawek. Drugą zaletą jest to, że VEC można izolować i analizować niemal natychmiast po sekcji, zachowując wzorce ekspresji, które dokładniej odzwierciedlają sytuację in vivo . Co więcej, ten protokół izolacji jest wystarczający do wyeliminowania hodowli komórkowej w celu ekspansji liczby, a tym samym zapobiega potencjalnym zmianom fenotypowym wywołanym przez środowisko in vitro .
Pomimo nowości i eksperymentalnych korzyści płynących z tego protokołu, zdajemy sobie sprawę, że nadal istnieją ograniczenia. Po pierwsze, wielkość populacji VEC w mysich zastawkach jest bardzo mała i dlatego potrzeba wielu czasowych miotów embrionalnych, aby wygenerować wystarczającą ilość RNA do analizy ekspresji genów. Chociaż można temu zaradzić przy użyciu wielu hodowców, może to mieć wpływ na zastosowanie niektórych narzędzi do analizy po izolacji. To ograniczenie było wyzwaniem w szczególności w przypadku tworzenia konfluentnych kultur VEC dodatnich dla GFP w celu przeprowadzenia bardziej dokładnych analiz fenotypów VEC, w tym profili molekularnych i testów funkcjonalnych. Dlatego zdajemy sobie sprawę, że nie wszystkie trudności zostały przezwyciężone dzięki naszemu podejściu, ale jest to obszar zainteresowania, który staramy się przezwyciężyć.
To podejście polegające na izolowaniu VEC z obszarów zastawkowych wprowadza możliwość zanieczyszczenia Tie-GFP-dodatnimi, niezastawkowymi komórkami śródbłonka wsierdzia lub strukturami naczyniowymi w obrębie mięśnia sercowego komory. Do tej pory nie zidentyfikowano molekularnego rozróżnienia VEC od innych populacji komórek śródbłonka serca. Zidentyfikowano jednak region wzmacniający genu Nfatc1 i wykazano, że specyficznie znakuje VEC, które nie przechodzą EMT, ani żadnej innej populacji komórek śródbłonka w sercu18. Ponieważ dostępny jest model Cre (Nfatc1enCre), przyszłe badania mogą wykorzystywać specyfikę tej linii w celu zminimalizowania ryzyka zanieczyszczenia. Oprócz niezastawkowych komórek Tie2-GFP-dodatnich zawsze istnieje możliwość zanieczyszczenia miocytami w miejscu, w którym płatki zastawki przyczepiają się do pierścieniowego obszaru przegrody i ściennych ścian mięśnia sercowego. W danych, które nie zostały tutaj pokazane, początkowo rozpoczęliśmy badania mające na celu wyizolowanie VEC z wypreparowanych obszarów zastawkowych za pomocą kulek sprzężonych z przeciwciałami pokrytych anty-GFP i anty-CD31. Chociaż to podejście było skuteczne w izolowaniu komórek śródbłonka, doświadczyliśmy znacznego zlepiania się komórek z sąsiednich, nieśródbłonkowych typów komórek, a zatem VIC i komórki mięśnia sercowego zanieczyściły naszą próbkę eksperymentalną. Udało się tego uniknąć za pomocą analizy FACS, ponieważ parametry zostały ustawione tak, aby izolować tylko zawiesiny pojedynczych komórek, a analiza PCR w celu wykrycia ekspresji genów specyficznych dla miocytów kontrolowała to ograniczenie (Figura 3). Chociaż nasze zanieczyszczenie można uznać za minimalne, pozostaje ono potencjalną złożonością eksperymentalną, której można uniknąć w przyszłości dzięki podwójnej selekcji GFP i markerów powierzchniowych specyficznych dla komórek śródbłonka.
Korzystając z tego protokołu, z powodzeniem wyizolowaliśmy VEC od embrionalnych i dorosłych myszy oraz przedstawiliśmy przykłady, w jaki sposób to podejście można wykorzystać do izolacji RNA i hodowli komórkowych populacji komórek GFP dodatnich i GFP ujemnych. Jednak to podejście nie ogranicza się do tych zastosowań i może być stosowane w wielu podejściach molekularnych, komórkowych i funkcjonalnych. Ponadto tło Tie2-GFP można hodować za pomocą genetycznych modeli myszy, które pozwolą na badania porównawcze populacji VEC pod względem zdrowia i choroby. Opracowanie tej nowatorskiej metodologii po raz pierwszy pozwoli na przeprowadzenie ukierunkowanych badań nad udziałem VEC w rozwoju i utrzymaniu zastawki oraz może ujawnić wcześniej niedoceniane mechanizmy choroby zastawek zależnych od śródbłonka.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy The Ohio State University Comprehensive Cancer Center Analytical Cytometry Core facility, w szczególności Katrinie Moore, za pomoc techniczną w analizie FAC. Ponadto doceniamy dr Williama Pu i jego grupę za ich naukowe spostrzeżenia. Praca ta była wspierana przez NIH HL091878 (JL) i Centrum Kardiologiczne w Nationwide Children's Hospital.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Alexa Fluor 568 Koza Anty-Szczura IgG (H+L) | Life Technologies | A-11077 | |
| 70 μ m nylonowe sitko komórkowe | BD Falcon | 352350 | |
| 2,5% Trypsyna | Invitrogen LT | 15090-046 | |
| Albumina surowicy bydlęcej (BSA), frakcja V, poddana szokowi cieplnemu | Fisher Scientific | BP1600-100 | |
| CD31 szczurze przeciwciało przeciw myszom | BD Pharmingen | 553370 | |
| Serum dla piskląt | Invitrogen LT | 16110-082 | |
| Kolagenaza IV | Invitrogen LT | 17104-019 | Przygotowany zgodnie z instrukcjami producenta |
| DNaza I, bez RNaz (10 000 jednostek) | Roche | 4716728001 | |
| EBM-2 | Lonza | CC3156 | Do podłoża VEC |
| EDTA, 0,5 M Rozwiązanie | Hoefer | 03-500-506 | |
| EGM2 SingleQuot, Bulletkit | Lonza | CC-4176 | Do podłoża VEC |
| Płodowa surowica bydlęca (FBS), inaktywowany termicznie | hyklon | SH3007103IH | |
| Hanks Zrównoważony roztwór soli (HBSS) | Life Technologies | 14025-092 | |
| Serum dla koni | Invitrogen LT | 16050-130 | |
| Piec do hybrydyzacji | VWR | 230301V | |
| Medium 199 1X | Corning cellgro | 10-060-CV | |
| Paraformaldehyd 16% roztwór Mikroskopia | elektronowa klasy EM Sciences | 15710 | |
| Pióro/paciorkowiec | MP-Biomed | ICN1670049 | |
| Szkiełko sterylne z pokrywą | Thermo-Scientific | 177429 | |
| Sól fizjologiczna buforowana fosforanami, 1X | Corning cellgro | 21-040-CV | |
| PrimeTime Mini qPCR Test | Zintegrowane technologie DNA | Acta2 (αSMA), GAPDH, Myh6, Myh7, POSTN, CD31, vWF | |
| System PCR w czasie rzeczywistym StepOnePlus | Applied Biosystems | 4376600 | |
| SuperScript VILO Mastermix | Invitrogen LT | 11755050 | |
| [header] | |||
| Myszy Tie2-GFP | Jackson Laboratories | 3658 | |
| Kleszcze do tkanek #5 11 cm | Dumont | 14096 | |
| Trizol | Ambion | 15596018 | |
| &alfa;-SMA przeciwciało przeciw myszy | Sigma-Aldrich | A2547 | |
| VECTASHIELD HardSet Medium montażowe z DAPI | Vector Laboratories | H-1500 |
Bibliografia
- Tao, G., Kotick, J. D., Lincoln, J. Heart valve development, maintenance, and disease: the role of endothelial cells. Current topics in developmental biology. 100, 203-232 (2012).
- Lincoln, J., Yutzey, K. E. Molecular and developmental mechanisms of congenital heart valve disease. Birth defects research. Part A, Clinical and molecular teratology. 91, 526-534 (2011).
- Tao, G., Levay, A. K., Gridley, T., Lincoln, J. Mmp15 is a direct target of Snai1 during endothelial to mesenchymal transformation and endocardial cushion development. Developmental biology. 359, 209-221 (2011).
- Weinberg, E. J., Mack, P. J., Schoen, F. J., Garcia-Cardena, G., Kaazempur Mofrad, M. R. Hemodynamic environments from opposing sides of human aortic valve leaflets evoke distinct endothelial phenotypes in vitro. Cardiovasc Eng. 10, 5-11 (2010).
- Hinton, R. B. Jr Extracellular matrix remodeling and organization in developing and diseased aortic valves. Circulation research. 98, 1431-1438 (2006).
- Gould, S. T., Srigunapalan, S., Simmons, C. A., Anseth, K. S. Hemodynamic and cellular response feedback in calcific aortic valve disease. Circulation research. 113, 186-197 (2013).
- Bosse, K., et al. Endothelial nitric oxide signaling regulates Notch1 in aortic valve disease. Journal of molecular and cellular cardiology. 60, 27-35 (2013).
- Laforest, B., Andelfinger, G., Nemer, M. Loss of Gata5 in mice leads to bicuspid aortic valve. The Journal of clinical investigation. 121, 2876-2887 (2011).
- Hofmann, J. J., et al. Endothelial deletion of murine Jag1 leads to valve calcification and congenital heart defects associated with Alagille syndrome. Development. 139, 4449-4460 (2012).
- Wylie-Sears, J., Aikawa, E., Levine, R. A., Yang, J. H., Bischoff, J. Mitral valve endothelial cells with osteogenic differentiation potential. Arteriosclerosis, thrombosis, and vascular biology. 31, 598-607 (2011).
- Gould, R. A., Butcher, J. T. Isolation of valvular endothelial cells. Journal of Visualized Experiments : JoVE. , (2010).
- Butcher, J. T., Penrod, A. M., Garcia, A. J., Nerem, R. M. Unique morphology and focal adhesion development of valvular endothelial cells in static and fluid flow environments. Arteriosclerosis, thrombosis, and vascular biology. 24, 1429-1434 (2004).
- Cheung, W. Y., Young, E. W., Simmons, C. A. Techniques for isolating and purifying porcine aortic valve endothelial cells. The Journal of heart valve disease. 17, 674-681 (2008).
- Motoike, T., et al. Universal GFP reporter for the study of vascular development. Genesis. 28, 75-81 (2000).
- Peacock, J. D., Lu, Y., Koch, M., Kadler, K. E., Lincoln, J. Temporal and spatial expression of collagens during murine atrioventricular heart valve development and maintenance. Developmental dynamics : an official publication of the American Association of Anatomists. 237, 3051-3058 (2008).
- Levay, A. K., et al. Scleraxis is required for cell lineage differentiation and extracellular matrix remodeling during murine heart valve formation in vivo. Circulation research. 103, 948-956 (2008).
- Lincoln, J., Alfieri, C. M., Yutzey, K. E. BMP and FGF regulatory pathways control cell lineage diversification of heart valve precursor cells. Developmental biology. 292, 292-302 (2006).
- Wu, B., et al. Nfatc1 coordinates valve endocardial cell lineage development required for heart valve formation. Circulation research. 109, 183-192 (2011).
Przedruki i uprawnienia
