Ten protokół opisuje użycie mikroskalowych wsporników krzemowych jako giętkich powierzchni hodowlanych do pomiaru kurczliwości komórek mięśniowych in vitro. Skurcz komórkowy powoduje zginanie wspornika, które można zmierzyć, zarejestrować i przekształcić w odczyty siły, zapewniając nieinwazyjny i skalowalny system pomiaru funkcji skurczu in vitro.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wykorzystanie mikroskalowych wsporników krzemowych do oceny funkcji kurczliwości komórkowej in vitro
W tym artykule
Podsumowanie
Streszczenie
Rozwój bardziej predykcyjnych i biologicznie istotnych testów in vitro opiera się na rozwoju wszechstronnych systemów hodowli komórkowych, które ułatwiają funkcjonalną ocenę zasianych komórek. W tym celu technologia wspornikowa w mikroskali oferuje platformę, za pomocą której można mierzyć kurczliwość szeregu typów komórek, w tym komórek szkieletowych, serca i mięśni gładkich, poprzez ocenę zginania substratu wywołanego skurczem. Zastosowanie multipleksowanych macierzy wspornikowych zapewnia środki do opracowania protokołów o umiarkowanej i wysokiej przepustowości do oceny skuteczności i toksyczności leku, fenotypu i progresji choroby, a także interakcji nerwowo-mięśniowych i innych interakcji komórka-komórka. Niniejszy manuskrypt zawiera szczegółowe informacje na temat wytwarzania niezawodnych układów wspornikowych w tym celu oraz metod wymaganych do pomyślnego hodowania komórek na tych powierzchniach. Przedstawiono dalsze opisy kroków niezbędnych do przeprowadzenia analizy funkcjonalnej typów komórek kurczliwych utrzymywanych na takich matrycach przy użyciu nowatorskiego systemu laserowego i fotodetektora. Przedstawione reprezentatywne dane podkreślają precyzję i odtwarzalność analizy funkcji skurczowej możliwej do wykonania przy użyciu tego systemu, a także szeroki zakres badań, do których można zastosować taką technologię. Udane powszechne przyjęcie tego systemu może zapewnić badaczom środki do przeprowadzania szybkich, tanich badań funkcjonalnych in vitro, co doprowadzi do dokładniejszych przewidywań wydajności tkanek, rozwoju choroby i odpowiedzi na nowatorskie leczenie terapeutyczne.
Wprowadzenie
Hodowla in vitro komórek mięśniowych zarówno ze źródeł ludzkich, jak i gryzoniowych jest możliwa od dziesięcioleci1,2. Jednakże, podczas gdy standardowe preparaty szkiełek nakrywkowych są przydatne do oceny biochemicznej, nie ułatwiają analizy podstawowej wydajności funkcjonalnej komórki (kurczliwości), a zatem mają nieco ograniczoną wartość jako sposób oceny dojrzewania i wydajności komórki. Aby zmaksymalizować ilość danych możliwych do uzyskania z takich hodowli in vitro, konieczne jest przyspieszenie rozwoju systemów zdolnych do przechowywania takich komórek w konfiguracjach, które umożliwiają ocenę ich sprawności funkcjonalnej w czasie rzeczywistym. Stworzenie wielu trójwymiarowych modeli mięśni poczyniło pewne postępy w kierunku zaspokojenia tej potrzeby, a takie systemy zostały wykorzystane w wielu publikacjach jako środek do oceny zdolności kurczliwej hodowanych komórek mięśniowych in vitro3-5. Chociaż takie systemy są nieocenione w badaniach modelowania i rekonstrukcji tkanek, ich zastosowanie w badaniach odpowiedzi pojedynczych komórek jest ograniczone. W takich przypadkach, w których konieczne są badania pojedynczych włókien, jedyną opcją pozostają złożone i pracochłonne metodologie ex vivo 6-10. Co więcej, obecny ruch w kierunku rozwoju złożonych, wielonarządowych platform do opracowywania leków i protokołów badań przesiewowych wymaga ustanowienia systemów, które są nieinwazyjne, łatwo skalowalne i które łatwo integrują się z komórkami i modelami tkanek wspomagających11.
Wsporniki mikroskalowe oferują prostą metodę oceny funkcjonalnej zdolności kurczliwości pojedynczych komórek/małych populacji komórek12,13. Technika ta opiera się na zmodyfikowanej technologii mikroskopii sił atomowych (AFM)14 i wykorzystuje system lasera i fotodetektora do pomiaru ugięcia wspornika w mikroskali w odpowiedzi na aktywność kurczliwą hodowlanych mięśniówek. Zmodyfikowane równania Stoney'a są następnie wykorzystywane do obliczania naprężenia w miotubie oraz siły wywieranej przez miotubę w celu wygenerowania obserwowanego ugięcia podłoża15. Napisano program skanujący, który umożliwia jednoczesną ocenę multipleksowanych macierzy kantylowych, oferując potencjalne zastosowania o umiarkowanej i wysokiej przepustowości do badań toksyczności/skuteczności leków15,16. Taka technologia może okazać się nieoceniona w opracowywaniu funkcjonalnych, przedklinicznych testów do przewidywania skuteczności leków in vivo. Co więcej, wytwarzanie chipów wspornikowych w krzemie nie utrudnia przetwarzania komórek po analizie do standardowych testów biomolekularnych, takich jak barwienie immunologiczne, western blotting i PCR.
Ten manuskrypt zawiera szczegółowe instrukcje dotyczące produkcji i przygotowania mikroskalowych wsporników krzemowych, konfiguracji sprzętu i oprogramowania oraz wytycznych operacyjnych do oceny funkcjonalności komórek kurczliwych hodowanych na tych chipach. Do powlekania i konserwacji komórek na tych powierzchniach można zastosować standardowe techniki hodowli komórkowej, dlatego każdy typ komórek kurczliwych, dla których istnieją wiarygodne parametry hodowli, powinien być w stanie łatwo zintegrować się z tym urządzeniem. Stosunkowo proste parametry hodowli 2D wykorzystywane w tym systemie sprawiają, że integracja innych modeli komórkowych lub dodawanie typów komórek, które mogą wchodzić w interakcje z mięśniami (takimi jak unerwione neurony) jest proste, co znacznie zwiększa możliwości zastosowania tego modelu w rozwoju bardziej złożonych funkcjonalnych testów in vitro i wielonarządowych modeli układów ssaków.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Wytwarzanie chipa z belkami wspornikowymi
Zilustrowane szczegóły opisanych etapów wykonania przedstawiono na Rysunku 1.
- Umieść wafle Silicon-On-Insulator (SOI) w piecu i wypalaj w temperaturze 125 °C przez 20 min w celu ich odwodnienia.
- Nanieś warstwę tlenku krzemu o grubości 1,5 µm na warstwę nośną (handle layer) odwodnionego wafla SOI, korzystając z urządzenia do chemicznego osadzania z fazy gazowej wspomaganego plazmą (PECVD).
- Umieść wafel na uchwycie powlekarki wirówkowej (spin coater) warstwą urządzenia (device layer) skierowaną do góry. Upewniając się, że wafel jest wycentrowany, nanieś 2 ml primera P20 na środek wafla i wiruj z prędkością 3 000 rpm przez 60 sec przy przyspieszeniu 1 000 rpm/sec. Primer P20 poprawia adhezję fotorezystu do warstwy urządzenia.
- Gdy wafel wciąż znajduje się na uchwycie powlekarki, nanieś 2 ml fotorezystu S1818 na środek wafla i wiruj z prędkością 3 000 rpm przez 60 sec przy przyspieszeniu 1 000 rpm/sec, aby uzyskać warstwę fotorezystu o grubości 1,5 µm.
- Umieść wafel na płycie grzewczej i przeprowadź wstępne wygrzewanie (soft bake) w temperaturze 115 °C przez 1 min.
- Wykonaj ekspozycję UV w trybie twardego kontaktu, używając kontaktowego maskowania litograficznego, aby przenieść wzór z maski wsporników na fotorezyst w warstwie urządzenia. Oblicz czas ekspozycji na podstawie wartości energii ekspozycji 125 mJ/cm2 dla fotorezystu S1818.
- Wywołaj fotorezyst, zanurzając wafel w wywoływaczu fotorezystu 726 MIF na 1 min, delikatnie potrząsając waflami w przód i w tył.
- Opłucz wafel wodą dejonizowaną (DI) i osusz go, najlepiej za pomocą urządzenia do płukania i suszenia wirowego (SRD).
- Usuń fotorezyst z krawędzi wafla (do 5 mm od brzegu), używając patyczka watnego nasączonego acetonem.
- Załaduj wafel do urządzenia do głębokiego trawienia reaktywnego jonami (DRIE) stroną z fotorezystem do góry i uruchom program trawienia ustrukturyzowanej warstwy krzemu przez całą warstwę urządzenia. Warstwa tlenku zakopanego (buried oxide) pełni funkcję bariery trawienia (etch stop), dlatego przeprowadź trawienie z liczbą cykli o 50% do 100% większą niż przewidywana, aby zapewnić całkowite wytrawienie.
- Umieść wafel w gorącym roztworze kąpieli do usuwania fotorezystu na 20 min w celu jego usunięcia. Przenieś wafel do szybkopłuczki (QDR), aby opłukać go wodą DI. Po usunięciu fotorezystu załaduj wafel do urządzenia SRD w celu opłukania i osuszenia. Sprawdź wafel pod mikroskopem, aby upewnić się, że wzór wsporników jest zgodny z oczekiwaniami.
- Nanieś warstwę niedopowanego tlenku krzemu o grubości 1 µm na warstwę urządzenia wafla za pomocą urządzenia PECVD. Ta warstwa tlenku pełni funkcję warstwy ochronnej dla wsporników podczas kolejnych etapów przetwarzania.
- Umieść wafel na uchwycie powlekarki wirówkowej warstwą nośną skierowaną do góry, aby rozpocząć obróbkę tylnej strony wafla. Upewniając się, że wafel jest wycentrowany, nanieś 2 ml primera P20 na środek wafla i wiruj z prędkością 3 000 rpm przez 60 sec przy przyspieszeniu 1 000 rpm/sec.
- Gdy wafel wciąż znajduje się na uchwycie powlekarki, nanieś 2 ml fotorezystu SPR220-4.5 na środek wafla i wiruj z prędkością 2 000 rpm przez 45 sec przy przyspieszeniu 1 000 rpm/sec, aby uzyskać warstwę fotorezystu o grubości 6,5 µm.
- Umieść wafel na płytce grzewczej w trybie zbliżeniowym, aby przeprowadzić wstępne wygrzewanie (soft bake) w temperaturze 115 °C przez 2 min.
- Używając kontaktowego wyrównywacza litograficznego z możliwością wyrównywania przód/tył, wyrównaj maskę okna tylnej strony względem wzoru wsporników na stronie przedniej i wykonaj ekspozycję UV w trybie twardego kontaktu, aby przenieść wzór z maski okna tylnej strony na fotorezyst w warstwie nośnej. Użyj czasu ekspozycji obliczonego na podstawie wartości energii ekspozycji 480 mJ/cm2 dla fotorezystu SPR220-4.5.
- Po ekspozycji UV pozostaw wafle w ciemnym miejscu na 30 min przed kolejnym etapem obróbki.
- Wywołaj fotorezyst, zanurzając wafel w wywoływaczu fotorezystu 726 MIF na 2 min, delikatnie potrząsając waflami w przód i w tył.
- Opłucz wafel wodą dejonizowaną (DI) i osusz go, najlepiej za pomocą urządzenia SRD.
- Umieść wafle w piecu w temperaturze 90 °C na 12 hr.
- Wytraw warstwę tlenku krzemu na tylnej stronie wafla, korzystając z systemu RIE z gazami fluorowanymi i programem do trawienia tlenków. Ustrukturyzowany tlenek na tylnej stronie wafla służy jako maska trawienia dla dalszej obróbki. Sprawdź wafle pod mikroskopem, aby upewnić się, że tlenek krzemu w odsłoniętym oknie został całkowicie wytrawiony.
- Usuń fotorezyst z krawędzi wafla (do 5 mm od brzegu), używając czystego tamponu do pomieszczeń cleanroom nasączonego acetonem.
- Załaduj wafel do urządzenia DRIE i uruchom program trawienia ustrukturyzowanej warstwy nośnej do głębokości 500 µm, przy czym warstwa tlenku zakopanego pełni funkcję bariery trawienia. Podziel ten proces na kilka cykli, aby zapobiec nadmiernemu nagrzaniu wafla, co mogłoby spowodować nierównomierne trawienie krzemu. Ten etap trawienia całkowicie usuwa krzem spod wsporników.
- Przeprowadź etap trawienia mokrego przy użyciu 25% rozcieńczonego trawienia HF, aby usunąć warstwę tlenku zakopanego pod wspornikami oraz ochronną warstwę tlenku na ich górnej powierzchni.
UWAGA: Ten krok uwalnia dolną powierzchnię krzemowych wsporników oraz otwiera okno pod nimi, umożliwiając dostęp do badania wspornika za pomocą lasera. - Opłucz wafel w serii kąpieli z wodą DI i ostrożnie osusz azotem. Ponieważ wsporniki są podparte tylko u podstawy, nie stosuj silnych strumieni wody DI ani gazu obojętnego bezpośrednio na wsporniki.
- Oddziel poszczególne chipy od wafla wzdłuż linii cięcia powstałych podczas etapu trawienia warstwy nośnej.
2. Hodowla komórek
- Przygotować szkiełka nakrywkowe 13F zgodnie z wcześniej opisanymi metodami17.
UWAGA: Jeśli szkiełka nakrywkowe 13F nie są dostępne, można użyć dowolnej powierzchni hydrofobowej z kątem zwilżania powyżej 95°. - Zsterylizować chipy z belkami dwuwarstwowymi (cantilever) oraz szkiełka nakrywkowe 13F w 70% roztworze etanolu i pozostawić do wyschnięcia w komorze z laminarnym przepływem powietrza.
- Umieścić poszczególne chipy z belkami na wierzchu szkiełek nakrywkowych 13F wewnątrz standardowej płytki 12-dołkowej.
- Powlec belki biopolimerem lub modyfikacją powierzchni zoptymalizowaną dla używanego typu komórek, zgodnie ze standardowymi protokołami hodowli komórkowych.
- Resuspender komórki w odpowiedniej pożywce wzrostowej do pożądanej koncentracji.
UWAGA: Zastosowanie tego protokołu spowoduje, że znaczna liczba komórek przejdzie przez okno belki i nie przylgnie do pożądanej powierzchni belki. Dlatego preparaty komórkowe powinny być 3-4x bardziej skoncentrowane niż w przypadku standardowych preparatów na szkiełkach nakrywkowych. Na przykład wysiew komórek satelitarnych mięśni szkieletowych szczura jest zazwyczaj przeprowadzany przy gęstości wysiewu od 500 do 700 komórek/mm15,16, natomiast w przypadku podłoży z belkami stosuje się 2 000 komórek/mm. W przypadku nowych źródeł komórek należy przeprowadzić eksperymenty optymalizacyjne w celu ustalenia odpowiedniej gęstości wysiewu. - Pipetować 200 μl zawiesiny komórkowej na powierzchnię chipu z belkami, upewniając się, że pęcherzyk pożywki całkowicie zakrywa okna belek. Jeśli pożywka przesiąka przez okno i nie tworzy statycznego pęcherzyka na górze belek, należy wymienić szkiełko nakrywkowe 13F i ponownie spróbować wysiać komórki.
- Przenieść płytkę z chipami do inkubatora i pozostawić komórki do przywarcia na co najmniej 1 hr (preferowane 2-3 hr).
- Po tym okresie wysiewu, za pomocą sterylnej pęsety przenieść chip do czystego dołka, bez szkiełka nakrywkowego 13F, i uzupełnić hodowlę 1 ml pożywki wzrostowej.
- Włożyć płytkę z powrotem do inkubatora.
- Hodować komórki zgodnie ze standardowym protokołem utrzymania in vitro na szkiełkach nakrywkowych. W przypadku komórek mięśni szkieletowych konieczna będzie zmiana składu pożywki w celu indukcji tworzenia miotub po osiągnięciu przez komórki konfluencji.
3. Konfiguracja sprzętu i oprogramowania do analizy ugięcia wspornika
- Umieść podgrzewaną szalkę hodowlaną na stole pionowego mikroskopu elektrofizjologicznego.
- Dodaj 3 ml pożywki, w której aktualnie zawieszone są komórki (+ 10 mM HEPES), na podgrzewany stolik mikroskopu.
- Zamocuj elektrody ze stali nierdzewnej wewnątrz podgrzewanej szalki hodowlanej w odległości 15 mm od siebie i podłącz je do generatora impulsów, zdolnego do wytwarzania impulsów stymulacji polowej o różnej intensywności, częstotliwości i kształcie fali, aby umożliwić systemowi stymulację polową komórek w odpowiednim momencie.
- Przykręć laser helowo-neonowy, zamontowany na translatorach XY, do spodu stołu mikroskopowego i ustaw go tak, aby wiązka lasera była skierowana przez dno podgrzewanej szalki hodowlanej pod kątem 30° względem płaszczyzny wspornika.
- Przykręć moduł kwadratowego fotodetektora, zamontowany na translatorach XY, do spodu stolika mikroskopu i dostosuj jego pozycję tak, aby odbita wiązka lasera trafiała w środek 4 kwadrantów. Rysunek 2 przedstawia schemat konfiguracji sprzętowej niezbędnej do realizacji opisanego protokołu.
- Napisz program komputerowy do sterowania siłownikami liniowymi, które skanują wsporniki. Program przygotuj w oparciu o schemat blokowy przedstawiony na Rysunku 3. Interfejs graficzny zaprogramowany do użytku w tym systemie przedstawiono na Rysunku 4.
4. Rejestrowanie danych ugięcia wspornika
- Włącz sprzęt do analizy wsporników (cantilevers) oraz powiązane oprogramowanie.
- Umieść termistor podgrzewanego stolika w medium i poczekaj, aż wskaże temperaturę 37 °C.
- Włóż chip z wspornikami do stolika, tak aby wsporniki były skierowane w prawą stronę stolika.
- Włącz źródło światła mikroskopu.
- Ustaw ostrość mikroskopu tak, aby krawędzie wsporników były widoczne, a następnie za pomocą oprogramowania sterującego laserem/fotodetektorem ustaw wiązkę lasera na końcówce wspornika 1. UWAGA: Zakładając, że wsporniki są skierowane w prawą stronę stolika, wspornik 1 znajduje się w lewym górnym rogu macierzy, a numeracja biegnie w dół do 16 w lewym dolnym rogu. Wspornik 17 znajduje się w prawym górnym rogu, a numeracja biegnie do 32 w prawym dolnym rogu (Rysunek 5A).
- Naciśnij „play” w oprogramowaniu do rejestracji.
- Ustaw fotodetektor tak, aby sygnał w obu ramkach x i y wynosił „0”, regulując silniki krokowe sterujące fotodetektorem.
- Ustaw pozycję wspornika 1 w oprogramowaniu sterującym laserem/fotodetektorem (Rysunek 4).
- Przesuń laser na końcówkę wspornika 16, powtórz krok 4.7. i ustaw pozycję wspornika 16 w oprogramowaniu sterującym laserem/fotodetektorem.
- Przesuń laser na końcówkę wspornika 32, powtórz krok 4.7. i ustaw pozycję wspornika 32 w oprogramowaniu sterującym laserem/fotodetektorem.
- Przesuń laser na końcówkę wspornika 17, powtórz krok 4.7. i ustaw pozycję wspornika 17 w oprogramowaniu sterującym laserem/fotodetektorem.
- Wyłącz źródło światła mikroskopu oraz oświetlenie górne w laboratorium.
- Naciśnij „record” w oprogramowaniu do rejestracji.
- Ustaw generator impulsów na 40 msec, impulsy 5 V o częstotliwości 1 Hz i włącz urządzenie.
UWAGA: Na tym etapie można opcjonalnie zastosować zoptymalizowane protokoły stymulacji dla konkretnych źródeł komórek; podane ustawienia są wytycznymi opartymi na danych zebranych z wykorzystaniem komórek ludzkich i gryzoni12,13,15,16. - Za pomocą oprogramowania sterującego laserem/fotodetektorem ustaw sprzęt tak, aby skanował macierz 32 wsporników, zatrzymując się na każdym z nich na 5 sec.
- Po zakończeniu skanowania 32 wsporników wyłącz stymulator, zatrzymaj oprogramowanie do rejestracji i otwórz plik z danymi.
- Przeanalizuj zarejestrowany przebieg sygnału z każdego wspornika pod kątem aktywności skurczowej. Odnotuj każdy wspornik z dodatnią odpowiedzią. Skurcz definiuje się jako pik, jeśli odchylenie wynosi co najmniej 0,1 V powyżej linii bazowej.
- Usuń wszystkie niewykazujące odpowiedzi wsporniki z protokołu skanowania w oprogramowaniu sterującym laserem/fotodetektorem.
- Aktywne wsporniki można następnie ponownie przeskanować bez stymulacji, aby odczytać spontaniczną aktywność skurczową komórek.
- Wykonaj skanowanie z szerokopolową stymulacją elektryczną lub bez niej po dodaniu związku terapeutycznego do medium, aby zaobserwować jego wpływ na funkcjonalną odpowiedź hodowanych komórek.
- Przeprowadź oceny zmęczenia, stymulując elektrycznie komórki przez dłuższy czas i skanując poziomy kurczliwości, aby zmierzyć, jak długo zajmuje spadek siły piku poniżej określonego progu.
- W eksperymentach, w których neurony ruchowe są utrzymywane w ko-kulturze z mięśniami, mierz tworzenie złączy neuromięśniowych poprzez traktowanie ko-kultur wspornikowych neuronów ruchowych i miotubul stymulantem neuronalnym (takim jak glutaminian) lub inhibitorem synaptycznym (np. d-tubokurariną) i skanowanie pod kątem odpowiednio wzrostu i spadku aktywności spontanicznej16.
- Wykonaj specyficzne skanowania zgodnie z wymaganiami zaplanowanych eksperymentów.
5. Analiza danych dotyczących ugięcia wspornika
- Użyć zmodyfikowanych równań Stoney'a15 (szczegóły poniżej), aby przekształcić surowe dane dotyczące ugięcia wspornika (wyrażone w woltach) na odczyt naprężenia w warstwie komórek lub miotubie (w paskalach) oraz bezpośredni pomiar siły kurczliwej komórek (w nanoniutonach):
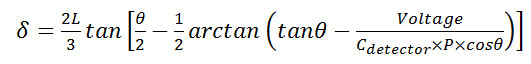 Równanie 1
 Równanie 2
- Gdzie δ = ugięcie końcówki wspornika i naprężenie generowane przez miotubę, σc = naprężenie generowane przez miotubę, przy założeniu jednorodnej grubej warstwy na całej szerokości wspornika, Cdetector = współczynnik specyficzny dla systemu wiążący napięcie z pozycją lasera na fotodetektorze, θ = kąt lasera i detektora względem płaszczyzny wspornika, ESi = moduł sprężystości krzemu, tSi = grubość wspornika, tf= grubość miotuby, vSi = liczba Poissona dla krzemu, L = długość wspornika, P = długość drogi lasera od końcówki wspornika do detektora oraz wSi = szerokość wspornika. Schemat wyjaśniający terminy użyte w tych równaniach znajduje się na Ryc. 6.
- Zakładając, że miotuba jest jednorodną warstwą, siła w miotubie jest równa sile w warstwie, co prowadzi do Równania 3 poprzez zrównanie obliczenia siły z naprężenia z przyjętym przekrojem poprzecznym komórki, który został wykorzystany do zastosowania równania Stoney'a.
 Równanie 3
- Po zebraniu danych funkcjonalnych utrwalić chipy ze wspornikami do analizy immunocytochemicznej lub wykorzystać komórki do analizy białek lub DNA przy użyciu standardowych technik.
- Opcjonalnie, zamiast przygotowywać komórki do analizy molekularnej, można przenieść je z powrotem do inkubatora, aby ponownie ocenić ich parametry funkcjonalne w późniejszym punkcie czasowym.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Skuteczna hodowla komórek kurczliwych na belkach wspornikowych jest stosunkowo prostą procedurą, wykorzystującą standardowe techniki hodowli komórkowych (Rysunek 5). Procent belek wspornikowych z przylegającymi komórkami kurczliwymi będzie różnić się w zależności od badanego typu komórek i zastosowanej techniki hodowli. Przy użyciu pierwotnych komórek embrionalnych pochodzących z kończyn tylnych szczura, aktywność kurczliwa została wykryta w 12% badanych belek wspornikowych (n = 4). Analiza funkcji kurcz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Krytycznymi etapami analizy wsporników w mikroskali pod kątem dowodów skurczu komórek jest umieszczenie chipa wspornikowego w stopniu mikroskopu, a następnie wyrównanie lasera i fotodetektora z końcówką narożnych wsporników w układzie. Jeśli nie zostanie to zrobione dokładnie, oprogramowanie nie będzie w stanie ekstrapolować pozycji pozostałych wsporników w tablicy, co może prowadzić do akumulacji wyników fałszywie ujemnych podczas zbierania danych. Operatorzy powinni upewnić się, że chip wspornikowy leży równo z dnem na...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie zostało sfinansowane przez granty National Institute of Health o numerach R01NS050452 i R01EB009429. Produkcja chipów wspornikowych została przeprowadzona na zewnątrz przez współpracowników z NanoFabrication Facility znajdującego się na Uniwersytecie Cornella. Wszystkie urządzenia wykorzystywane w procesie produkcji wsporników znajdowały się w tym obiekcie. Specjalne podziękowania dla Mandy Esch i Jeana-Matthieu Prota za ich pomoc w mikroprodukcji wsporników. Animacja wideo przedstawiająca funkcjonalność wspornika została wygenerowana przez Charlesa Hughesa, Alexa Zelenina i Erica Imperiale'a z Laboratorium Rzeczywistości Syntetycznej na UCF.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Pierwotny wzrost mięśni szczura pożywka | |||
| Neurobazalna pożywka | Life Technologies | 21103-049 | |
| B27 (50x) | Life Technologies | 17504044 | 1x |
| Glutamax (100x) | Life Technologies | 35050061 | 1x |
| suplement G5 | Life Technologies | 17503-012 | 1x |
| Glejowy Czynnik neurotroficzny | Nauki o komórkach | CRG400B | 20 ng/ml |
| Neurotroficzny czynnik neurotroficzny pochodzenia mózgowego | Nauki o komórkach | CRB600B | 20 ng/ml |
| Rzęskowy czynnik neurotroficzny | Nauki o komórkach | CRC400A | 40 ng/ml |
| Neurotrofina-3 | Nauki o komórkach | CRN500B | 20 ng/ml |
| Neurotrofina-4 | Nauki o komórkach | CRN501B | 20 ng/ml |
| Kwaśny czynnik wzrostu fibroblastów Life | Technologies | 13241-013 | 25 ng/ml |
| Cardiotropin-1 | Nauki o komórkach | CRC700B | 20 ng/ml |
| Siarczan heparyny | Sigma | D9809 | 100 ng/ml |
| Czynnik hamujący białaczkę | Sigma | L5158 | 20 ng/ml |
| Vitronektyna | Sigma | V0132 | 100 ng / ml |
| Pierwotne podłoże | |||
| NB Activ 4 | Brain Bits LLC | NB4-500 | |
| Sprzęt | |||
| Klasa 2 czerwony laser diodowy | Newport | ||
| Fotodetektor | Noah Industries | ||
| Model 2100 Pulse stymulator | A-M | ||
| Multiclamp 700B Digitizer | Axon Instruments | ||
| Mikroskop z zaciskiem krosowym i stolik | Kontroler | ||
| Delta T4 Oprogramowanie | Bioptechs | ||
| 37 oC, 5% CO2 inkubator | NAPCO | ||
| Okap przepływowy mikrobiologiczny klasy 2 | Labconco | ||
| Pipety i końcówki | Eppendorf |
Bibliografia
- Bischoff, R. Enzymatic liberation of myogenic cells from adult rat muscle. Anat. Rec. 180, 645-661 (1974).
- Yasin, R., et al. A quantitative technique for growing human adult skeletal muscle in culture starting from mononucleated cells. J. Neurol. Sci. 32, 347-360 (1977).
- Dennis, R. G., Kosnik, P. E., 2nd, Excitability and isometric contractile properties of mammalian skeletal muscle constructs engineered in vitro. In Vitro Cell Dev. Biol. Anim. 36, 327-335 (2000).
- Khodabukus, A., Baar, K. Defined electrical stimulation emphasizing excitability for the development and testing of engineered skeletal muscle. Tissue Eng Part C Methods. 18, 349-357 (2012).
- Langelaan, M. L. P., et al. Advanced maturation by electrical stimulation: Differences in response between C2C12 and primary muscle progenitor cells. Journal of tissue engineering and regenerative medicine. 5, 529-539 (2011).
- Stephenson, G. M., O'Callaghan, A., Stephenson, D. G. Single-fiber study of contractile and biochemical properties of skeletal muscles in streptozotocin-induced diabetic rats. Diabetes. 43, 622-628 (1994).
- Harber, M., Trappe, S. Single muscle fiber contractile properties of young competitive distance runners. Journal of applied physiology (Bethesda, Md: 1985). 105, 629-636 (2008).
- Hvid, L. G., et al. Four days of muscle disuse impairs single fiber contractile function in young and old healthy men. Experimental gerontology. 48, 154-161 (2013).
- Edman, K. A. Contractile performance of striated muscle. Advances in experimental medicine and biology. 682, 7-40 (2010).
- Krivickas, L. S., Walsh, R., Amato, A. A. Single muscle fiber contractile properties in adults with muscular dystrophy treated with MYO-029. Muscle Nerve. 39, 3-9 (2009).
- Sung, J. H., et al. Microfabricated mammalian organ systems and their integration into models of whole animals and humans. Lab on a chip. 13, 1201-1212 (2013).
- Wilson, K., Molnar, P., Hickman, J. J. Integration of functional myotubes with a Bio-MEMS device for non-invasive interrogation. Lab on a chip. 7, 920-922 (2007).
- Wilson, K., Das, M., Wahl, K. J., Colton, R. J., Hickman, J. Measurement of contractile stress generated by cultured rat muscle on silicon cantilevers for toxin detection and muscle performance enhancement. PLoS ONE. 5, (2010).
- Binnig, G., Quate, C. F., Gerber, C. Atomic Force Microscope. Physical Review Letters. 56, 930-933 (1986).
- Pirozzi, K. L., Long, C. J., McAleer, C. W., Smith, A. S., Hickman, J. J. Correlation of embryonic skeletal muscle myotube physical characteristics with contractile force generation on an atomic force microscope-based bio-microelectromechanical systems device. Applied physics letters. 103, 83108(2013).
- Smith, A., Long, C., Pirozzi, K., Hickman, J. A functional system for high-content screening of neuromuscular junctions in vitro. Technology. 1, 37-48 (2013).
- Stenger, D. A., et al. Coplanar molecular assemblies of amino- and perfluorinated alkylsilanes: characterization and geometric definition of mammalian cell adhesion and growth. Journal of the American Chemical Society. 114, 8435-8442 (1992).
- Das, M., Rumsey, J. W., Bhargava, N., Stancescu, M., Hickman, J. J. A defined long-term in vitro tissue engineered model of neuromuscular junctions. Biomaterials. 31, 4880-4888 (2010).
- Rumsey, J. W., Das, M., Bhalkikar, A., Stancescu, M., Hickman, J. J. Tissue engineering the mechanosensory circuit of the stretch reflex arc: Sensory neuron innervation of intrafusal muscle fibers. Biomaterials. 31, 8218-8227 (2010).
- Das, M., Rumsey, J. W., Bhargava, N., Stancescu, M., Hickman, J. J. Skeletal muscle tissue engineering: A maturation model promoting long-term survival of myotubes, structural development of the excitation-contraction coupling apparatus and neonatal myosin heavy chain expression. Biomaterials. 30, 5392-5402 (2009).
- Das, M., et al. Developing a novel serum-free cell culture model of skeletal muscle differentiation by systematically studying the role of different growth factors in myotube formation. In Vitro Cell Dev Biol Anim. 45, 378-387 (2009).
- Stenger, D. A., Pike, C. J., Hickman, J. J., Cotman, C. W. Surface determinants of neuronal survival and growth on self-assembled monolayers in culture. Brain research. 630, 136-147 (1993).
- Hickman, J. J., et al. Rational pattern design for in vitro cellular networks using surface photochemistry. Journal of Vacuum Scienc., & Technology A: Vacuum, Surfaces, and Films. 12, 607-616 (1994).
- Das, M., Molnar, P., Devaraj, H., Poeta, M., Hickman, J. J. Electrophysiological and morphological characterization of rat embryonic motor neurons in a defined system. Biotechnology progress. 19, 1756-1761 (2003).
- Rumsey, J. W., et al. Node of Ranvier formation on motor neurons in vitro. Biomaterials. 30, 3567-3572 (2009).
- Murugan, R., Molnar, P., Rao, K. P., Hickman, J. J. Biomaterial Surface patterning of self assembled monolayers for controlling neuronal cell behavior. International journal of biomedical engineering and technology. 2, 104-134 (2009).
- Guo, X., Johe, K., Molnar, P., Davis, H., Hickman, J. Characterization of a human fetal spinal cord stem cell line, NSI-566RSC, and its induction to functional motoneurons. Journal of Tissue Engineering and Regenerative Medicine. 4, 181-193 (2010).
- Varghese, K., et al. A new target for amyloid beta toxicity validated by standard and high-throughput electrophysiology. PLoS ONE. 5, e8643(2010).
- Natarajan, A., et al. Patterned cardiomyocytes on microelectrode arrays as a functional, high information content drug screening platform. Biomaterials. 32, 4267-4274 (2011).
- Davis, H., et al. Rat Cortical Oligodendrocyte-Embryonic Motoneuron Co-Culture: An Axon-Oligodendrocyte Interaction Model. Journal of biomaterials and tissue. 2, 206-214 (2012).
- Natarajan, A., DeMarse, T., Molnar, P., Hickman, J. Engineered In Vitro Feed-Forward Networks. J Biotechnol Biomater. 3, 2(2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
