Rejestrowanie prądów Ca2+ na błonie czołowej uwalniania presynaptycznego jest kluczem do precyzyjnego zrozumienia wejścia Ca2+ i uwalniania neuroprzekaźników. Przedstawiamy ostrą dysocjację rdzenia kręgowego minoga, która daje funkcjonalne izolowane aksony siateczkowo-rdzeniowe, umożliwiające zapis bezpośrednio z błony czołowej uwalniającej poszczególne zakończenia presynaptyczne.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ostra dysocjacja aksonów siateczkowo-rdzeniowych minoga w celu umożliwienia rejestracji z błony czołowej uwalniającej poszczególnych funkcjonalnych zakończeń presynaptycznych
W tym artykule
Podsumowanie
Streszczenie
Transmisja synaptyczna to niezwykle szybki proces. Napędzany potencjałem czynnościowym napływ Ca2 + do zakończenia presynaptycznego, przez bramkowane napięciem kanały wapniowe (VGCC) znajdujące się w błonie czołowej uwalniania, jest wyzwalaczem fuzji pęcherzyków i uwalniania neuroprzekaźników. Kluczowe znaczenie dla szybkości transmisji synaptycznej ma przestrzenna i czasowa synchronizacja między nadejściem potencjału czynnościowego, VGCC i maszynerii uwalniania neuroprzekaźników. Zdolność do bezpośredniego rejestrowania prądów Ca2+ z błony czołowej uwalniającej poszczególnych zakończeń presynaptycznych jest niezbędna do precyzyjnego zrozumienia związku między presynaptycznym Ca2 + a uwalnianiem neuroprzekaźników. Dostęp do błony czołowej uwalniania presynaptycznego w celu zapisu elektrofizjologicznego nie jest dostępny w większości preparatów, a presynaptyczne wejście Ca2 + zostało scharakteryzowane przy użyciu technik obrazowania i makroskopowych pomiarów prądu – technik, które nie mają wystarczającej rozdzielczości czasowej do wizualizacji wejścia Ca2 +. Charakterystyka VGCC bezpośrednio na pojedynczych końcach presynaptycznych nie była możliwa w synapsach centralnych i do tej pory udało się to osiągnąć tylko w synapsie typu kielichowego zwoju rzęskowego pisklęcia oraz w kielichach szczurów. Udało nam się rozwiązać ten problem w gigantycznej synapsie siateczkowo-rdzeniowej rdzenia kręgowego minoga, opracowując ostro zdysocjowany preparat rdzenia kręgowego, który daje izolowane aksony siateczkowo-rdzeniowe z funkcjonalnymi zakończeniami presynaptycznymi pozbawionymi struktur postsynaptycznych. Możemy fluorescencyjnie znakować i identyfikować poszczególne zakończenia presynaptyczne i kierować je do nagrywania. Za pomocą tego preparatu scharakteryzowaliśmy VGCC bezpośrednio na powierzchni uwalniania poszczególnych zakończeń presynaptycznych przy użyciu podejść immunohistochemicznych i elektrofizjologicznych. Prądy Ca2+ zarejestrowano bezpośrednio na błonie czołowej uwalniającej poszczególne zakończenia presynaptyczne, przy czym pierwszy taki zapis przeprowadzono w synapsach centralnych.
Wprowadzenie
Przekaźnictwo synaptyczne jest procesem niezwykle szybkim i precyzyjnym. Dotarcie potencjału czynnościowego do zakończenia presynaptycznego prowadzi do otwarcia kanałów VGCC zlokalizowanych w błonie strefy uwalniania; wynikający z tego wzrost stężenia presynaptycznego Ca2+ działa jako wyzwalacz fuzji pęcherzyków i uwalniania neuroprzekaźnika1. Wszystkie te etapy następują w ciągu setek mikrosekund2, co wymaga ścisłego sprzężenia przestrzennego VGCC z mechanizmem fuzji pęcherzyków3. Przepływy presynaptycznego Ca2+ były charakteryzowane głównie za pomocą metod obrazowania z wykorzystaniem barwników wrażliwych na Ca2+4. Do pośredniego określenia zależności między wapniem presynaptycznym a neurotransmisją wykorzystywano wprowadzanie buforów Ca2+ , które modulują poziom Ca2+ w neuronach presynaptycznych3. Ponadto, w celu odpowiedzi na to samo pytanie, stosowano modulację stężenia wolnego Ca2+ w części presynaptycznej poprzez fotolizę klatek z Ca2+ 5 lub rejestrację makroskopowych prądów Ca2+ w połączeniu z pomiarami fuzji i/lub uwalniania pęcherzyków, takimi jak pomiary pojemności6 lub odpowiedzi postsynaptyczne2. Jednakże bezpośrednia charakterystyka prądów Ca2+ w strefie uwalniania — wyspecjalizowanym odcinku błony presynaptycznej, gdzie depolaryzacja błony jest przekształcana w prądy Ca2+ wyzwalające fuzję pęcherzyków synaptycznych i uwalnianie neuroprzekaźnika — jest niezbędna do uzyskania precyzyjnego pomiaru zapotrzebowania na Ca2+ dla fuzji pęcherzyków synaptycznych. Dodatkowo, możliwość bezpośredniej charakterystyki prądów Ca2+ w pojedynczych zakończeniach presynaptycznych, w połączeniu z dokładnymi, jednoczesnymi pomiarami fuzji i uwalniania pęcherzyków, pozwala na precyzyjne wyjaśnienie zależności czasowej między przebiegiem potencjału czynnościowego, prądem presynaptycznym Ca2+, a fuzją i uwalnianiem pęcherzyków. Dostęp do błony strefy uwalniania nie jest możliwy w większości zakończeń presynaptycznych ze względu na bliskie przyleganie dendrytów postsynaptycznych. Ta niedostępność stanowiła główną przeszkodę w charakterystyce VGCC, ponieważ uniemożliwia bezpośrednie pomiary prądu w pojedynczych zakończeniach presynaptycznych. Bezpośrednia charakterystyka prądów presynaptycznego Ca2+ w pojedynczych zakończeniach presynaptycznych nie była dotąd możliwa w synapsach ośrodkowych i została osiągnięta jedynie w dwóch typach zakończeń presynaptycznych typu kielichowatego: w synapsach typu kielichowatego w zwojach rzęskowych kurczaka7-10 oraz w kielichach szczura11,12. We wszystkich innych zakończeniach presynaptycznych, w tym w olbrzymiej synapsie siatczasto-rdzeniowej w rdzeniu kręgowym minuta13, brak dostępu do presynaptycznej błony strefy uwalniania wymusił zastosowanie metod pośrednich, takich jak obrazowanie Ca2+ , do badania przepływów presynaptycznego Ca2+ .
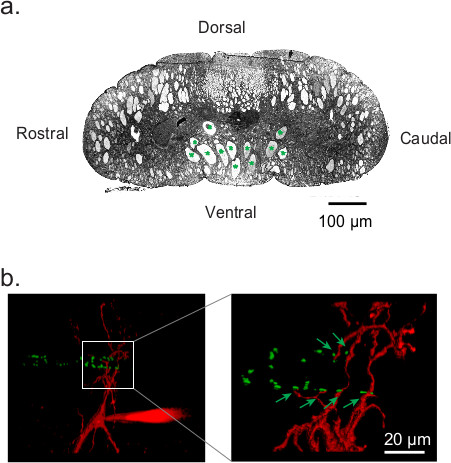
Rycina 1. Gigantyczna synapsa retikulospinalna minogi. (a) Przekrój poprzeczny rdzenia kręgowego minogi wskazujący orientację grzbietowo-brzuszną. Aksony retikulospinalne oznaczone są zielonymi gwiazdkami. (b) Rekonstrukcja 3-D synapsy retikulospinalnej w rdzeniu kręgowym minogi, pokazująca presynaptyczny akson retikulospinalny tworzący liczne kontakty en passant (oznaczone zielonymi strzałkami) z neuronem postsynaptycznym13. Terminale presynaptyczne zostały znakowane faloidyną sprzężoną z hydrazydem Alexa Fluor 488 (kolor zielony), natomiast neuron postsynaptyczny wypełniono hydrazydem Alexa Fluor 568 (kolor czerwony).
Gigantyczne aksony retikulospinalne lampreyi, zlokalizowane w brzusznej części rdzenia kręgowego równolegle do osi rostralno-kaudalnej Rysunek 1a, tworzą liczne kontakty synaptyczne typu enpassant z neuronami brzusznego rogu rdzenia14 Rysunek 1b13. Makroskopowe prądy Ca2+ z całej komórki były rejestrowane z aksonów retikulospinalnych w nienaruszonym rdzeniu kręgowym13,15. Jednak poprzednie ślepe próby bezpośredniego pomiaru prądów Ca2+ w aksonach retikulospinalnych w nienaruszonym rdzeniu kręgowym lampreyi z wykorzystaniem techniki patch clamp w konfiguracji cell-attached okazały się nieskuteczne13 z powodu braku dostępu do błony presynaptycznej strony uwalniającej, co wynika z obecności przeciwległych wypustek postsynaptycznych Rysunek 1b. Błonę strony uwalniającej udostępniano wcześniej poprzez usunięcie neuronu postsynaptycznego11, mechaniczną perturbację synapsy przed rejestracją12 lub obróbkę enzymatyczną połączoną z dysocjacją mechaniczną16. Biorąc pod uwagę złożoną organizację rdzenia kręgowego, zidentyfikowanie neuronu postsynaptycznego i jego mechaniczne wycofanie lub perturbacja synapsy byłyby niezwykle trudne. W związku z tym zdecydowaliśmy się zastosować obróbkę enzymatyczną17, a następnie dysocjację mechaniczną.
Stosując to podejście, opracowaliśmy metodę ostrej dysocjacji rdzenia kręgowego minogi, która pozwala na uzyskanie żywotnych, izolowanych aksonów siatkowordzeniowych z funkcjonalnymi terminalami przedsynaptycznymi pozbawionymi procesów postsynaptycznych, zapewniając tym samym nieograniczony dostęp do poszczególnych terminali przedsynaptycznych. W połączeniu ze standardowym mikroskopem odwróconym i obrazowaniem fluorescencyjnym, metoda ta umożliwia identyfikację i celowanie w poszczególne terminale przedsynaptyczne znakowane fluorescencyjnie za pomocą pipety patch zawierającej roztwór rejestracyjny izolujący prądy Ca2+ Rysunek 4c oraz Rysunek 4d, w celu rejestracji z wykorzystaniem techniki clampy napięciowej w konfiguracji cell-attached. Prądy Ca2+ rejestrowano bezpośrednio w błonie powierzchni uwalniania poszczególnych terminali przedsynaptycznych Rysunek 4f. Stanowi to istotny przełom w badaniach nad transmisją synaptyczną, ponieważ jest to pierwsza taka rejestracja przeprowadzona w synapsach ośrodkowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie hydrobromku poli-D-lizyny
- Przygotować 1 mg/ml hydrobromidu poli-D-lizyny w 0,1 M buforze boratowym (pH 8,5).
- Rozdzielić na alikwoty i przechowywać w temperaturze -20 °C.
2. Powlekanie szkiełek nakrywkowych poli-lizyną
Uwaga: Wszystkie etapy czyszczenia i powlekania należy przeprowadzać w komorze z laminarnym przepływem powietrza.
- Umieść szkiełka nakrywki w szalce Petri zawierającej 1 N kwas solny (HCl) na 2 h.
- Odsuń cały HCl i przepłucz 2-3x 70% etanolem (EtOH).
- Pozostaw w 70% EtOH na 1 h.
- Odsuń cały 70% EtOH i przepłucz 2-3x 100% EtOH.
- Pozostaw w 100% EtOH na 2 h. Odsuń cały EtOH.
- Osusz papierem filtrowanym, a następnie pozostaw do wyschnięcia na powietrzu przez kilka sekund.
- Przechowuj przez noc w roztworze poli-lizyny o stężeniu 1 mg/ml.
- Następnego dnia przepłucz szkiełka nakrywki 4-5x wodą z Millipore.
- Wysusz na powietrzu szkiełka nakrywki powlekane poli-lizyną na szklanych wałkach w czystej szalce Petri.
- Do immunohistochemii użyj pokrywek z szalek Petri o wymiarach 35 x 10 mm. Przygotuj szalki wyłożone sylgardem (polidimetylosiloksanem, PDMS), wlewając PDMS (elastomer i utwardzacz w stosunku wagowym 10:1) do szalki do grubości 0,3 cm i pozostawiając do utwardzenia w temperaturze 30 °C przez noc. Po utwardzeniu wytnij w PDMS otwór o wymiarach 2 cm na 1 cm. Oczyść i powlek poli-lizyną wstawkę zgodnie z etapami opisanymi powyżej dla szkiełek nakrywek.
- Przechowuj powlekane poli-lizyną szkiełka nakrywki i szalki pod przykryciem w komorze z laminarnym przepływem powietrza do momentu użycia (do 2 tygodni, jednak najlepsze wyniki adhezyjne uzyskuje się, przygotowując je okresowo co 3-4 dni).
- Przygotuj blok z PDMS do przytwierdzania rdzenia kręgowego w wibracyjnym slicerze do tkanek. Wymieszaj Elastomer A i Elastomer B w stosunku wagowym 1:1. Wlej do szalki Petri o wymiarach 100 x 15 mm i pozostaw do utwardzenia przez noc w 30 °C. Wytnij prostokątny kawałek PDMS i przyklej go do podstawy tnącej za pomocą kleju epoksydowego. Pozostaw klej do utwardzenia, aby unieruchomić PDMS, a następnie odetnij kilka cienkich warstw z powierzchni, aby uzyskać płaską powierzchnię do przytwierdzania tkanki.
3. Ostra dysocjacja rdzenia kręgowego minogi w celu otrzymania izolowanych aksonów retikulospinalnych
- Znieczulić ammokoeceta lub dorosłego minoga (Petromyzon marinus) za pomocą metansulfonianu tricainy (MS-222; 100 mg/L). Dodać środek znieczulający do wody w plastikowym kubku z pokrywką, w którym znajduje się minog przeznaczony do uboju.
- Odciąć głowę minoga w zimnym (4 °C) roztworze Ringera o następującym składzie (w mM): 130 NaCl, 2,1 KCl, 2,6 CaCl2, 1,8 MgCl2, 4 HEPES, 4 dekstrozy (pH 7,6, osmolarity 270 mOsm) i usunąć mięśnie ściany ciała, aby odsłonić powierzchnię grzbietową rdzenia kręgowego.
- Usunąć meninx primitiva z powierzchni grzbietowej rdzenia kręgowego za pomocą precyzyjnych pęset. Na tym etapie nie usuwać brzusznej części meninx primitiva.
- Pokroić rdzeń kręgowy na kawałki o długości 1 cm.
- Przytwierdzić kawałek rdzenia kręgowego za pomocą cienkich szpilek entomologicznych, stroną grzbietową do góry, na płytce tnącej wyłożonej PDMS (patrz 2.12) w komorze wibracyjnego skrawacza tkanek zawierającej lodowaty roztwór Ringera.
- Usunąć środkowy odcinek sznura grzbietowego rdzenia kręgowego, wykonując cięcie wzdłuż osi rostralno-kaudalnej, pozostawiając nienaruszone fragmenty sznura grzbietowego na końcach rostralnym i kaudalnym, które będą służyć jako uchwyty podczas procesu dysocjacji Rysunek 2a i Rysunek 2b. Użyć najwolniejszego ustawienia prędkości umożliwiającego cięcie oraz ustawienia głębokości, które usunie jedynie sznur grzbietowy, pozostawiając nienaruszony leżący pod nim sznur aksonów retikulospinalnych Rysunek 2b.
- Inkubować pokrojone kawałki rdzenia kręgowego w temperaturze pokojowej (RT) przez 45 min w koktajlu zawierającym 1 mg/ml proteazy (typ XIV z Streptomyces griseus) i 1 mg/ml kolagenazy (typ IA z Clostridium histolyticum) przygotowanym w roztworze Ringera (adaptacja z El Manira & Bussières, 1997 17).
- Przytwierdzić poddane działaniu enzymów kawałki rdzenia kręgowego za pomocą cienkich szpilek w płytce Petriego wyłożonej PDMS, zawierającej zimny (4 °C) roztwór Ringera.
- Usunąć brzuszną część meninx primitiva precyzyjną pęsetą.
- Przeciąć pasma boczne rdzenia kręgowego ostrzem skalpela w połowie pociętego odcinka grzbietowego, pozostawiając nienaruszony centralny sznur aksonów retikulospinalnych w rdzeniu kręgowym Rysunek 2d.
- Nanieść kroplę olejku immersyjnego na obiektyw.
- Umieścić szkiełko zakrywające pokryte poli-lizyną (Rysunek 3a, górny element, czerwony prostokąt) w szczelinie komory rejestracyjnej Rysunek 3 i nałożyć smar próżniowy na wszystkie krawędzie (przestrzeń między czerwonym a niebieskim prostokątem na Rysunku 3a), aby zapewnić szczelność. Przykręcić górną część. Umieścić komorę w gnieździe na stanowisku rejestracyjnym.
- Wprowadzić roztwór Ringera do komory rejestracyjnej za pomocą pipety Pasteura.
- Podłączyć przewód odpływowy butli ciśnieniowej zawierającej roztwór przeciwzamarzający do przewodu dopływowego termoelektrycznego urządzenia chłodzącego. Podłączyć przewód odpływowy termoelektrycznego urządzenia chłodzącego do wlotu zewnętrznej płaszcza chłodzącego, a wylot do zbiornika Rysunek 3b.
- Umieścić po jednym kawałku rdzenia kręgowego w komorze rejestracyjnej i delikatnie rozdzielać rdzeń, utrzymując go przez cały czas przy szkiełku zakrywającym, używając pęsety pokrytej teflonem, aż do izolacji aksonów Rysunek 2e i Rysunek 2f.
- Obniżyć temperaturę roztworu rejestracyjnego do 10 °C poprzez przepływ ciśnieniowego (gaz azotowy wtłacza roztwór do butli) roztworu przeciwzamarzającego (poprzez wypieranie), przez termoelektryczne urządzenie chłodzące, przez zewnętrzny płaszcz chłodzący komory rejestracyjnej Rysunek 3b.
- Pozostawić aksony do regeneracji przez 1 h po dysocjacji w temperaturze 10 °C.
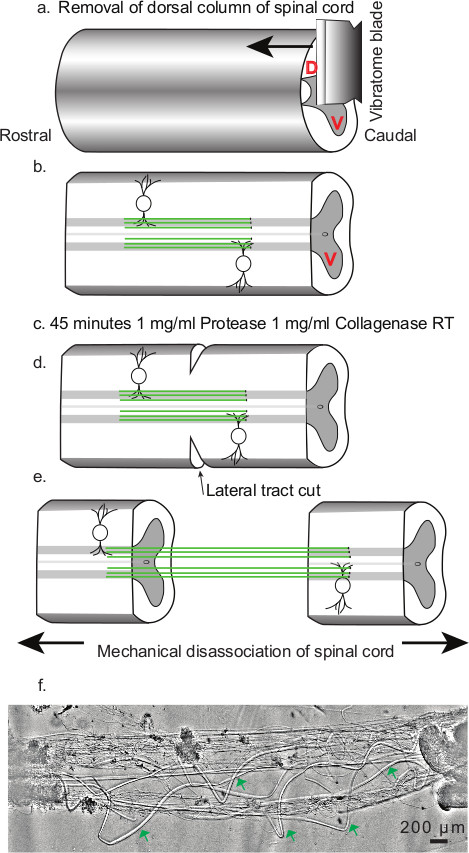
Rycina 2. Schematyczny opis protokołu dysocjacji w celu izolacji aksonów siatczasto-rdzeniowych. (a) Usunięcie słupa tylnego. Strzałka wskazuje kierunek cięcia tkanki. Rogi tylne są oznaczone literą D (czerwony kolor czcionki), natomiast rogi przednie literą V (czerwony kolor czcionki). (b) Słup tylny usunięty w części centralnej rdzenia kręgowego, odsłaniający aksony siatczasto-rdzeniowe (zielone linie). Rogi przednie, które pozostają nienaruszone po procesie cięcia, są oznaczone literą V (czerwony kolor czcionki). (c) 45 min traktowania koktajlem enzymatycznym z proteazy i kolagenazy (1 mg/ml). (d) Przecięcie traktów bocznych rdzenia kręgowego; wskazanie pozycji, kierunku i zakresu cięcia bocznego. (e) Mechaniczna dysocjacja rdzenia kręgowego. Strzałki wskazują położenie pęsety i kierunek siły rozdzielczej podczas dysocjacji. (f) Reprezentatywny przykład preparatu zdysocjowanych aksonów siatczasto-rdzeniowych. Zielone strzałki wskazują obszary ostro zdysocjowanych aksonów siatczasto-rdzeniowych bez żadnych wypustek postsynaptycznych.
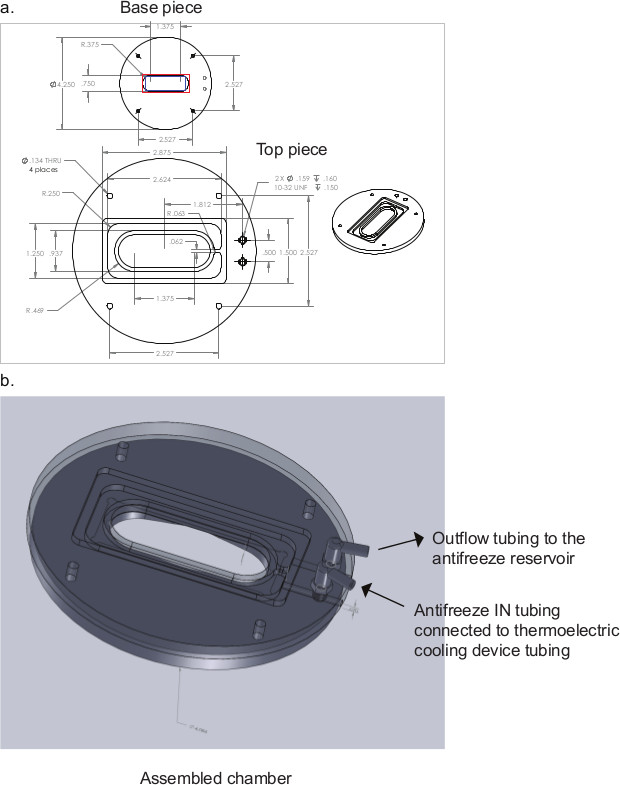
Rysunek 3. Schemat komory rejestracyjnej do eksperymentów z elektrofizjologii. Podane wymiary są w calach. Czerwony prostokąt pokazany na schemacie podstawy (a) wskazuje położenie szkiełka cover slip w rowku na szkiełko w podstawie. Obszar między czerwonym a niebieskim prostokątem, pokazany na schemacie podstawy (a), to miejsce nałożenia smaru wysokopróżniowego. (b) przedstawia zmontowaną komorę rejestracyjną.
4. Znakowanie i identyfikacja zakończeń presynaptycznych za pomocą FM 1-43
- Oznacz terminale presynaptyczne poprzez wbudowanie FM 1-43 do pęcherzyków podczas synaptycznej egzo-endocytozy w trakcie depolaryzacji indukowanej wysokim stężeniem K+. Przepłucz preparat 5 µM FM 1-43 (w 5 ml roztworu Ringera zawierającego 30 mM KCl).
- Przepłucz preparat 1 mg/ml Advasep-7 (w 5 ml roztworu Ringera), aby usunąć nadmiar barwnika FM)18.
- Przepłucz preparat roztworem Ringera przez 15 min, aby wypłukać pozostałości barwnika oraz Advasep.
- Wykonaj obrazowanie za pomocą obiektywu imersyjnego 100 X (NA 1.25) na odwróconym mikroskopie fluorescencyjnym, przy użyciu cyfrowej kamery CCD oraz oprogramowania do akwizycji obrazu Micromanager, stosując standardowe protokoły obrazowania fluorescencyjnego.
- Zidentyfikuj fluorescencyjnie oznakowane terminale presynaptyczne, które mają zostać wybrane do rejestracji Rycina 4c i Rycina 4d.
5. Immunohistochemia izolowanych aksonów siatczkowo-rdzeniowych
- Wypełnić wkładkę naczynia (rozdział 2.10 protokołu) roztworem Ringera pozbawionym jonów dwuwartościowych (Ca2+ i Mg2+).
- Wykonać pipety do patch-clampu w wyciągaczu do mikropipet P-87. Za pomocą pipety do patch-clampu (szkło o średnicy zewnętrznej 1,5 mm) i ssania (używając rurki silikonowej o średnicy wewnętrznej 0,89 mm z dołączoną do końca ssącego końcówką mikropipety) nanieść niewielką ilość kleju chirurgicznego na jeden koniec wkładki z poli-lizyną.
- Przeprowadzić dysocjację zgodnie z procedurą opisaną w rozdziale 3 protokołu Ryc. 2. Jeden koniec rdzenia kręgowego umieścić na kleju chirurgicznym i delikatnie docisnąć pęsetą, aby mocno przywarł do powierzchni. Nanieść kolejną kroplę kleju chirurgicznego na drugi koniec wkładki i delikatnie rozciągać rdzeń kręgowy, aż aksony zostaną zdysocjowane, a następnie przymocować wolny koniec rdzenia, delikatnie przesuwając go po kleju chirurgicznym. Utrwalić w miejscu, delikatnie dociskając pęsetą.
- Wymienić roztwór Ringera pozbawiony jonów dwuwartościowych na zwykły roztwór Ringera poprzez perfuzję.
- Pozostawić aksony do regeneracji przez 20 min po dysocjacji w temperaturze 10 °C.
- Utrwalić zdysocjowane aksony w 4% paraformaldehydzie (PFA) {przygotowanym w buforze fosforanowo-solnym (PBS, (mM) NaCl 137, KCl 2,7, Na2HPO4 10, KH2PO4 1,8, pH 7,4)} przez 20 min. Przed użyciem przefiltrować roztwór PFA przez filtr strzykawkowy 0,2 µM.
- Wypłukać PFA, perfundując 0,1 M glicyną (w PBS) przez 10 min.
- Inkubować w 0,1% Triton-X (w PBS) przez 10 min.
- Przemyć, perfundując PBS przez 20 min.
- Zablokować 5% mlekiem odtłuszczonym (w PBS) przez 6 h w temperaturze 4 °C.
- Dodać przeciwciało pierwszorzędowe przeciwko badanemu kanałowi VGCC (rozcieńczenie 1:200 w PBS) i inkubować przez 20 h w temperaturze 4 °C.
- Przemyć, perfundując PBS przez 20 min.
- Zablokować 5% mlekiem odtłuszczonym (w PBS) przez 10 min w temperaturze 4 °C.
- Dodać przeciwciało drugorzędowe (rozcieńczenie 1:400 w PBS) i inkubować w ciemności przez 2 h w temperaturze 4 °C.
- Przemyć, perfundując PBS przez 20 min.
- Zablokować 1% albuminą surowiczczą bydlęcą (BSA, w PBS) przez 20 min.
- Dodać faloidynę Alexa Fluor 488 (stężenie robocze 5 Units/µl; roztwór zapasu przygotowany w metanolu 200 Units/ml).
- Przemyć, perfundując PBS przez 20 min.
- Wykonać obrazowanie przy użyciu obiektywu z imersją wodną 100X na mikroskopie konfokalnym.
6. Rejestracja elektrofizjologiczna
- Wytworzyć glinokrzemianowe pipety do techniki patch-clamp (oporność pipety 2-5 MΩ) za pomocą mikro-wyciągacza P-87. Zaprojektować pipetę tak, aby jej końcówka obejmowała cały średnicę terminala presynaptycznego.
- Pokryć pipety warstwą PDMS poprzez zanurzenie pipety pod ciśnieniem 50-60 psi w PDMS23 (do tylnego końca pipety należy przymocować rurkę silikonową o średnicy wewnętrznej 0,89 mm, połączoną z butlą z azotem) i wysuszyć za pomocą opalarki. Alternatywnie można ręcznie pokryć pipetę PDMS, nakładając warstwę tak blisko końcówki, jak to możliwe, pod mikroskopem złożonym.
- Wygładzić końcówki pipet za pomocą mikro-kuźni (włókna platynowego wykonanego na zamówienie, zamontowanego na stoliku mikroskopu złożonego).
- Zidentyfikować izolowane aksony wykazujące oznakowane terminale presynaptyczne za pomocą mikroskopii fluorescencyjnej.
- Wypełnić pipetę za pomocą strzykawki roztworem rejestrującym (zaprojektowanym do izolowania prądów Ca2+; 10 mM CaCl2 lub 90 mM BaCl2 jako nośnik ładunku, bufor HEPES pH 7,6, osmolarność 270 mOsm).
- Włożyć pipetę do uchwytu i ustawić nad kąpielą za pomocą zmotoryzowanego manipulatora MP225. Delikatnie opuścić pipetę do kąpieli i ustawić ją naprzeciw powierzchni zidentyfikowanego fluorescencyjnie terminala presynaptycznego.
- Powoli przesuwać pipetę, aż do momentu kontaktu z błoną. W tym punkcie uzyskać uszczelnienie gigaohmiczne (gigaohm seal) poprzez delikatne ssanie ustami przez rurkę przymocowaną do uchwytu pipety.
- Aby uzyskać ekstremalnie niski poziom szumu tła, wymagany do rejestracji prądów pojedynczych kanałów Ca2+, do pomiarów należy użyć Axopatch 200B z chłodzonym wzmacniaczem przedwzmacniaczem (headstage). Próbkować dane z częstotliwością 20-50 kHz i filtrować za pomocą filtru Bessela 5 kHz. Akwizycję danych przeprowadzić przy użyciu Axograph X.
- Zastosować standardowy protokół skokowy z bodźcem w przyrostach 10 mV. W protokole, przed skokami, uwzględnić impuls wstępny (pre-pulse), aby zapewnić maksymalną aktywację kanałów Ca2+. W protokole skokowym uwzględnić skok przeciekowy (leak step) 10 mV w celu odjęcia prądów przeciekowych w analizie po pomiarach.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Niniejszy protokół dysocjacji pozwala na uzyskanie zdrowych i funkcjonalnych izolowanych aksonów retikulospinalnych pozbawionych projekcji postsynaptycznych Rysunek 2f, które mimo to zachowują funkcjonalne terminale presynaptyczne zdolne do wywołanej egzocytozy i endocytozy pęcherzyków synaptycznych Rysunek 4c oraz Rysunek 4d. Przekroje izolowanych regionów aksonów retikulospinalnych można jednoznacznie zidentyfikować w mikroskopii świetlnej jako wolne od innych wypustek...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Nasz protokół dysocjacji jest znaczący, ponieważ daje izolowane aksony siateczkowo-rdzeniowe pozbawione projekcji postsynaptycznych Figura 2f, ale mimo to zachowują funkcjonalne zakończenia presynaptyczne Figura 4c i Figura 4d. Brak procesów postsynaptycznych przeciwstawnych do zakończenia presynaptycznego umożliwia bezpośredni dostęp do błony czołowej uwalniania presynaptycznego na pojedynczych końcach presynaptycznych, co wcześniej nie było możliwe w synapsach centraln...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają żadnych konkurencyjnych interesów finansowych ani innych konfliktów interesów, które mogliby ujawnić.
Podziękowania
Ta praca była wspierana przez NINDS, RO1NS52699 i MH84874 do SA.
Chcielibyśmy podziękować Dr. Dave'owi Featherstone'owi (Wydział Nauk Biologicznych, University for Illinois w Chicago) za dostarczenie nam kleju do szwów używanego w pracach immunohistochemicznych. Dziękujemy Michaelowi Alpertowi za jego komentarze i korektę manuskryptu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 &mikro; m Filtr strzykawkowy | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Szkiełka nakrywkowe | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 sprzężone kozie przeciwciało wtórne przeciwko królikowi | Invitrogen/Life Technologies | A21070 | |
| Płyn niezamarzający | Kwas borowy Prestone | ||
| Sigma-Aldrich | B7660 | ||
| Albumina surowicy bydlęcej | Sigma-Aldrich | A7906 | |
| Źródło światła jasnego pola | Dolan-Jenner | Fiberlite 180 | |
| Chlorek wapnia | Sigma Aldrich | C4901 | |
| Kolagenaza typu IA z Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Szkiełko nakrywkowe | Fisher-Scientific | 12-545-J | |
| Dekstroza | Sigma-Aldrich | D9559 | |
| Cyfrowa kamera CCD | Hamamatsu | C8484-03G01 | |
| Kleszcze do preparacji | Fine Science Tools | 91150-20 | |
| Kleszcze preparacyjne | Fine Science Tools | 11251-20 | |
| Mikroskop preparacyjny | Leica Biosystems | Leica MZ 12 | |
| Nożyczki do preparacji | Fine Science Tools | 15025-10 | |
| Nożyczki do preparacji drobne | Fine Science Tools | 91500-09 | |
| Nożyczki do preparacji ultra drobne | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glycine | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Smar wysokopróżniowy | Dow-Corning | ||
| Kwas solny | Fisherbrand | SA-56-500 | |
| Olejek immersyjny | Fisher-Scientific | M2000 | |
| Przemysłowy zbiornik azotu | Praxair | UN1066 | |
| Szpilki do owadów | Fine Science Tools | 26002-10 | |
| Płynny klej do szwów | Braun Veterinary Cair Division | 8V0305 | Klej do szwów, którego używaliśmy w naszych eksperymentach, został nam dostarczony przez inne laboratorium. Nie jest już produkowany. Pozyskaliśmy klej do szwów histoakrylowych do wykorzystania w przyszłości od Aesculap (Ts1050071FP) |
| Chlorek magnezu | Sigma-Aldrich | M2670 | |
| Metanol | Sigma-Aldrich | 154903 | |
| Beztłuszczowe mleko w proszku | Technologia sygnalizacji komórkowej | 9999S | |
| P-87 Ściągacz do mikropipet | Sutter Instruments | ||
| Paraformaldehyd | Sigma-Aldrich | P6148 | |
| Pompa perfuzyjna | Cole-Palmer | Masterflex C/L | |
| szalka Petriego 100 x 15 mm | Fisher-Scientific | 875712 | |
| szalka Petriego 35 x 10 mm | Fisher-scientific | 875712 | |
| Bromowodorek poli-D-lizyny | Sigma-Aldrich | P1024 | MW > 300 000 |
| Chlorek potasu | Sigma-Aldrich | P9333 | |
| Fosforan potasu jednozasadowy | Sigma-Aldrich | P5379 | |
| Przeciwciała pierwszorzędowe Kanał wapniowy typu R | Alomone Labs | ACC-006 | |
| Proteaza typu XIV ze Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Ostrza skalpela | World Precision Instruments | 500240 | |
| Butelka ciśnieniowa Schot Duran | Fisher-Scientific | 09-841-006 | |
| Rurka silikonowa do nakładania kleju | Cole-Palmer | 07625-26 | |
| Płyta podstawy do krojenia | Leica Biosystems | 14046327404 | |
| Komora do krojenia | Leica Biosystems | 14046230132 | |
| Chlorek sodu | Sigma-Aldrich | S7653 | |
| Wodorotlenek | S8045 | ||
| Fosforan sodu dwuzasadowy | Sigma-Aldrich | S9763 | |
| Tetraboran sodu | Sigma-Aldrich | B3545 | |
| Sylgard 160 Zestaw elastomerów silikonowych | Dow Corning | SYLGARD® 160 | Aby przygotować, wymieszaj elastomer A i elastomer B 10:1 wagowo |
| Sylgard 184 Zestaw elastomerów silikonowych | Dow Corning | SYLGARD® 184 | Aby przygotować, wymieszaj elastomer i utwardzacz w stosunku wagowym 10:1 |
| Kleszcze pokryte teflonem | Fine Science Tools | 11626-11 | |
| Metanosulfonian trikainy | Sigma-Aldrich | A5040 | |
| Ostrza wibratome | World Precision Instruments | OSTRZA | |
| Nikon |
Bibliografia
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
