Opisujemy protokół znakowania in vivo węchowych neuronów czuciowych za pomocą elektroporacji, a następnie konfokalnego skanowania laserowego lub mikroskopii wielofotonowej w celu wizualizacji morfologii neuronów i ich rozwoju w czasie.
Artykuł metodologiczny
Układ węchowy jako model do badania wzorców wzrostu i morfologii aksonów in vivo
W tym artykule
Podsumowanie
Streszczenie
System węchowy ma niezwykłą zdolność do generowania nowych neuronów przez całe życie organizmu. Węchowe komórki macierzyste w podstawowej części nabłonka węchowego nieustannie dają początek nowym neuronom czuciowym, które rozciągają swoje aksony do opuszki węchowej, gdzie stają przed wyzwaniem integracji z istniejącymi obwodami. Ze względu na tę szczególną cechę, układ węchowy stanowi wyjątkową okazję do monitorowania okablowania aksonalnego i wskazówek oraz do badania tworzenia synaps. W tym miejscu opisujemy procedurę znakowania in vivo neuronów czuciowych i późniejszej wizualizacji aksonów w układzie węchowym larw Xenopus laevis. Aby zabarwić neurony czuciowe w narządzie węchu, stosujemy technikę elektroporacji. Elektroporacja in vivo jest uznaną techniką dostarczania dektransu sprzężonego z fluoroforem lub innych makrocząsteczek do żywych komórek. Barwione neurony czuciowe i ich procesy aksonalne mogą być następnie monitorowane u żywego zwierzęcia za pomocą konfokalnego skaningu laserowego lub mikroskopii wielofotonowej. Zmniejszając liczbę znakowanych komórek do kilku lub pojedynczych komórek na zwierzę, pojedyncze aksony mogą być śledzone w opuszce węchowej, a ich zmiany morfologiczne mogą być monitorowane przez tygodnie, przeprowadzając serię eksperymentów z obrazowaniem poklatkowym in vivo. Chociaż opisany protokół stanowi przykład znakowania i monitorowania węchowych neuronów czuciowych, można go również zastosować do innych typów komórek w obrębie układu węchowego i innych.
Wprowadzenie
Trwająca całe życie rotacja neuronów czuciowych odróżnia układ węchowy od wielu innych systemów czuciowych i neuronalnych1,2. Nowo powstałe neurony czuciowe są w sposób ciągły generowane w podstawowej części nabłonka węchowego3 i rozciągają swoje aksony do opuszki węchowej, pierwszej stacji przekaźnikowej układu węchowego4. Jednak mechanizmy komórkowe i molekularne kontrolujące tworzenie i utrzymywanie mapy węchowej są dalekie od pełnego poznania4,5.
Tutaj opisujemy protokół znakowania neuronów czuciowych narządu węchowego larwy X. laevis za pomocą elektroporacji in vivo dektransu sprzężonego z fluoroforem. Prezentowany protokół umożliwia wizualizację morfologii i łączności aksonów, śledzenie rozwoju aksonów w czasie oraz badanie mechanizmów regulujących okablowanie i prowadzenie aksonów.
Elektroporacja to sprawdzona metoda wprowadzania do komóreknaładowanych makrocząsteczek, takich jak barwniki sprzężone z dekstranem i DNA. Błona komórkowa jest przepuszczalna przez zastosowanie krótkich impulsów napięcia, a cząsteczki są elektroforetycznie dostarczane do cytozolu8. Ograniczona przestrzennie elektroporacja za pomocą mikropipety pozwala na selektywne znakowanie komórek, w tym neuronów, i została zastosowana w różnych układach neuronalnych, w tym w układzie wzrokowym X. laevis9,10.
Pokazujemy, jak elektroporowane zwierzęta mogą być używane do badania aksonalnych wzorców wzrostu i morfologii u żywych zwierząt za pomocą konfokalnego skaningu laserowego lub mikroskopii wielofotonowej. Opisana procedura pozwala na identyfikację zgrubnej topologii projekcji aksonalnych neuronów czuciowych głównego i dodatkowego układu węchowego11,12. Wykorzystując obrazowanie poklatkowe in vivo, nadaje się również do nadzorowania połączeń kłębuszkowych pojedynczych dojrzałych neuronów czuciowych oraz do monitorowania ewolucji wzorców projekcji aksonalnej niedojrzałych neuronów czuciowych12. Opisany protokół może być stosowany do badania struktury i tworzenia obwodów węchowych u nienaruszonego zwierzęcia i może być dostosowany do innych typów komórek w obrębie węchu i innych układów neuronalnych.
Protokół
UWAGA: Obchodzenie się ze zwierzętami i eksperymenty zostały przeprowadzone zgodnie z aprobatą Komitetu ds. Etyki w Eksperymentach na Zwierzętach Uniwersytetu w Getyndze.
1. Przygotowanie instrumentów i produkcja pipet
- Upewnij się, że zestaw do elektroporacji składa się z mikroskopu stereoskopowego o dużej odległości roboczej i jest wyposażony w oświetlenie fluorescencyjne oraz zestawy filtrów do zastosowanego barwnika.
- Do elektroporacji należy użyć dedykowanego elektroporatora jednoogniwowego lub ogólnego generatora impulsów kwadratowych podłączonego do oscyloskopu. Podłącz wyjścia elektroporatora do uchwytu na pipety i elektrody do kąpieli. Podłącz dodatni zacisk generatora impulsów do uchwytu mikropipety, a ujemny zacisk do elektrody kąpielowej. Upewnij się, że zarówno uchwyt pipety, jak i elektroda kąpieli zawierają srebrne druty pokryte cienką warstwą chlorku srebra.
- Zamontuj uchwyt pipety na mikromanipulatorze, aby umożliwić dokładne pozycjonowanie.
- Wytwarzanie mikropipet do elektroporacji z kapilar ze szkła borokrzemianowego z wewnętrznym włóknem.
- Użyj poziomego ściągacza do mikropipet i zastosuj zmodyfikowany protokół wytwarzania pipet do eksperymentów z zaciskiem krosowym, zgodnie z opisem Bestmana i wsp.Rozdział 13.
- Dostosuj parametry, aby uzyskać dłuższy trzpień i mniejszy otwór końcówki, co skutkuje wyższą rezystancją pipety wynoszącą około 15-20 MOhm w przypadku elektroporacji pojedynczej komórki. Rezystancja pipety powinna być mniejsza, np. 3-4 MOhm, do znakowania grup komórek.
- Zmierz rezystancję pipety bezpośrednio za pomocą dedykowanego elektroporatora jednoogniwowego lub oblicz ją za pomocą prawa Ohma po zmierzeniu przepływu prądu za pomocą oscyloskopu po zastosowaniu zdefiniowanego impulsu napięcia.
2. Przygotowanie roztworu do elektroporacji
- Rozpuścić dekstran sprzężony z fluoroforem w dzwonku żaba (98 mM NaCl, 2 mM KCl, 1 mM CaCl2, 2 mM MgCl2, 5 mM glukozy, 5 mM Na-pirogronian, 10 mM HEPES, dostosowany do pH 7,8, osmolarność wynosiła 230 mOsmol/l) przy stężeniu 3 mM. Komórki mogą nie być tak jaskrawo oznakowane, jeśli stosuje się niższe stężenia barwnika. Przygotuj roztwór podstawowy o dużej objętości i podziel go na małe porcje. Zamroź je do przechowywania (stabilne przez miesiące).
UWAGA: Dextrans są dostępne w różnych rozmiarach i różnych widmach emisji/wzbudzenia (np. Alexa 488-dekstran 10kD, Alexa 546-dekstran 10kD, Alexa 568-dekstran 10kD, Alexa 594-dekstran 10kD, TMR-dekstran 3kD). - Napełnij mikropipetę wydłużoną końcówką pipety niewielką objętością roztworu dekstranu (1-5 μl). Ostrożnie potrząśnij palcem mikropipety, aby usunąć resztki pęcherzyków powietrza z końcówki pipety.
- Zamontuj mikropipetę w uchwycie na pipety. Upewnij się, że srebrny drut wewnątrz pipety styka się z roztworem barwnika.
3. Wybór larw X. laevis
- Do eksperymentów użyj larw albinosów X. laevis. Zwierzęta typu dzikiego posiadają melanofory wypełnione pigmentem, które wykazują emisję autofluorescencji podczas obrazowania konfokalnego/wielofotonowego i dlatego nie nadają się do opisywanych eksperymentów.
- Etap premetamorfotycznych kijanek po Nieuwkoop i Faber14. Wybierz kijanki z etapów 45-53 do eksperymentów.
4. Elektroporacja Dextrans sprzężonego z fluoroforem
- Umieść mały kawałek tkanki na szalce Petriego i zalej go niewielką ilością wody zawierającej 0,02% trikainy (metanosulfonian etylu 3-aminobenzoesanu, dostosowany do pH 7).
- Znieczulenie kijanek należy zalać wodą zawierającą 0,02% trikainy. Po kilku minutach zwierzęta przestają się ruszać. Potwierdź prawidłowe znieczulenie, dotykając kijanek. Powinny nie odpowiadać.
- Ostrożnie przenieś kijankę ze środka znieczulającego na pokrytą tkanką szalkę Petriego.
- Upewnij się, że elektroda kąpieli zamyka obwód elektroporacji. Upewnij się, że elektroda styka się z mokrą tkanką; Bezpośredni kontakt z kijanką nie jest konieczny.
- Umieść końcówkę mikropipety blisko narządu węchu za pomocą mikromanipulatora.
- Wbić końcówką pipety w skórę pokrywającą narząd węchowy i ostrożnie wsunąć końcówkę do centralnie położonej warstwy neuronu czuciowego głównego nabłonka węchowego lub nabłonka lemieszowo-nosowego.
- Wyzwalaj dodatnie impulsy napięcia kwadratowego, aby przenieść barwnik do neuronów czuciowych. Zastosuj pojedynczy impuls napięciowy (np. 25 V, długość impulsu 25 ms) lub ciągi wielu impulsów (np. 50 V, długość impulsu 300 μs, czas trwania ciągu 400 ms przy 200 Hz).
UWAGA: Określ optymalne parametry impulsu napięcia dla pożądanego zakresu etykietowania. Zmniejsz amplitudę impulsu napięcia, czas trwania i liczbę powtórzeń, aby zmniejszyć liczbę znakowanych komórek. Zastosuj amplitudę impulsu o wyższym napięciu, czas trwania i liczbę impulsów, aby uzyskać bardziej rozpowszechnione etykietowanie. - Wizualizacja udanego wytłaczania barwnika i elektroporacji poprzez wyzwalanie impulsów za pomocą fluorescencyjnego oświetlenia mikroskopu stereoskopowego. Barwnik szybko rozprzestrzenia się w ciele komórki i dendrycie po udanej elektroporacji.
- Powtórz kroki 4.5-4.9 dla drugiego narządu węchowego kijanki.
- Przenieś kijankę do zlewki wypełnionej świeżą wodą w celu odzyskania. Po ok. 5 minutach kijanki budzą się ze znieczulenia i rozpoczynają normalne ruchy pływackie.
- Po 24 godzinach elektroporowany barwnik rozprzestrzenia się w neuronach czuciowych i ostatecznie dociera do opuszki węchowej poprzez transport aksonalny.
5. Montaż zwierząt do wizualizacji in vivo komórek i procesów aksonalnych
- Znieczulenie kijanek należy zalać wodą zawierającą 0,02% trikainy.
- Ostrożnie przenieś kijanki do komory obrazowania, np. małej płytki Petriego pokrytej gumą silikonową z wgłębieniem wielkości kijanki.
- Wytnij mały prostokąt w pasek Parafilm. Przykryj kijankę Parafilmem, pozostawiając przednią kresomózgowiec odsłoniętą przez wycięte okno. Przymocuj Parafilm za pomocą igieł do naczynia, nie uszkadzając kijanki.
- Upewnij się, że kijanka jest zanurzona w wystarczającej ilości wody zawierającej 0,02% tricainy.
- Zamontuj komorę obrazowania na stoliku pionowego mikroskopu wielofotonowego lub mikroskopu konfokalnego.
- Uzyskaj trójwymiarowy stos obrazów opuszki węchowej. Upewnij się, że procedura obrazowania jest jak najkrótsza i nie przekracza 10-15 minut.
- Włóż kijankę do normalnej wody w osobnym zbiorniku i zapobiegaj ekspozycji na światło. Po 5 minutach kijanka budzi się z narkozy.
- Powtarzaj kroki 5.1-5.7 po określonych odstępach czasu, np. codziennie.
6. Montaż zwierząt do wizualizacji ex vivo komórek i procesów aksonalnych
- Alternatywnie do sekcji 5 protokołu, użyj wyciętego preparatu mózgowego do wizualizacji oznaczonych neuronów czuciowych.
- Znieczulij i zabij kijankę przez przecięcie mózgu przy przejściu do rdzenia kręgowego. Wyciąć blok tkanki zawierający narządy węchowe, nerwy węchowe i przednie kresomózgowie.
- Przenieś blok tkankowy do roztworu dzwonka żaby i usuń tkankę łączną cienkimi nożyczkami, aby odsłonić brzuszną stronę mózgu.
- Przenieś blok tkanki do komory obrazowania i przymocuj go platynową ramką nawleczoną nylonowymi nitkami.
- Zamontuj komorę obrazowania na stoliku mikroskopu konfokalnego/wielofotonowego.
- Uzyskaj trójwymiarowy stos obrazów opuszki węchowej.
7. Przetwarzanie obrazów i ocena danych
- Zoptymalizuj i zastosuj nielokalne metody filtrowania, aby poprawić jakość obrazu i wizualizację struktur neuronalnych, zgodnie z opisem Coupé, P. et al. 15.
UWAGA: Dane z eksperymentów obrazowych w głębszych warstwach tkanek żywych próbek są często zaszumione. - Utwórz projekcje maksymalnej intensywności stosów obrazów w celu uzyskania przeglądu.
- W przypadku eksperymentów z obrazowaniem poklatkowym zestawy danych przesiewowych dla pojedynczych, jednoznacznie identyfikowalnych aksonów neuronów czuciowych.
- Rekonstrukcja morfologii komórkowej za pomocą wspomaganego oprogramowania śledzenia procesów neuronalnych, jak opisano przez Peng i wsp.Lokal mieszkalny 16.
Wyniki
Opisany protokół można z powodzeniem zastosować do elektroporacji i wizualizacji in vivo wypustek aksonalnych neuronów sensorycznych układu węchowego u znieczulonych X. laevis, wykorzystując konfokalną mikroskopię laserową lub mikroskopię wielofotonową (Rysunek 1).
Elektroporacja pozwala na wprowadzenie i szybkie rozprzestrzenienie się wewnątrz komórek narządu węchowego dekstranów sprzężonych z fluoroforami. Pomocne jest zastosowanie oświetlenia fluorescencyjnego w celu weryfikacji prawidłowego znakowania po wywołaniu impulsów napięcia. W zależności od parametrów elektroporacji, np. oporu pipety, znakowane są grupy komórek (Rysunek 2A, B) lub pojedyncze komórki (Rysunek 2C) narządu węchowego. Aksony znakowanych neuronów sensorycznych można uwidocznić w nerwie węchowym (Rysunek 2D), a wypustki aksonalne można zaobserwować również w opuszce węchowej, zazwyczaj 24 h po udanej elektroporacji (Rysunek 3). Elektroporacja grup neuronów sensorycznych umożliwia wizualizację ogólnych wzorców połączeń w opuszce węchowej (Rysunek 3A). Elektroporację pojedynczych komórek można zastosować do badania indywidualnych wzorców projekcji aksonalnych, bifurkacji aksonów oraz połączeń ze strukturami kłębkowymi w opuszce węchowej (Rysunek 3C-E).
Przezroczyste kijanki albinosy X. laevis umożliwiają obrazowanie konfokalne lub wielofotonowe in vivo oznakowanych neuronów sensorycznych w nienaruszonym mózgu znieczulonej kijanki. Rozwój wzorców wzrostu aksonów można śledzić przez kilka dni lub tygodni poprzez wielokrotną wizualizację in vivo tego samego oznakowanego neuronu sensorycznego (Rycina 4). W zależności od stopnia dojrzałości neuronu sensorycznego w momencie elektroporacji, wzorzec aksonów w opuszce węchowej może się znacznie różnić. Dojrzałe neurony posiadają już rozbudowane odgałęzienia aksonalne z obszarami kępek połączonymi z kłębkami. Wzorzec wzrostu aksonów w dojrzałych neuronach jest dość stabilny, jednak można zaobserwować wydłużanie się odgałęzień aksonów oraz doprecyzowanie kępek kłębkowych (Rycina 4A-E). Neurony sensoryczne można obserwować in vivo przez dłuższe okresy czasu, np. dłuższe niż trzy tygodnie (Rycina 4F-I). Z kolei aksony niedojrzałych neuronów są wciąż w procesie początkowego wzrostu, nie posiadają kępek arboryzacji i nie połączyły się jeszcze ze swoimi docelowymi kłębkami. Protokół eksperymentalny pozwala śledzić rozwój tych neuronów podczas dojrzewania, np. wydłużanie aksonów, bifurkacje i tworzenie się kępek arboryzacji (Rycina 4J-L). Więcej przykładów można znaleźć również u Hassenklövera i Manziniego12.
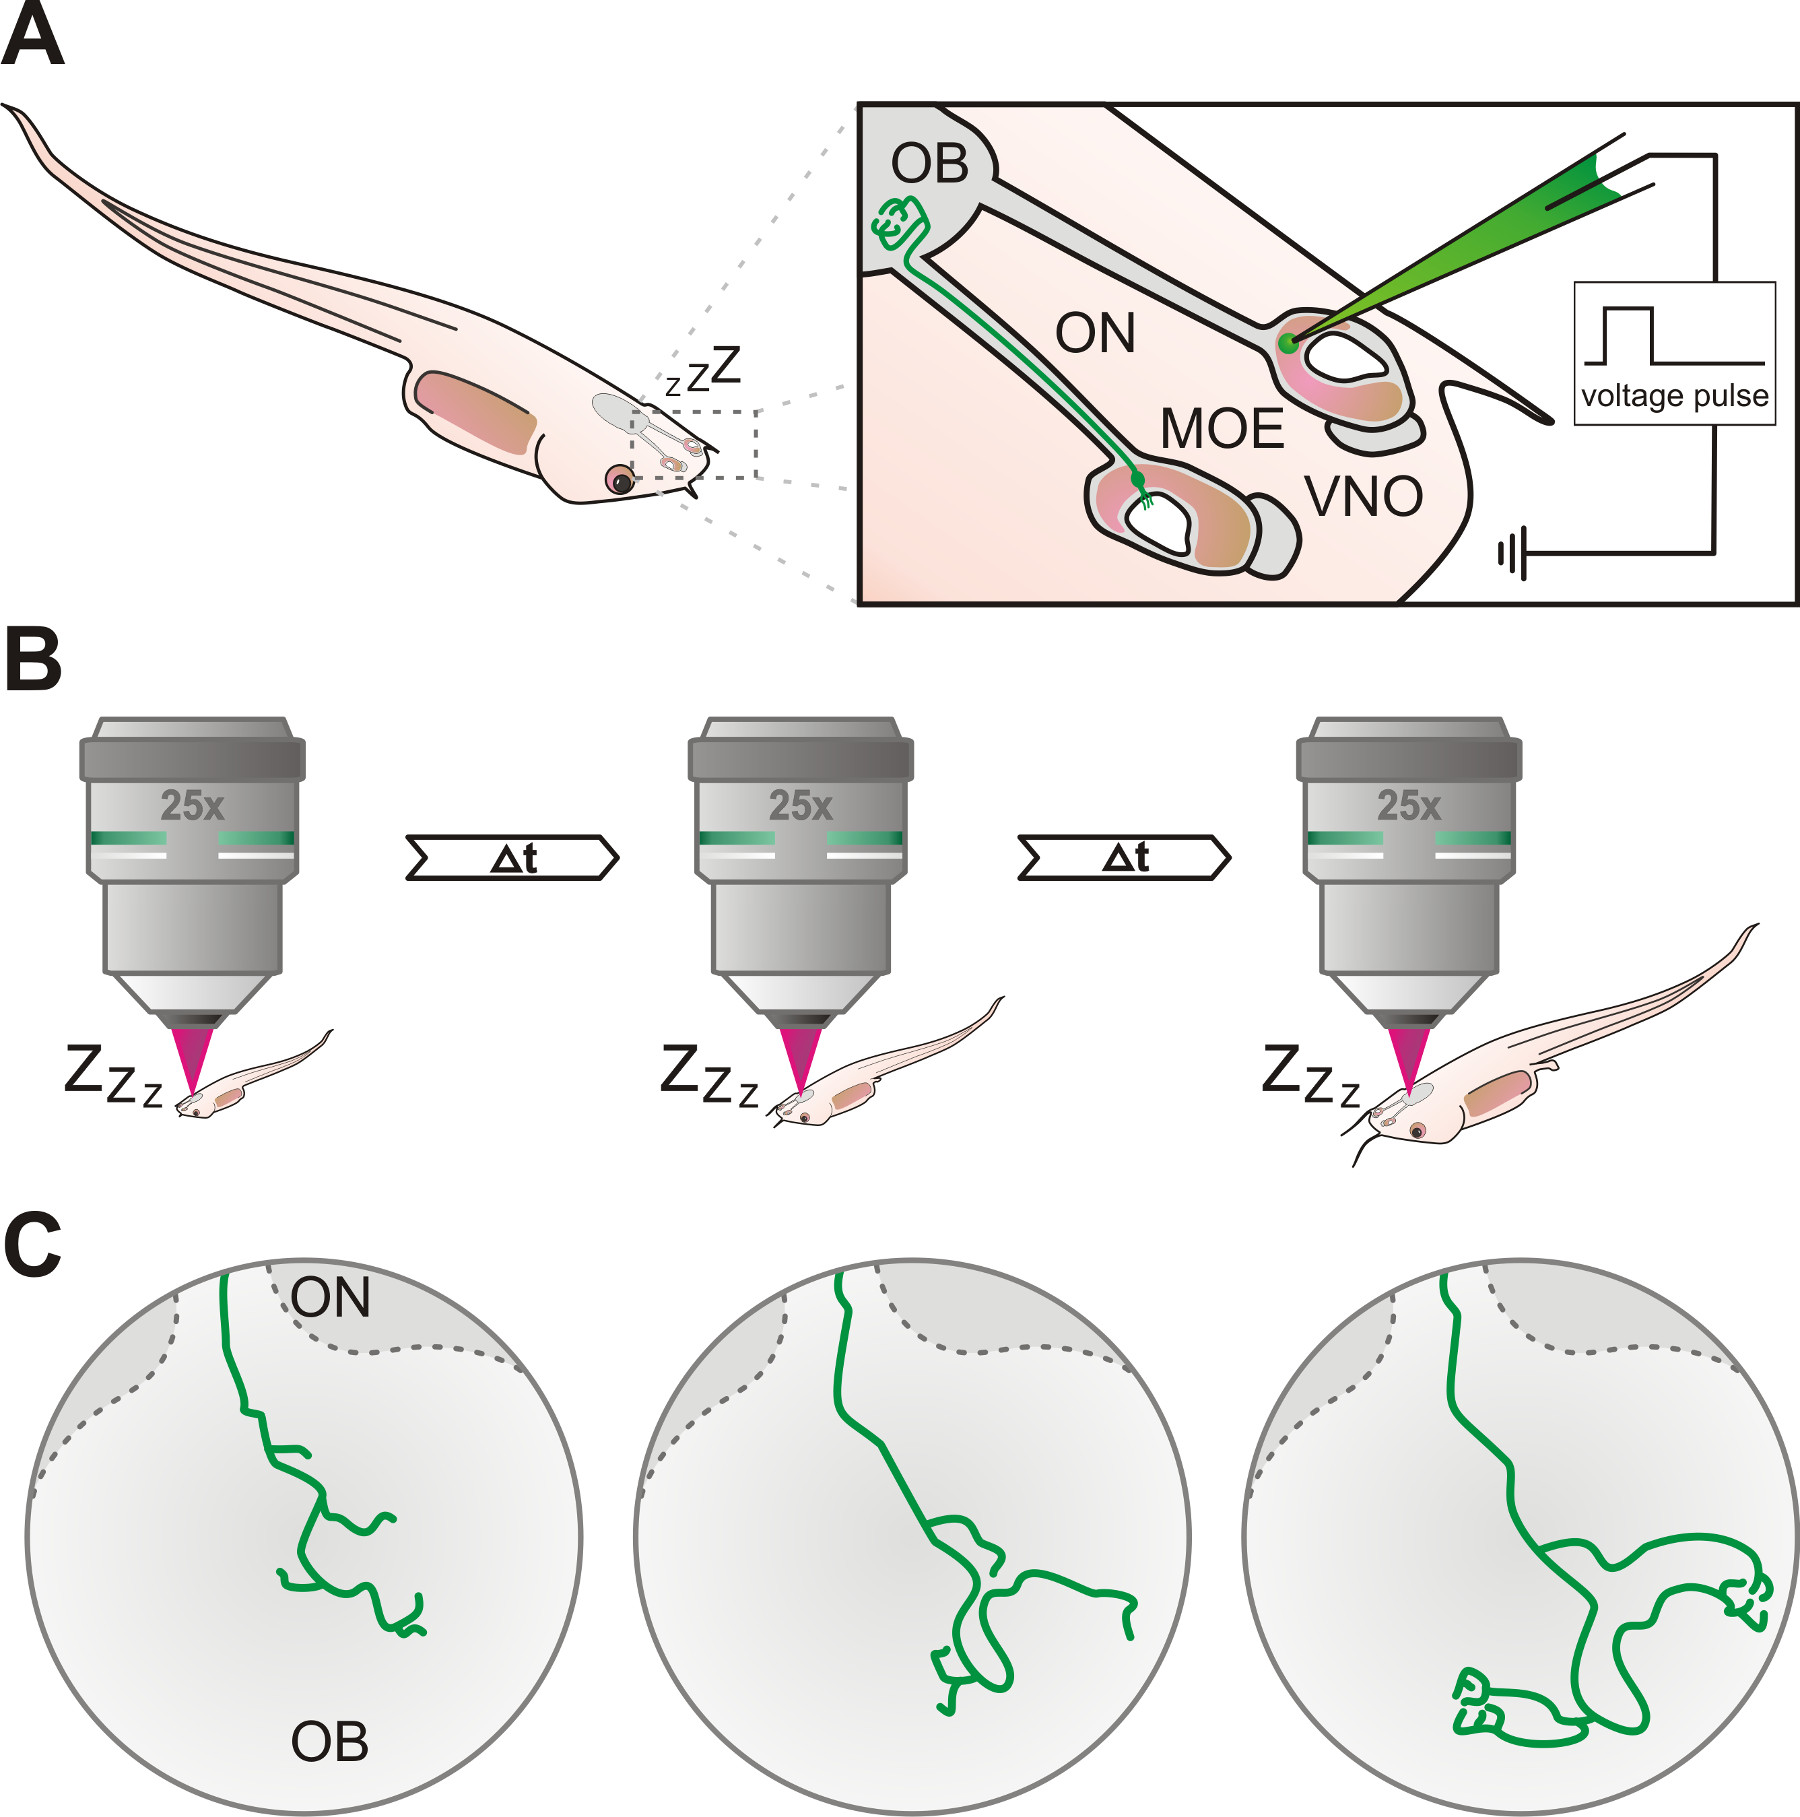
Rycina 1. Schematyczny przegląd protokołu eksperymentalnego. (A) Neurony sensoryczne w głównym nabłonku węchowym (MOE) lub narządzie jamistym (VNO) organu węchowego znieczulonych larw X. laevis są znakowane poprzez elektroporację przy użyciu szklanej pipety wypełnionej roztworem fluorescencyjnego dekstranu. Aksony znakowanych neuronów można śledzić poprzez nerw węchowy (ON), aż dotrą one do opuszki węchowej (OB). (B) Kijanka zostaje znieczulona, a znakowane neurony są wielokrotnie badane za pomocą mikroskopu konfokalnego lub wielofotonowego w określonych odstępach czasu. (C) Stopniowy rozwój wzorców wzrostu aksonalnego znakowanych komórek można śledzić w przedziałach czasowych od kilku dni do kilku tygodni.

Rycina 2. Elektroporacja neuronów sensorycznych w narządzie węchowym. (A) Elektroporacja przy użyciu pipet o niskiej oporności prowadzi do znakowania wielu komórek w narządzie węchowym. W tym reprezentatywnym przykładzie zabarwiono wiele neuronów receptorowych węchowych (ORN, wypełnione groty strzałek) oraz dwie kolumnowe komórki podporowe (SC, gwiazdki). Linie przerywane wyznaczają granice nabłonka węchowego (OE). (B) Optymalizacja parametrów elektroporacji, np. zwiększenie oporności pipety, ogranicza liczbę znakowanych komórek. W tym przykładzie po elektroporacji zabarwiono pojedynczy neuron sensoryczny (wypełnione groty strzałek) i jedną sąsiednią komórkę podporową (gwiazdka). Zwróć uwagę na pojedynczy akson opuszczający nabłonek węchowy (otwarte groty strzałek). (C) Pomyślna elektroporacja pojedynczej komórki prowadzi do wyłącznego znakowania pojedynczego neuronu sensorycznego (wypełniony grot strzałki) i jego połączonego aksonu (otwarte groty strzałek) w nabłonku węchowym. (D) Śledzenie pojedynczego znakowanego aksonu (otwarte groty strzałek) jest możliwe poprzez nerw węchowy (ON) aż do opuszki węchowej.
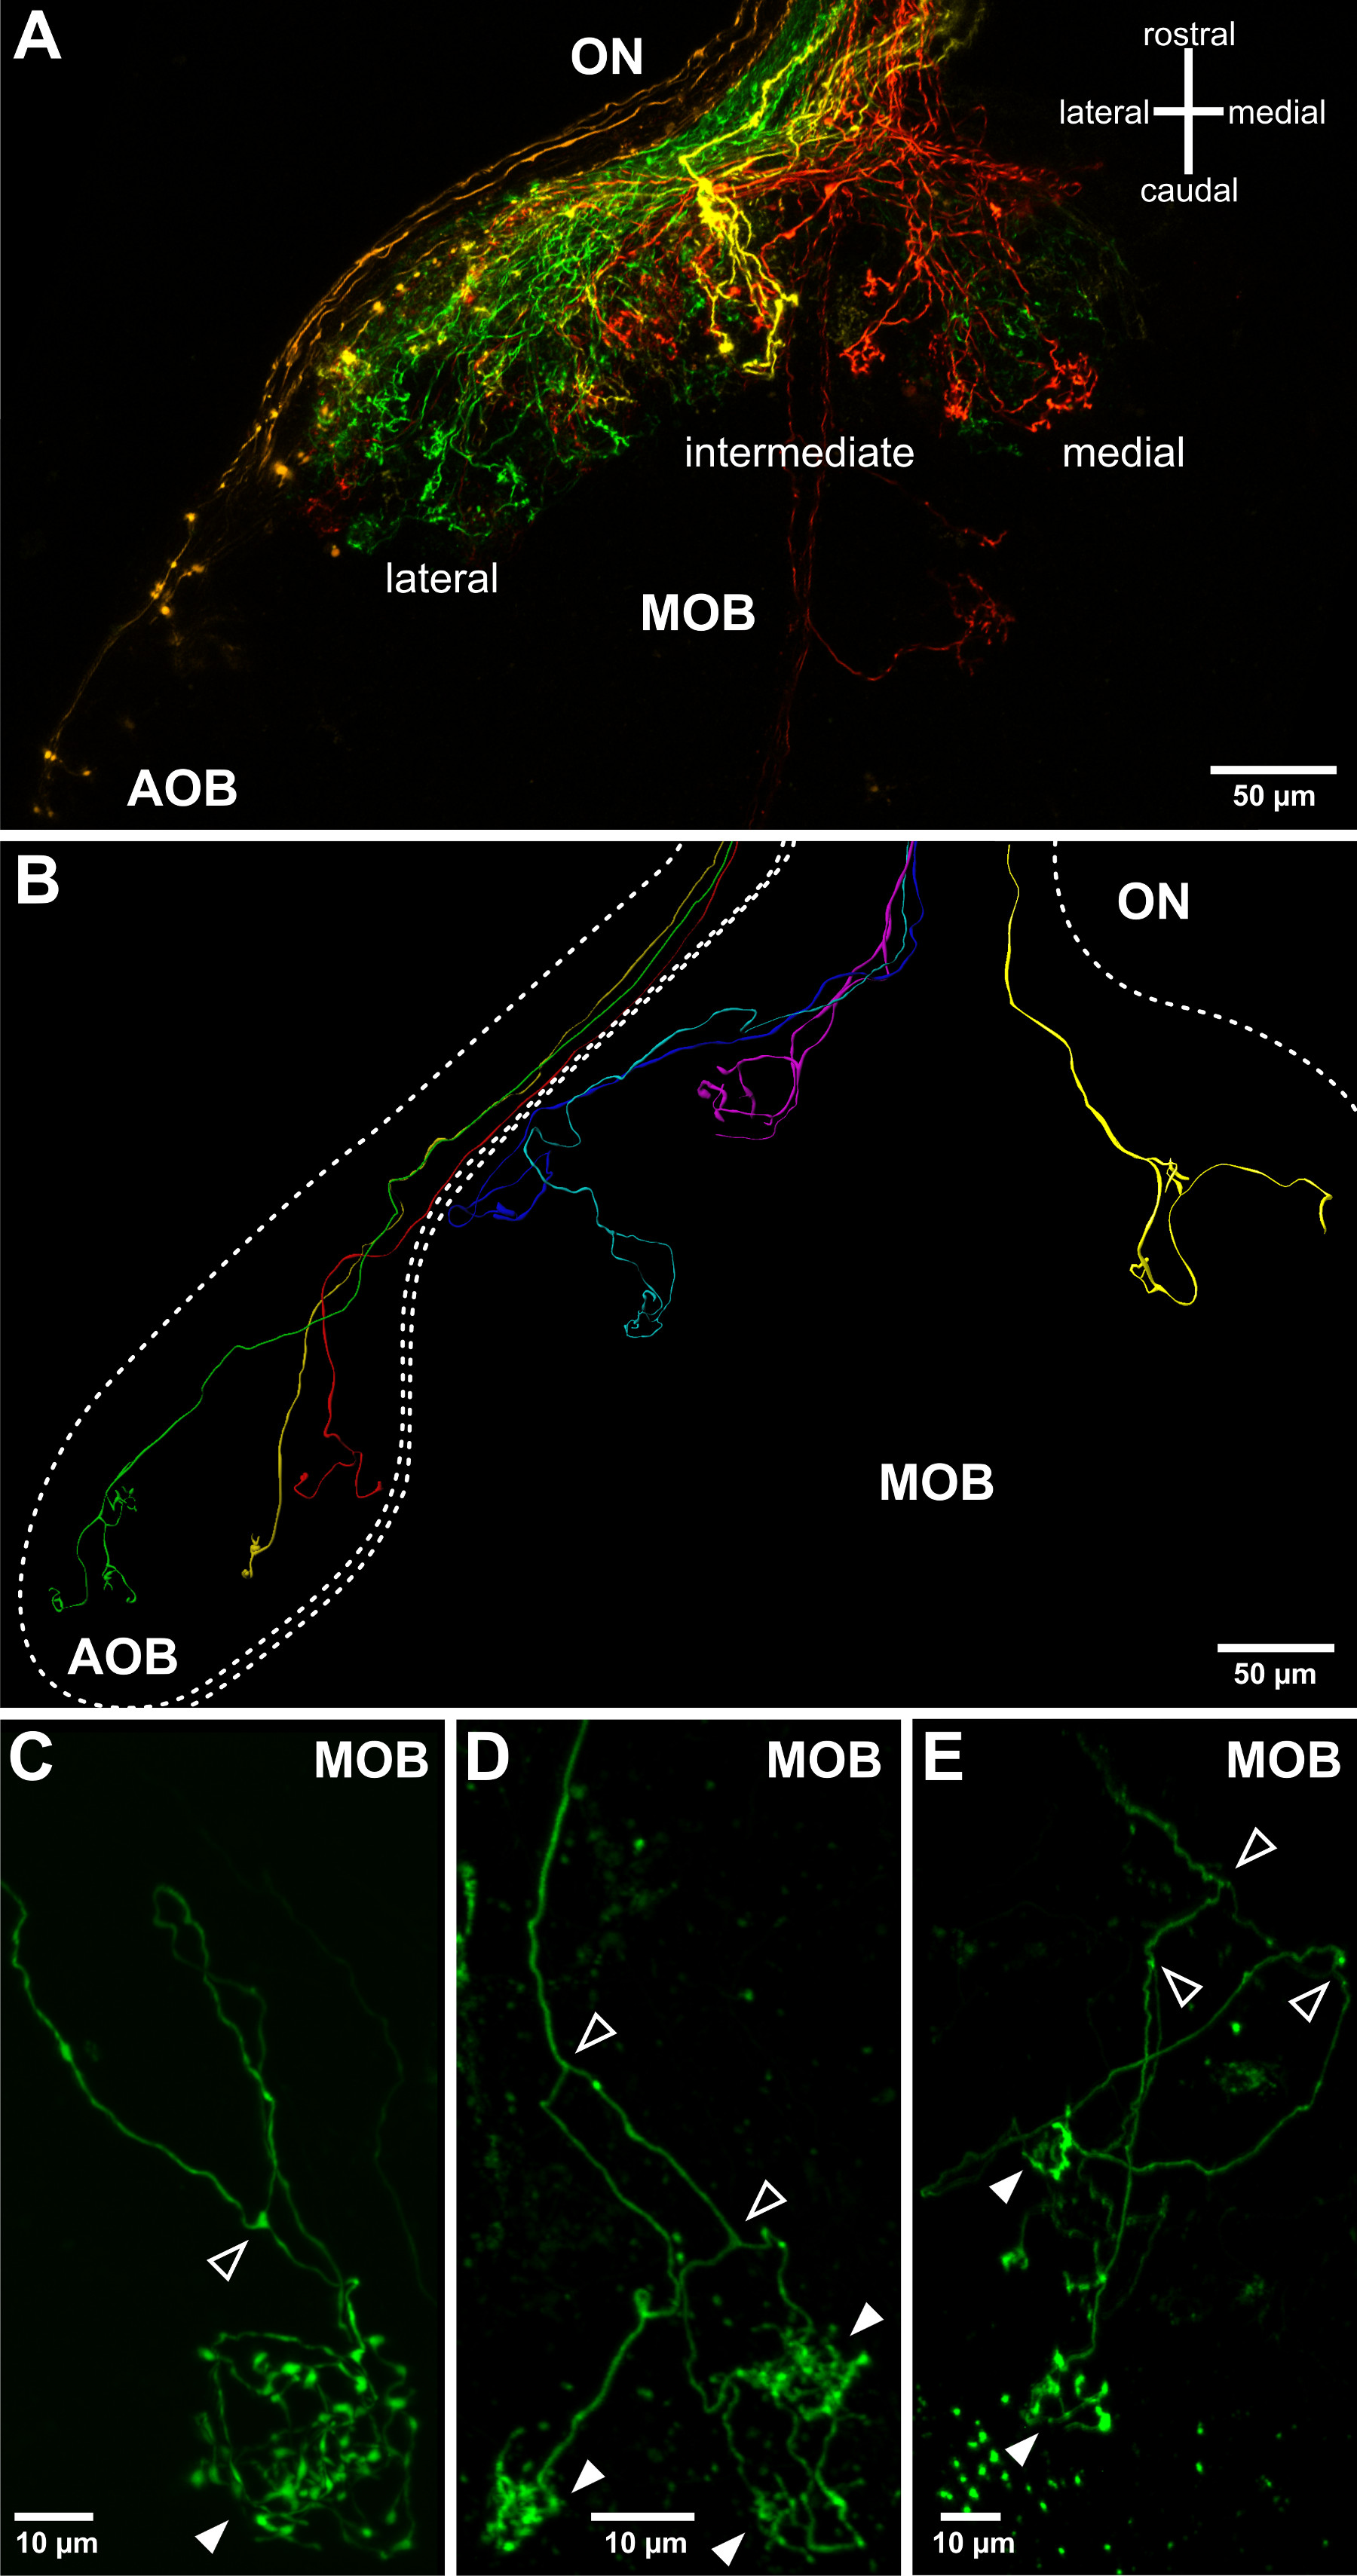
Rysunek 3. Wizualizacja projekcji aksonów węchowych w wypreparowanej opuszce węchowej. (A) Ogólną topologię projekcji aksonalnych neuronów sensorycznych w opuszce węchowej można zwizualizować przy użyciu pipet do elektroporacji o niskiej oporności. Przedstawiono jedną półkulę opuszki węchowej oraz powiązany z nią nerw węchowy (ON). Cztery dekstrany sprzężone z różnymi fluoroforami zostały wprowadzone metodą elektroporacji w czterech oddalonych od siebie miejscach narządu węchowego: bocznej (zielony), pośredniej (żółty), przyśrodkowej MOE (czerwony) i VNO (pomarańczowy). Pozwala to na wizualizację dodatkowej opuszki węchowej (AOB) oraz trzech głównych pól projekcyjnych głównej opuszki węchowej (MOB). (B) Różne wzorce wzrostu aksonów pojedynczych neuronów węchowych sensorycznych nałożone na strukturę opuszki węchowej. Przedstawiono połączone rekonstrukcje trójwymiarowe wielu barwień pojedynczych komórek pochodzących z różnych okazów larwalnych. (C-E) Przykłady pojedynczych aksonów węchowych projektujących do opuszki węchowej i tworzących kępkowate arboryzacje/synapsy w sferycznych kłębkach (zamalowane groty strzałek). Należy zauważyć, że u X. laevis aksony węchowe regularnie rozwidlają się (puste groty strzałek) przed połączeniem z jednym, dwoma lub wieloma kłębkami (zamalowane groty strzałek, patrz również Hassenklöver i Manzini12).
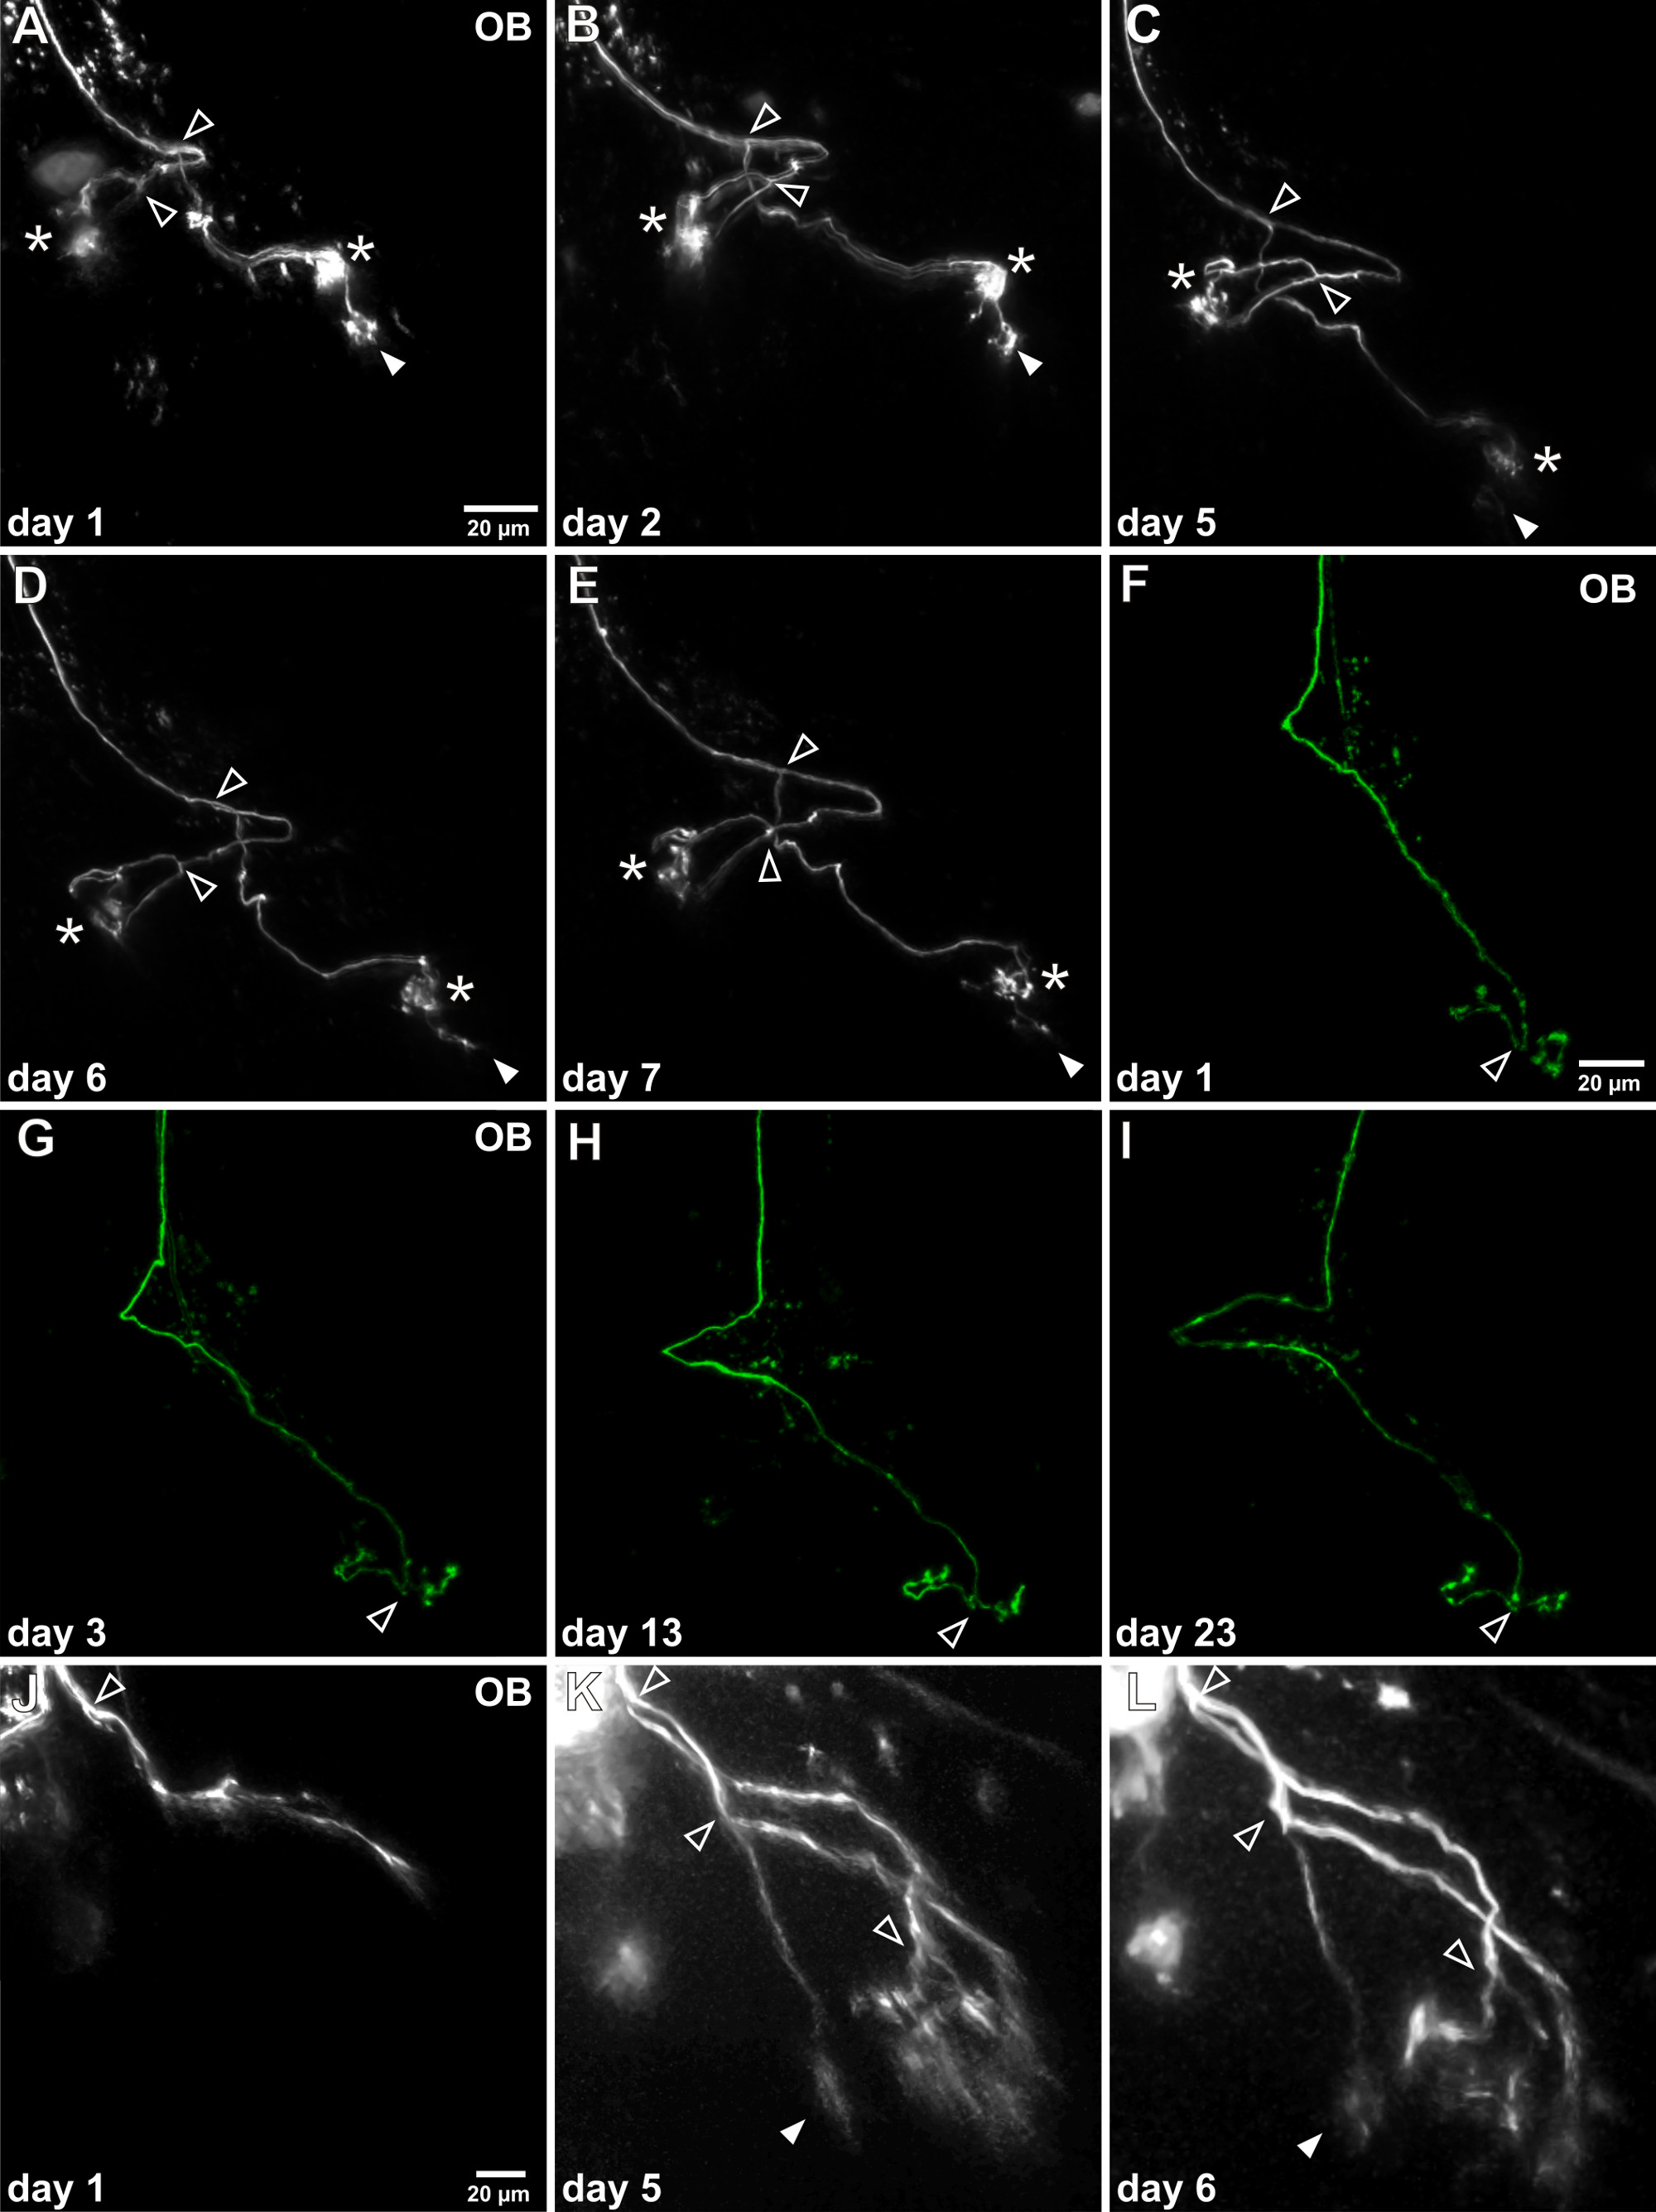
Rysunek 4. Obrazowanie time-lapse in vivo pojedynczych aksonów neuronów węchowych. (A-E) Po pomyślnej elektroporacji pojedynczej komórki znakowany akson może być wielokrotnie wizualizowany w opłocie węchowym (OB). Ten przykład przedstawia pojedynczy akson, który był badany przez jeden tydzień. Ogólna morfologia nie zmienia się znacząco i można zidentyfikować dwa główne punkty rozgałęzień (otwarte groty strzałek). Należy zauważyć, że w czasie trwania obserwacji jeden kępka kłębkowa ulega ciągłej redukcji (wypełniony grot strzałki), podczas gdy dwie pozostałe kępki kłębkowe pozostają stabilne (asteryski). (F-I) Ten reprezentatywny przykład pokazuje wykonalność długoterminowych obserwacji, ponieważ ten konkretny akson był badany przez ponad trzy tygodnie. Nie wykryto żadnych wyraźnych zmian w jego wzorcu wzrostu. (J-L) Przedstawiono przykład niedojrzałego aksonu sensorycznego w procesie wzrostu. Nie połączył się on jeszcze z kłębkami, a charakterystyczne kępki kłębkowe nie są obecne. Po 5 dniach odgałęzienia aksonalne uległy wydłużeniu, akson rozwidlał się wielokrotnie i utworzono drobne arboryzacje.
Dyskusja
Opisana tutaj procedura eksperymentalna pozwala na znakowanie neuronów czuciowych narządu węchowego larwy X. laevis poprzez elektroporację dektransu sprzężonego z fluoroforem, a następnie wizualizację wzrostu aksonów czuciowych u żywego zwierzęcia. Poprzez zmianę parametrów elektroporacji in vivo możliwe jest kontrolowanie liczby znakowanych neuronów czuciowych. W ten sposób możliwe jest oznaczanie dużych grup neuronów nabłonka czuciowego, bardzo niewielu, a nawet pojedynczych komórek.
Aby zapewnić pożądany zakres znakowania neuronów, należy zachować szczególną ostrożność w odniesieniu do charakterystyki mikropipet i impulsów elektroporacji. Wyższe rezystancje pipet oraz zmniejszenie amplitudy impulsów napięciowych, czasu trwania i liczby powtórzeń może zmniejszyć liczbę znakowanych komórek, podczas gdy zmniejszenie rezystancji pipet i wyższa amplituda impulsów napięciowych, czas trwania i liczba impulsów mogą prowadzić do powszechniejszego etykietowania. Zastosowanie fluorescencyjnego dekstransu do elektroporacji zapewnia natychmiastową wizualną informację zwrotną, jeśli zastosowane ustawienia są odpowiednie. Należy uważać, ponieważ użycie parametrów amplitudy, czasu trwania i liczby impulsów, które przekraczają wartości podane w protokole, może potencjalnie prowadzić do uszkodzenia komórki, a nawet śmierci komórki17. Zatkane lub złamane końcówki mikropipet mogą również utrudniać skuteczną elektroporację.
Elektroporacja in vivo w narządzie węchowym X. laevis jest ograniczona do stadiów larwalnych, ponieważ skóra żab po metamorfozie jest twardsza i nie można jej łatwo przeniknąć za pomocą mikropipety. Wizualizacja in vivo procesów neuronalnych może być utrudniona przez rozpraszanie światła wzbudzającego/emisyjnego w głębszych obszarach mózgu lub przez naczynia krwionośne. Problem ten staje się szczególnie widoczny w wyższych stadiach larwalnych ze względu na większy mózg i może prowadzić do hałaśliwych sygnałów, co utrudnia wyraźną identyfikację drobnych wyrostków aksonalnych.
Przedstawiony protokół pozwala na wizualizację neuronów czuciowych w nienaruszonym układzie węchowym bez preparowania zwierzęcia, uszkadzania komórek podczas znakowania, przygotowywania wycinków tkanek lub utrwalania tkanki w razie potrzeby dla metod alternatywnych, takich jak znakowanie w eksperymentach z klamrą krosową dla całych komórek18. Łącząc znakowanie kilku lub pojedynczych neuronów czuciowych z obrazowaniem poklatkowym in vivo , możliwe jest uwidocznienie połączeń kłębuszkowych pojedynczych dojrzałych neuronów czuciowych w długich odstępach czasu. W ten sposób możliwe jest również monitorowanie rozwoju wzorców projekcji aksonalnej niedojrzałych neuronów czuciowych przez kilka tygodni. Ta ostatnia opcja jest szczególnie interesująca, ponieważ umożliwia monitorowanie wzorców wzrostu pojedynczych aksonów u żywego zwierzęcia. Otwiera to możliwość zbadania mechanizmów komórkowych i molekularnych, które kontrolują naprowadzanie aksonów i odnajdywanie ścieżki. Wykazano, że kilka czynników, w tym ekspresja receptora zapachowego, różne cząsteczki kierujące aksonami oraz indukowana/spontaniczna aktywność neuronów czuciowych wywołana przez zapach, reguluje docelowe znajdowanie aksonów neuronów czuciowych4,5.
Zastosowanie protokołu nie ogranicza się do węchowych neuronów czuciowych, ale może być również stosowane do badania innych typów komórek, np. komórek macierzystych/progenitorowych stref neurogennych rozwijającego się mózgu lub komórek mitralnych opuszki węchowej. Ponadto zademonstrowana technika może być również stosowana w połączeniu z wrażliwym na wapń dekstransem lub wstrzykiwanymi przepuszczalnymi przez błonę barwnikami wapniowymi w celu uzyskania funkcjonalnych informacji o znakowanym neuronie i/lub połączonych obwodach7,19. Dostępność szerokiej gamy fluoroforów sprzężonych z dektransem pozwala na znakowanie wielu pojedynczych komórek lub populacji o różnych kolorach. Również roztwór plazmidowego DNA, na przykład kodujący białka fluorescencyjne, nadaje się do elektroporacji i może jeszcze bardziej zwiększyć wszechstronność i użyteczność tej techniki6. Protokół może być dodatkowo ulepszony, aby umożliwić połączoną elektroporację dektransu i DNA lub naładowanych morfolinosów w celu manipulowania ekspresją genów13,17.
Opisana metoda z pewnością stanowi nowe narzędzie do badania złożonych i wciąż nie do końca poznanych procesów regulujących przewodnictwo aksonalne w układzie węchowym kręgowców.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez DFG Schwerpunktprogramm 1392 (projekt MA 4113/2-2), klaster doskonałości i DFG Research Center Nanoscale Microscopy and Molecular Physiology of the Brain (projekt B1-9) oraz niemieckie Ministerstwo Badań i Edukacji (BMBF; projekt 1364480).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| SZX16 | Olympus | Mikroskop stereoskopowy z oświetleniem fluorescencyjnym | |
| Axon Axoporator 800A | molekularne | Elektroporator jednoogniwowy | |
| ELP-01D | npi elektroniczny | Elektroporator | |
| MMJ | Mä RZHÄ użytkownik Wetzlar | Ręczny mikromanipulator | |
| P-1000 | Sutter | Poziomy ściągacz do mikropipet | |
| G150F-4 | Warner Instruments | Szklane kapilary do elektroporacji produkcji pipet; wewnętrzny filament ułatwia zasypywanie Alexa | |
| 488-dekstran 10 kD | Life Technologies | D22910 | |
| Alexa 546-dekstran 10 kD | Life Technologies | D22911 | |
| Alexa 568-dekstran 10 kD | Life Technologies | D22912 | |
| Alexa 594-dekstran 10 kD | Life Technologies | D22913 | |
| TMR-dekstran 3 kD (mikro-Ruby) | Life Technologies | D7162 | |
| Końcówki do pipet do mikroładowarek | Eppendorf | 930001007 | |
| Trikaine (metanosulfonian etylu 3-aminobenzoesanu) | Sigma-Aldrich | E10521 | Znieczulenie; używać rękawic |
| Mikroskop wielofotonowy | A1-MP | Nikon | |
| LSM 780 | Mikroskop konfokalny | Zeiss | |
| Imaris | Bitplane | Alternatywne oprogramowanie do śledzenia neuronów |
Bibliografia
- Huard, J. M., Youngentob, S. L., Goldstein, B. J., Luskin, M. B., Schwob, J. E. Adult olfactory epithelium contains multipotent progenitors that give rise to neurons and non-neural cells. J. Comp. Neurol. 400 (4), 486-4810 (1998).
- Schwob, J. E. Neural regeneration and the peripheral olfactory system. Anat. Rec. 269 (1), 33-49 (2002).
- Leung, C. T., Coulombe, P. A., Reed, R. R. Contribution of olfactory neural stem cells to tissue maintenance and regeneration. Nat. Neurosci. 10 (6), 72-726 (2007).
- Lodovichi, C., Belluscio, L. Odorant receptors in the formation of the olfactory bulb circuitry. Physiology (Bethesda. 27 (4), 212-2110 (2012).
- Mori, K., Sakano, H. How is the olfactory map formed and interpreted in the mammalian brain). Annu. Rev. Neurosci. 34, 467-499 (2011).
- De Vry, J., et al. In vivo electroporation of the central nervous system: a non-viral approach for targeted gene delivery. Prog. Neurobiol. 92 (3), 227-244 (2010).
- Hovis, K. R., Padmanabhan, K., Urban, N. N. A simple method of in vitro electroporation allows visualization, recording, and calcium imaging of local neuronal circuits. J. Neurosci. Methods. 191 (1), 1-10 (2010).
- Chen, C., Smye, S. W., Robinson, M. P., Evans, J. A. Membrane electroporation theories: a review. Med. Biol. Eng. Comput. 44 (1-2), 5-14 (2006).
- Haas, K., Jensen, K., Sin, W. C., Foa, L., Cline, H. T. Targeted electroporation in Xenopus tadpoles in vivo--from single cells to the entire brain. Differentiation. 70 (4-5), 148-154 (2002).
- Hewapathirane, D. S., Haas, K. Single cell electroporation in vivo within the intact developing brain. J. Vis. Exp. (17), (2008).
- Gliem, S., et al. Bimodal processing of olfactory information in an amphibian nose: odor responses segregate into a medial and a lateral stream. Cell. Mol. Life Sci. 70 (11), 1965-1984 (2013).
- Hassenklöver, T., Manzini, I. Olfactory wiring logic in amphibians challenges the basic assumptions of the unbranched axon concept. J. Neurosci. 33 (44), 17252-1710 (2013).
- Bestman, J. E., Ewald, R. C., Chiu, S. -L., Cline, H. T. In vivo single-cell electroporation for transfer of DNA and macromolecules. Nat. Protoc. 1 (3), 1272-1210 (2006).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis. Nieuwkoop, P. D., Faber, J. , Garland Publishing, Inc. New York and London. (1994).
- Coupé, P., Munz, M., Manjón, J. V., Ruthazer, E. S., Collins, D. L. A CANDLE for a deeper in vivo insight. Med. Image Anal. 16 (4), 849-864 (2012).
- Peng, H., Ruan, Z., Long, F., Simpson, J. H., Myers, E. W. V3D enables real-time 3D visualization and quantitative analysis of large-scale biological image data sets. Nat. Biotechnol. 28 (4), 348-353 (2010).
- Falk, J., et al. Electroporation of cDNA/Morpholinos to targeted areas of embryonic CNS in Xenopus. BMC Dev. Biol. 7 (107), (2007).
- Nezlin, L. P., Schild, D. Individual olfactory sensory neurons project into more than one glomerulus in Xenopus laevis tadpole olfactory bulb. J. Comp. Neurol. 481 (3), 233-239 (2005).
- Nagayama, S., et al. In vivo simultaneous tracing and Ca2+ imaging of local neuronal circuits. Neuron. 53 (6), 789-803 (2007).
Przedruki i uprawnienia
