Celem protokołu opisanego w tym artykule jest wywołanie u szczurów zachowań podobnych do kompulsywnych w celu zbadania zaburzeń obsesyjno-kompulsywnych (OCD). To zachowanie jest przyspieszane przez tłumienie sygnału wskazującego, że reakcja naciśnięcia dźwigni była skuteczna w produkcji żywności.
Artykuł metodologiczny
Tłumienie sygnału jako szczurzy model zaburzenia obsesyjno-kompulsywnego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
W szczurzym modelu tłumienia sygnału zaburzenia obsesyjno-kompulsywnego (OCD), po naciśnięciu dźwigni na jedzenie następuje prezentacja bodźca złożonego, który służy jako sygnał zwrotny. To sprzężenie zwrotne jest później tłumione przez powtarzające się prezentacje bodźca bez jedzenia (bez emitowania przez szczura reakcji naciśnięcia dźwigni). W kolejnym etapie ocenia się naciśnięcie dźwigni w warunkach wygaszania (tj. nie jest dostarczany pokarm). Na tym etapie szczury wykazują dwa rodzaje naciśnięć dźwigni, te, po których następuje próba odebrania nagrody, i te, które tego nie robią. Te ostatnie są miarą kompulsywnego zachowania w modelu. Procedura kontrolna, w której szczury nie doświadczają tłumienia sygnału zwrotnego, służy do rozróżnienia skutków tłumienia sygnału i jego wygaszania. Model tłumienia sygnału jest wysoce zweryfikowanym modelem OCD i rozróżnia zachowania podobne do kompulsywnych i zachowania, które są powtarzalne, ale nie kompulsywne. Ponadto pomiary zebrane podczas procedury eliminują alternatywne wyjaśnienia różnic między badanymi grupami i są ilościowe, bezstronne i niewrażliwe na zmienność między eksperymentatorami. Głównymi wadami tego modelu są kosztowny sprzęt, fakt, że wymaga on pewnej wiedzy technicznej oraz fakt, że jest czasochłonny w porównaniu z innymi modelami OCD (11 dni). Model może być wykorzystany do wykrywania anty- lub prokompulsywnych efektów manipulacji farmakologicznych i niefarmakologicznych oraz do badania neuronalnego podłoża zachowań kompulsywnych.
Wprowadzenie
Zaburzenie obsesyjno-kompulsywne (OCD) to poważne zaburzenie psychiczne, które objawia się u 1 - 3% ogólnej populacji1,2. Osoby cierpiące na OCD mają nawracające, natrętne i niechciane myśli (obsesje) i/lub powtarzające się zachowania rytualne (kompulsje)3. Specyficzne mechanizmy neuropatologiczne leżące u podstaw OCD nadal nie są w pełni poznane. Wykazano jednak udział układów serotoninergicznego4-7, dopaminergicznego8,9 i glutaminergicznego10 w tym zaburzeniu. Ponadto kora oczodołowo-czołowa, kora obręczy, zwoje podstawy i obszary w płacie ciemieniowym są zaangażowane w jego patofizjologię7,11-13. Wreszcie, doniesiono, że wydarzenia życiowe związane z wahaniami poziomu hormonów jajnikowych (np. Poród, owulacja) wywołują lub nasilają OCD u kobiet wwieku 14-16 lat, co sugeruje, że hormony jajnikowe odgrywają rolę modulującą w OCD17.
Ponieważ mechanizmy leżące u podstaw OCD są słabo poznane, użycie odpowiednich modeli zwierzęcych, które ściśle naśladują jego behawioralne i neuronalne objawy, jest niezbędne dla pogłębienia naszej wiedzy o jego biologicznych podstawach. Ponadto takie modele przyczyniają się do rozwoju nowych linii leczenia. Jest to szczególnie istotne w przypadku OCD, ponieważ wielu pacjentów jest opornych na leczenie lub doświadcza tylko częściowego złagodzenia objawów18,19. Rzeczywiście, w ostatnich latach genetyczne, farmakologiczne i behawioralne modele zwierzęce OCD (przeglądane w 20-28) poszerzyły i pogłębiły naszą wiedzę na temat tego zaburzenia.
Jednym z najczęściej stosowanych behawioralnych modeli zwierzęcych OCD jest szczurzy model tłumienia sygnału (więcej informacji na ten temat znajduje się w 29). Teoretycznym założeniem modelu jest to, że deficyt informacji zwrotnej związany z udanym wykonywaniem zachowań ukierunkowanych na cel prowadzi do kompulsywnych reakcji30-37. Model, opracowany przez Joela i współpracowników28, opiera się na operacyjnym zachowaniu szczurów. Podczas wstępnego treningu szczury są nagradzane granulką jedzenia po naciśnięciu dźwigni. Udane naciśnięcie dźwigni uruchamia dodatkowo początek światła magazynka i tonu. Daje to szczurowi informację zwrotną, że reakcja naciśnięcia dźwigni doprowadziła do dostarczenia pokarmu. Następnie zdolność bodźca do sygnalizowania dostarczenia nagrody jest celowo zmniejszana poprzez wielokrotne prezentowanie go bez nagrody (co ważne, na tym etapie w pudełku nie ma dźwigni). Zachowanie podobne do kompulsywnego pojawia się na ostatnim etapie treningu. Podczas tego etapu testu, który jest przeprowadzany w warunkach wygaszania, po naciśnięciu dźwigni następuje prezentacja bodźca, ale nie nagrody w postaci pokarmu. "Kompulsywne" zachowanie wyraża się jako wielokrotne naciśnięcia dźwigni, po których szczur nie próbuje odebrać nagrody. Efekt anty/pro-kompulsywny jest wyrażony jako zmniejszenie/zwiększenie liczby "kompulsywnych" naciśnięć dźwigni. Ponieważ tłumienie sygnału wiąże się z wygaszaniem, ważne jest rozróżnienie między skutkami tłumienia sygnału a efektem wygaszania jako takiego. Dlatego w grupie kontrolnej (grupa regularnego wygaszania) bodziec złożony nie jest osłabiany przed etapem badania. Leczenie, które ma działanie anty/prokompulsywne, nie powinno zmieniać liczby "kompulsywnych" naciśnięć dźwigni w tej grupie. (Dodatkowe informacje znajdują się w pkt 29).
"kompulsywne" naciśnięcia dźwigni naśladują przesadną i niepotrzebną naturę kompulsywnych zachowań wykazywanych przez pacjentów z OCD. W związku z tym model tłumienia sygnału wykazuje dobrą trafność twarzy. Ponadto badania przeprowadzone z użyciem tego modelu pokazują, że ma on dobrą trafność predykcyjną i konstrukcyjną (przegląd w 20,21). Trafność predykcyjna modelu wynika z badań wykazujących, że kompulsywne naciskanie dźwigni jest osłabiane przez leki, o których wiadomo, że łagodzą objawy obsesyjno-kompulsywne38,39, a także przez stymulację o wysokiej częstotliwości jądra podwzgórzowego40, co do których stwierdzono, że mają działanie antykompulsywne u pacjentów z OCD41,42. Co więcej, stwierdzono, że kilka leków, które są nieskuteczne w leczeniu OCD, nie wywiera działania antykompulsywnego w modelu38,39. Model wykazuje również dobrą trafność konstruktu, ponieważ badania wskazują, że podobne mechanizmy neuronalne są zaangażowane zarówno w symptomatologię OCD, jak i w kompulsywne zachowanie wywołane tłumieniem sygnału u szczurów. W ten sposób wykazano zaangażowanie układów serotoninergicznego43-46, dopaminergicznego39,46 i glutaminergicznego47, a także zaangażowanie obszarów mózgu związanych z OCD40,44,48-50 w kompulsywnym naciskaniu dźwigni. Ponadto stwierdzono, że hormony jajnikowe modulują kompulsywne naciskanie dźwigni u kobiet51. Dlatego model tłumienia sygnału jest potężnym narzędziem do badania neuronalnych substratów OCD i do badań przesiewowych nowych terapii antykompulsywnych. Aby uzyskać dokładne omówienie klinicznych korelatów modelu tłumienia sygnału oraz jego przydatności i zastosowania w badaniach OCD, patrz 20-22,29.
Protokół
UWAGA: Wszystkie protokoły eksperymentalne były zgodne z wytycznymi Komitetu ds. Opieki i Użytkowania Zwierząt Uniwersytetu w Tel Awiwie w Izraelu oraz z wytycznymi NIH. Dołożono wszelkich starań, aby zminimalizować liczbę wykorzystywanych zwierząt i ich cierpienie.
1. Przygotowanie zwierząt
- Szczury domowe w pomieszczeniu z 12-godzinnym cyklem światła/ciemności.
- Podczas procedur eksperymentalnych szczury powinny przestrzegać 22-godzinnego harmonogramu ograniczania pożywienia przy użyciu swobodnie dostępnej wody.
- Waż szczury dwa razy w tygodniu, aby upewnić się, że ich masa ciała nie spadnie poniżej 90% masy ciała szczurów wolno żywiących, w oparciu o krzywe wzrostu (np. Harlan, http://www.harlan.com/models/spraguedawley.asp). Z wyłączeniem szczurów, których masa ciała jest zmniejszona.
2. Ustawienie
- Użyj dwóch sąsiadujących ze sobą pomieszczeń. Jedna z nich ma służyć jako "poczekalnia" do przetrzymywania szczurów przed testami behawioralnymi, a druga do przeprowadzania procedury. W tym pomieszczeniu znajdą się komory operacyjne.
UWAGA: Upewnij się, że szczury w poczekalni nie są narażone na dźwięki generowane przez komory operacyjne. - Używaj komór operacyjnych z siatkową podłogą i magazynkiem żywności, który dostarcza jeden granulat żywności 45 mg dostępny przez uchylny panel z pleksiglasu.
UWAGA: Otwarcie zawiasu aktywuje mikroprzełącznik; lampa o mocy 3 W do oświetlania magazynu żywności; dwie wysuwane dźwignie (o szerokości 4 cm, umieszczone 2,8 cm od ścian bocznych, 7,5 cm z każdej strony magazynu żywności i 5 cm od podłogi); lampa domowa umieszczona na suficie do oświetlania komnat; urządzenie sygnałowe audio wytwarzające ton 80 dB, 2,8 kHz. - Umieść komory operacyjne w skrzynkach wyciszających z wentylatorami wentylacyjnymi zamontowanymi z boku każdej skrzynki.
- Przed rozpoczęciem eksperymentu należy wstępnie zaprogramować wszystkie etapy treningu z dokładnymi parametrami sesji istotnymi dla każdego etapu za pomocą specjalnego oprogramowania, które komputerowo steruje i aktywuje komory operacyjne, a także automatycznie rejestruje wszystkie istotne dane zgromadzone podczas trwania eksperymentu.
UWAGA: Parametry dla każdego etapu szkolenia (trening z magazynkiem, trening z dźwignią, tłumienie sygnału, test) są w pełni szczegółowo opisane poniżej. Dokładny sposób, w jaki te parametry są wstępnie zaprogramowane, zależy od używanego oprogramowania i sprzętu.
3. Obchodzenie się z żywnością i ograniczenie
- Ze szczurami należy obchodzić się przez około 2 minuty dziennie, 5 dni przed rozpoczęciem procedury eksperymentalnej.
- Uruchom 22-godzinny harmonogram ograniczeń żywieniowych, rozpoczynający się pierwszego dnia obsługi. Pozwól szczurom na dostęp do pożywienia przez 2 godziny w ich klatkach domowych nie wcześniej niż pół godziny po zakończeniu obsługi/treningu behawioralnego.
UWAGA: Upewnij się, że szczury mają wodę ad libitum w klatkach domowych, a zwłaszcza podczas 2-godzinnego okresu karmienia, ponieważ bez wody nie będą prawidłowo jeść. - W ciągu ostatnich 3 dni pracy umieść 20 - 30 granulek pokarmu na małej tacy i umieść tacę w klatce domowej szczura. Wyjmij tackę z klatki dopiero po zaobserwowaniu, że każdy szczur spożyje co najmniej dwa granulki.
UWAGA: Później użyj granulek jako wzmocnienia do treningu operacyjnego.
4. Procedura treningowa
- Aby szczury mogły zaaklimatyzować się w środowisku testowym, należy przetransportować je w ich domowych klatkach co najmniej 15 minut przed testami behawioralnymi w poczekalni.
- Szkolenie z magazynkiem (dni 1 - 3).
- W 1 dniu szkolenia z magazynka umieść wystarczającą ilość granulek jedzenia w magazynie żywności, aby były widoczne dla szczura.
UWAGA: Jednym ze sposobów, aby to zrobić, jest umieszczenie granulek tak, aby powodowały, że panel z pleksiglasu na zawiasach pozostał lekko otwarty. - Oblicz program treningowy magazynka tak, aby światło w domu włączało się automatycznie na początku każdej próby, a pojedynczy granulek żywności był wrzucany do magazynu żywności z 5-sekundowym zmiennym opóźnieniem, jednocześnie z nadejściem bodźca złożonego składającego się z lampki magazynka i tonu.
- Oblicz bodziec złożony i światło w domu, aby wyłączało się, gdy głowa szczura dostanie się do magazynu żywności (próba zebrana) lub po 15 sekundach (próba niezebrana), w zależności od tego, co nastąpi wcześniej. Zdefiniuj każdą próbę, po której ma nastąpić 30-sekundowy interwał między próbami.
- Umieść szczury w komorach operacyjnych i 5 minut później sprawdź ręcznie, czy wszystkie szczury zebrały granulki. Jeśli tak, aktywuj program treningowy. Jeśli nie, odczekaj dodatkowe 5 minut.
- Zaprogramuj sesję treningową magazynka tak, aby przestała działać, gdy szczur wykona 30 zebranych prób lub po osiągnięciu łącznie 40 prób.
- W 3 dniu treningu z magazynem upewnij się, że szczury wykonają 30 zebranych prób z łącznej liczby 32 prób. Szczury, które nie spełnią tego kryterium, należy odesłać do komór operacyjnych na kolejną pełną sesję treningową pod koniec dnia treningowego.
UWAGA: Szczury, które nie osiągną tego kryterium, należy uruchomić po dodatkowej sesji w ostatnim dniu treningu z magazynkiem rano pierwszego dnia treningu z dźwignią. Wyklucz szczury, które nie spełniają kryterium.
- W 1 dniu szkolenia z magazynka umieść wystarczającą ilość granulek jedzenia w magazynie żywności, aby były widoczne dla szczura.
- Trening wyciskania dźwigni - Faza przedtreningowa (dzień 4): Naciskanie dźwigni zgodnie z harmonogramem swobodnego działania.
- Aktywuj program treningowy przed umieszczeniem szczurów w komorach operacyjnych. Oblicz program tak, aby wzmocniona dźwignia była obecna w komorze, a światło w domu było włączone podczas całej sesji treningowej i aby niewzmocniona dźwignia była zawsze schowana.
UWAGA: Zrównoważyć bok dźwigni (lewy/prawy) w poprzek szczurów i utrzymywać stały dla każdego szczura przez cały czas trwania procedury doświadczalnej. - Połóż kilka granulek na dźwigni i umieść szczura w komorze.
- Pozwól szczurowi zbadać obszar dźwigni, dopóki przypadkowo nie naciśnie dźwigni podczas zbierania granulek, wywołując dostarczenie pojedynczej granulki pokarmu i początek bodźca złożonego.
- Oblicz program tak, aby bodziec złożony był wyłączany po tym, jak głowa szczura dostanie się do magazynu żywności (ukończona próba) lub po 15 sekundach (nieukończona próba), w zależności od tego, co nastąpi wcześniej.
- Zaprogramuj sesję tak, aby przestała działać, gdy szczur osiągnie 30 ukończonych prób.
- Jeśli szczur nie osiągnie tego kryterium w ciągu 30 minut, połóż 3 - 4 granulki na dźwigni i odczekaj kolejne 20 minut. Jeśli szczur nie ukończy 30 prób, zwróć go do komory operacyjnej w celu dodatkowego szkolenia pod koniec dnia treningu.
UWAGA: Szczury, które nie osiągną tego kryterium, należy ponownie uruchomić po dodatkowej sesji treningowej rano pierwszego dnia treningu z dźwignią. Wyklucz szczury, które nie spełniają kryterium. Ogólnie rzecz biorąc, prawie wszystkie szczury nabywają naciskanie dźwigni po 3 sesjach treningu wstępnego (większość robi to w ciągu pierwszej sesji). Jeśli jednak zwierzęta mają większe trudności z opanowaniem nacisku dźwigniowego, należy zastosować kształtowanie. - Podczas kształtowania należy trzymać drzwi skrzynki wyciszającej otwarte i obserwować szczura w komorze operacyjnej. Gdy szczur zbliży się do dźwigni, użyj oprogramowania, aby aktywować dostarczanie granulki pokarmu i początek bodźca złożonego. Rób to wielokrotnie.
- Na początku wzmacniaj szczura, gdy znajduje się w pobliżu dźwigni, ale stopniowo zacznij go wzmacniać tylko wtedy, gdy nawiąże rzeczywisty fizyczny kontakt z dźwignią, a na końcu wzmacniaj tylko próby jej naciśnięcia.
UWAGA: Kształtowanie może chwilę potrwać. Bądź tak cicho, jak to możliwe.
- Aktywuj program treningowy przed umieszczeniem szczurów w komorach operacyjnych. Oblicz program tak, aby wzmocniona dźwignia była obecna w komorze, a światło w domu było włączone podczas całej sesji treningowej i aby niewzmocniona dźwignia była zawsze schowana.
- Szkolenie z wyciskania dźwigni (dni 5 - 7): Naciskanie dźwigni według dyskretnego harmonogramu próbnego.
- Oblicz program tak, aby rozpoczęcie każdej próby było sygnalizowane przez pojawienie się światła w domu, a 5 sekund później obie dźwignie były wprowadzane do komory.
- Upewnij się, że reakcje na niewzmocnioną dźwignię (NRL) nie mają zaprogramowanych konsekwencji, a naciśnięcia wzmocnionej dźwigni wyzwalają dostarczenie pojedynczego granulatu spożywczego do magazynka, wraz z prezentacją bodźca złożonego.
- Po tym, jak głowa szczura znajdzie się w magazynie żywności lub po upływie 15 sekund, dźwignie są cofane, a bodziec złożony i światło w domu są wyłączane.
- Zdefiniuj każdą próbę w taki sposób, aby następował po niej 30-sekundowy interwał między próbami. W pierwszym dniu szkolenia z wyciskania dźwigni (dzień 5) określ bodziec złożony, który ma być wyłączany po 15 sekundach, aby ułatwić uzyskanie reakcji dźwignia-naciśnięcie. W kolejnych dwóch dniach (dni 6 - 7) określ bodziec złożony tak, aby trwał tylko 10 sekund, aby upewnić się, że wejście magazynka ściśle podąża za reakcjami naciśnięcia dźwigni.
- Umieść szczury w komorach operacyjnych, a następnie aktywuj program treningowy.
- Zaprogramuj sesję treningową wyciskania dźwigni tak, aby przestała działać, po tym jak szczur naciśnie wzmocnioną dźwignię (RL) i zbierze granulkę pokarmu (ukończone badanie) 40 razy lub po osiągnięciu łącznie 60 prób.
- W ostatnim dniu treningu wyciskania dźwigni upewnij się, że szczury ukończą maksymalnie 40 prób z łącznej liczby 42 prób. Jeśli szczur nie spełni tego kryterium, zwróć go do komory operacyjnej na dodatkową sesję treningową pod koniec dnia.
UWAGA: Wyklucz szczury, które nie osiągną tego kryterium po dodatkowej sesji w ostatnim dniu treningu wyciskania dźwigni. - W ostatnim dniu szkolenia z wyciskania dźwigni zapisuj liczbę naciśnięć dźwigni bez nagrody w każdej próbie, tj. liczbę naciśnięć po pierwszej odpowiedzi na RL (dodatkowe naciśnięcia dźwigni).
- Losowo przydziel szczury do grup eksperymentalnych.
- Przeprowadzając eksperymentalną manipulację w czasie etapu badania (np. w badaniach testujących ostre działanie leku), należy zastosować analizę wariancji (ANOVA) z głównymi czynnikami manipulacji (z manipulacją/bez manipulacji) i procedurą (tłumienie sygnału po treningu, PTSA/regularne wygaszanie, RE, patrz punkt 4.5) w celu przeanalizowania liczby nadmiernych naciśnięć dźwigni, po których nastąpiło pobranie granulek (nazwanych zakończonymi nadmiernymi naciśnięciami dźwigni, ELP-C) i prób nienaciśnięcia w ostatnim dniu szkolenia z dźwignią przed rozpoczęciem etapu tłumienia sygnału.
- Upewnij się, że nie ma statystycznie istotnych różnic między grupami w tej mierze.
UWAGA: Zazwyczaj jest tylko kilka szczurów z dużą liczbą dodatkowych naciśnięć dźwigni, więc porównaj grupy bez tych szczurów. Ponadto upewnij się, że szczury, które przeszły dodatkowe szkolenie, są rozmieszczone między grupami tak równomiernie, jak to możliwe.
- Tłumienie sygnału/regularne wygaszanie (dni 8 - 10).
- Przeprowadź procedurę w identyczny sposób, jak w przypadku szkolenia z magazynem w dniach 1-3, z dwoma wyjątkami:
- Opróżnij dozownik granulek tak, aby żadne granulki żywności nie były dostarczane do magazynu żywności po nadejściu bodźca złożonego.
- Zaprogramuj odpowiedni etap tak, aby bodziec złożony wyłączał się po 10 sekundach, a nie po 15 sekundach.
- Upewnij się, że zarówno RL, jak i NRL pozostają schowane podczas sesji treningowej.
- Upewnij się, że każda sesja treningowa tłumienia sygnału składa się z 30 prób. W ostatnim dniu treningu upewnij się, że szczury próbują zebrać granulkę pokarmu (tj. włożyć głowę do magazynu żywności po nadejściu bodźca złożonego) nie więcej niż 14 razy.
- Szczury, które nie spełniły tego kryterium, należy odesłać do komór operacyjnych na dodatkową sesję treningową pod koniec dnia.
UWAGA: Nie należy wykluczać szczurów, które na tym etapie nie spełniają kryterium. - Szczury poddawane regularnemu wymieraniu należy sprowadzić do "poczekalni" i pozostawić je w ich domowych klatkach na okres odpowiadający średniemu czasowi trwania etapu tłumienia sygnału.
- Użyj mieszanej ANOVA z głównymi czynnikami manipulacji (z manipulacją/bez manipulacji) i procedurą (PTSA/RE) oraz czynnikiem powtarzanych pomiarów sesji (sesje 1 - 3), aby przeanalizować liczbę zakończonych prób w trzech sesjach etapu tłumienia sygnału.
- Upewnij się, że różnice w wydajności na etapie testu nie wynikają z wcześniejszej różnicy.
- Przeprowadź procedurę w identyczny sposób, jak w przypadku szkolenia z magazynem w dniach 1-3, z dwoma wyjątkami:
- Test (dzień 11): Uruchom procedurę w identyczny sposób, jak trening wyciskania dźwigni, ale w warunkach wygaszania, tj. naciśnięcie RL powoduje prezentację bodźca złożonego, ale do magazynu żywności nie jest dostarczany pokarm, ponieważ dozownik granulek jest pusty.
- Oblicz, że sesja testowa składa się z 50 prób dla mężczyzn i 60 prób dla kobiet, ponieważ zwykle kobiety nadal reagują po 50 próbach. Jeśli jednak obie płcie są wykorzystywane w tym samym badaniu (zalecane), należy przeprowadzić 60 prób dla wszystkich uczestników.
- Zbierz liczbę nadmiernych naciśnięć dźwigni, po których nie nastąpiło wejście do magazynka (tzw. nadmierne naciśnięcia dźwigni – niezakończone, ELP-U); liczbę nadmiernych naciśnięć dźwigni, po których nastąpiło wejście magazynka (tj. ELP-C); liczbę naciśnięć dźwigni w NRL; oraz liczbę wciśnięć nosa (tj. ile razy szczur włożył głowę do magazynka z jedzeniem).
- Analizuj wyniki szczurów na etapie testowym za pomocą analizy wariancji (ANOVA) z głównymi czynnikami manipulacji (z manipulacją/bez manipulacji) i procedury (PTSA/RE) wykonywanej na liczbie ELP-C, ELP-U, liczbie zakończonych, nieukończonych i niewciśniętych prób oraz liczbie szturchnięć nosem i naciśnięć na niewzmocnioną dźwignię.
- Śledź istotne interakcje z analizą post hoc, porównując grupę leczoną z grupą nieleczoną/kontrolną, w ramach każdej procedury.
UWAGA: Gdy dokładne parametry manipulacji nie są znane (np. odpowiednia dawka leku, parametry stymulacji elektrycznej) oraz w celu zmniejszenia liczby zwierząt, należy przetestować efekty manipulacji tylko w procedurze PTSA, stosując inne parametry (np. stosując kilka dawek leku). - Znajdź optymalne parametry, czyli parametry, które wywierają największy wpływ na liczbę ELP-U, bez zniesienia odpowiedzi behawioralnej, a następnie uruchom pełny projekt eksperymentalny (PTSA i RE).
Wyniki
Poniższe wyniki oparto na pracy Brimberg et al., 200752. Wszystkie ryciny zostały przedrukowane za zgodą wydawnictwa Elsevier.
W niniejszym badaniu przetestowano zachowanie samców szczurów Sprague Dawley (SD) w modelu tłumienia sygnału. Najpierw, w eksperymencie 1, zbadano efekty 3 dawek paroksetyny, selektywnego inhibitora zwrotnego wychwytu serotoniny (SSRI), w procedurze PTSA (n na grupę = 10). W teście paroksetyna w sposób zależny od dawki zmniejszyła liczbę ELP-C (Rycina 1A; analiza ANOVA wykazała istotny główny efekt dawki, F(3,22) = 5,15, p < 0,01) oraz ELP-U (Rycina 1B; analiza ANOVA wykazała istotny główny efekt dawki, F(3,22) = 7,99, p < 0,001).
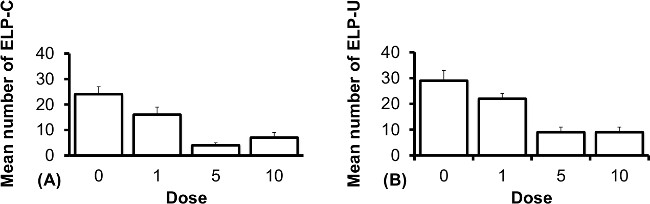
Rycina 1. Rycina przedstawia reprezentatywny eksperyment zależności dawka-odpowiedź, porównujący efekty różnych dawek SSRI paroksetyny na ELP-C i ELP-U u samców szczurów po tłumieniu sygnału. Średnia i błąd standardowy liczby dodatkowych nacisnięć dźwigni, które (A) zakończyły się wejściem do dozownika (dodatkowe nacisnięcia dźwigni w próbach zakończonych; ELP-C) oraz (B) nie zakończyły się wejściem do dozownika (dodatkowe nacisnięcia dźwigni w próbach niezakończonych; ELP-U) u szczurów traktowanych nośnikiem lub 1, 5 lub 10 mg/kg paroksetyny w dniu testowym procedury PTSA. Przedrukowano za zgodą 52.
W eksperymencie 2 przetestowano dawkę leku, która okazała się najskuteczniejsza w eksperymencie 1 (5 mg/kg), zarówno w procedurze PTSA, jak i RE (n na grupę = 10). W teście paroksetyna zmniejszyła liczbę ELP-C w obu procedurach, PTSA i RE (Rysunek 2A; dwuczynnikowa ANOVA, główny efekt procedury, F(1,32) = 6,50, p < 0,05; główny efekt leku, F(1,32) = 8,69, p < 0,01; interakcja procedura X lek, F(1,32) = 0,43, p = 0,52), a ponadto wywołała efekt antykompulsywny, t.j. zmniejszyła liczbę ELP-U w procedurze PTSA, ale nie w procedurze RE (Rysunek 2B; główny efekt procedury, F(1,32) = 9,60, p < 0,005; główny efekt leku, F(1,32) = 5,75, p < 0,05; interakcja procedura X lek, F(1,32) = 4,83, p < 0,05).
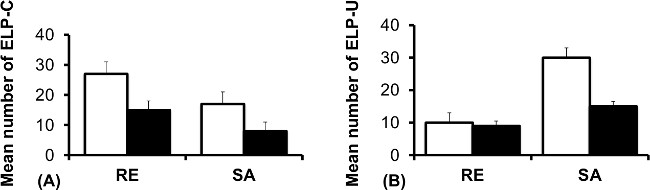
Rycina 2. Rycina ta przedstawia reprezentatywny eksperyment porównujący wpływ tłumienia sygnału oraz regularnego wygaszania na ELP-C i ELP-U u samców szczurów eksponowanych na sól fizjologiczną i paroksetynę. Średnia i błąd standardowy liczby (A) ELP-C oraz (B) ELP-U szczurów traktowanych nośnikiem lub 5 mg/kg paroksetyny w dniu testowym procedur PTSA i RE. Przedrukowano za zgodą 52.
Dyskusja
Szczurzy model tłumienia sygnału OCD jest potężnym modelem behawioralnym do badania zachowań podobnych do kompulsywnych. Model wykazuje wysoką trafność twarzową, predykcyjną i konstrukcyjną20,21 i był szeroko stosowany do badania neuronalnych substratów tego zachowania39,43-45,48, jego odpowiedzi na manipulacje farmakologiczne38,39,43,47,53,54 oraz na głęboką stymulację mózgu40,46,50 i jego modulacji przez hormony jajnikowe51. Tak więc model ten jest użytecznym modelem zwierzęcym do badania OCD.
Kompulsywne naciskanie dźwigni w modelu tłumienia sygnału ma kilka zalet w porównaniu z innymi eksperymentalnie wywołanymi powtarzającymi się zachowaniami (takimi jak wygaszanie, wybuch i zachowania perseweracyjne). Po pierwsze, znaczenie kompulsywnego naciskania dźwigni dla zachowań kompulsywnych u ludzi zostało dobrze ustalone, podczas gdy trafność innych powtarzających się zachowań, które są często określane jako kompulsywne, jest niska lub nigdy nie została przetestowana20-22. Warto zauważyć, że powtarzanie zachowań/perseweracja jest zjawiskiem wspólnym dla różnych zaburzeń psychicznych55-62 i dlatego kluczowe znaczenie ma właściwa walidacja docelowego zachowania jako kompulsywnego. Ponadto, różne miary behawioralne zebrane podczas procedury PTSA (tj. liczba naciśnięć niewzmocnionej dźwigni lub ogólna liczba szturchnięć nosem wykonywanych przez szczury podczas etapu testu) pomagają w wyeliminowaniu alternatywnych wyjaśnień różnic w kompulsywnym naciskaniu dźwigni między badanymi grupami. Na przykład nadmierne naciskanie dźwigni może odzwierciedlać ogólny wzrost aktywności motorycznej, w którym to przypadku najprawdopodobniej będzie mu towarzyszył wzrost liczby naciśnięć na niewzmocnioną dźwignię (w związku z tym środek ten eliminuje również potrzebę testowania szczurów w dodatkowych procedurach, takich jak test na otwartym polu). Z drugiej strony, manipulacje, które prowadzą do ogólnego wzrostu liczby szturchnięć nosem przez szczury, prawdopodobnie doprowadzą do zmniejszenia kompulsywnego naciskania dźwigni, nawet jeśli nie mają one rzeczywistego efektu antykompulsywnego. Dodatkowe pomiary zebrane jeszcze przed Testem (nadmierne naciśnięcia dźwigni podczas etapu treningu dźwigni, zakończone próby podczas etapu tłumienia sygnału) pozwalają eksperymentatorowi wyeliminować możliwość, że jakiekolwiek różnice między grupami na etapie Testu wynikają z wcześniejszych różnic w uczeniu się. Warto zauważyć, że wszystkie pomiary zebrane podczas różnych etapów procedury są ilościowe, a zatem bezstronne, nie podlegają subiektywnej interpretacji i nie mają wpływu na zmienność między eksperymentatorami.
Wadą modelu tłumienia sygnału jest fakt, że wymaga on specjalnego sprzętu (komputerowo sterowane skrzynki operacyjne, odpowiednie oprogramowanie do obsługi tych skrzynek itp.). To sprawia, że jest to zarówno kosztowne, jak i nieco skomplikowane do wykonania, wymaga wykwalifikowanego personelu, biegłego zarówno w doraźnym rozwiązywaniu problemów, jak i w codziennej konserwacji sprzętu. Ponadto, ponieważ model opiera się na wyuczonym, a nie spontanicznym zachowaniu, i ponieważ składa się z wielu etapów, jest stosunkowo czasochłonny (11 dni) w porównaniu z niektórymi innymi zwierzęcymi modelami OCD. Jednak z naszego doświadczenia wynika, że dzięki odpowiedniemu przeszkoleniu dość łatwo można zdobyć wiedzę niezbędną do wykonania zabiegu. Ponadto, ponieważ cały sprzęt jest sterowany komputerowo i prawie w pełni automatyczny, duże grupy szczurów mogą być uruchamiane wydajnie i jednocześnie, co zmniejsza koszty czasu. Ponadto wyniki są łatwe do obliczenia i nie wymagają ręcznego kodowania ani specjalnej obróbki. Wreszcie, skrzynki operacyjne są bardzo wszechstronne, a po zdobyciu mogą być używane do różnych procedur behawioralnych oprócz tłumienia sygnału, co czyni je niezwykle opłacalnymi.
Inną kwestią, którą należy wziąć pod uwagę podczas korzystania z modelu, jest to, że ze względu na jego długotrwały i wieloetapowy charakter, może on nie nadawać się do leczenia przewlekłego lub badań rozwojowych. Aby nie wpływać na uczenie się szczurów w początkowych etapach procedury behawioralnej, podawanie przewlekłego leczenia wymaga przerwy w procedurze, co sprawia, że procedura jest jeszcze bardziej czasochłonna. Co więcej, przerwa ta nie może nastąpić bezpośrednio przed etapem testu, a zatem szczury, którym podawano przewlekłe leczenie, przejdą etap tłumienia sygnału pod wpływem leczenia, co może zmienić ich zachowanie jeszcze przed etapem badania i sprawić, że jakakolwiek interpretacja wyników będzie problematyczna. Jeśli chodzi o badania rozwojowe, ponownie, ze względu na długotrwały charakter modelu, niemożliwe jest zastosowanie go dla bardzo młodych szczurów (np. młodszych niż 46-dniowe szczury w dniu testu). Ponadto szczury nie mogą być ponownie badane, co sprawia, że konieczne jest szkolenie nowych szczurów w każdym badanym wieku i wyklucza się możliwość stosowania wzorów podłużnych.
Ważnym aspektem modelu tłumienia sygnału, o którym wspomniano powyżej, jest fakt, że kompulsywne naciskanie dźwigni jest modulowane przez wahania poziomu hormonów jajnikowych wzdłuż cyklu rujowego szczura51. Ten aspekt jest ważny dla naukowców zainteresowanych badaniem mechanizmów, za pomocą których żeńskie hormony gonadalne wpływają na zachowania kompulsywne. Chociaż wpływ męskich hormonów gonadalnych na kompulsywne naciskanie dźwigni nie został przetestowany, te lub inne czynniki wpływają na wydajność samców w modelu, ponieważ zmienność różnych miar odpowiedzi w modelu jest podobna u samców i samic szczurów51. Dlatego naukowcy, którzy nie mają na celu badania roli hormonów gonadalnych, mogą używać zarówno samców, jak i samic szczurów bez mierzenia poziomu tych hormonów.
Podsumowując, pomimo pewnych wad szczurzego modelu tłumienia sygnału OCD, takich jak jego długość oraz fakt, że wymaga specjalnego sprzętu i pewnej wiedzy technicznej, zapewnia czuły i wiarygodny sposób oceny zachowań kompulsywnych u szczurów. Co więcej, może odróżniać te zachowania od innych powtarzających się/perseweratywnych zachowań, które nie mają naprawdę kompulsywnego charakteru. W związku z tym jest to doskonały model do oceny przypuszczalnych terapii antykompulsywnych, a badania z jego wykorzystaniem mogą być wykorzystane do poszerzenia naszej wiedzy na temat neuronalnych substratów OCD, które wciąż nie są dobrze poznane.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez Izraelską Fundację Naukową (grant nr 592/12) dla DJ
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Modułowa komora testowa dla szczurów | Campden Instruments Ltd. | Model 80003M | |
| Rynna na pelety do komory modułowej | Campden Instruments Ltd. | Model 80210M-R | z wejściem nad głową i drzwiami |
| Niskoprofilowa chowana dźwignia reagowania | Campden Instruments Ltd. | Model CI4460-M | 2 dźwignie na komorę |
| Światła stymulacyjne | Campden Instruments Ltd. | Model 80221 | |
| Dozownik pelletu | Campden Instruments Ltd. | Model 80209-45 | z wymiennym kołem o rozmiarze granulki 45 mg |
| Mouse nosepoke | Campden Instruments Ltd. | Model 80116S | ze światłem stymulacyjnym |
| System bodźców dźwiękowych Sonalert | Campden Instruments Ltd. | Model SC628 | |
| ABET II Kompletny pakiet startowy | Campden Instruments Ltd. | Model 88501*C | z zasilaniem 220 VAC/50 Hz |
| Komora dźwiękochłonna | Campden Instruments Ltd. | Model 80600A-SAC | Wyposażony w wizjer i panel wentylatora wentylacyjnego 28 VDC |
| System testowy środowiska zachowania zwierząt (ABET) II | Lafayette Instrument Neuroscience, Indiana, USA | Model 89501 | |
| Komputer | z procesorem co najmniej 1,8 GHz, z systemem Microsoft Windows XP (SP3) lub Win7 | ||
| 45 mg bezpyłowe granulki precyzyjne | PMI Nutrition International, Indiana, USA | Formuła. P/AlN-76A | Przechowywać pojemniki szczelnie zamknięte w celu ochrony przed wilgocią. |
Bibliografia
- Ruscio, A. M., Stein, D. J., Chiu, W. T., Kessler, R. C. The epidemiology of obsessive-compulsive disorder in the National Comorbidity Survey Replication. Mol Psychiatry. 15 (1), 53-63 (2010).
- Sasson, Y., et al. Epidemiology of obsessive-compulsive disorder: a world view. The Journal of clinical psychiatry. 58, Suppl 12. 7-10 (1997).
- Association, A. P. Diagnostic and statistical manual of mental disorders: DSM-IV. , Washington, DC. (1994).
- Murphy, D. L., et al. Genetic perspectives on the serotonin transporter. Brain Research Bulletin. 56, 487-494 (2001).
- Ozaki, N., et al. Serotonin transporter missense mutation associated with a complex neuropsychiatric phenotype. Mol Psychiatry. 8 (11), 933-936 (2003).
- Sasson, Y., Zohar, J. New developments in obsessive-compulsive disorder research: implications for clinical management. International clinical psychopharmacology. 11, Suppl 5. 3-12 (1996).
- Stein, D. J. Neurobiology of the obsessive–compulsive spectrum disorders. Biological. 47, 296-304 (2000).
- McDougle, C. J., et al. Haloperidol addition in fluvoxamine-refractory obsessive-compulsive disorder: A double-blind, placebo-controlled study in patients with and without tics. Archives of General Psychiatry. 51 (4), 302-308 (1994).
- McDougle, C. J., et al. Neuroleptic addition in fluvoxamine-refractory obsessive-compulsive disorder. The American Journal of Psychiatry. 147 (5), 652-654 (1990).
- Pittenger, C., Krystal, J. H., Coric, V. Glutamate-modulating drugs as novel pharmacotherapeutic agents in the treatment of obsessive-compulsive disorder. NeuroRx. 3 (1), 69-81 (2006).
- Menzies, L., et al. Integrating evidence from neuroimaging and neuropsychological studies of obsessive-compulsive disorder: The orbitofronto-striatal model revisited. Neuroscience & Biobehavioral Reviews. 32 (3), 525-549 (2008).
- Rotge, J. -Y., et al. Matter Alterations in Obsessive-Compulsive Disorder: An Anatomic Likelihood Estimation Meta-Analysis. Neuropsychopharmacology. 35 (3), 686-691 (2009).
- Saxena, S., Brody, A. L., Schwartz, J. M., Baxter, L. R. Neuroimaging and frontal-subcortical circuitry in obsessive-compulsive disorder. The British Journal of Psychiatry. 173 (Suppl. 35, 26-37 (1998).
- Abramowitz, J. S., Schwartz, S. A., Moore, K. M., Luenzmann, K. R. Obsessive-compulsive symptoms in pregnancy and the puerperium:: A review of the literature. Journal of Anxiety Disorders. 17, 461-478 (2003).
- Labad, J., et al. Female reproductive cycle and obsessive-compulsive disorder. The Journal of clinical psychiatry. 66 (4), 428-435 (2005).
- Maina, G., Albert, U., Bogetto, F., Vaschetto, P., Ravizza, L. Recent life events and obsessive–compulsive disorder (OCD): the role of pregnancy/delivery. Psychiatry Research. 89, 49-58 (1999).
- Uguz, F., et al. Course of obsessive-compulsive disorder during early postpartum period: a prospective analysis of 16 cases. Comprehensive Psychiatry. 48 (6), 558-561 (1016).
- Greenberg, B. D., et al. Deep brain stimulation of the ventral internal capsule/ventral striatum for obsessive-compulsive disorder: worldwide experience. Mol Psychiatry. 15 (1), 64-79 (2010).
- Eddy, K. T., Dutra, L., Bradley, R., Westen, D. A multidimensional meta-analysis of psychotherapy and pharmacotherapy for obsessive-compulsive disorder. Clinical Psychology Review. 24 (8), 1011-1030 (2004).
- Albelda, N., Joel, D. Current animal models of obsessive compulsive disorder: an update. Neuroscience. 211 (0), 83-106 (2012).
- Albelda, N., Joel, D. Animal models of obsessive-compulsive disorder: Exploring pharmacology and neural substrates. Neuroscience & Biobehavioral Reviews. 36 (1), 47-63 (2012).
- Joel, D. Current animal models of obsessive compulsive disorder: A critical review. Progress in Neuro-Psychopharmacology and Biological Psychiatry. 30 (3), 374-388 (2006).
- Fineberg, N. A., et al. Probing Compulsive and Impulsive Behaviors, from Animal Models to Endophenotypes: A Narrative Review. Neuropsychopharmacology. 35 (3), 591-604 Forthcoming.
- Eilam, D., Zor, R., Fineberg, N., Hermesh, H. Animal behavior as a conceptual framework for the study of obsessive–compulsive disorder(OCD). Behavioural Brain Research. 231 (2), 289-296 (2012).
- Ting, J. T., Feng, G. Neurobiology of obsessive–compulsive disorder: insights into neural circuitry dysfunction through mouse genetics. Current Opinion in Neurobiology. 21 (6), 842-848 (2011).
- Boulougouris, V., Chamberlain, S. R., Robbins, T. W. Cross-species models of OCD spectrum disorders. Psychiatry Research. 170 (1), 15-21 (2009).
- Korff, S., Harvey, B. H. Animal models of obsessive-compulsive disorder: rationale to understanding psychobiology and pharmacology. Psychiatric Clinics of North America. 29 (2), 371-390 (2006).
- Camilla d'Angelo, L. -S., et al. Animal models of obsessive-compulsive spectrum disorders. CNS Spectrums. 19 (01), 28-49 (2014).
- Joel, D. The signal attenuation rat model of obsessive–compulsive disorder: a review. Psychopharmacology. 186 (4), 487-503 (2006).
- Baxter, L. R. Functional imaging of brain systems mediating obsessive-compulsive disorder. Neurobiology of Mental Illness. Charney, D. S., Nestler, E. J., Bunney, B. S. , University Press. Oxford. 534-547 (1999).
- Gray, J. A., McNaughton, N. The neuropsychology of anxiety: An enquiry into the function of the septo-hippocampal system. , Oxford University Press. (1982).
- Malloy, P. The frontal lobes revisited. Perecman, E. , IRBN Press. (1987).
- Pitman, R. K. The psychobiology of obsessive-compulsive disorder. Zohar, J., Insel, T. R. , Springer Publishing Company. (1991).
- Pitman, R. K. A cybernetic model of obsessive-compulsive psychopathology. Comprehensive Psychiatry. 28, 334-343 (1987).
- Reed, G. F. Obsessional personality disorder and remembering. The British Journal of Psychiatry. 130 (2), 177-183 (1977).
- Szechtman, H., Woody, E. Obsessive-Compulsive Disorder as a Disturbance of Security Motivation. Psychological Review. 111 (1), 111-127 (2004).
- Otto, M. W. Normal and abnormal information processing: A neuropsychological perspective on obsessive compulsive disorder. Psychiatric Clinics of North America. 15 (4), 825-848 (1992).
- Joel, D., Ben-Amir, E., Doljansky, J., Flaisher, S. 'Compulsive' lever-pressing in rats is attenuated by the serotonin re-uptake inhibitors paroxetine and fluvoxamine but not by the tricyclic antidepressant desipramine or the anxiolytic diazepam. Behavioural Pharmacology. 15 (3), 241-252 (2004).
- Joel, D., Doljansky, J. Selective alleviation of compulsive lever-pressing in rats by D1, but not D2, blockade: possible implications for the involvement of D1 receptors in obsessive-compulsive disorder. Neuropsychopharmacology : official publication of the American College of Neuropsychopharmacology. 28 (1), 77-85 (2003).
- Klavir, O., Flash, S., Winter, C., Joel, D. High frequency stimulation and pharmacological inactivation of the subthalamic nucleus reduces ‘compulsive’ lever-pressing in rats. Experimental Neurology. 215 (1), 101-109 (2009).
- Fontaine, D., et al. Effect of subthalamic nucleus stimulation on obsessive—compulsive disorder in a patient with Parkinson disease. Journal of Neurosurgery. 100 (6), 1084-1086 (2004).
- Mallet, L., et al. Compulsions, Parkinson's disease, and stimulation. The Lancet. 360 (9342), 1302-1304 (2002).
- Flaisher-Grinberg, S., Klavir, O., Joel, D. The role of 5-HT2A and 5-HT2C receptors in the signal attenuation rat model of obsessive–compulsive disorder. The International Journal of Neuropsychopharmacology. 11 (06), 811-825 (2008).
- Joel, D., Doljansky, J., Roz, N., Rehavi, M. Role of the orbital cortex and of the serotonergic system in a rat model of obsessive compulsive disorder. Neuroscience. 130 (1), 25-36 (2005).
- Schilman, E. A., Klavir, O., Winter, C., Sohr, R., Joel, D. The role of the striatum in compulsive behavior in intact and orbitofrontal-cortex-lesioned rats: possible involvement of the serotonergic system. Neuropsychopharmacology. 35 (4), 1026-1039 (2010).
- Winter, C., et al. The role of the subthalamic nucleus in ‘compulsive’ behavior in rats. European Journal of Neuroscience. 27 (8), 1902-1911 (2008).
- Albelda, N., Bar-On, N., Joel, D. The role of NMDA receptors in the signal attenuation rat model of obsessive–compulsive disorder. Psychopharmacology. 210 (1), 13-24 (2010).
- Joel, D., Doljansky, J., Schiller, D. 'Compulsive' lever pressing in rats is enhanced following lesions to the orbital cortex, but not to the basolateral nucleus of the amygdala or to the dorsal medial prefrontal cortex. European Journal of Neuroscience. 21 (8), 2252-2262 (2005).
- Joel, D., Klavir, O. The effects of temporary inactivation of the orbital cortex in the signal attenuation rat model of obsessive compulsive disorder. Behavioral Neuroscience. 120 (4), 976-983 (2006).
- Klavir, O., Winter, C., Joel, D. High but not low frequency stimulation of both the globus pallidus and the entopeduncular nucleus reduces ‘compulsive’ lever-pressing in rats. Behavioural Brain Research. 216 (1), 84-93 (2011).
- Flaisher-Grinberg, S., et al. Ovarian hormones modulate ‘compulsive’ lever-pressing in female rats. Hormones and Behavior. 55 (2), 356-365 (2009).
- Brimberg, L., Flaisher-Grinberg, S., Schilman, E. A., Joel, D. Strain differences in ‘compulsive’ lever-pressing. Behavioural Brain Research. 179 (1), 141-151 (2007).
- Joel, D., Avisar, A., Doljansky, J. Enhancement of excessive lever-pressing after post-training signal attenuation in rats by repeated administration of the D1 antagonist SCH 23390 or the D2 agonist quinpirole, but not the D1 agonist SKF 38393 or the D2 antagonist haloperidol. Behavioral Neuroscience. 115 (6), 1291-1300 (2001).
- Yankelevitch-Yahav, R., Joel, D. The role of the cholinergic system in the signal attenuation rat model of obsessive-compulsive disorder. Psychopharmacology. 230 (1), 37-48 (2013).
- Clark, L., et al. Association between response inhibition and working memory in adult ADHD: A link to right frontal cortex pathology. Biological Psychiatry. 61 (12), 1395-1401 (2007).
- Cools, R., Altamirano, L., D’Esposito, M. Reversal learning in Parkinson's disease depends on medication status and outcome valence. Neuropsychologia. 44 (10), 1663-1673 (1016).
- Gauggel, S., Rieger, M., Feghoff, T. -A. Inhibition of ongoing responses in patients with Parkinson’s disease. Journal of Neurology, Neurosurgery & Psychiatry. 75 (4), 539-544 (2004).
- Hozumi, A., Hirata, K., Tanaka, H., Yamazaki, K. Perseveration for novel stimuli in Parkinson's disease: An evaluation based on event-related potentials topography. Movement Disorders. 15, 835-842 (2000).
- Huddy, V. C., et al. Impaired conscious and preserved unconscious inhibitory processing in recent onset schizophrenia. Psychological Medicine. 39 (06), 907-916 (2009).
- Itami, S., Uno, H. Orbitofrontal cortex dysfunction in attention-deficit hyperactivity disorder revealed by reversal and extinction tasks. NeuroReport. 13 (18), 2453-2457 (2002).
- Waford, R. N., Lewine, R. Is perseveration uniquely characteristic of schizophrenia. Schizophrenia Research. 118 (13), 128-133 (2010).
- Waltz, J. A., Gold, J. M. Probabilistic reversal learning impairments in schizophrenia: Further evidence of orbitofrontal dysfunction. Schizophrenia Research. 93 (13), 296-303 (1016).
Przedruki i uprawnienia
