Proteoliposomy są używane do badania oczyszczonych kanałów i transporterów odtworzonych w dobrze zdefiniowanym środowisku biochemicznym. Zilustrowano eksperymentalną procedurę pomiaru wypływu, w którym pośredniczą te białka. Opisano etapy przygotowania proteoliposomów, wykonywania zapisów i analizy danych w celu ilościowego określenia właściwości funkcjonalnych odtworzonego białka.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test wypływu na podstawie proteoliposomów w celu określenia właściwości pojedynczych cząsteczek kanałów i transporterów Cl
W tym artykule
Podsumowanie
Streszczenie
Ostatnie 15 lat charakteryzowało się eksplozją zdolności do nadekspresji i oczyszczania białek błonowych z organizmów prokariotycznych, jak również z eukariontów. Wzrost ten był w dużej mierze spowodowany udanym dążeniem do uzyskania informacji strukturalnych na temat białek błonowych. Jednak zdolność do funkcjonalnego badania tych białek nie rozwija się w tym samym tempie i często ogranicza się do testów jakościowych o ograniczonej wartości ilościowej, ograniczając w ten sposób mechanistyczne wglądy, które mogą dostarczyć. Opisano test do ilościowego zbadania aktywności transportowej odtworzonych kanałów lub transporterów Cl. Test opiera się na pomiarze szybkości wypływu Cl- z proteoliposomów po dodaniu jonoforu K+ walinomycyny w celu bocznikowania potencjału błonowego. Elektroda wrażliwa na jony służy do śledzenia w czasie wypływu jonów z proteoliposomów odtworzonych w pożądanym białku. Metoda ta doskonale nadaje się do badań mechanistycznych, ponieważ pozwala na ilościowe określenie kluczowych właściwości odtworzonego białka, takich jak jego jednostkowa szybkość transportu, frakcja białka aktywnego i masa cząsteczkowa jednostki funkcjonalnej. Test może być również wykorzystany do określenia wpływu związków małocząsteczkowych, które bezpośrednio hamują/aktywują odtworzone białko, a także do testowania modulacyjnego wpływu składu błony lub odczynników modyfikujących lipidy. Tam, gdzie było to możliwe, stwierdzono, że bezpośrednie porównanie wyników uzyskanych przy użyciu tej metody jest w dobrej zgodności z wynikami uzyskanymi przy użyciu metod elektrofizjologicznych. Technika ta została zilustrowana na przykładzie CLC-ec1, wymiennika CLC typu H+/Cl-, jako systemu modelowego. Test wypływu może być wykorzystany do badania dowolnego kanału/transportera przewodzącego Cl i, przy minimalnych zmianach, może być dostosowany do badania dowolnego białka transportującego jony.
Wprowadzenie
W ciągu ostatnich dwóch dekad zdolność do nadekspresji i oczyszczania białek transportujących błonę znacznie wzrosła: kanały jonowe, transportery pierwotne i wtórne są teraz rutynowo oczyszczane z heterologicznych systemów ekspresji, jak również z naturalnych źródeł. Stale opracowywane są nowe podejścia do monitorowania ekspresji, poprawy i ułatwienia ekstrakcji oraz zwiększenia stabilności tych białek 1-5. Te przełomowe odkrycia technologiczne odegrały zasadniczą rolę w wywołaniu eksplozji informacji strukturalnych na poziomie atomowym białek błonowych, co z kolei poszerzyło naszą wiedzę na temat strukturalnych podstaw ich funkcji. W przeciwieństwie do tego, nasza zdolność do badania właściwości funkcjonalnych oczyszczonych białek nie rosła w tym samym tempie, tak że w niektórych przypadkach informacjom strukturalnym o wysokiej rozdzielczości towarzyszą jakościowe dane funkcjonalne, co ogranicza naszą zdolność do ilościowego testowania przewidywań opartych na strukturze. W związku z tym opracowanie ilościowych i uogólnionych testów funkcjonalnych jest kluczowym krokiem w kierunku wyjaśnienia mechanistycznych podstaw funkcji białek błonowych.
Tutaj opisujemy test wypływu, który może być użyty do ilościowego określenia kluczowych właściwości funkcjonalnych oczyszczonych i odtworzonych kanałów i transporterów Cl-. Zasady leżące u podstaw testu można uogólnić na różne systemy transportowe, a także na białka nietransportujące jonów. Liposomy są odtwarzane za pomocą oczyszczonych kanałów / transporterów Cl w obecności dużego gradientu Cl (ryc. 1A, B). Wypływ Cl- jest inicjowany przez dodanie jonoforu, aby umożliwić strumień przeciwjonowy, w naszym przypadku jonofor K+ walinomycynę, który bocznikuje napięcie ustalone przez gradient Cl- i ustawia początkowy potencjał błony na potencjał równowagi K+6,7. Bez jonoforu nie dochodzi do znaczącego wypływu netto Cl-, ponieważ zapobiega mu wytwarzanie potencjału transbłonowego. Dane są ilościowo opisane za pomocą dwóch mierzalnych parametrów (rysunek 1C): τ, stałej czasowej Cl- wypływu, oraz f0, frakcji liposomów niezawierających aktywnego białka. Z τ i f0 można wyprowadzić jednostkową szybkość transportu Cl-, frakcję aktywnych białek i masę cząsteczkową kompleksu aktywnego 8. Technika ta została zilustrowana tutaj przy użyciu proteoliposomów odtworzonych za pomocą CLC-ec1, dobrze scharakteryzowanego wymiennika H+/Cl- typu CLC o znanej budowie i funkcji. Test ten można łatwo uogólnić na kanały lub transportery o różnej selektywności jonowej lub których aktywność zależy od obecności napięcia i / lub ligandów. Ponadto test ten można wykorzystać do określenia, czy małe cząsteczki bezpośrednio wpływają na odtworzone białko, do ilościowego określenia działania tych związków oraz do tego, jak skład błonowy lub odczynniki modyfikujące lipidy wpływają na funkcję odtworzonych kanałów i transporterów.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie lipidów
- Odważ odpowiednią ilość lipidów do przezroczystej probówki szklanej. Należy użyć ekstraktu lipidów polarnych z E. coli, jednak można zastosować większość składów lipidowych. Jeśli lipidy są w formie proszku, resuspender je w chloroformie do stężenia 20 mg/ml. Suszyć lipidy w temperaturze RT pod strumieniem gazu N2 aż do całkowitego odparowania rozpuszczalnika.
- Resuspender lipidy w pentanie i ponownie wysuszyć stałym strumieniem gazu N2, aby usunąć pozostałe ślady chloroformu. Suszyć do całkowitego odparowania rozpuszczalnika. Podczas suszenia delikatnie obracać probówkę, aby lipid utworzył jednolity film pokrywający dolną jedną trzecią probówki, zamiast formować gęstą masę na dnie.
- Dodać bufor do rekonstytucji zawierający detergent (300 mM KCl, 50 mM kwasu cytrynowego, 25 mM K2HPO4, pH 4.5, 35 mM CHAPS), aby rozpuścić lipidy. W przypadku białek o niskiej tolerancji na CHAPS, na tym etapie należy zastosować inne łagodne detergenty.
- Resuspender lipidy do uzyskania klarowności za pomocą sonikatora w kąpieli wodnej. Zanurzyć probówkę w centrum kąpieli sonikatora na maksymalnej mocy, stosując krótkie impulsy (30 sec-1 min) z krótkimi przerwami (30 sec-1 min). Roztwór powinien stać się klarowny.
UWAGA: Końcowy stopień uzyskano klarowności zależy od zastosowanego konkretnego składu lipidów. Na tym etapie możliwa jest również pewna zmienność między partiami, nawet w przypadku nominalnie identycznych lipidów. Pozostała mętność wynika z rozpraszania światła przez duże cząstki w zawiesinie, co można usunąć poprzez wirowanie. - Inkubować resuspenderowane lipidy w temperaturze RT przez 20-60 min.
2. Tworzenie proteoliposomów
UWAGA: W celu wprowadzenia białka solubilizowanego detergentem do liposomów można zastosować kilka strategii. W przypadku CLC-ec1 dobrze sprawdza się dializa i jest ona zatem preferowaną metodą 6,9,10.
- Dodaj oczyszczone białko, aby uzyskać pożądany stosunek białka do lipidów (P/L) (wyrażony w µg białka/mg lipidów). Wybór stosunku P/L zależy od celu eksperymentu.
- Jeśli celem jest ocena aktywności badanego białka, przeprowadź rekonstytucję przy wysokich wartościach P/L, aby zmaksymalizować sygnał, ponieważ każdy liposom zawiera wiele kopii białka. Aby określić aktywność i/lub jednostkową szybkość transportu białka, przeprowadź rekonstytucję w reżimie rozcieńczenia Poissona przy niskich wartościach P/L, tak aby każdy pęcherzyk zawierał średnio 1 białko. Szczegółową analizę zastosowania każdego z tych reżimów przedstawiono w kroku 7 oraz w sekcji Dyskusja.
- Aby wyznaczyć optymalne wartości P/L dla poszczególnych reżimów, przeprowadź pełną miareczkę aktywności w funkcji stężenia białka 8,11-13. Jednak w przypadku każdego białka, dla którego znana jest masa cząsteczkowa (MW, wyrażona w kDa) jednostki aktywnej, jako wstępne szacunki można zastosować następujące wartości P/L:
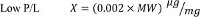
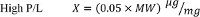
- Wprowadź mieszaninę białka i lipidów do uprzednio namoczonej rurki dializacyjnej lub kasety. Umieść urządzenie dializacyjne w zlewce zawierającej 500-1000x objętość buforu do rekonstytucji lipidów (t.j. 1 L buforu na 1 ml resuspensji lipidów) przy łagodnym mieszaniu.
- Wymień bufor 3-4 razy w odstępach >3 h. Przy każdej wymianie roztworu przemyj kasetę/rurkę oraz zlewkę wodą destylowaną i napełnij zlewkę świeżym buforem do rekonstytucji. Uwzględnij 1-2 interwały nocne (O/N) podczas wymiany roztworu. Dokładna liczba i czas trwania wymian roztworu zależą od zastosowanych lipidów i detergentów.
- Po zakończeniu ostatniego kroku wyjmij liposomy z naczynia dializacyjnego, podziel je na alikwoty w probówkach i zamroź gwałtownie w ciekłym N2 lub zamroź w temperaturze -80 °C.
3. Konfiguracja rejestracji
UWAGA: Układ rejestracyjny (Rysunek 2A) składa się z dwóch komór (cylindrów o płaskim dnie, objętość ~3-4 ml), elektrody Cl- (patrz poniżej), pH-metru z analogowym lub cyfrowym wyjściem elektrycznym, digitaizera oraz komputera z odpowiednim oprogramowaniem akwizycyjnym.
- Podłącz elektrodę Cl- do pH-metru, a wyjście pH-metru do cyfryzatora połączonego z komputerem. Umieść elektrodę odniesienia w jednej komorze, a drut pomiarowy w drugiej (Rysunek 2B).
UWAGA: Polaryzacja przewodów jest poprawna, jeśli wartość ΔVCal (patrz krok 6.4 i 7.2) jest dodatnia. - Umieść komory na mieszalce magnetycznej, wprowadzając mieszadełko do komory pomiarowej (Rysunek 1B). Upewnij się, że mieszadełko nie dotyka elektrody.
- Połącz komory za pomocą mostka agarowego (Rysunek 2B) (100 mM KCl i 2% agarozy). Przechowuj mostki agarowe w 100 mM KCl.
4. Przygotowanie elektrody Cl-
- Należy pobrać starą i – być może – niedziałającą elektrodę pH. Rozbić powłokę szklaną, aby całkowicie odsłonić srebrne druty.
- Ostrożnie usunąć powłokę z srebrnych drutów za pomocą ostrza skalpela. Oczyścić druty, używając obfitych ilości H2O i EtOH.
- Umieścić w nasyconym roztworze FeCl3 (lub wybielaczu), aż druty zostaną pokryte jednolitym, ciemnym nalotem AgCl.
5. Przygotowanie pęcherzyków jednowarstwowych
- W noc poprzedzającą eksperymenty należy namoczyć 1 g kulek Sephadex G-50 w 15 ml buforu zewnętrznego (1 mM KCl, 150 mM K2SO4, 25 mM kwasu cytrynowego, pH 4.5) przy łagodnym wstrząsaniu (nie mieszać) przez co najmniej 3 h w temperaturze pokojowej przed użyciem. Każdy eksperyment wymaga ~3 ml namoczonych kulek. Namoczone kulki można przechowywać w temperaturze 4 °C maksymalnie przez kilka dni.
- Podczas gdy liposomy rozmrażają się w temperaturze pokojowej, do każdej kolumny należy wsypać ~3 ml namoczonych kulek G-50. Pozostawić je do osuszenia poprzez przepływ grawitacyjny w temperaturze pokojowej; zazwyczaj zajmuje to 1-2 min.
- Przygotować pęcherzyki jednowarstwowe, przepuszczając proteoliposomy 11 razy przez Mini-Extruder z użyciem membrany teflonowej o rozmiarze porów 0,4 µm.
- Umieścić kolumnę w plastikowej probówce z okrągłym dnem. Wirować kolumny, aby usunąć nadmiar roztworu. Odwirować przez 20-30 s przy 1 400 x g w wirówce klinicznej.
- Odlać filtrat, umieścić kolumnę w szklanej probówce o wymiarach 13 x 100 mm i dodać do kolumny 100 µl pęcherzyków uzyskanych po ekstruzji. Wirować kolumnę przez 1 min przy 500 x g w wirówce klinicznej.
- Zebrać ~200 µl filtratu, który zostanie dodany do komory pomiarowej w kroku 6.5.
6. Pomiar efektu wypływu
- Wlej 2 ml 100 mM KCl do komory referencyjnej (masy) oraz 1,8 ml buforu zewnętrznego (1 mM KCl, 150 mM K2SO4, 25 mM kwasu cytrynowego, pH 4,5) do komory pomiarowej. Niewielka różnica osmotyczna między roztworami wewnętrznymi a zewnętrznymi nie wpływa na pomiar.
- Uruchom program akwizycji danych. Odczekaj do ustabilizowania się linii bazowej, co może potrwać kilka minut.
- Gdy sygnał osiągnie stabilną linię bazową (liposomy są gotowe, a kolumny suche), rozpocznij rejestrację (Rycina 3A).
- Dodaj 15 µl roztworu 10 mM KCl w celu kalibracji systemu (Rycina 2A).
- Dodaj liposomy. Może wystąpić niewielki przeskok sygnału z powodu niepełnego usunięcia zewnętrznych jonów Cl- z proteoliposomów (Rycina 3A). Odczekaj do ustabilizowania się linii bazowej.
- Dodaj walinomycynę (1 µl w stężeniu 1 mg/ml w EtOH), aby zainicjować odpływ (Rycina 3A).
- Pozostaw odpływ do czasu osiągnięcia plateau (Rycina 3A).
- Dodaj 40 µl 1,5 M β-oktyloglukozydy (β-OG) przygotowanego w buforze zewnętrznym, aby rozpuścić wszystkie liposomy (Rycina 3A). Zakończ rejestrację.
7. Analiza danych
- Wyeksportuj plik zapisu w formacie ascii lub tekstowym i zaimportuj go do wybranego programu analitycznego.
- Zmierz napięcie w następujących punktach (Rycina 3A):
Na początku rejestracji (V0);
Po dodaniu impulsu kalibrującego (Vcal);
Po dodaniu liposomów (Vlipo);
Na koniec wypływu (Vfin);
Po dodaniu detergentu (Vtot);
Ustaw linię bazową napięć tak, aby V0=0. - Użyj równania Nernsta-Planka, aby wyznaczyć wartość eksperymentalną
 poprzez pomiar

Gdzie VolCal to objętość impulsu kalibrującego w µl, 1 800 to objętość komory na początku eksperymentu wyrażona w µl, [Cl]cal/in to stężenia Cl- impulsu kalibrującego oraz buforu zewnętrznego w mM, a ΔVcal to skok w mV zmierzony po impulsie kalibrującym.
UWAGA: To empiryczne wyznaczenie α służy trzem celom: zapewnia prawidłowe działanie systemu, pozwala ocenić powtarzalność odpowiedzi instrumentu między eksperymentami oraz służy do sprawdzenia, czy nie popełniono błędów podczas przygotowywania roztworów. - Oblicz stężenia Cl po każdym etapie w następujący sposób:
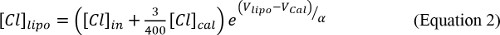


Współczynnik 3/400 wynika z rozcieńczenia 15 µl impulsu kalibrującego w końcowej objętości 2 000 µl. - Oblicz zmiany [Cl] na każdym etapie, ΔCllipo/fin/tot.
- Przelicz V(t) na Cl(t) za pomocą

Wyznacz bezpośrednio wartości [Cl] w punktach krytycznych i porównaj je z wartościami obliczonymi w ramach kontroli wewnętrznej. - Znormalizuj zapis tak, aby Clrellipo=0 i Clreltot=1

- Dopasuj przebieg czasowy wypływu do następującego równania:
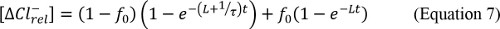
Gdzie L to szybkość przecieku Cl-, wyznaczana eksperymentalnie poprzez pomiar wypływu Cl- z liposomów pozbawionych białek przygotowanych w tych samych warunkach, a τ to stała czasowa procesu. - Oblicz v, prędkość początkową:

Gdzie ΔClfin jest wyrażone w milimolach, a V to objętość komory w μl. - Oblicz szybkość transportu/przewodność

Gdzie p to P/L, a MW to masa cząsteczkowa kompleksu aktywnego wyrażona w kDa
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Opisujemy szczegółowy i niezawodny protokół pomiaru transportu Cl- pośredniczonego przez oczyszczone białko CLC-ec1, prokariotyczny wymiennik H+/Cl- typu CLC, zrekonstytuowany w liposomach. Schematyczna reprezentacja eksperymentu przedstawiona jest na Rysunku 3. Proteoliposomy zrekonstytuowane z oczyszczonym CLC-ec1 i zawierające wysoką wewnętrzną koncentrację Cl- są zanurzone w roztworze kąpieli o niskiej zawartości Cl-. W tych warunkach całkowity o...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Opisaliśmy szczegółowy protokół pomiaru transportu Cl- pośredniczonego przez oczyszczone kanały lub transportery selektywne dla anionów, zrekonstytuowane w liposomach. Jako przykład wykorzystano prokariotyczny wymiennik H+/Cl- CLC-ec1. Metodologia ta może jednak zostać łatwo dostosowana do badania kanałów sterowanych ligandami 12,13,15, napięciem 11,12 lub wykazujących inną selektywność anionową 15,16 poprzez zastąpienie elektrody Ag:AgCl elektrodą odpowie...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów finansowych.
Podziękowania
Ta praca była wspierana przez GM085232 grantowe NIH oraz nagrodę Irma T. Hirschl/ Monique Weill-Caulier Scholar Award (dla AA).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Liposomicator, Avanti Polar Lipids Inc. | Avanti Polar Lipids Inc. | 610200 | |
| IEC Centra CL2 Stacjonarny | Thermo Scientific | ||
| Orion Research Model 701A Cyfrowy miernik | Można je znaleźć w serwisie Ebay. | ||
| Niedziałająca sonda | Każda sonda pH-metru ze srebrnymi drutami będzie działać. Powłokę szklaną/plastikową należy usunąć, a przewody oczyścić. | ||
| Rejestrator danych DI-710 | Instrumenty | ||
| Oprogramowanie do akwizycji WinDAQ | Instrumenty | ||
| Pierce Jednorazowe kolumny plastikowe, przepływ grawitacyjny, 2ml | Pierce (Thermo Scientific) | 29922 | |
| Probówki hodowlane KIMAX, jednorazowe, szkło borokrzemianowe | Kimble Chase | 73500-13100 | |
| Zestaw wytłaczarki z uchwytem/blokiem grzewczym | Avanti Polar Lipids Inc. | Komputer 610000 | |
Bibliografia
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14, 673-681 (2006).
- Drew, D., et al. GFP-based optimization scheme for the overexpression and purification of eukaryotic membrane proteins in Saccharomyces cerevisiae. Nat Protocols. 3, 784-798 (2008).
- Hattori, M., Hibbs, R. E., Gouaux, E. A fluorescence-detection size-exclusion chromatography-based thermostability assay for membrane protein precrystallization screening. Structure. 20, 1293-1299 (2012).
- Almo, S. C., Love, J. D. Better and faster: improvements and optimization for mammalian recombinant protein production. Curr Opin Struct Biol. 26, 39-43 (2014).
- Xiao, S., Shiloach, J., Betenbaugh, M. J. Engineering cells to improve protein expression. Curr Opin Struct Biol. 26, 32-38 (2014).
- Accardi, A., Miller, C. Secondary active transport mediated by a prokaryotic homologue of CLC Cl- channels. Nature. 427, 803-807 (2004).
- Nguitragool, W., Miller, C. Uncoupling of a CLC Cl-/H+ exchange transporter by polyatomic anions. J. Mol. Biol. 362, 682-690 (2006).
- Walden, M., et al. Uncoupling and turnover in a Cl-/H+ exchange transporter. J. Gen. Physiol. 129, 317-329 (2007).
- Accardi, A., Kolmakova-Partensky, L., Williams, C., Miller, C. Ionic currents mediated by a prokaryotic homologue of CLC Cl- channels. J. Gen. Physiol. 123, 109-119 (2004).
- Basilio, D., Noack, K., Picollo, A., Accardi, A. Conformational changes required for H(+)/Cl(-) exchange mediated by a CLC transporter. Nat Struct Mol Biol. 21, 456-463 (2014).
- Lee, S. Y., Letts, J. A., MacKinnon, R. Functional reconstitution of purified human Hv1 H+ channels. Journal of Molecular Biology. 387, 1055-1060 (2009).
- Terashima, H., Picollo, A., Accardi, A. Purified TMEM16A is sufficient to form Ca2+ activated Cl- channels. Proc Natl Acad Sci U S A. 110, 19354-19359 (2013).
- Malvezzi, M., et al. Ca2+-dependent phospholipid scrambling by a reconstituted TMEM16 ion channel. Nature Communications. 4, 2367(2013).
- Picollo, A., Malvezzi, M., Houtman, J. C., Accardi, A. Basis of substrate binding and conservation of selectivity in the CLC family of channels and transporters. Nat Struct Mol Biol. 16, 1294-1301 (2009).
- Eckford, P. D., Li, C., Ramjeesingh, M., Bear, C. E. Cystic fibrosis transmembrane conductance regulator (CFTR) potentiator VX-770 (ivacaftor) opens the defective channel gate of mutant CFTR in a phosphorylation-dependent but ATP-independent manner. J Biol Chem. 287, 36639-36649 (2012).
- Stockbridge, R. B., et al. Fluoride resistance and transport by riboswitch-controlled CLC antiporters. Proc Natl Acad Sci U S A. 109, 15289-15294 (2012).
- Menon, I., et al. Opsin is a phospholipid flippase. Curr Biol. 21, 149-153 (2011).
- Nimigean, C. M., Miller, C. Na+ block and permeation in a K+ channel of known structure. J Gen Physiol. 120, 323-335 (2002).
- Picollo, A., Xu, Y., Johner, N., Bernèche, S., Accardi, A. Synergistic substrate binding determines the stoichiometry of transport of a prokaryotic H(+)/Cl(-) exchanger. Nat Struct Mol Biol. 19, 525-531 (2012).
- Tsai, M. F., Fang, Y., Miller, C. Sided functions of an arginine-agmatine antiporter oriented in liposomes. Biochemistry. 51, 1577-1585 (2012).
- Heginbotham, L., Kolmakova-Partensky, L., Miller, C. Functional reconstitution of a prokaryotic K+ channel. J Gen Physiol. 111, 741-749 (1998).
- Lundbaek, J. A., Collingwood, S. A., Ingólfsson, H. I., Kapoor, R., Andersen, O. S. Lipid bilayer regulation of membrane protein function: gramicidin channels as molecular force probes. J R Soc Interface. 7, 373-395 (2010).
- Lim, H. H., Stockbridge, R. B., Miller, C. Fluoride-dependent interruption of the transport cycle of a CLC Cl(-)/H(+) antiporter. Nat Chem Biol. 9, 712-715 (2013).
- Stockbridge, R. B., Robertson, J. L., Kolmakova-Partensky, L., Miller, C. A family of fluoride-specific ion channels with dual-topology architecture. Elife. 2, e01084(2013).
- Nimigean, C., Shane, T., Miller, C. A cyclic nucleotide modulated prokaryotic K+ channel. J Gen Physiol. 124, 7(2004).
- Brohawn, S. G., del Mármol,, J,, MacKinnon, R. Crystal Structure of the Human K2P TRAAK, a Lipid- and Mechano-Sensitive K+ Ion Channel. Science. 335, 436-441 (2012).
- Jayaram, H., Robertson, J. L., Wu, F., Williams, C., Miller, C. Structure of a slow CLC Cl-/H+ antiporter from a cyanobacterium. Biochemistry. 50, 788-794 (2011).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
