Ten artykuł opisuje technikę używaną do wykonywania dwukanałowego mapowania optycznego w monowarstwach hodowlanych komórek przedsionkowych HL-1. Ten unikalny protokół umożliwia jednoczesną wizualizację zarówno aktywności wapnia (Ca), jak i napięcia (Vm) w tym samym obszarze w celu szczegółowego wykrywania i analizy właściwości elektrofizjologicznych monowarstw kultur.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Dwukanałowe mapowanie optyczne napięcia i wapnia w monowarstwie miocytów przedsionkowych HL-1 z hodowlą
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mapowanie optyczne okazało się cenną techniką wykrywania aktywności elektrycznej serca zarówno na nienaruszonych sercach ex vivo, jak i w monowarstwach hodowlanych miocytów. Komórki HL-1 są szeroko stosowane jako dwuwymiarowy model komórkowy do badania różnych aspektów fizjologii serca. Dużym wyzwaniem było jednak optyczne mapowanie stanów przejściowych wapnia (Ca) i potencjałów czynnościowych jednocześnie z tego samego pola widzenia w hodowlanej monowarstwie komórek przedsionkowych HL-1. Dzieje się tak, ponieważ wymagana jest specjalna obsługa i ostrożność, aby przygotować zdrowe komórki, które można wychwycić elektrycznie i zmapować optycznie. W związku z tym opracowaliśmy optymalny protokół pracy dla dwukanałowego mapowania optycznego. W tym manuskrypcie opisaliśmy szczegółowo, jak przeprowadzić eksperyment z dwukanałowym mapowaniem optycznym. Protokół ten jest użytecznym narzędziem do lepszego zrozumienia propagacji potencjału czynnościowego i kinetyki Ca w rozwoju arytmii.
Wprowadzenie
Unikalna technika dwukanałowego mapowania optycznego wapnia (Ca) i napięcia (Vm)1-5 staje się skutecznym narzędziem do jednoczesnego rejestrowania sygnałów V, m i Ca zarówno w nienaruszonych sercach, jak i w monowarstwach hodowanych komórek. Technika ta umożliwia uzyskanie istotnych informacji na temat związku między stanami przejściowymi wapnia a potencjałami czynnościowymi, aby lepiej zrozumieć mechanizmy elektrofizjologiczne leżące u podstaw arytmii serca.
Monowarstwy hodowlane okazały się użytecznym modelem komórkowym do badania elektrofizjologii serca i mechanizmu leżącego u podstaw arytmii. 4,6-8 komórek HL-1 to dobrze scharakteryzowana linia hodowli miocytów przedsionkowych. Komórki HL-1 utrzymują również unikalnie zróżnicowany genotyp i fenotyp, który obejmuje cechy morfologiczne, elektrofizjologiczne i farmakologiczne dorosłych miocytów przedsionkowych. Komórki te wyrażają geny i białka sercowe, w tym ważne kanały jonowe serca (tj. kanały wapniowe typu L i T)9 oraz dojrzałe izoformy sarkomerowych białek kurczliwych normalnie występujących w dorosłych miocytach przedsionków, jak inne, o których pisaliśmy wcześniej. 10-13 Ponadto komórki HL-1 mogą być hodowane w celu utworzenia dwuwymiarowej (2-D) monowarstwy miocytów. W związku z tym zalety stosowania monowarstw hodowlanych HL-1 obejmują: 1) stosunkowo niższy koszt i łatwiejsze utrzymanie linii hodowli miocytów niż izolowanie i hodowla pierwotnych miocytów noworodków; 2) zlewająca się monowarstwa komórek zmniejsza złożoność strukturalną, która wynika z trójwymiarowej struktury serca; 3) Monowarstwa komórkowa może wyeliminować interferencję zwłóknienia śródmiąższowego, które występuje w nienaruszonym sercu. Można to wykorzystać do analizy określonych funkcji elektrofizjologicznych grupy miocytów bez ingerencji fibroblastów i macierzy śródmiąższowej; 4) Ocena funkcjonalnych konsekwencji manipulacji farmakologicznej lub genetycznej w monowarstwach hodowanych komórek może być skutecznie osiągnięta. Dlatego komórki HL-1 stały się szeroko stosowanym modelem komórkowym do badania różnych aspektów fizjologii miocytów, a także nieprawidłowej aktywności elektrycznej wywołanej stymulacją. 13-16 Jednak do hodowli zdrowych monowarstw komórek, które reagują na zewnętrzną stymulację elektryczną, wymagane jest specjalne obchodzenie się i ostrożność. Ponadto procedura barwienia podwójnym barwnikiem fluorescencyjnym może łatwo uszkodzić integralność monowarstw konfluentnych komórek hodowlanych. W związku z tym wykonanie dwukanałowego mapowania optycznego Vm/CA w hodowanych monowarstwach HL-1 było wielkim wyzwaniem.
Celem tej metody jest dostarczenie kluczowych kroków do skutecznego przeprowadzenia dwukanałowego mapowania optycznego w monowarstwach hodowlanych HL-1. W tym miejscu przedstawiliśmy obszerne informacje na temat zoptymalizowanego protokołu przygotowania monowarstwy komórek HL-1, dwukanałowego mapowania optycznego monowarstwy komórek hodowlanych oraz przetwarzania danych mapowania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie roztworów
- Roztwór norepinefryny (NP)
- Rozpuścić 40 mg NP w 25 ml 30 mM kwasu askorbinowego (0,1475 g kwasu askorbinowego w 25 ml oczyszczonej wody Milli-Q (MQ). Podczas przygotowywania tego roztworu należy unikać bezpośredniej ekspozycji na światło, ponieważ norepinefryna (NP) jest światłoczuła.
- Przefiltrować roztwór NP za pomocą filtra strzykawkowego 0,22 µm. Rozdzielić roztwór do sterylnych mikroprobówek o pojemności 1 ml i przechowywać w temperaturze -20 °C. Po zamrożeniu NP jest stabilna przez jeden miesiąc.
- Uzupełnione pożywki Claycomb do płukania i końcowe
- Do 43,5 ml pożywki Claycomb dodać 5 ml płodowej surowicy bydlęcej (FBS), 0,5 ml penicyliny/streptomycyny, 0,5 ml NP oraz L-glutaminę w rozcieńczeniu 1:100, aby otrzymać 50 ml końcowej uzupełnionej pożywki Claycomb. Podczas przygotowywania tego roztworu należy unikać bezpośredniej ekspozycji na światło, ponieważ pożywka Claycomb jest światłoczuła.
- Przygotować pożywkę Claycomb do płukania według tego samego przepisu co uzupełnioną pożywkę Claycomb, z wyjątkiem dodania 5% FBS oraz pominięcia komponentów NP i L-glutaminy.
UWAGA: Uzupełnione końcowe i płuczące pożywki Claycomb są przydatne przez dwa tygodnie przy przechowywaniu w temperaturze 4 °C bez bezpośredniej ekspozycji na światło.
- Roztwór inhibitora trypsyny sojowej
- Rozpuścić 25 mg inhibitora trypsyny sojowej w 100 ml soli fizjologicznej Dulbecco (PBS) bez jonów Ca i Mg.
- Przefiltrować roztwór za pomocą filtra strzykawkowego 0,22 µm.
UWAGA: Sterylny roztwór jest stabilny przez jeden miesiąc przy przechowywaniu w temperaturze 4 °C.
- Roztwór do powlekania naczyń żelatyną/fibronektyną
- Rozpuścić 0,1 g żelatyny w 500 ml wody MQ, aby otrzymać 0,02% żelatyny.
- Zautoklawować, a następnie rozcieńczyć 1 ml fibronektyny w 199 ml 0,02% żelatyny i delikatnie wymieszać.
- Rozdzielić roztwór żelatyny po 6 ml do osobnych probówek i przechowywać w temperaturze -20 °C.
- Roztwór soli Hanksa
- Przy użyciu mieszadła magnetycznego rozpuścić następujące sole w wodzie MQ (mmol/L): NaCl (136,9), KCl (5,366), KH2PO4 (0,4409), NaH2PO4 (0,4000), MgSO4 (0,8142), D-Glc (5,051), NaHCO3 (4,162), HEPEs (5,042), CaCl2 (1,261).
- Roztwór barwnika wrażliwego na wapń (Rhod2)
- Rozpuścić 1 mg proszku Rhod2 w 400 μl 20% Pluronic F-127 w DMSO, aby przygotować roztwór zapasowy barwnika Rhod2, i przechowywać w temperaturze -20 °C.
- Przed rozpoczęciem eksperymentu rozcieńczyć ten roztwór zapasowy 1:1000 roztworem soli Hanksa, aby przygotować końcowy roztwór roboczy.
- Roztwór barwnika wrażliwego na napięcie (Rh237)
- Rozcieńczyć 5 mg Rh237 w 2 ml DMSO, aby przygotować roztwór zapasowy, i przechowywać w temperaturze -20 °C. Przed rozpoczęciem eksperymentu rozcieńczyć roztwór zapasowy 1:1000 roztworem soli Hanksa, aby przygotować końcowy roztwór roboczy.
UWAGA: Roztwory 1-4 zostały przygotowane na podstawie protokołu hodowli komórek Claycomb HL-1 z niewielkimi modyfikacjami.
2. Pasażowanie i hodowla kardiomiocytów przedsionkowych HL-1 na szkiełkach podstawowych
UWAGA: Komórki HL-1 można otrzymać od dr. Claycomba (Louisiana State University).
- Hodować komórki HL-1 w kolbach T25, codziennie dostarczając 5 ml uzupełnionego Claycomb Medium. Przesiewać komórki w kolbach T25 co pięć dni zgodnie z protokołem hodowli komórek Claycomb HL-1 (opisanym poniżej)10.
- Umieścić okrągłe szkiełka nakrywkowe (średnica 20 mm) w 12-dołkowych płytkach hodowlanych na 24 h przed pełną konfluencją komórek w kolbie T25 i ich gotowością do przesiewania, a następnie pokryć szkiełka żelatyną/fibronektyną i inkubować przez noc w 37 °C.
- Następnego dnia odessać i usunąć żelatynę/fibronektynę z płytek hodowlanych i zastąpić ją 1,5 ml uzupełnionego Final Claycomb medium w każdym dołku.
- Rozdzielić komórki z kolby hodowlanej T25 po osiągnięciu pełnej konfluencji w 5. dniu. Odessać medium z kolby T25 zawierającej konfluentną hodowlę i krótko przepłukać hodowlę PBS w 37 °C.
- Odessać PBS i dodać 3 ml 0,05% trypsyny/EDTA w 37 °C, pipetując trypsynę/EDTA na dno kolby T25, aby uniknąć bezpośredniego kontaktu z komórkami. Inkubować w 37 °C przez 1 min.
- Usunąć trypsynę/EDTA poprzez odessanie i dodać kolejne 1,3 ml trypsyny/EDTA na każdą kolbę T25. Inkubować w temperaturze pokojowej przez 1 min. Sprawdzić pod mikroskopem i jeśli komórki nadal przylegają do kolby, opukać ją, aby całkowicie odłączyć pozostałe komórki.
- Dodać 1,3 ml inhibitora trypsyny z soi do komórek i przenieść komórki z kolby do probówki wirówkowej 15 ml. Przepłukać pustą kolbę 5 ml Wash Claycomb medium. Dodać płuczkę do komórek w probówce wirówkowej 15 ml. Wirować przy 500 x g przez 5 min.
- Po wirowaniu odessać nadsącz i delikatnie resuspendować osad komórkowy w 6 ml uzupełnionego Final Claycomb medium.
- Zasiać w każdym dołku płytki 12-dołkowej 0,5 ml zawiesiny komórkowej z przesiewania. Codziennie dostarczać komórkom świeże uzupełnione Final Claycomb medium.
UWAGA: Ściśle monitorować wzrost komórek; zazwyczaj monowarstwy komórkowe osiągają stan konfluencji w 4. dniu, a spontaniczna aktywność pozostaje widoczna. Wówczas hodowana monowarstwa będzie gotowa do mapowania optycznego w 4-5 dniu.
3. Obciążanie komórek barwnikami wrażliwymi na wapń i napięcie
- W celu przeprowadzenia badań mapowania optycznego, ostrożnie usuń szkiełko podstawowe z 12-dołkowej płytki do hodowli komórkowej i wypłucz je roztworem soli Hanksa.
- Aby zabarwić komórki barwnikiem Rhod2 czułym na Ca, inkubuj monowarstwę komórek na szkiełku w 3 ml natlenionego (napowietrzonego gazem 5% CO2/95% O2 ) roztworu roboczego Rhod2 w temperaturze 37 °C w łaźni wodnej przez 30 min.
- Aby zabarwić komórki barwnikiem Rh237 czułym na Vm, zanurz monowarstwę komórek załadowaną barwnikiem Rhod2 w 3 ml natlenionego roztworu roboczego Rh237 w temperaturze 37 °C w łaźni wodnej przez kolejne 15 min.
4. Dwukanałowe mapowanie optyczne
- Umieść monowarstwę komórek, poddaną podwójnemu barwieniu barwnikami Vm i Ca, w komorze perfuzyjnej na odwróconym mikroskopie fluorescencyjnym. Użyj podgrzewanego systemu cyrkulacyjnego, aby utrzymać temperaturę w komorze z komórkami na poziomie 35 ± 1 °C. Precyzyjnie kontroluj temperaturę perfuzatu, regulując prędkość przepływu cyrkulacyjnego przez komorę, aby uniknąć gradientu temperatury przekraczającego 0,3 °C w obrębie komory.
- Przed rejestracją sygnałów Vm/Ca przemyj monowarstwę komórek świeżym roztworem Hanksa przez około 5 min, aby usunąć pozostałości barwnika z poprzednich etapów barwienia.
- Stymuluj zdrowe monowarstwy komórek za pomocą elektrody bipolarnej, składającej się z pipety szklanej wypełnionej roztworem soli Hanksa oraz srebrnego drutu owiniętego wokół końcówki pipety, zgodnie z wcześniejszym opisem12,17.
- Stymuluj zdrowe monowarstwy komórek z długością cyklu 200-500 msec i szerokością impulsu 2 msec, zakładając próg stymulacji na poziomie około 1 mV.
UWAGA: Dla każdej partii hodowanych monowarstw należy użyć co najmniej dwóch monowarstw niepoddanych działaniu czynników testowych, aby sprawdzić stan partii komórek. Zdrowe monowarstwy kontrolne powinny być podatne na przechwycenie rytmu poprzez stymulację elektryczną przy długościach cyklu 200-500 msec. Jeśli stymulacja elektryczna monowarstw kontrolnych okaże się nieskuteczna, sugeruje to, że cała partia komórek może być nieodpowiednia do eksperymentów z mapowania optycznego. - W celu wzbudzenia barwników czułych na Vm i Ca użyj źródła światła LED (długość fali 520 nm) połączonego z filtrem wzbudzenia (510 nm/40) i lustrem dichroicznym (561 nm).
- Zbierz sygnały fluorescencyjne emitowane przez komórki za pomocą obiektywu 40X i rozdziel je lustrem dichroicznym (594 nm) na komponent Vm oraz komponent Ca. Przefiltruj światło emitowane w kanale Vm za pomocą filtra długoprzepustowego (700 nm), a światło emitowane w kanale Ca za pomocą filtra pasmowo-przepustowego (585/40 nm).
- Zbierz przefiltrowane światło fluorescencyjne przy użyciu dwóch kamer CCD (80 x 80 pikseli, 1 000 fps; RedShirt Imaging).
- Aby uniknąć fotobleachingu barwnika, dokonuj pomiarów przez mniej niż 2 sec dla każdego pola widzenia, aby ograniczyć czas ekspozycji na światło. W tym przypadku zazwyczaj obrazuje się cztery różne obszary dla każdej monowarstwy.
5. Przetwarzanie danych z rejestracji Vm lub Ca
- Dla sygnałów Vm i Ca (80 x 80 pikseli), uśrednij wartości intensywności dwudziestu pięciu (5 x 5) sąsiednich pikseli do jednej wartości intensywności w różnych punktach czasowych rejestracji, aby zredukować szum tła.
UWAGA: Po uśrednieniu danych, każdy punkt czasowy rejestracji pojedynczego potencjału czynnościowego lub przejściowego wzrostu Ca generuje macierz danych zawierającą 16 x 16 uśrednionych wartości intensywności (uśrednione kanały danych) z rozdzielczością przestrzenną 50 μm. - Zdefiniuj czas aktywacji (AT) zarejestrowanych sygnałów Vm lub Ca.
- Aby zdefiniować czas aktywacji (AT) pojedynczego potencjału czynnościowego lub przejściowego wzrostu Ca, wyznacz czas osiągnięcia 50% amplitudy szczytowej sygnałów Vm lub Ca, korzystając z autorskiego algorytmu opracowanego w programie MATLAB, zgodnie z wcześniejszym opisem.12
- Ręcznie sprawdź przeanalizowane wartości AT, aby wyeliminować ewentualne błędy, które mogły wystąpić podczas analizy programowej.
- Zapisz zdefiniowaną macierz AT (16 x 16 uśrednionych kanałów danych) odpowiednio dla zarejestrowanego potencjału czynnościowego i przejściowego wzrostu wapnia w używanym oprogramowaniu.
- Oblicz wektory prędkości przewodzenia (CV) potencjału czynnościowego lub przejściowego wzrostu wapnia w macierzy AT, stosując metodę analizy pola wektorowego zgodnie z wcześniejszym opisem z niewielkimi modyfikacjami12,18.
- Oblicz wektor CV kanału danych w stosunku do otaczających go punktów danych AT (5 × 5 sąsiednich uśrednionych kanałów danych), aby zasymulować gładką powierzchnię wielomianową czasów aktywacji (powierzchnia AT), używając algorytmu najmniejszych kwadratów w programie MATLAB12,18.
- Oblicz wektor przewodzenia, korzystając z poniższych wzorów
Wzór 1:
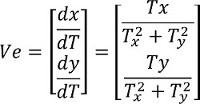
Wzór 2:
θ = arctan [(dy/dT)/(dx/dT)]
UWAGA: Ve to wektor CV rzutowany na osie x i y; dx/dT to rzut wektora CV na oś x; dy/dT to rzut wektora CV na oś y. T to powierzchnia AT; x, y odnoszą się do współrzędnych 2D; Tx = ∂T/∂x to pochodna cząstkowa T względem x; Ty = ∂T/∂y to pochodna cząstkowa T względem y; θ to ostateczny kierunek wektora CV. - Pogrupuj wszystkie wektory macierzy AT w 36 ścieżek, z których każda obejmuje sektor dziesięciu stopni na kompasie.
- Wybierz ścieżkę zawierającą największą populację wektorów CV spośród 36 ścieżek przewodzenia. Oblicz średnią wartość CV dla tej ścieżki, aby reprezentowała ona CV monowarstwy.
6. Wizualizacja propagacji frontu fali
- Znormalizuj intensywność sygnału pojedynczego potencjału czynnościowego lub przejściowego wzrostu stężenia Ca w różnych punktach czasowych pomiaru w odniesieniu do jego wartości szczytowej, korzystając z oprogramowania MATLAB.
- Przechowuj tymczasowo znormalizowane dane intensywności dla każdego zarejestrowanego punktu czasowego w macierzy intensywności o wymiarach 16 x 16 w używanym oprogramowaniu MATLAB.
- Stwórz kolorową mapę intensywności z zapisanej macierzy intensywności dla każdego punktu czasowego pomiaru, korzystając z funkcji surf.m.
UWAGA: Na mapie intensywności kolor czerwony oznacza wysoką intensywność sygnałów Vm lub Ca, a kolor niebieski odzwierciedla niską intensywność sygnałów fluorescencyjnych. - Utwórz plik .avi, korzystając z funkcji avifile.m.
- Zapisz wszystkie mapy intensywności dla różnych punktów czasowych pomiaru potencjału czynnościowego lub przejściowego wzrostu stężenia Ca, korzystając z funkcji addframe.m.
UWAGA: Na tym etapie zostaną wygenerowane dwa oddzielne pliki avi obrazujące propagację Vm oraz Ca.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Kulturowana warstwa pojedyncza o charakterze konfluentnym wykazuje regularny rytm wewnętrzny, co zaprezentowano w Filmie 1. Następnie przeprowadzono dwukanałowe mapowanie optyczne Vm/Ca w pełni konfluentnej warstwie pojedynczej HL-1. Rysunek 1A przedstawia przykładowe zapisy sygnałów Vm i Ca z zarejestrowanego pojedynczego skurczu. Reprezentatywne mapy izochroniczne jednorodnie propagowanych sygnałów Vm i Ca, uzyskane za pomocą dwukanałowego systemu mapow...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W artykule opisano kluczowe aspekty mapowania optycznego w hodowli monowarstwy miocytów przedsionków HL-1 barwionej barwnikami fluorescencyjnymi wrażliwymi na wapń i napięcie. Obejmuje to hodowlę optymalnej monowarstwy komórek HL-1, konfigurację sprzętu do mapowania, mapowanie monowarstwy hodowlanej i analizę danych.
Aby skutecznie mapować hodowane komórki, kluczem jest przygotowanie równomiernie rozłożonej monowarstwy komórkowej. Podczas wysiewania komórek na szkiełkach nakrywkowych należy pa...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie stwierdzono konfliktu interesów.
Podziękowania
Chcielibyśmy podziękować Dr. Claycombowi za dostarczenie komórek HL-1 i szczegółowy protokół konserwacji. Chcielibyśmy również podziękować Pani Elenie Carrillo i dr Sethowi Robii za ich pomoc w wygenerowaniu filmu o komórce oraz Panu Pete'owi Caronowi za pomoc w wykonaniu akcesoriów do naszego dwukanałowego systemu mapowania optycznego.
Ta praca była wspierana przez American Heart Association (10GRNT3770030 & 12GRNT12050478 do XA), National Institutes of Health (HL113640 do XA) oraz Loyola University Research Development Fund (do XA).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Rhod2 suchy proszek | AAT Bioquest | 21062 | |
| pluroniczny | AAT Bioquest | 20050 | |
| DMSO | Sigma 276855 | ||
| Rh237 | Invitrogen | S-1109 | |
| NaCl | Sigma | S7653 | |
| KCl | Sigma | P3911 | |
| KH2PO4 | Sigma | P0662 | |
| NaH2PO4 | Sigma | S9638 | |
| MgSO4 | Sigma | M7506 | |
| D-Glucose | Sigma | G8270 | |
| NaHCO3 | Sigma | S6014 | |
| CaCl2 | Sigma | C3881 | |
| HEPEs | Sigma | H3375 |
Bibliografia
- Efimov, I. R., Nikolski, V. P., Salama, G. Optical imaging of the heart. Circ Res. 95 (1), 21-33 (2004).
- Salama, G., Hwang, S. M., et al. Simultaneous optical mapping of intracellular free calcium and action potentials from Langendorff perfused hearts. Current protocols in cytometry / editorial board, J. Paul Robinson, managing editor ... [et al.]. 12 (Unit 12 17), (2009).
- Laurita, K. R., Singal, A. Mapping action potentials and calcium transients simultaneously from the intact heart. Am J Physiol Heart Circ Physiol. 280 (5), H2053-H2060 (2001).
- Fast, V. G. Simultaneous optical imaging of membrane potential and intracellular calcium. J Electrocardiol. 38 (4 Suppl), 107-112 (2005).
- Sowell, B., Fast, V. G. Ionic mechanism of shock-induced arrhythmias: role of intracellular calcium. Heart Rhythm. 9 (1), 96-104 (2012).
- Fast, V. G., Kleber, A. G. Microscopic conduction in cultured strands of neonatal rat heart cells measured with voltage-sensitive dyes. Circ Res. 73 (5), 914-925 (1993).
- Hou, L., et al. A major role for HERG in determining frequency of reentry in neonatal rat ventricular myocyte monolayer. Circ Res. 107 (12), 1503-1511 (2010).
- Beauchamp, P., et al. Relative contributions of connexins 40 and 43 to atrial impulse propagation in synthetic strands of neonatal and fetal murine cardiomyocytes. Circ Res. 99 (11), 1216-1224 (2006).
- Xia, M., et al. Functional expression of L- and T-type Ca2+ channels in murine HL-1 cells. J Mol Cell Cardiol. 36 (1), 111-119 (2004).
- Claycomb, W. C., et al. HL-1 cells: a cardiac muscle cell line that contracts and retains phenotypic characteristics of the adult cardiomyocyte. Proc Natl Acad Sci U S A. 95 (6), 2979-2984 (1998).
- Fahrenbach, J. P., Ai, X., Banach, K. Decreased intercellular coupling improves the function of cardiac pacemakers derived from mouse embryonic stem cells. J Mol Cell Cardiol. 45 (5), 642-649 (2008).
- Yan, J., et al. c-Jun N-terminal kinase activation contributes to reduced connexin43 and development of atrial arrhythmias. Cardiovasc Res. 97 (3), 589-597 (2013).
- White, S. M., Constantin, P. E., Claycomb, W. C. Cardiac physiology at the cellular level: use of cultured HL-1 cardiomyocytes for studies of cardiac muscle cell structure and function. Am J Physiol Heart Circ Physiol. 286 (3), H823-H829 (2004).
- Yang, Z., Shen, W., Rottman, J. N., Wikswo, J. P., Murray, K. T. Rapid stimulation causes electrical remodeling in cultured atrial myocytes. J Mol Cell Cardiol. 38 (2), 299-308 (2005).
- Brundel, B. J., Kampinga, H. H., Henning, R. H. Calpain inhibition prevents pacing-induced cellular remodeling in a HL-1 myocyte model for atrial fibrillation. Cardiovasc Res. 62 (3), 521-528 (2004).
- Umapathy, K., et al. Electrogram fractionation in murine HL-1 atrial monolayer model. Heart Rhythm. 5 (7), 1029-1035 (2008).
- Fast, V. G., Cheek, E. R. Optical mapping of arrhythmias induced by strong electrical shocks in myocyte cultures. Circ Res. 90 (6), 664-670 (2002).
- Bayly, P. V., et al. Estimation of conduction velocity vector fields from epicardial mapping data. IEEE Trans Biomed Eng. 45 (5), 563-571 (1998).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
