Podczas rozwoju móżdżku po urodzeniu, niedojrzałe komórki ziarniste pochodzące ze strefy zarodkowej wykazują różne sposoby migracji, aby dotrzeć do miejsca docelowego i ustanowić sieci neuronowe. Protokół ten opisuje przygotowanie wycinków móżdżku i konfokalne podejście makroskopowe stosowane do badania czynników regulujących migrację neuronów.
Artykuł metodologiczny
Ex vivo Obrazowanie pourodzeniowej migracji komórek ziarnistych móżdżku za pomocą makroskopii konfokalnej
W tym artykule
Podsumowanie
Streszczenie
Podczas rozwoju postnatalnej, niedojrzałe komórki ziarniste (pobudzające interneurony) wykazują migrację styczną w zewnętrznej warstwie ziarnistej, a następnie migrację promieniową w warstwie molekularnej i warstwie komórek Purkinjego, aby dotrzeć do wewnętrznej warstwy ziarnistej kory móżdżku. Niewypłacalność w procesach migracyjnych indukuje śmierć komórki lub niewłaściwe rozmieszczenie neuronów, co prowadzi do deficytów w różnych funkcjach móżdżku. Migracja komórek ziarnistości dośrodkowej obejmuje kilka mechanizmów, takich jak chemotaksja i degradacja macierzy zewnątrzkomórkowej, aby skierować komórki w kierunku ich ostatecznej pozycji, ale czynniki regulujące migrację komórek w każdej warstwie korowej są znane tylko częściowo. W naszej metodzie ostre plastry móżdżku są przygotowywane ze szczurów P10, komórki ziarniste są znakowane fluorescencyjnym markerem cytoplazmatycznym, a tkanki są hodowane na wkładkach błonowych od 4 do 10 godzin przed rozpoczęciem monitorowania migracji komórek w czasie rzeczywistym za pomocą makroskopii konfokalnej w temperaturze 37 °C w obecności CO2 . Podczas migracji w różnych warstwach korowych móżdżku komórki ziarniste mogą być narażone na działanie agonistów lub antagonistów neuropeptydów, inhibitorów proteazy, blokerów efektorów wewnątrzkomórkowych, a nawet substancji toksycznych, takich jak alkohol lub metylortęć, w celu zbadania ich możliwej roli w regulacji migracji neuronów.
Wprowadzenie
W rozwijającym się móżdżku, osiem różnych typów neuronów jest wytwarzanych sekwencyjnie między drugim tygodniem embrionalnym a drugim tygodniem po urodzeniu u gryzoni1. Niedojrzałe komórki ziarniste (GC), pochodzące początkowo z pierwotnej strefy rozrodczej, są ostatnimi neuronami wytwarzanymi z zewnętrznej warstwy ziarnistej (EGL), wtórnej strefy rozrodczej2. W ciągu pierwszych trzech tygodni po urodzeniu kora móżdżku jest ulistnioną strukturą zorganizowaną w czterech warstwach, w tym EGL, warstwę molekularną (ML), warstwę komórek Purkiniego (PCL) i wewnętrzną warstwę ziarnistą (IGL) (ryc. 1). Poprzez migrację dośrodkową niedojrzałe GK, interneurony glutaminergiczne, docierają do IGL w ciągu około 2 dni. W trzecim tygodniu po urodzeniu EGL zanika, a IGL tworzy tak zwaną warstwę ziarnistą (GL) w dorosłym móżdżku. W GL GC GC otrzymują pobudzające wejścia synaptyczne z włókien omszałych i jednobiegunowych komórek szczoteczki oraz hamujące wejścia synaptyczne z aksonów komórek Golgiego. W ML aksony GC tworzą synapsy pobudzające z neuronami GABA-ergicznymi, w tym komórkami Purkinjego, komórkami koszyczkowymi, komórkami gwiaździstymi i komórkami Golgiego2.
Obserwacja w czasie rzeczywistym ruchu komórek w ostrych wycinkach móżdżku uzyskanych od gryzoni po urodzeniu pokazuje, że GC zmieniają swój kształt równocześnie ze zmianami w modalności i szybkości migracji podczas ich trasy w korze móżdżku3. W ciągu pierwszych dwóch tygodni po urodzeniu prekursory GC aktywnie namnażają się w górnej części EGL. W środkowej części EGL postmitotyczne GC migrują stycznie w kierunku swojego większego procesu. Na granicy EGL-ML GC spowalniają swój ruch, komórki zaczynają wchodzić w krótki pionowy proces opadania do ML. W ML GC mają pionowo wydłużony korpus komórki, cienki proces końcowy i bardziej obszerny proces wiodący i migrują promieniście wzdłuż włókien glejowych Bergmanna. W PCL GC zatrzymują swój ruch, ale po dłuższej fazie postoju (2 godziny) przekraczają granicę PCL-IGL. W IGL GC migrują w kierunku dolnej części warstwy przy braku podparcia włókien glejowych. Gdy końcówki procesu prowadzącego zbliżą się do granicy IGL-istota biała (WM), GC zwalniają i zatrzymują swój ruch. Przekroje poprzeczne móżdżku są preferowane do badań migracji stycznej w EGL, podczas gdy plastry strzałkowe są dedykowane do migracji promieniowej w ML, PCL i IGL. Do tej pory zidentyfikowano pewne czynniki regulujące ruchy GC, w tym neuropeptydy (np. somatostatyna, PACAP), ale pełne mechanizmy zaangażowane w czasoprzestrzenną kontrolę migracji GC w każdej warstwie korowej są nadal w dużej mierze nieznane1,4,5,6.
Migracja GC była badana w ciągu ostatnich 20 lat za pomocą mikroskopii wideo- i konfokalnej przy użyciu oświetlenia światłem przechodzącym dla izolowanych komórek hodowlanych lub wykrywania fluorescencji dla ostrych wycinków móżdżku. Początkowo lipofilowe DiI, a ostatnio barwniki "Cell Tracker" i białka fluorescencyjne wyrażane w komórkach były używane do mikroskopii konfokalnej lub dwufotonowej7,8. Udane eksperymenty zależą od wielu konkretnych procedur, które sprawiają, że protokół jest prosty, ale nie łatwy. W szczególności ostre plastry muszą być stabilizowane podczas obserwacji, na ogół za pomocą domowej roboty siatki nylonowej9. Intensywność oświetlenia świetlnego musi być jak najniższa, aby uniknąć fototoksyczności i fotowybielania, jak proponuje podejście wielopunktowego skaningowego mikroskopu konfokalnego. Ponadto temperatura i CO2 są kluczowymi parametrami środowiskowymi, ponieważ niestabilność może wpływać na migrację neuronów. Aby ułatwić i udoskonalić procedury eksperymentalne, opracowaliśmy protokół makroskopii konfokalnej, który ogranicza ruchy warstw, zapewnia stałe parametry środowiskowe, zmniejsza fotobielenie, zwiększa pole widzenia (rzędu milimetrów), a co za tym idzie liczbę komórek (kilkadziesiąt), które można śledzić za pomocą analizy obrazu. W ten sposób plastry o grubości 180 μm są hodowane na wkładkach membranowych, a płytki 6-dołkowe są bezpośrednio przenoszone pod zmotoryzowany obiektyw 2X komercyjnego makrokopu konfokalnego wyposażonego w dużą komorę inkubacyjną, regulatory temperatury i CO2 oraz system kontroli wibracji. Time-lapsy i z-stacki są następnie wykonywane przez kilka godzin, a narzędzia farmakologiczne lub cząsteczki bioaktywne mogą być dodawane lub dostarczane w pożywce inkubacyjnej. Metoda ta może być również zaadaptowana do badania migracji innych typów neuronów w móżdżku lub mózgu na różnych etapach rozwoju.
Protokół
Zwierzęta (samce lub samice szczurów rasy Wistar) urodziły się i były hodowane w akredytowanym ośrodku dla zwierząt (zatwierdzenie B.76-451-04), zgodnie z francuskim przewodnikiem dotyczącym opieki i użytkowania zwierząt laboratoryjnych. Eksperymenty przeprowadzono pod nadzorem uprawnionych badaczy (M.B, D.V. i L.G.) zgodnie z Dyrektywą Rady Wspólnoty Europejskiej (2010/63/UE z dnia 22 września 2010 r.) oraz francuskim Ministerstwem Rolnictwa.
1. Przygotowanie mediów i narzędzi
- W komorze bezpieczeństwa biologicznego przygotować 1x BSS Hanka (HBSS) w sterylnej wodzie z 10x roztworu podstawowego zawierającego CaCl2 (1,85 g/l) / MgSO4 (0,9767 g / l) bez MgCl2. Dodać NaHCO3 (350 μg/ml) do 1x roztwór HBSS.
- W komorze bezpieczeństwa biologicznego dodać suplement N2 (ze 100-krotnego roztworu podstawowego) i roztwór penicyliny (100 jednostek/ml) -streptomycyny (0,1 mg/ml) do zmodyfikowanej mieszanki składników odżywczych F-12 (1: 1) firmy Dulbecco (DMEM).
- W sterylnych warunkach przygotować podwielokrotność (25 μl, 2 mM) cytoplazmatycznego barwnika fluorescencyjnego o nazwie Cell Tracker Green w DMSO (1,075 ml na 1 mg). Rozcieńczyć jedną podwielokrotność w 5 ml DMEM w stożkowej probówce o pojemności 15 ml.
- Przygotuj napełnione wiaderko na lód, aby utrzymać podłoże w temperaturze 4 °C.
- Odkażaj blaty stołów laboratoryjnych i narzędzia za pomocą 70% etanolu.
2. Sekcja móżdżku od szczurów P10
- Szybko odetnij głowę szczeniętom szczura (P10) za pomocą zakrzywionych nożyczek operacyjnych za uszami, aby uzyskać początek rdzenia kręgowego.
- Z tyłu odciętej głowy wykonaj nacięcie w linii środkowej skóry od szyi do nosa za pomocą cienkich nożyczek do tęczówki i oddziel skórę od czaszki cienkimi nożyczkami do tęczówki i kleszczami Dumont #3.
- Użyj cienkich nożyczek do tęczówki, aby delikatnie wykonać dwa boczne nacięcia od podstawy do obszaru rostralnego czaszki. Usuń wypreparowaną czaszkę za pomocą dwóch kleszczy #3. Odłącz mózg od wszelkich przylegających do czaszki za pomocą tych samych kleszczy.
- Przenieść mózg końcówką łyżki szpatułki na szalkę Petriego (Ø 35 mm) zawierającą 2 ml lodowatego podłoża HBSS.
- Umieścić szalkę Petriego zawierającą mózg na większej szalce Petriego (Ø 100 mm) wypełnionej lodem i przenieść do stolika stereomikroskopu.
- Pod mikroskopem stereoskopowym wyizoluj móżdżek od mózgu poprzez dylatację za pomocą dwóch kleszczy #3. Podobnie należy usunąć resztki rdzenia kręgowego i błony szklanej.
- Przenieść móżdżek do nowej szalki Petriego wypełnionej HBSS (Ø 35 mm, 2 ml) za pomocą łyżki szpatułki i trzymać na lodzie.
3. Przygotowanie ostrych plastrów móżdżku
- Pod mikroskopem stereoskopowym przetnij móżdżek między robakiem a prawą półkulą, jak wskazuje strzałka z dwiema głowicami na rysunku 2A, za pomocą standardowej rękojeści skalpela #3 solidnej i ostrza chirurgicznego #15.
- Nałóż jedną kroplę kleju cyjanoakrylowego na krążek próbki wibratomu i odczekaj 15-25 sekund, aby wyeliminować toksyczne opary rozpuszczalnika.
- Zbierz przecięty móżdżek łyżką szpatułki i usuń nadmiar HBSS czystymi ręcznikami papierowymi.
- Zbliż móżdżek do krążka próbki. Przymocuj przyciętą krawędź do tarczy próbki i odczekaj 10 sekund.
- Włóż krążek z próbką do tacki buforowej z manipulatorem i obróć go tak, aby oś poprzeczna móżdżku była prostopadła do uchwytu noża. Zamocuj krążek z próbką za pomocą klucza imbusowego i delikatnie napełnij tackę buforową pożywką HBSS, aż móżdżek zostanie pokryty.
- Załaduj pokruszony lód do kąpieli chłodzącej.
- Wyczyść ostrze trzy razy 70% etanolem, aby usunąć olej.
- Włóż ostrze do uchwytu noża i zabezpiecz śrubą mocującą.
- Umieść krawędź ostrza tuż za tylną krawędzią (z punktu widzenia użytkownika) próbki i zdefiniuj ją jako punkt początkowy. Użyj polecenia forward, aby zdefiniować punkt końcowy za przednią krawędzią próbki.
- Wybierz prędkość cięcia na 2,5 i częstotliwość cięcia na 8. Wybierz grubość przycinania na 180 μm. Rozpocznij sekcję tkanek.
- Pobrać każdą sekcję za pomocą szklanej pipety Pasteura o szerokim otworze i przelać na płytkę Petriego zawierającą HBSS (Ø 35 mm) trzymaną na lodzie.
- Używając dwóch kleszczy #5, ostrożnie usuń opony mózgowe z móżdżku, gdy ingerujesz w ostrze. Zbierz maksymalnie 5 plasterków na móżdżek (ryc. 2B, C).
- Ostrożnie usuń opony mózgowe z plastrów móżdżku za pomocą dwóch kleszczy #5 pod mikroskopem stereoskopowym i delikatnie oddziel zraziki, aby lepiej obciążyć sondę.
4. Barwienie fluorescencyjne żywych interneuronów
- Przenieś plastry móżdżku za pomocą szklanej pipety Pasteura o szerokim otworze na płytkę 6-dołkową (maks. 3 plastry/na dołek). Odessać pożywkę HBSS.
- Inkubować plastry (maksymalnie 3 szt.) w 5 ml roztworu nasycającego barwnik fluorescencyjny (10 μM).
- Aby chronić przed światłem, przykryj mikropłytkę folią aluminiową. Umieść go na ruchomym stole żyroskopowym z prędkością 35 obr./min na 10 minut przy temperaturze pokojowej, aby ułatwić etykietowanie komórek.
- Przenieś plastry na membranę wkładu Transwell (wielkość porów 3,0 μm; Rysunek 2D) z pipetą Pasteura o szerokim otworze szklanym, ściętą. Zassać pożywkę za pomocą pipety.
- Wyjąć wkładkę i napełnić studzienkę 1,9 ml DMEM. Załóż wkładkę i dodaj 100 μl DMEM na wierzch plasterka, aby przykryć chusteczkę.
- Umieścić płytkę zawierającą wkładki hodowlane w komorze inkubatora (37 °C, 5% CO2) na 2 godziny, co wystarcza do zaobserwowania GC w ML. Ułóż tkanki płasko, aby umożliwić przyczepienie do membrany inkubatora (ryc. 2E). Upewnij się, że plastry nie wysychają.
5. Obrazowanie ex vivo za pomocą makroskopii konfokalnej
- Przenieś płytkę bez plastikowej pokrywki do inkubatora przymocowanego do statywu makroskopu konfokalnego. Umieść szklaną osłonę na wkładce płytki makroskopu. Utrzymuj temperaturę komory na poziomie 37,0 °C ± 0,5 °C i dostarczaj plastry ze stałym przepływem gazu (95%O2, 5% CO2) przez wkładkę płyty, aby utrzymać stałe pH. Poczekaj dodatkowe 2 godziny przed eksperymentem poklatkowym.
- Aby zobrazować migrację GC w wycinkach tkanki, należy oświetlić preparat światłem o długości fali 488 nm za pomocą diody laserowej za pomocą konfokalnego makroskopu skaningowego laserowego wyposażonego w suchy obiektyw X2 (odległość robocza: 39 mm, średnica: 58 mm, NA = 0,234) i wykryć emisję fluorescencji od 500 do 530 nm.
- Aby precyzyjnie określić ruch GC, należy uzyskać obrazy z dodatkowym współczynnikiem powiększenia optycznego od 1,5 do 2,0. Zbieraj obrazy GN w jednej płaszczyźnie ogniskowej lub do 10 różnych płaszczyzn ogniskowych wzdłuż osi z co 30 minut przez maksymalnie 12 godzin.
- W razie potrzeby zdjąć szklaną pokrywę i dodać małe objętości (1-10 μl) aktywatorów biologicznych lub inhibitorów do DMEM za pomocą pipety 10 μl, aby zbadać ich wpływ na migrację GC.
6. Śledzenie komórek
- Za każdym razem filmu wykonuj projekcję stosu z w trybie ecart-type w ImageJ. Moduluj poziomy kontrastu i jasności kolejnych obrazów, aby ułatwić identyfikację i śledzenie oznaczonych GC. Ręcznie zmapuj każdą pozycję na migawce referencyjnej (przy t = 0).
- Użyj wtyczki "Śledzenie ręczne" w menu Analizuj cząstki i określ, klikając punkt ciężkości każdego ciała komórki podczas filmu poklatkowego. Wyeksportuj nieprzetworzone dane śledzenia do arkusza kalkulacyjnego.
- Zreorganizuj wyeksportowane surowe dane śledzenia z ImageJ za pomocą inteligentnego programu domowego (http://primacen.fr, napisanego w kodzie PHP), który identyfikuje każdą komórkę i powiązane pozycje. Korzystając z programu, oblicz całkowitą przebytą odległość i średnią prędkość migracji dla każdej komórki. Klasyfikuj i porównuj charakterystyki migracji komórek w warunkach kontrolnych i leczniczych pod odpowiednimi filtrami przy użyciu tego samego programu.
Wyniki
W wczesnym okresie postnatalnym w móżdżku komórki ziarniste (GC) wykazują istotne zmiany w trybie i prędkości migracji podczas przechodzenia przez różne warstwy kory1 (Rycina 1). W tej sekcji przedstawiono przykłady wyników, jakie można uzyskać, badając migrację GC w ich naturalnym środowisku komórkowym. Przekroje tkanki móżdżku szczura P10, znakowane zielonym barwnikiem fluorescencyjnym, poddano badaniu pod makroskopem konfokalnym (Rycina 3A), wykazując, że GC migrują radialnie w ML ze średnią prędkością 18 µm/hr (Rycina 3B, C). Do dziś rola interakcji i komunikacji między komórkami neuronalnymi a glejowymi, w tym czynniki regulacyjne i mechanizmy molekularne zaangażowane w kontrolę migracji komórek w każdej warstwie kory, pozostają w dużej mierze nieznane. W związku z tym głównym problemem jest zidentyfikowanie neuropeptydów, neurotransmiterów, neurotrofin i składników macierzy zewnątrzkomórkowej, które mogłyby odgrywać rolę w tych specyficznych dla warstw kory zmianach prędkości podczas procesu migracji. Polipeptyd aktywujący cyklazę adenylanową przysadki (PACAP) jest wykrywany głównie w PCL, ale także w ML i IGL podczas pierwszych dwóch tygodni postnatalnych u gryzoni7,10,11. Dodanie PACAP38 (10-6 M) do pożywki hodowlanej spowodowało 79% spadek prędkości GC w ML. Na przykład prędkość migracji GC w ML spadła z 11,9 µm/hr w warunkach kontrolnych do 2,5 µm/hr po podaniu PACAP38 (Rycina 4A). Tkankowy aktywator plazminogenu (tPA) jest elementem kaskady proteolitycznej prowadzącej do degradacji składników macierzy zewnątrzkomórkowej (EM), takich jak cząsteczki adhezji komórkowej czy laminina12,13. tPA oraz plazminogen, będący substratem tPA, są wykrywane w warstwach kory podczas rozwoju postnatalnego móżdżku14,15,16. Podanie PAI-1 (10-7 M), inhibitora endogennego tPA, zredukowało migrację GC w ML o 78%. Na przykład prędkość migracji GC w ML spadła z 19,2 µm/hr w warunkach kontrolnych do 4,2 µm/hr po dodaniu PAI-1 (Rycina 4B). Wyniki te wskazują, że PACAP wywiera bezpośredni efekt hamujący na ruchy GC, a serynowa proteaza tPA ułatwia migrację GC w ML rozwijającego się móżdżku szczura.
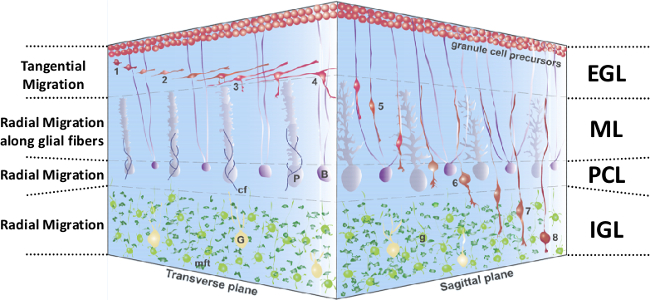
Rysunek 1: Reprezentacja 3D migracji GC w postnatalnej korze móżdżku. 1-4, Wydłużanie wypustek GC i migracja styczna w EGL. 5, Migracja radialna w ML wzdłuż włókien gleju Bergmanna. 6, Przejściowa faza stacjonarna w PCL. 7, Niezależna od gleju migracja radialna w IGL. 8, Zakończenie migracji GC w IGL. GC, komórka ziarnista, na czerwono; EGL, zewnętrzna warstwa ziarnista; B, glej Bergmanna, na ciemnofioletowo; G, komórka Golgiego, na żółto; cf, włókna pnące, na niebiesko; g, postmigracyjne komórki ziarniste, na jasnozielono; IGL, wewnętrzna warstwa ziarnista; mft, zakończenie włókna mszystego, na ciemnozielono; ML, warstwa molekularna; P, komórka Purkinjego, na jasnofioletowo; PCL, warstwa komórek Purkinjego. Rysunek zmodyfikowany na podstawie 5.
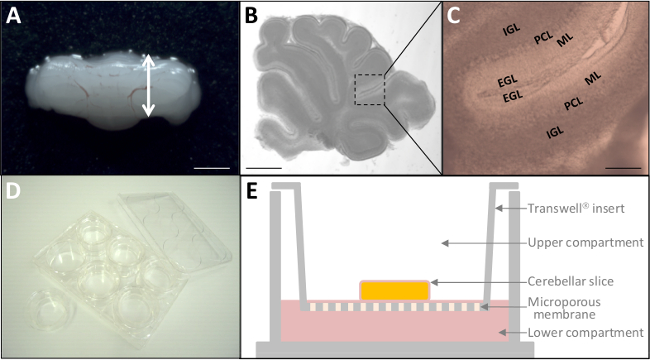
Rycina 2: Hodowla ex vivo skrawków móżdżku szczurów P10. (A) Wypreparowany móżdżek szczura P10. Pasek skali = 6 mm. (B) Mikrograf żywego skrawka móżdżku o grubości 180 µm wykonany za pomocą stereomikroskopii. Pasek skali = 3 mm. (C) Przy większym powiększeniu widoczne są już cztery warstwy kory (EGL, ML, PCL, IGL) móżdżku. Pasek skali = 1 mm. (D) Po znakowaniu fluorescencyjnym skrawki tkanki umieszcza się na insertach hodowlanych (średnica 24 mm) w płytce 6-dołkowej. (E) Schematyczny przekrój insertu hodowlanego z membraną poliestrową przeznaczoną do hodowli tkanek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
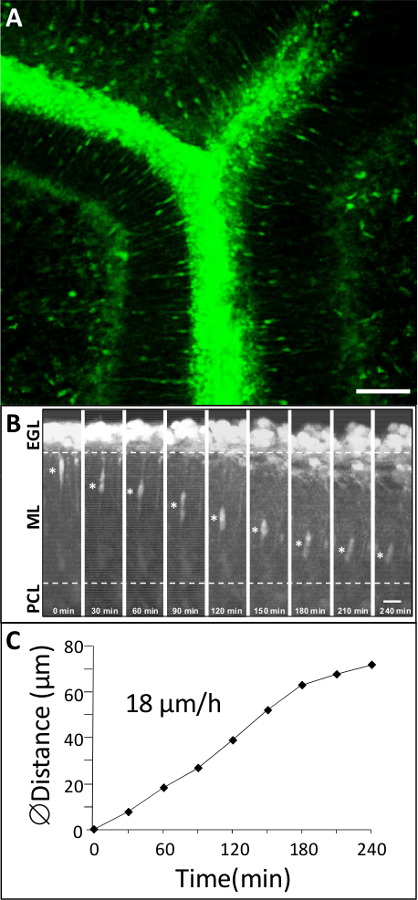
Rycina 3: Dynamiczna migracja GCs w warstwach korowych móżdżku szczura P10. (A) Makroskopowy obraz konfokalny (xyz, projekcja 2D) skrawka móżdżku szczura P10, w którym GCs są oznakowane zielonym cytoplazmatycznym barwnikiem fluorescencyjnym. Pasek skali = 75 µm. (B) Obrazowanie time-lapse pokazujące ruchy GC w ML za pomocą makroskopii konfokalnej przez 4 hr w warunkach kontrolnych. Symbol gwiazdki (*) oznacza somę GC. Upływ czasu (w min) jest wskazany na dole każdej mikrofotografii. Pasek skali = 10 µm. (C) Sekwencyjne zmiany odległości przebytej przez somę GC.
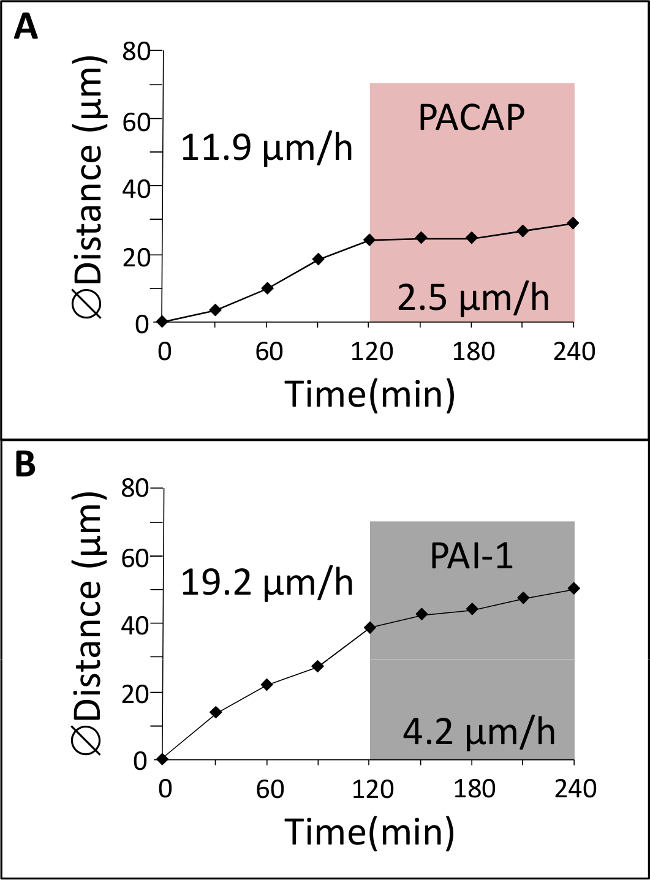
Rysunek 4: Wpływ neuropeptydu i inhibitora proteazy na migrację GC. (A) Migrację GC śledzono w ML za pomocą makroskopii konfokalnej przez 2 hr w warunkach kontrolnych, a następnie przez 2 hr w obecności peptydu aktywującego cyklazę adenylanową przysadki (PACAP). (B) Migrację GC śledzono w ML za pomocą makroskopii konfokalnej przez 2 hr w warunkach kontrolnych, a następnie przez 2 hr w obecności inhibitora aktywatora plazminogenu-1 (PAI-1).
Dyskusja
Protokół ten opisuje hodowlę ostrych plastrów móżdżku szczura P10 w systemie Transwell oraz fluorescencyjne znakowanie GC zielonym barwnikiem fluorescencyjnym w celu zbadania migracji komórek podczas rozwoju postnatalnego za pomocą makroskopii konfokalnej. Protokół ten umożliwia obserwacje migracji komórek przez okres do 12 godzin i testowanie możliwych ról czynników regulujących migrację, w tym agonistów lub antagonistów neuropeptydów, inhibitorów enzymów, modulatorów sygnalizacji komórkowej lub substancji toksycznych podczas eksperymentu. Mały otwór we wkładzie membranowym z końcówką pipety jest niezbędny, aby ułatwić podawanie związków w pożywce inkubacyjnej. Aby ułatwić podawanie roztworu, można użyć domowej roboty pipety z zakrzywioną końcówką.
Jednym z problemów związanych z badaniami migracji komórek na żywych wycinkach tkanek jest to, że ruchy samej tkanki mogą utrudniać śledzenie komórek. Podczas gdy poprzednie podejścia proponowały delikatną stabilizację plastrów za pomocą nylonowej siatki lub cienkiej warstwy kolagenu z ogona szczura7,17, główną zaletą tej technologii jest proste i bezpośrednie przeniesienie 6-dołkowej płytki hodowlanej zawierającej wycinki móżdżku na wkładki błonowe z inkubatora CO2 w celu makroskopu konfokalnego. Zintegrowane regulatory temperatury i CO2 zapewniają również odpowiednie i stałe parametry środowiskowe niezbędne do migracji komórek9. W związku z tym podczas obserwacji utrzymywane są warunki hodowli, a ruchy tkanek są zminimalizowane, ponieważ plastry są dobrze przymocowane do wkładki membranowej. Stabilizacja tkanki jest weryfikowana poprzez śledzenie położenia krawędzi plastra lub komórek Purkinjego, które powinny być ustalonymi odniesieniami podczas pozyskiwania. Ponadto plastry móżdżku (od 12 do 18) rozmieszczone w 6 dołkach płytki można szybko obserwować w szczegółach za pomocą zmotoryzowanego stolika i zoomu optycznego. Ze względu na dużą odległość roboczą (X2, 39 mm) suchego obiektywu, obserwacja epi jest wolna od zanurzenia, a podawanie związków w pożywce hodowlanej jest znacznie łatwiejsze. W związku z tym podobieństwa parametrów środowiskowych i hodowli w inkubatorze CO2 i makroskopii konfokalnej prowadzą do maksymalnej konserwacji próbki biologicznej.
Kolejną zaletą protokołu jest duże pole widzenia, a co za tym idzie duża liczba komórek, które można obserwować jednocześnie. Na przykład wcześniej ustaliliśmy, że gęstość fluorescencyjnych GC z migracją radialną w ML wynosiła 1124 ± 138 komórek/mm2 18. Makroskopia konfokalna (X2, NA = 0,234) ma niższą rozdzielczość boczną w porównaniu z mikroskopią konfokalną (40X, NA = 1,25), ale ciała komórkowe GC można łatwo śledzić, a średnia prędkość migracji jest porównywalna między tymi dwoma podejściamitechnologicznymi 7,18.
Oprócz ulepszeń technicznych w zakresie pozyskiwania obrazów, jakość wycinków tkanek i jakość etykietowania są kluczowymi punktami dla udanych eksperymentów. Zawsze trzymaj media i tkanki na lodzie podczas procesów preparowania, eliminuj olej z ostrzy wibratomu i nie używaj plasterków tkanki mających kontakt z klejem. Przekrój strzałkowy i poprzeczny są przystosowane odpowiednio do migracji promieniowej i stycznej. Stosować różne długości inkubacji w celu odpowiedniego wykrycia w różnych warstwach korowych móżdżku. Długi czas inkubacji (do 8 godzin) jest niezbędny do wykrycia migracji wielu GC w PCL i IGL. Ponieważ migracja GC jest procesem fizjologicznym podczas określonych okien czasoprzestrzennych, kontrola pozytywna polega na tym, że komórki muszą migrować prawidłowo. W szczególności liczne wrzecionowate GC w ML jest jednym z głównych wskaźników zdrowotnych dla strzałkowych plastrów móżdżku. Do rozpoczęcia eksperymentów sugeruje się obserwację ruchów GC w ML. Rzeczywiście, kształt GC z pionowo wydłużonym korpusem komórki powinien być traktowany jako punkt odniesienia do rozpoczęcia akwizycji z kolejnymi okresami kontrolnymi (2 godziny) i leczenia (2 godziny), które można łatwo wykonać w ML.
Barwniki fluorescencyjne, takie jak rodzina Cell Tracker lub białka fluorescencyjne wyrażane przez konstrukty genetyczne, mogą być wykorzystywane jako znaczniki w badaniach migracji komórek. Ze względu na powolną kinetykę migracji GC (1 stos co 30 minut), eksperymenty wielobarwne mogą być również wykonywane w trybie sekwencyjnym, ponieważ w systemie dostępne są 4 wiązki laserowe (405, 488, 532 i 633 nm). Biorąc pod uwagę dośrodkową i odśrodkową migrację promieniową, śledzenie innych interneuronów może być również realizowane18. W szczególności mniej liczne typy komórek można łatwiej zlokalizować dzięki dużemu polu widzenia. Wreszcie, protokół ten może być wykorzystany do badania migracji komórek na innych etapach rozwoju móżdżku, ale także w innych obszarach mózgu.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Instytut Badań i Innowacji w Biomedycynie (IRIB), Platformę Obrazowania Komórek Normandii (PRIMACEN), Inserm, IBiSA, Uniwersytet w Rouen, Europejski Fundusz Rozwoju Regionalnego (EFRF - PeReNE, Interreg 4A), LARC-Neurosciences Network oraz Région Haute-Normandie.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Dulbecco' s zmodyfikowana pożywka orła (DMEM) mieszanina składników odżywczych F-12 | Sigma-Aldrich | D8437 | |
| Zbilansowany roztwór soli Hanka 10x | Sigma-Aldrich | H1641 | |
| PACAP38 | INRS, Kanada | Bourgault et al., 200919 | |
| PAI-1 | Calbiochem | 528208 | |
| suplement N-2 | Fisher Scientific / Gibco/ invitrogen | O973 | |
| Klej cyjanoakrylowy | Loctite | ||
| Cell Tracker Zielony CMFDA | Invitrogen | C2925 | |
| Poliestrowe wkładki Transwell-Clear | Corning | 3452 | |
| Penicylina-Streptomycyna | Sigma-Aldrich | P0781 | |
| 6-dołkowy klaster do hodowli komórkowych | Corning | 3516 | |
| DMSO | Fisher Scientific | BP231-100 | |
| Naczynie do hodowli tkankowych o średnicy 35 mm | BD Falcon | 353004 | |
| Naczynie do hodowli tkankowych o średnicy 100 mm | Thermo SCIENTIFIC | 130182 | |
| Probówka polipropylenowa (15 ml) | BD Falcon | 352096 | |
| Etanol 70% | Fisher Chemical | E/0800DF/21 | |
| Komora bezpieczeństwa biologicznego Wyciąg | Thermo Scientific | MSC9 Klasa II A2 | |
| Pipeta o regulowanej objętości (0,5-10 &mikro; L) | Eppendorf | 4910 000.018 | |
| Żyroskop-kołyska, | |||
| Stuart CO2, mikrotom wibracyjny Hera Cell 150 | Thermo Scientific | ||
| , makroskop | VT1000S Leica Microsystems | ||
| , kontroler temperatury TCS LSI | Leica Microsystems | ||
| PeCon | |||
| CO2-kontroler | PeCon | ||
| Stereoskop, M205 C | Leica Microsystems | ||
| Nożyczki operacyjne, zakrzywione,/ | Medicon | 03.03.17 | |
| Hartowane nożyczki do cienkiej tęczówki, proste, ostre/ostre | FST | 149090-11 | |
| Dumont #3 i #5 kleszcze | FST | 11293-00 i 11252-20 | |
| Ostrzy iniektorów Vibratome/jednoostrzowe | Leica Microsystems | 39053250 | |
| Standardowa rękojeść skalpela #3 lita | FST | 10003-12 | |
| Ostrze chirurgiczne #15 | Swann-Morton | 205 |
Bibliografia
- Komuro, Y., Kumada, T., Ohno, N., Foote, K. D., Komuro, H. Migration in the Cerebellum. Cellular Migration and Formation of Neuronal Connections: Comprehensive Developmental Neuroscience. 2, 281-297 (2013).
- Altman, J., Bayer, S. A. Development of the cerebellar system in relation to its evolution, structure, and functions. , CRC Press. Boca Raton, FL. (1997).
- Komuro, H., Rakic, P. Distinct modes of neuronal migration in different domains of developing cerebellar cortex. Journal of Neuroscience. 18 (4), 1478-1490 (1998).
- Komuro, H., Yacubova, E. Recent advances in cerebellar granule cell migration. Cellular and Molecular Life Sciences. 60 (6), 1084-1098 (2003).
- Fahrion, J. K., et al. Rescue of neuronal migration deficits in a mouse model of fetal Minamata disease by increasing neuronal Ca2+ spike frequency. Proceedings of National Academy of Sciences USA. 109 (13), 5057-5062 (2012).
- Raoult, E., et al. Pituitary adenylate cyclase-activating polypeptide (PACAP) stimulates the expression and the release of tissue plasminogen activator (tPA) in neuronal cells: involvement of tPA in the neuroprotective effect of PACAP. Journal of Neurochemistry. 119 (5), 10-1111 (2011).
- Cameron, D. B., et al. Cerebellar cortical-layer-specific control of neuronal migration by pituitary adenylate cyclase-activating polypeptide. Neuroscience. 146 (2), 697-712 (2007).
- Renaud, J., et al. Plexin-A2 and its ligand, Sema6A, control nucleus-centrosome coupling in migrating granule cells. Nature Neuroscience. 4, 440-449 (2008).
- Komuro, H., Rakic, P. Dynamics of granule cell migration: a confocal microscopic study in acute cerebellar slice preparations. Journal of Neuroscience. 15 (2), 1110-1120 (1995).
- Nielsen, H. S., Hannibal, J., Fahrenkrug, J. Expression of pituitary adenylate cyclase activating polypeptide (PACAP) in the postnatal and adult rat cerebellar cortex. Neuroreport. 9 (11), 2639-2642 (1998).
- Hannibal, J. Pituitary adenylate cyclase-activating peptide in the rat central nervous system: an immunohistochemical and in situ hybridization study. Journal of Comparative Neurology. 453 (4), 389-417 (2002).
- Garcia-Rocha, M., Avila, J., Armas-Portela, R. Tissue-type plasminogen activator (tPA) is the main plasminogen activator associated with isolated rat nerve growth cones. Neuroscience Letters. 180 (2), 123-126 (1994).
- Ware, J. H., DiBenedetto, A. J., Pittman, R. N. Localization of tissue plasminogen activator mRNA in the developing rat cerebellum and effects of inhibiting tissue plasminogen activator on granule cell migration. Journal of Neurobiology. 28 (1), 9-22 (1995).
- Friedman, G. C., Seeds, N. W. Tissue plasminogen activator mRNA expression in granule neurons coincides with their migration in the developing cerebellum. Journal of Comparative Neurology. 360 (4), 658-670 (1995).
- Seeds, N. W., Siconolfi, L. B., Haffke, S. P. Neuronal extracellular proteases facilitate cell migration, axonal growth, and pathfinding. Cell and Tissue Research. 290 (2), 367-370 (1997).
- Basham, M. E., Seeds, N. W. Plasminogen expression in the neonatal and adult mouse brain. Journal of Neurochemistry. 77 (1), 318-325 (2001).
- Bourgault, S., et al. Molecular and conformational determinants of pituitary adenylate cyclase-activating polypeptide (PACAP) for activation of the PAC1 receptor. Journal of Medical Chemistry. 52 (10), 3308-3316 (2009).
Przedruki i uprawnienia
