Tutaj opisujemy protokół pomiaru i analizy reakcji na temperaturę w opuszce węchowej Xenopus laevis. Neurony receptorów węchowych i komórki mitralne są barwione różnicowo, po czym rejestrowane są zmiany wapnia, odzwierciedlające wrażliwość niektórych sieci neuronowych w bańce na spadki temperatury wywołane w nosie.
Artykuł metodologiczny
Rejestrowanie aktywności neuronalnej wywołanej temperaturą poprzez monitorowanie zmian wapnia w opuszce węchowej Xenopus laevis
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
System węchowy, wyspecjalizowany w wykrywaniu, integracji i przetwarzaniu cząsteczek chemicznych, jest prawdopodobnie najdokładniej zbadanym systemem sensorycznym. Istnieje jednak coraz więcej dowodów na to, że węch nie ogranicza się wyłącznie do wrażliwości chemicznej, ale obejmuje również wrażliwość na temperaturę. Premetamorficzne Xenopus laevis to zwierzęta półprzezroczyste, z wystającymi jamami nosowymi pozbawionymi płytki cribriform oddzielającej nos od opuszki węchowej. Te cechy sprawiają, że dobrze nadają się do badania węchu, a zwłaszcza termowrażliwości. W niniejszym artykule opisano pełną procedurę pomiaru reakcji temperaturowych w opuszce węchowej larw X. laevis. Po pierwsze, elektroporacja neuronów receptorów węchowych (ORN) jest wykonywana za pomocą spektralnie odrębnych barwników wprowadzanych do jam nosowych w celu zabarwienia ich zakończeń aksonów w opuszkowym neuropilu. Barwienie różnicowe między neuronami receptora lewego i prawego służy do identyfikacji γ-kłębuszków nerkowych jako jedynej struktury unerwionej przez przeciwległe presynaptyczne aferenty. Po drugie, elektroporacja jest połączona z ogniskowym ładowaniem bolusa w opuszce węchowej w celu zabarwienia komórek mitralnych i ich dendrytów. Objętość mózgu 3D jest następnie skanowana pod mikroskopią oświetlenia liniowego w celu uzyskania szybkich danych obrazowania wapnia, podczas gdy niewielkie spadki temperatury są indukowane w nabłonku węchowym. Wreszcie, analiza po akwizycji pozwala na morfologiczną rekonstrukcję sieci termoczułej składającej się z γ-kłębuszków nerkowych i jego unerwionych komórek mitralnych, w oparciu o specyficzne ślady Ca2+ indukowane temperaturą. Wykorzystanie chemicznych substancji zapachowych jako bodźców oprócz skoków temperatury umożliwia porównanie sieci termoczułych i chemowrażliwych w opuszce węchowej.
Wprowadzenie
W ciągu ostatnich lat, wrażliwość na temperaturę nie była już opisywana tylko jako zmysł somestetyczny, ale także jako funkcja fizjologiczna istotna dla układu węchowego. U gryzoni główna opuszka węchowa otrzymuje dane wejściowe z ganglionu Grueneberga (GG), narządu w jamie nosowej, składającego się z termoczułych neuronów. Neurony GG reagują zarówno na niskietemperatury1, jak i na bodźce chemiczne, a ich chemowrażliwość jest modulowana przezwahania temperatury2. Obserwacje te sugerują, że opuszka węchowa może integrować informacje chemiczne i temperaturowe zebrane w nosie. W celu zbadania tej hipotezy przedstawiamy tutaj zestaw eksperymentów umożliwiających wykrycie reakcji temperaturowych w opuszce węchowej zwierząt nietransgenicznych, wykorzystując jako model larwę Xenopus laevis. Organizacja układu węchowego u tych zwierząt bardzo przypomina układ ssaków. Neurony receptorów węchowych premetamorficznego X. laevis kończą się kępkami i nawiązują kontakty synaptyczne z dendrytami neuronów drugiego rzędu, komórek mitralnych. Włókna pre- i postsynaptyczne przenikają się i tworzą przypominające motki struktury neuropilowe zwane kłębuszkaminerkowymi 3. Liczne synapsy warstwy kłębuszkowej stanowią pierwsze centrum przetwarzania informacji węchowej. Komórki mitralne dodatkowo integrują bodźce czuciowe i przekazują je do wyższych obszarów węchowych.
Opracowaliśmy protokół łączący elektroporację neuronów receptorów węchowych (ORN) z barwnikami wrażliwymi i niewrażliwymi na wapń, po których następuje ładowanie bolusem postsynaptycznej sieci kłębuszków nerkowych i komórek mitralnych. Barwienie za pomocą elektroporacji dwóch spektralnie odrębnych barwników załadowanych do jam nosowych służy do wyodrębnienia γ-kłębuszkównerkowych 3 poprzez jego obustronne unerwienie przez ORN z obu nabłonków węchowych. W ten sposób lokalizacja γ-kłębuszków jest identyfikowana przed dalszymi pomiarami. Następnie przeprowadza się ładowanie bolusa4 acetoksymetylem fluo-8 (Fluo-8 AM) w objętości zawierającej γ-kłębuszków nerkowych. Obrazowanie zmian wapnia za pomocą szybkiej mikroskopii konfokalnej pozwala na wizualizację reakcji temperaturowych w 3D neuropilu otaczającym γ-kłębuszków nerkowych, unikalnym wrażliwym na temperaturę kłębuszkiem nerkowym w tym systemie5. Komórki mitralne unerwiające tę specyficzną strukturę można również zidentyfikować po sygnałach Ca2+ reagujących na indukowane spadki temperatury. Następnie, obrazowanie korelacji aktywności6 wykorzystuje specyficzne ślady Ca2+ tych komórek, aby ujawnić dendrytyczną morfologię termoczułych komórek mitralnych. Naprzemienne, powtarzające się aplikacje zimnego roztworu Ringera i chemicznych środków zapachowych w jednym pomiarze można wykorzystać do wizualizacji sieci komórek mitralnych do przetwarzania zapachów i temperatury otaczających γ-kłębuszkowe oraz do identyfikacji potencjalnych nakładania się. Aby jednoznacznie przypisać reakcje na bodziec chemiczny lub temperaturowy, stale monitorujemy temperaturę w nabłonku węchowym.
Protokół
Wszystkie eksperymenty z kijankami Xenopus laevis zostały przeprowadzone zgodnie z wytycznymi zatwierdzonymi przez Komitet Etyki Eksperymentów na Zwierzętach Uniwersytetu w Getyndze.
1. Elektroporacja
- Wybierz zwierzęta z etapów 49-54 według Nieuwkoopa i Fabera7.
- Upewnij się, że zestaw do nagrywania składa się z mikroskopu stereoskopowego o dużej odległości roboczej i urządzenia do elektroporacji, które może stosować impulsy napięcia 20 V przez 20 ms z częstotliwością co najmniej 2 Hz. Zastosuj impulsy napięciowe za pomocą dwóch platynowych elektrod o przybliżonej średnicy 200 μm, tak aby można je było wprowadzić do nozdrzy kijanek bez powodowania uszkodzeń.
- Przygotować kryształy barwnika sprzężonego z dekstranem (np. dekstran zielony 10 kDa lub Alexa Fluor 647 10 kDa Dextran), rozpuszczając typowo dostarczaną ilość 5 mg w około 100 μl wody destylowanej i pozostawiając małe kropelki o wielkości 2 μl do wyschnięcia na arkuszu Parafilm.
Uwaga: Kryształy wysychają w czasie krótszym niż jeden dzień, a następnie mogą być przechowywane w temperaturze -18 °C w zamrażarce przez okres ponad roku. - Znieczulenie zwierząt poprzez umieszczenie ich w wodzie z kranu zawierającej 3% sulfonianu metanu trikainy na 1-2 minuty, aż osiągnie stan znieczulenia chirurgicznego charakteryzujący się zmniejszoną częstością akcji serca, utratą wszystkich ruchów i brakiem reakcji na bodźce mechaniczne.
- Zanurz znieczulone zwierzę na 10 sekund w czystej wodzie z kranu.
- Umieść zwierzę na żelowej poduszce i przymocuj je, umieszczając wokół niego igły, nie uszkadzając go.
Uwaga: Nie naprawiaj zwierzęcia, wbijając igły w jego skórę. - Delikatnie osusz obszar otaczający nozdrza chusteczką.
- Umieść zwierzę pod mikroskopem stereoskopowym i skup się na nozdrzach.
- Za pomocą kleszczy wybierz kryształ barwnika o wielkości pasującej do otworu nozdrza, umieść go w jednej z jam nosowych i poczekaj, aż całkowicie się rozpuści, co zajmuje mniej niż 1 minutę. Jeśli kryształy są mniejsze, dodaj 2 lub 3 do każdej wnęki, aż wytworzą nieprzezroczysty roztwór o wysokim stężeniu.
- Umieść katodę na skórze kijanki, a anodę w jednym z nozdrzy.
Uwaga: To konkretne ustawienie dotyczy barwników wymienionych w kroku 1.3. W przypadku barwników o innej polarności wyniki barwienia można poprawić, umieszczając katodę w nozdrzach. Jeśli nie masz pewności co do polaryzacji barwnika, obie elektrody można umieścić jednocześnie w nozdrzach (po jednej na nozdrze), a polaryzacja zmieniała się między pojedynczymi impulsami napięcia. - Zastosuj sześć impulsów o napięciu 20 V i 20 ms z około 0,5 sekundy odstępem między bodźcami.
Uwaga: Podczas elektroporacji wokół elektrody w nozdrzu powinny pojawić się małe pęcherzyki, pod warunkiem, że elektrody stykają się ze skórą i roztworem w nozdrzu. Jeśli nie widać żadnych pęcherzyków, sprawdź połączeniowe i upewnij się, że urządzenie elektroporacyjne dostarcza żądany impuls napięcia. - Powtórz procedurę (1.9-1.11) dla drugiego nozdrza.
- Przenieś elektroporowaną kijankę do zlewki wypełnionej wodą z kranu o temperaturze pokojowej. Odczekaj od 5 do 10 minut, aż zwierzę odzyska przytomność i wznowi pływanie. Nakarm go i pozwól mu się zregenerować przez co najmniej 1 dzień, podczas którego barwnik jest transportowany wzdłuż nerwu węchowego do opuszki węchowej.
- Użyj elektroporowanych zwierząt w ciągu 1-7 dni po elektroporacji, aby uzyskać najlepsze wyniki obrazowania. Przed obrazowaniem należy przeznaczyć co najmniej 24 godziny na transport i regenerację barwnika.
2. Przygotowanie całego wierzchowca
- Znieczulenie zwierzęcia w wodzie z kranu zawierającej 3% sulfonianu metanu trikainy, aż wszystkie ruchy ustaną i nie będzie reagować na bodźce mechaniczne.
- Przenieś kijankę na żelową poduszkę pod mikroskopem stereoskopowym i mocno ją przymocuj, wbijając igły w skórę po obu stronach przodomózgowia.
- Poświęć kijankę, przecinając jej rdzeń kręgowy.
- Użyj skalpela, aby wyciąć blok tkanki zawierający obie jamy nosowe, nerwy węchowe i opuszki węchowe (ryc. 1A). Wykonaj pierwsze nacięcie blisko lewego nozdrza - nie dotykając go - i przesuń ostrze do przodu, przecinając wzdłuż lewego nerwu węchowego i opuszki, aż do granicy kresomózgowia i międzymózgowia. Zrób to samo po prawej stronie. Odizoluj preparat od reszty układu nerwowego, wykonując ostateczne cięcie za kresomózgowiem.
- Wyrzuć ciało kijanki i ostrożnie odwróć blok tkankowy do góry nogami, tak aby brzuszna strona preparatu mózgowego była skierowana do góry.
- Ponownie przypnij blok tkankowy, wkładając dwie igły między nerwy węchowe.
- Umieść kroplę roztworu Frog Ringer (98 mM NaCl, 2 mM KCl, 1 mM CaCl2, 2 mM MgCl2, 5 mM glukozy, 5 mM Na-pirogronianu, 10 mM HEPES, dostosowanego do pH 7,8, osmolarność 230 mOsmol/L) na tkankę.
- Usuń opony mózgowe pokrywające strefę sortowania aksonów i opuszki węchowe, wykonując trzy nacięcia cienkimi nożyczkami. Zaczynając od tylnej krawędzi bloku tkankowego, przeciąć ogonowo-ogonowo ściśle wzdłuż lewej opuszki węchowej, aż do punktu wejścia nerwów węchowych do opuszków (strefa sortowania aksonów).
- Powtórz krok 2.8 dla prawej półkuli.
- Podnieś opony mózgowe za pomocą kleszczy i wykonaj trzecie cięcie, prostopadle do poprzednich w strefie sortowania aksonów.
Uwaga: Brzuszna strona opuszki węchowej jest teraz dostępna do obrazowania i ładowania bolusa. - Aby poprawić jakość obrazu w świetle przechodzącym, powtórz procedurę dla strony grzbietowej. Te dodatkowe czynności mogą ułatwić nawigację mikropipety w celu załadowania bolusa, ale nie są absolutnie konieczne.
- Przenieść próbkę do komory rejestracyjnej wypełnionej Frog Ringer w celu dalszego przetwarzania i obrazowania. Upewnij się, że strona brzuszna jest skierowana do góry i zabezpiecz próbkę siatką z włókien nylonowych rozpiętą na małej platynowej ramce.
- Aby ułatwić aplikację bodźców, umieść jamy nosowe na jednym z włókien nylonowych.
3. Ładowanie bolusa
- Rozpuścić 50 μg barwnika wapnia AM (np. Fluo-8 AM) w 20 μl dimetylosulfotlenku (DMSO) zawierającego 20% Pluronic F-127 (w/v) w celu przygotowania roztworu podstawowego barwnika AM. Zamrozić roztwory podstawowe w małych porcjach o objętości 1-2 μl. Roztwór podstawowy jest stabilny przez co najmniej pół roku, ale należy unikać cykli zamrażania i rozmrażania.
- Użyj ściągacza do mikropipet i wyciągnij pipety o rezystancji 5-8 MΩ i średnicy końcówki 1-2 μm.
- Przygotowany roztwór podstawowy barwnika rozpuścić w roztworze Frog Ringera o stężeniu 250-500 μM.
- Dodaj MK571, aby osiągnąć stężenie 500 μM w celu zablokowania transporterów oporności wielolekowej.
- Napełnij mikropipetę 10 μl roztworu za pomocą wydłużonej końcówki pipety i usuń wszystkie pęcherzyki powietrza, przesuwając mikropipetę.
- Zamontuj mikropipetę w uchwycie na pipety i upewnij się, że ciśnienie można zastosować ręcznie za pomocą strzykawki lub pneumatycznego urządzenia do wyrzucania leku, a następnie monitoruj zastosowane ciśnienie za pomocą manometru.
- Jeśli to możliwe, należy użyć mikroskopu z funkcją wzbudzania wstrzykniętego barwnika, tak aby można było uwidocznić i wyregulować odpływ z końcówki mikropipety. Najlepiej użyć konfiguracji obrazowania konfokalnego. Użyj mikroskopu pionowego z obiektywem zanurzeniowym, tak aby można było dotrzeć do tkanki za pomocą mikropipety.
- Umieść cały preparat montażowy pod mikroskopem, podążaj za nerwem węchowym aż do opuszki i skup się na obszarze zainteresowania w opuszce węchowej.
- Przelać świeży roztwór Ringera przez komorę rejestracyjną w celu zwiększenia żywotności preparatu i wypłukania barwnika wyciekającego z końcówki mikropipety.
- Opuścić pipetę na powierzchnię opuszki węchowej, końcówką skierowaną w kierunku rostralnym preparatu.
- Zastosuj małe i stałe nadciśnienie (~25 hPa) do mikropipety, aby zapobiec zatkaniu pipety i delikatnie włóż ją do tkanki.
- Gdy pipeta naruszy zewnętrzne warstwy tkanki, przesuń ją w kierunku grzbietowym do warstwy komórek mitralnych. (Należy pamiętać, że przeciwbarwienie neuronów receptorów węchowych za pomocą elektroporacji jest pomocne w dostosowaniu pozycji mikropipety). Najlepiej umieścić końcówkę pipety w odległości 50-100 μm od żądanego miejsca nagrywania.
- W celu barwienia wrażliwych na temperaturę γ-kłębuszków nerkowych, należy celować w obszar około 50 μm rostralnie od pozycji neuropilu presynaptycznego γ-kłębuszków nerkowych.
- Zastosować nadciśnienie w zakresie 100-200 hPa. Dostosuj siłę nacisku w zależności od rozmiaru końcówki mikropipety. Potwierdź odpływ z pipety, obserwując, czy przy pierwszym nacisku nie widoczne są niewielkie ruchy tkanek w jasnym świetle.
- Utrzymuj stałe ciśnienie przez około 10 minut, dopóki mikropipeta pozostaje w tkance. Jeśli to możliwe, w międzyczasie sprawdź neuropil pod kątem obciążenia komórek w oświetleniu fluorescencyjnym, ponieważ pomyślne ładowanie spowoduje widoczne zabarwienie komórek o rosnącej intensywności w miarę upływu czasu.
Uwaga: Często przyczyną nieudanego ładowania jest zatkanie pipety spowodowane dostaniem się tkanki do końcówki lub zagregowanych klastrów barwnika. Czasami udaje się uratować pipetę, delikatnie łamiąc jej końcówkę o dolną powierzchnię komory zapisu. Jednak końcówka pipety nie powinna przekraczać kilku mikrometrów. Większe otwory pipet można skompensować, stosując niższe ciśnienie podczas ładowania bolusa. - Po 10 minutach ładowania zmniejsz przyłożone ciśnienie do zera i sprawdź zabarwienie.
Uwaga: Wielkość zabarwionego obszaru różni się znacznie i zależy od kilku parametrów, takich jak ilość wstrzykniętego barwnika i lokalizacja miejsca wyrzutu. Dobre barwienie obejmuje obszar około 100 μm x 100 μm. - Jeśli zaplamiony obszar jest zbyt mały lub nie zakrywa żądanego miejsca nagrywania, powtórz kroki 3.10-3.13. Użyć tej samej mikropipety do następnego wstrzyknięcia, jeśli nie jest jeszcze zatkana.
- Należy odczekać co najmniej 30 minut po ostatnim wstrzyknięciu przed rozpoczęciem jakichkolwiek eksperymentów, aby umożliwić wychwyt barwnika i deetryfikację. Kontynuuj napełnianie komory nagraniowej świeżym roztworem Ringera przez cały czas.
4. Ustawienia pomiaru
- Upewnij się, że zestaw pomiarowy składa się z mikroskopu konfokalnego o wystarczającej prędkości do rejestrowania objętości trójwymiarowych. Wybierz częstotliwość akwizycji co najmniej 1 Hz na stos.
Uwaga: Odpowiednie konfiguracje obejmują na przykład mikroskopy z oświetleniem liniowym, które skanują próbkę liniowo, a nie punkt po punkcie. Prosta realizacja takiego układu została już opisana6. Inne opcje to mikroskopy z wirującym dyskiem. Jeśli taka konfiguracja nie jest dostępna, nadal możliwe jest mierzenie mniejszych obszarów za pomocą normalnej konfiguracji skanowania punktowego. - Ustaw parametry pomiaru tak, aby objętość wystarczająco duża, aby zmieścić się w rozmiarze kłębuszka nerkowego.
Uwaga: Typowa grubość objętości nagrania mieści się w zakresie 20 μm, która powinna być pokryta co najmniej 5 warstwami. - Sprawdź wszystkie pomiary presynaptyczne pod kątem wybielania. Dostosuj moc lasera do momentu, gdy średnia intensywność fluorescencji rejestrowanych obrazów nie spadnie w czasie trwania zapisu.
- Ogranicz czas i obszar pomiaru dla nagrań po stronie postsynaptycznej, aby w jak największym stopniu uniknąć wybielania, chociaż w przypadku pomiarów przekraczających 20-30 sekund prawdopodobnie wystąpi wybielanie.
5. Eksperymenty z zastosowaniem zapachu i temperaturą
- Wlać 25 ml świeżego roztworu Ringera (uprzednio przechowywanego w temperaturze 4 °C) do probówki o pojemności 50 ml. Umieść probówkę w wiaderku z lodem.
- Monitoruj temperaturę schłodzonego Dzwonka, wkładając czystą sondę termometru do rurki. Poczekaj, aż temperatura spadnie poniżej 1 °C przed rozpoczęciem eksperymentu.
- Przygotować 50 ml L-histydyny rozpuszczonej w roztworze Ringera o stężeniu 10 μM.
- Stosować aplikator lejkowy8 lub podobne systemy aplikacyjne umożliwiające jednoczesne dostarczanie bodźca do perfującego Ringera, tak aby przepływ wody w komorze pozostał stały i nieprzerwany podczas uwalniania roztworu stymulacyjnego. Umieścić lejek w taki sposób, aby dystalny ujść znajdował się w odległości mniejszej niż 1 mm od nabłonka węchowego.
- Umieść czujnik temperatury NiCr-Ni podłączony do termometru cyfrowego w pobliżu nabłonka i wylotu aplikatora lejkowego. Podłącz port wyjściowy termometru do komputera, aby rejestrować i wizualnie wyświetlać zmiany napięcia odzwierciedlające niewielkie wahania temperatury.
- Przed rozpoczęciem eksperymentu podłącz kolejny czujnik termiczny do standardowego termometru, aby ustalić współczynnik skali napięcia do temperatury.
- Sprawdzić temperaturę kąpieli w komorze rejestracyjnej i upewnić się, że nie przekracza ona 22 °C.
- Rozpocznij akwizycję obrazu i sekwencyjnie nałóż 200-400 μl zimnego Ringera, L-histydyny i Ringera o temperaturze pokojowej (20-22 °C) za pomocą pipety elektronicznej z interwałem bodźcowym 20-30 sekund. Aby uzyskać lepszą kontrolę nad aplikacją bodźca, jeśli to możliwe, uwolnij bodziec za pomocą sygnału wyzwalającego wysłanego przez wybrany zestaw obrazowania do pipety. Powtórz protokół aplikacji, aby uzyskać powtarzalne wyniki.
- Wykonaj zestawy dłuższych nagrań z kilkoma rundami stymulacji, ponieważ są one preferowane do analizy po obrazowaniu z obrazowaniem korelacji aktywności.
Uwaga: Należy znaleźć kompromis między czasem nagrywania a żywotnością wycinka. Pomiary trwające ok. 2 min obejmujące 6 aplikacji bodźców zapewniają wystarczającą aktywność do dobrej rekonstrukcji sieci.
6. Przetwarzanie obrazu za pomocą obrazowania korelacji aktywności (ACI)
- Przetwarzanie obrazu nagrań presynaptycznych
- W nagraniach ze stymulacją zimnym roztworem Ringera i histydyną należy odróżnić wrażliwy na temperaturę γ-neuropil od sąsiednich kłębuszków nerkowych wrażliwych na histydynę na podstawie ich różnych profili odpowiedzi (patrz Kludt i wsp.5).
- Stwórz projekcję maksymalnej intensywności w kierunku osiowym z nagrań preparatu mózgu, w którym ORN zostały elektroporowane dwoma różnymi barwnikami, aby uwidocznić obustronne unerwienie γ-kłębuszków nerkowych.
- Przetwarzanie obrazów zapisów postsynaptycznych za pomocą obrazowania korelacji aktywności (ACI)
- Wybierz nagrania z wystarczającą liczbą punktów czasowych (ponad 100 klatek) i przyzwoitą aktywnością (co najmniej dwa zdarzenia).
Uwaga: Aktywność może być albo spontaniczna, aby ujawnić procesy zachodzące w pojedynczych komórkach mitralnych, albo wywołana przez kilka zastosowań bodźców podczas tego samego nagrania, aby ujawnić sieci komórkowe aktywowane przez bodźce węchowe. - Wybierz nagrania, w których mierzone struktury poruszają się nie więcej niż o 2-3 piksele w czasie trwania nagrania.
Uwaga: Nagrania ze zbyt dużym ruchem można uratować, stosując procedurę korekcji przesunięcia opisaną w Kludt i wsp. 5 - Sprawdź, czy nagrania nie są wybielone. Jeśli średnia intensywność całego obrazu spadnie w czasie trwania nagrania, konieczna jest korekcja wybielania, w przeciwnym razie pomiń dwa następne kroki.
- Oblicz trend liniowy dla śladu czasowego każdego piksela, wykonując regresję liniową.
- Odejmij wynik od każdego piksela z osobna, aby wyeliminować liniową składową wybielania.
Uwaga: Alternatywnie można zastosować złączkę Legendre zgodnie z opisem Bao i Schilda9. - Pobierz gotowy do użycia skrypt MATLAB wraz z przewodnikiem krok po kroku dotyczącym obrazowania korelacji aktywności (ACI) zgodnie z opisem Junek et al.6
Uwaga: Postępuj zgodnie z krokami opisanymi w Junek et al.6 jako alternatywę dla korzystania z dostarczonego skryptu MATLAB. - Przenieś pliki "aci.m", "matVis.m" i "aci_roiSelector.m" z pobranego kontenera do ścieżki MATLAB systemu używanego do oceny danych.
- Załaduj surowe dane uzyskane w kroku 5.8 jako zmienną do obszaru roboczego użytkownika MATLAB zorganizowanej jako macierz [x,y,z,t] z x i y odnoszącymi się do wymiarów bocznych, z, kierunku osiowego i t, przebiegu czasu.
- Wywołaj "aci" z wiersza poleceń MATLAB.
- W wyświetlonym interfejsie użytkownika (UI) wybierz opcję "Przygotuj dane", a następnie wybierz zmienną zawierającą dane oraz katalog, w którym zostaną zapisane wyniki.
Uwaga: Pełny opis interfejsu użytkownika można znaleźć w instrukcji dołączonej do skryptu aci. - Przewiń zmierzone warstwy z, przesuwając odpowiedni suwak w interfejsie użytkownika, aby uzyskać przegląd wyświetlanej mapy wariancji.
- Wprowadź rozmiar obszaru zainteresowania (ROI) w interfejsie użytkownika. W przypadku somy z komórek mitralnych dostosuj ROI tak, aby wynosił około 10 μm w kierunku bocznym i 5 μm w kierunku osiowym. W przypadku kłębuszka nerkowego odpowiednie są nieco wyższe wartości 20 μm bocznie i 10 μm osiowo.
Uwaga: Rozmiar ROI należy wprowadzić jako liczbę pikseli, która zależy od skalowania pikseli wybranego dla nagrania. - Wybierz ROI zawierający γ-kłębuszków nerkowych i dodatkowe regiony dla każdej widocznej somy otaczających komórek mitralnych, klikając środkowym przyciskiem myszy środek komórki/kłębuszka nerkowego.
- Zamknij główny interfejs użytkownika, który uruchamia obliczanie map korelacji dla wszystkich śladów referencyjnych. Wynik jest automatycznie zapisywany i wyświetlany.
- Wybierz nagrania z wystarczającą liczbą punktów czasowych (ponad 100 klatek) i przyzwoitą aktywnością (co najmniej dwa zdarzenia).
Wyniki
Elektroporację neuronów receptorowych węchu (ORNs) przeprowadzono z użyciem barwników Alexa Fluor lub wskaźników wapnia sprzężonych z cząsteczkami dekstranu w celu znakowania anterogradnego poprzez aktywny transport aksonalny. Podczas gdy pierwsze barwniki zapewniają intensywne barwienie neuronów sensorycznych i ich zakończeń aksonalnych rozgałęziających się w warstwie kłębkowej opuszki, drugie pozwalają na pomiar aktywności neuronalnej w tych komórkach (Rysunek 1 i 2). Najpierw, poprzez elektroporację dekstranu Alexa Fluor 647 w lewym i dekstranu Alexa Fluor 546 w prawym nabłonku węchowym, zwizualizowano położenie termoczułego kłębka γ oraz wzorzec jego unerwienia (Rysunek 1A). Dwadzieścia cztery godziny po zabiegu, w badaniu mikroskopii fluorescencyjnej widoczne były ORNs w nozdrzach, dwa nerwy węchowe oraz kłębki w obu półkulach. Poszczególne skupiska kłębkowe można było zidentyfikować na podstawie ich położenia, w szczególności niewielkie skupisko obejmujące kłębek γ (Rysunek 1B)). Nieliczna grupa kontralateralnych włókien węchowych przebiegała przez kontralateralną opuszkę węchową, krzyżowała się w komisurze przedniej i kończyła w ipsilateralnym kłębku γ (Rysunek 2A).
W celu rejestracji odpowiedzi wapniowych presynaptycznych włókien kłębka γ (γ-glomerulus), do neuronów receptorowych węchu (ORNs) przeprowadzono elektroporację Calcium Green Dextran zgodnie z opisaną wcześniej procedurą. Gwałtowne obniżenia temperatury indukowano w nozdrzach poprzez kontrolowane podawanie lodowatego roztworu Ringera (0-1 °C). Obrazowanie trójwymiarowego obszaru obejmującego kłębek γ przeprowadzono przy użyciu szybkiego konfokalnego mikroskopu z oświetleniem liniowym. Zmiany temperatury ΔT wynoszące -1 °C były wystarczające do wywołania odpowiedzi zimnowrażliwych w kłębku γ i jego włóknach doprowadzających, co objawiało się odwracalnymi szczytami w przebiegach ΔF/F Ca2+ (Ryc. 2B, C).
Przeprowadzono dalsze kroki eksperymentalne w celu pomiaru aktywności indukowanej zimnem w komórkach mitrale połączonych z kłębkiem γ poprzez ich rozgałęzione zakończenia dendrytyczne. Włókna postsynaptyczne oraz otaczający je neuropil zostały skutecznie zabarwione poprzez bolusowe wprowadzenie barwnika wrażliwego na wapń Fluo-8 AM, wykonane kilka dni po elektroporacji dekstranu Alexa 647 do neuronów receptorowych węchu (ORN) (Rycina 3A, B). Komórki mitrale wypełniono Fluo-8 AM, a nabłonek węchowy stymulowano dwukrotnie zgodnie z następującym paradygmatem: kolejno podano zimny roztwór Ringera, histydynę (10 µM) oraz roztwór Ringera w temperaturze pokojowej. Z obszarów zainteresowania w rejestrowanej objętości pobrano dwa ślady referencyjne: jeden reagujący wyłącznie na spadki temperatury, a drugi tylko na histydynę. Obrazowanie korelacji aktywności (ACI)6 obliczono na podstawie wybranych śladów referencyjnych, aby z wysokim kontrastem zwizualizować morfologię dendrytyczną sieci postsynaptycznych odpowiadających sygnałowi Ca2+ reaktywnemu na temperaturę lub histydynę (Rycina 3C, D). Na koniec mapy termosensytywne i chemosensytywne zostały zakodowane kolorami i nałożone na siebie, co pokazuje, w jaki sposób informacje temperaturowe i chemiczne są przekazywane z poszczególnych kłębków do neuronów węchowych drugiego rzędu (Rycina 3E). Opis integracji i przetwarzania obu rodzajów informacji w wspólnych sieciach węchowych znajduje się w pracy Kludt et al.5
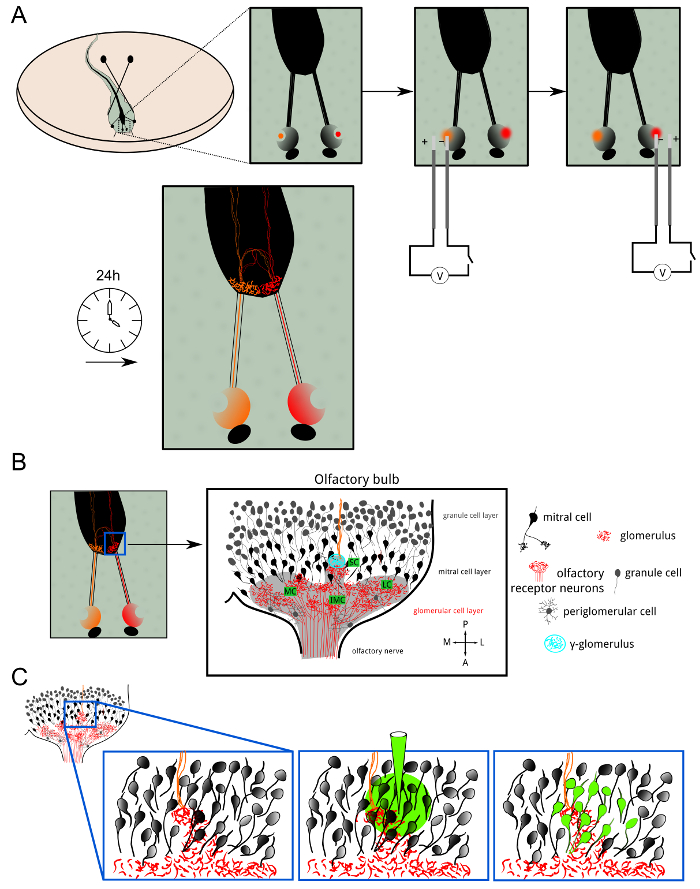
Rysunek 1: Przegląd elektroporacji ORN i ładowania bolusa. (A) neurony receptorowe węchu w obu jamach nosowych X. laevis Larwy poddano elektroporacji barwnikami Alexa lub barwnikami wrażliwymi na wapń sprzężonymi z cząsteczkami dekstranu. Wskaźniki fluorescencyjne były transportowane anterogradnie aż do końcowych arboryzacji aksonalnych. 24 godziny po elektroporacji w obu półkulach warstwa kłębkowa wykazywała zabarwienie fluorescencyjne.B) Schemat organizacji komórkowej opłata węchowego w jednej półkuli. Warstwa kłębków obejmuje opłat w grupach: przyśrodkowej, małej, pośredniej i bocznej. Informacje węchowe są przekazywane z neuronów receptorowych do komórek mitrallnych poprzez synapsy pobudzające w kłębkach. Komórki okołokłębkowe i ziarniste to neurony hamujące modulujące przetwarzanie i kodowanie zapachów. Kłębek γ (cyjanowy) został łatwo zidentyfikowany jako niewielki neuropil, w którym zlały się włókna węchowe ipsilateralne (czerwone) i kontralateralne (pomarańczowe). (CWprowadzenie dawki uderzeniowej (bolusa) wykonano w okolicy kłębka gamma (γ-glomerulus), aby zbarwić postsynaptyczny neuropil składający się głównie z komórek mitralnych oraz ich drzew dendrytycznych, które rozgałęziają się w znacznym stopniu w warstwie kłębkowej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
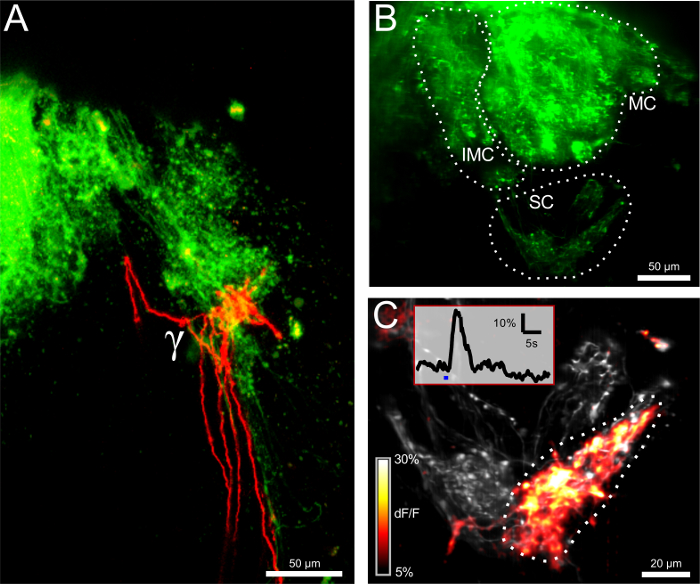
Rycina 2: Elektroporacja neuronów receptorowych węchu (ORN) ujawnia łączność strukturalną i funkcjonalną. (A) Obustronna innowacja γ-kłębka przez ipsilateralne (zielone) i kontralateralne (czerwone) neurony receptorowe węchowe (ORN). Pasek skali = 50 µm. (B) Opółchuch opuszkowy po elektroporacji z użyciem czułego na wapń barwnika Calcium Green Dextran. Widoczne są jądro pośrednio-przyśrodkowe (IMC), przyśrodkowe (MC) oraz mała grupa (SC). Obraz stanowi projekcję maksymalną z 100 µm-objętość pomiaru grubości. Pasek skali = 50 µm. (C) Zbliżenie małego skupiska. Odnotowana objętość (12 µm) przedstawiono w rzucie maksymalnym. Obraz ukazuje bazowy poziom fluorescencji w kolorze szarym, a nałożoną mapę ΔF/F z kodowaniem kolorami. Wykreślono maksymalną odpowiedź na stymulację zimnym roztworem Ringera. Kłębek γ zareagował silnie, podczas gdy dwa sąsiednie kłębki pozostały nieaktywne. Wstawka przedstawia przebieg ΔF/F dla kłębka γ, odpowiadający wskazanemu obszarowi zainteresowania (ROI). Niebieski pasek oznacza czas aplikacji bodźca. Pasek skali = 20 µm. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
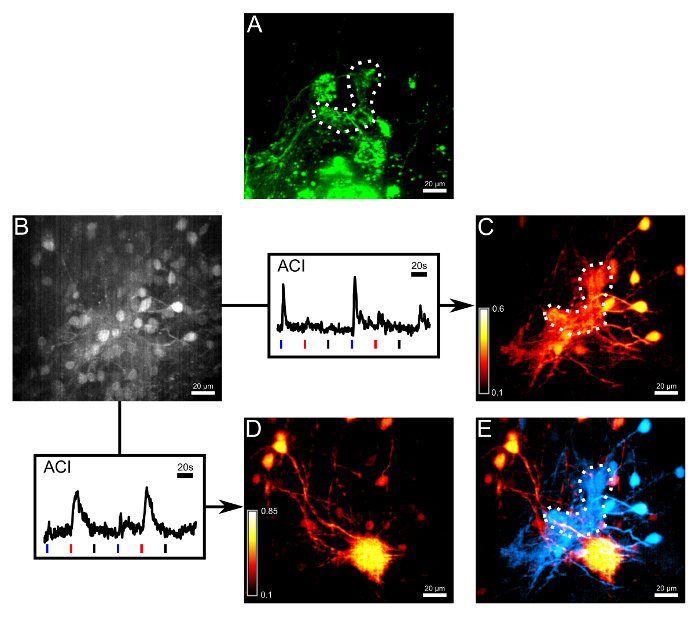
Rycina 3: Obciążenie dawką bolusową i ACI rozdzielają sieci termos Wrażliwe i chemoswrażliwe. (AAksony neuronów receptorowych węchowych (ORN), kończące się w małym skupisku, zabarwiono za pomocą elektroporacji barwnikiem Alexa 647 Dextran, który nie jest wrażliwy na jony wapnia. Linia przerywana obrysowuje glomerulus γ.B) Obraz tego samego obszaru co w (A) w drugim kanale pomiarowym po podaniu bolusa barwnika wrażliwego na wapń Fluo-8 AM. Widoczne były niektóre somata komórek mitralnych, jednak kontrast był ograniczony. Wzdłuż strzałek wykreślono dwa przebiegi odpowiedzi, które wykorzystano do obrazowania korelacji aktywności (ACI). Niebieskie, czerwone i czarne paski pod przebiegami przedstawiają początek aplikacji zimnego roztworu Ringera, histydyny (10 µM) oraz roztwór Ringera w temperaturze pokojowej jako kontrolę negatywną, odpowiednio. Dwa Ca2+ pobrano ślady z różnych obszarów zainteresowania w mierzonej objętości.C) Wynik ACI śladu z (B), wyróżniający obszary reagujące przeważnie na zimny roztwór Ringera. (D) Wynik ACI śladu z (B), z zaznaczonymi obszarami reagującymi głównie na histydynę. (E) Nałożenie dwóch map ACI. Komórki mitralne reagujące na histydynę oraz unerwiony kłębek (kolor czerwony) były łatwo odróżnialne od termoczułych komórek mitralnych i kłębka γ (kolor cyjan). Wszystkie obrazy na tej rycinie stanowią rzuty maksymalnej intensywności z a 28 µm-grubość objętości. Pasek skali = 20 µm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Przedstawione tu metody mają na celu rejestrację przetwarzania temperatury w opuszce węchowej kijanek Xenopus laevis . Protokół barwi neurony pierwszego i drugiego rzędu w opuszce węchowej i zapewnia przygotowanie próbki, w której układ węchowy pozostaje zasadniczo nienaruszony. W ten sposób można monitorować aktywację wrażliwych na temperaturę γ-kłębuszków nerkowych i porównywać je z ich wrażliwymi na chemoterapię sąsiednimi kłębuszkami nerkowymi. Unikalne obustronne unerwienie tego kłębuszka nerkowego jest uwidocznione przez elektroporację komórek za pomocą spektralnie różnych barwników. Co więcej, ładowanie bolusem pozwala na barwienie komórek mitralnych o dużej objętości w opuszce węchowej. Sieć neuronalna przetwarzająca sygnały wywołane temperaturą ujawnia się poprzez wykonywanie pomiarów wapnia z powtarzającymi się aplikacjami bodźców, a następnie analizowanie danych za pomocą obrazowania korelacji aktywności.
W protokole podkreślono dwie wyrafinowane procedury barwienia, z których obie wymagają ostrożnej manipulacji i praktyki w celu osiągnięcia satysfakcjonujących i powtarzalnych wyników. Podczas elektroporacji należy unikać wszelkich obrażeń zwierząt, zwłaszcza podczas umieszczania elektrod w nozdrzach. Optymalnie nie powinno dojść do kontaktu z nabłonkiem węchowym. Należy pamiętać, że po zabiegu elektroporacji zwierzęta nadal żyją i należy wziąć pod uwagę ich czas rekonwalescencji. Jeśli barwienie pozostaje zbyt słabe po jednej rundzie elektroporacji, co może się zdarzyć w zależności od rodzajów użytych barwników, jego intensywność można zwiększyć poprzez zwiększenie stężenia barwnika w nozdrzach. Ponieważ cząsteczki sprzężone z dekstranem są transportowane za pomocą kilku mechanizmów, w tym powolnego transportu aksonalnego (z prędkością 1-2 mm/dzień10) i dyfuzji biernej, inną alternatywą jest odczekanie 48 godzin po elektroporacji przed złożeniem zwierząt w ofierze. Alternatywnie, elektroporację można powtórzyć po jednym dniu rekonwalescencji.
Ładowanie bolusem jest krytycznym krokiem, ponieważ ilość barwnika dostającego się do komórek mitralnych jest trudna do regulacji i zależy od różnych parametrów, takich jak rozmiar końcówki pipety i lokalizacja aplikacji. Monitorowanie procedury pod konfokalnym mikroskopem fluorescencyjnym okazuje się przydatne do dostosowania czasu nakładania barwnika, a tym samym do uzyskania podobnych wyników barwienia we wszystkich preparatach. Ponadto należy użyć wcześniej elektroporowanych kijanek w celu określenia najlepszej pozycji do aplikacji barwnika poprzez określenie pozycji małego klastra (obejmującego γ-kłębuszków nerkowych). Najważniejszym krokiem podczas pomiarów jest unikanie zarówno przesuwania, jak i bielenia próbki. Przesunięcia można uniknąć, ostrożnie umieszczając przepływ Ringera pod mikroskopem. Aby ograniczyć bielenie obszaru zainteresowania, czas pomiaru powinien zostać skrócony do niezbędnego minimum.
Barwienie w bolusie barwnikami wrażliwymi na wapń zapewnia tylko bardzo ograniczony kontrast, ponieważ zdrowe komórki na ogół mają niski poziom wapnia, a zatem wykazują słabą fluorescencję podstawową. Zastosowanie obrazowania korelacji aktywności pozwala obejść to ograniczenie, generując kontrast na podstawie aktywności i uwydatniając struktury o podobnych sygnałach wapniowych. Ta metoda analizy po akwizycji oblicza współczynnik korelacji między sygnałem wapniowym wybranego obszaru zainteresowania (ślad referencyjny) a sygnałem każdego pojedynczego piksela w objętości 3D. W związku z tym uzyskane wyniki silnie zależą od wzorca aktywności wybranego jako ślad referencyjny. Jeśli głównym celem jest wizualizacja wzorców unerwienia komórek mitralnych, preferowany jest sygnał referencyjny pochodzący ze spontanicznej aktywności neuronalnej, a wybór najbardziej aktywnych komórek mitralnych przyniesie najlepsze wyniki. W celu ujawnienia chemo- lub termoczułych sieci komórek mitralnych należy wybrać ślady referencyjne zawierające tylko odpowiedzi na histydynę lub zimnego Ringera. Wybór całego kłębuszka nerkowego lub somy komórek mitralnych jako obszaru zainteresowania nie zawsze może zapewnić wyraźny ślad odniesienia, zwłaszcza jeśli struktury reagujące na dwa różne bodźce leżą jedna na drugiej. W takim przypadku często przydatne jest wybranie mniejszego obszaru kłębuszków nerkowych lub ciała komórki jako obszaru zainteresowania.
W ostatnich dziesięcioleciach elektroporacja została opisana jako skuteczna metoda barwienia pojedynczych lub wielu ogniw11,12. Tutaj jest używany do specyficznego oznaczania neuronów receptorów węchowych. Cząsteczki sprzężone z dekstranem zapewniają najwyższą skuteczność, a w przypadku barwników niewrażliwych na wapń zakres wyboru jest szeroki i obejmuje pełne spektrum zwykle stosowane w mikroskopii fluorescencyjnej13. Jednak barwniki wrażliwe na wapń, które są z powodzeniem elektroportowane do neuronów receptorów węchowych, są obecnie ograniczone do dekstranu wapniowo-zielonego i dekstranu Fluo-4, jeśli są nadal dostępne na rynku. Poza tym nagrania koncentrują się głównie na powierzchownych warstwach na brzusznej powierzchni opuszki węchowej, ponieważ głębokość penetracji szybkich technik pomiarowych jest ograniczona. Obrazowanie dwufotonowe może częściowo przezwyciężyć to ograniczenie, ale często brakuje mu prędkości i jeszcze bardziej ogranicza ilość wybieralnych barwników wrażliwych na wapń.
Opisaliśmy tutaj protokół pomiaru aktywności indukowanej temperaturą w opuszce węchowej. Neuropil mózgu jest skanowany jako trójwymiarowa objętość w celu wizualizacji złożonych sieci komórkowych zaangażowanych w węchowe przetwarzanie temperatury. Pomiar aktywności indukowanej temperaturą w opuszce węchowej został opisany bardzoniedawno5 i wymaga specjalnie dostosowanej procedury łączącej różne techniki. Główną zaletą przedstawionych powyżej technik jest to, że setki komórek są obrazowane w trzech wymiarach w preparacie, w którym większość układu węchowego pozostaje nienaruszona. Te zalety stawiają wysokie wymagania technikom barwienia, a także przygotowaniu i obrazowaniu mózgu. Na przykład elektroporacja komórek i ładowanie bolusem uderzają w duże ilości komórek w nabłonku węchowym i opuszki, umożliwiając w ten sposób wizualizację kompletnych sieci komórkowych. Co więcej, dostarczanie wskaźników chemicznych poprzez ładowanie bolusem zamiast genetycznie kodowanych fluoroforów umożliwia pomiary w potencjalnie większym zestawie gatunków. Inne alternatywy, takie jak inkubacja w kąpieli z barwnikami AM, działają przede wszystkim w plasterkach, które poważnie uszkadzają opuszkę węchową, pozostawiając tylko kilkaset mikrometrów nienaruszonej tkanki. Dla porównania, cała preparacja montażowa zastosowana w naszym protokole zapewnia na przykład, że obustronne unerwienie γ-kłębuszków nerkowych pozostaje nienaruszone, a więc nagrania są wykonywane w jeszcze działającym systemie. Wreszcie, samo obrazowanie odbywa się za pomocą mikroskopii z oświetleniem liniowym, co pozwala na pozyskiwanie objętości 3D. Mikroskopia liniowa jest jedną z technik konfokalnych zapewniających najwyższe możliwe wskaźniki akwizycji6 , które są niezbędne do pokrycia dużej części opuszki węchowej. Mogą być stosowane wolniejsze systemy akwizycji, ale mają one tę wadę, że rozmiar rejestrowanego wolumenu musi zostać zmniejszony. W ostatnich latach opracowano inne metody szybkiej akwizycji obrazu, które mogą być stosowane jako alternatywy14,15. Niemniej jednak mikroskopia z oświetleniem liniowym pozostaje jedną z najłatwiejszych metod uzyskania zarówno wystarczającej szybkości, jak i rozdzielczości. Poniżej znajduje się kilka informacji jako wskazówek dotyczących wyboru odpowiednich ustawień obrazowania. Ponieważ obrazowanie wapnia odbywa się w grubych preparatach mózgu, konfiguracja powinna zapewniać przyzwoitą konfokalę, a obiektywy powinny mieć apertury numeryczne 1,0 lub wyższe. Jako punkt odniesienia, nagrania wykonane za pomocą mikroskopu z oświetleniem liniowym odpowiadają obrazom wykonanym za pomocą standardowego laserowego mikroskopu skaningowego o wielkości otworka 0,5-1 jednostki przewiewnej. Pożądana jest duża szybkość akwizycji. Objętość o grubości 20 μm pokrytej co najmniej 5 warstwami, bocznym polu widzenia 100 μm x 100 μm i rozmiarze piksela 0,5 μm lub mniejszym należy skanować z minimalną prędkością 1 Hz na stos. Zmniejszenie konfokalności może zwiększyć ilość zliczanych fotonów, a tym samym pozwala na szybszą akwizycję w razie potrzeby, ale ma tę wadę, że rejestruje więcej nieostrego światła. Ponieważ jednak takie podejście zwiększa grubość warstw optycznych, może w rzeczywistości ułatwić śledzenie dendrytów w różnych płaszczyznach z po zastosowaniu ACI6.
W artykule przedstawiono narzędzia niezbędne do szeroko zakrojonego badania procesów temperaturowych w sieciach opuszki węchowej. Aktywność wywołana temperaturą jest rejestrowana w neuronach pierwszego i drugiego rzędu za pomocą wrażliwych na wapń barwników i sygnałów zarówno przychodzących, jak i wychodzących z γ-kłębuszków nerkowych. Ponadto można ocenić stopień, w jakim poszczególne komórki mitralne przetwarzają zarówno informacje chemiczne, jak i temperaturowe. Ponieważ preparat pozostawia opuszkę węchową w stanie nienaruszonym, można dalej badać rolę obustronnego unerwienia w procesie węchowym. Procedura ta jest również przydatna do ujawnienia, czy i w jaki sposób termo- i chemoinformacja jest kodowana w nakładających się na siebie sieciach węchowych5. Wreszcie, wymienione powyżej techniki nie ograniczają się do badania reakcji temperaturowych w opuszce węchowej, ale mogą być stosowane do bardziej ogólnej oceny układu węchowego, zwłaszcza sieci przetwarzania komórkowego w dużych objętościach trójwymiarowych. Obrazowanie obciążenia bolusem i korelacji aktywności jest potężnym narzędziem do obserwacji i porównywania aktywności dziesiątek neuronów, dzięki czemu można je zastosować do różnych sieci mózgowych16.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ten projekt został sfinansowany przez DFG Excellence Cluster 171, Center for Nanoscale Microscopy and Molecular Physiology of the Brain, Bernstein Center for Computational Neuroscience oraz ENC-Network, wspólny program doktorancki Erasmus Mundus. Autorzy dziękują Stephanowi Junekowi, Mihai Alevrze i Guobinowi Bao za dostarczenie kodów MATLAB i niestandardowych programów do oceny obrazu i analizy danych.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Reodczynniki | |||
| Chlorek sodu | Merck Millipore | 1064040500 | |
| Chlorek potasu | Merck Millipore | 1049360250 | |
| Dwuwodny chlorek wapnia | Merck Millipore | 1023820250 | |
| Chlorek magnezu sześciowodny | Merck Millipore | 1058330250 | |
| D(+)-Glukoza | Merck Millipore | 1083371000 | |
| Pirogronian sodu | Sigma-Aldrich | P2256 | |
| HEPES | Merck Millipore | 1101100250 | |
| Calcium Green 10 kDa Dekstran | Thermo Fisher Scientific | C-3713 | |
| Dextran, Alexa Fluor 647 | Thermo Fisher Scientific | D-22914 | |
| Dextran, Alexa Fluor 546 | Thermo Fisher Scientific | D-22911 | |
| Fluo-8 AM | TEFlabs | 203 | |
| MK571 | Alexis Biochemicals | 340-021-M005 | |
| MS-222 | Sigma-Aldrich | E10521 | |
| Kwas pluronowy F-127 | Sigma-Aldrich | P2443 | proszek |
| Monochlorowodorek L-histydyny monohydrat | Sigma-Aldrich | 53370 | |
| DMSO | Merck Millipore | 1029522500 | |
| Equipment | |||
| Elektroniczna pipeta | BrandTech | HandyStep Elektroniczna pipeta | |
| termopara NiCr-Ni | Greisinger Elektronik | GTF 300 | |
| Ściągacz do mikropipet | Narishige | Model PC-10 | ściągacz dwustopniowy |
| Aplikator lejkowy | (wykonany na zamówienie) | ||
| Mikroskop z oświetleniem liniowym | (wykonany na zamówienie) | w przeciwnym razie dostępny na rynku mikroskop z wirującym dyskiem | |
| Obiektyw W Plan-Apochromat 63X/1.0 | Zeiss | 441470-9900-000 | |
| Obiektyw W Plan-apochromat 40X/1.0 DIC | Zeiss | 441452-9900-000 | |
| Software | |||
| MATLAB | MathWorks | od R2010b wzwyż |
Bibliografia
- Mamasuew, K., Breer, H., Fleischer, J. Grueneberg ganglion neurons respond to cool ambient temperatures. Eur J Neurosci. 28 (9), 1775-1785 (2008).
- Brechbühl, J., Moine, F., Broillet, M. -C. Mouse Grueneberg ganglion neurons share molecular and functional features with C. elegans amphid neurons. Front. Behav. Neurosci. 7 (193), (2013).
- Gaudin, A., Gascuel, J. 3D atlas describing the ontogenic evolution of the primary olfactory projections in the olfactory bulb of Xenopus laevis. J Comp Neurol. 489 (4), 403-424 (2005).
- Stosiek, C., Garaschuk, O., Holthoff, K., Konnerth, A. In vivo two-photon calcium imaging of neuronal networks. Proc Natl Acad Sci U S A. 100 (12), 7319-7324 (2003).
- Kludt, E., Okom, C., Brinkmann, A., Schild, D. Integrating temperature with odor processing in the olfactory bulb. J Neurosci. 35 (20), 7892-7902 (2015).
- Junek, S., Chen, T. W., Alevra, M., Schild, D. Activity correlation imaging: visualizing function and structure of neuronal populations. Biophys J. 96 (9), 3801-3809 (2009).
- Nieuwkoop, P. D., Faber, J. Normal Table of Xenopus laevis. , Garland Publishing Inc. New York. (1994).
- Schild, D. A computer-controlled device for the application of odors to aquatic animals. J Electrophysiol Tec. 12 (2), 71-79 (1985).
- Bao, G., Schild, D. Fast and Accurate Fitting and Filtering of Noisy Exponentials in Legendre Space. PLoSONE. 9 (3), (2014).
- Terasaki, M., Schmidek, A., Galbraith, J. A., Gallant, P. E., Reese, T. S. Transport of cytoskeletal elements in the squid giant axon. Proc Natl Acad Sci U S A. 92 (25), 11500-11503 (1995).
- Haas, K., Sin, W. C., Javaherian, A., Li, Z., Cline, H. T. Single-Cell Electroporationfor Gene Transfer In Vivo. Neuron. 29 (3), 583-591 (2001).
- Haas, K., Jensen, K., Sin, W. C., Foa, L., Cline, H. T. Targeted electroporation in Xenopus tadpoles in vivo-from single cells to the entire brain. Differentiation. 70 (4-5), 148-154 (2002).
- Paredes, R. M., Etzler, J. C., Watts, L. T., Lechleiter, J. D. Chemical Calcium Indicators. Methods. 46 (3), 143-151 (2008).
- Salome, R., et al. Ultrafast random-access scanning in two-photon microscopy using acousto-optic deflectors. J Neurosci Methods. 154 (1), 161-174 (2006).
- Keller, P. J., Ahrens, M. B., Freeman, J. Light-sheet imaging for systems neuroscience. Nature Methods. 12 (1), 27-29 (2015).
- Hjorth, J. J., et al. Detection of silent cells, synchronization and modulatory activity in developing cellular networks. Dev Neurobiol. , (2015).
Przedruki i uprawnienia
