Opisany tutaj protokół reprezentuje łatwą i powtarzalną metodę, która wykorzystuje wysokosprawną chromatografię cieczową z odwróconymi fazami (RP-HPLC) do pomiaru metabolizmu puryn na komórkach przewlekłej białaczki limfocytowej (CLL) hodowanych w różnych warunkach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test oparty na HPLC do monitorowania zewnątrzkomórkowego metabolizmu nukleotydów/nukleozydów w ludzkich komórkach przewlekłej białaczki limfocytowej
W tym artykule
Podsumowanie
Streszczenie
Ta metoda opisuje czuły, specyficzny, niezawodny i powtarzalny test wysokosprawnej chromatografii cieczowej z odwróconymi fazami (RP-HPLC), opracowany i zatwierdzony do oznaczania ilościowego zewnątrzkomórkowych nukleotydów purynowych i nukleozydów wytwarzanych przez oczyszczone komórki przewlekłej białaczki limfocytowej (CLL) w różnych warunkach hodowli. Chromatograficzne rozdzielanie adenozyno-5'-monofosforanu (AMP), adenozyny (ADO) i inozyny (INO) przeprowadza się w temperaturze pokojowej na kolumnie o odwróconych fazach na bazie krzemionki, która służy do zatrzymywania związków polarnych. Metoda obejmuje dwuskładnikową fazę ruchomą, która składa się z octanu amonu i acetonitrylu o natężeniu przepływu 1,00 ml/min. Eluaty są monitorowane za pomocą detektora UV Photodiode Array ustawionego na 260 nm. Standardowa krzywa kalibracyjna jest generowana w celu obliczenia równania analitycznego oznaczania ilościowego każdego związku purynowego. Następnie przeprowadzana jest kontrola systemu, akwizycja i analiza danych. Stosując ten protokół, AMP, INO i ADO eluują odpowiednio po 7, 11 i 11,9 min, a całkowity czas pracy dla każdej próbki wynosi 20 min. Protokół ten może być stosowany do różnych typów komórek i linii komórkowych (zarówno zawiesinowych, jak i adherentnych), przy użyciu pożywek hodowlanych jako matrycy. Zaletami są łatwe i szybkie przygotowanie próbki oraz wymóg użycia niewielkiej ilości supernatantu do analizy. Co więcej, zastosowanie pożywki bez surowicy pozwala na pominięcie etapu wytrącania białek acetonitrylem, który wpływa na końcowe stężenie związków purynowych. Jednym z ograniczeń tej metody jest wymóg uruchomienia kolumny równowagi przed każdym pojedynczym cyklem próbki, co wydłuża całkowity czas trwania eksperymentu i zapobiega aplikacjom przesiewowym o wysokiej przepustowości.
Wprowadzenie
Adenozyna (ADO) jest nukleozydem purynowym, w którym cząsteczka adeniny jest połączona z fragmentem cząsteczki cukru rybozy poprzez wiązanie glikozydowe. Gdy występuje w środowisku zewnątrzkomórkowym, chroni ona komórki przed nadmiernymi uszkodzeniami wywołanymi przez układ odpornościowy. Rola ta została podkreślona w różnych modelach chorobowych, takich jak zapalenie jelita grubego1, cukrzyca2, astma3, sepsa4 oraz uszkodzenia niedokrwienne5. Jedną z głównych funkcji ADO jest hamowanie odpowiedzi immunologicznej w mikrośrodowisku guza, co przyczynia się do ucieczki immunologicznej nowotworu6. Z tego powodu mechanizmy zaangażowane w powstawanie i sygnalizację ADO budzą znaczne zainteresowanie terapeutyczne7.
Poziomy ADO w mikrośrodowisku tkankowym są stosunkowo niskie w normalnych warunkach fizjologicznych i z pewnością znajdują się poniżej progu wrażliwości komórek odpornościowych. Jednakże podczas hipoksji, niedokrwienia, stanu zapalnego, infekcji, stresu metabolicznego i transformacji nowotworowej gwałtownie wzrastają8. Podwyższone pozakomórkowe poziomy ADO w odpowiedzi na sygnały zaburzające strukturę tkanki pełnią podwójną funkcję: informują o uszkodzeniu tkanki w sposób autokrynny i parakrynny oraz generują odpowiedzi tkankowe, które można ogólnie uznać za cytoprotekcyjne.
Zewnątrzkomórkowa ADO może powstawać poprzez różne mechanizmy, do których należy uwalnianie z przedziałów wewnątrzkomórkowych za pośrednictwem transporterów nukleozydów9 lub gromadzenie się w wyniku upośledzonej degradacji katalizowanej przezt przezt adenozynodeaminazę. Główna ścieżka prowadząca do zwiększenia zewnątrzkomórkowego poziomu ADO obejmuje działanie kaskady ektonukleotydaz, które są związanymi z błoną ektoenzymami generującymi ADO poprzez fosfohydrolizę nukleotydów uwalnianych z martwych lub obumierających komórek. Ścieżka ta przebiega poprzez sekwencyjne działanie CD39 (ektonukleozydotrifosforanodifosfohydrolazy-1), która przekształca zewnątrzkomórkowy adenozynotrifosforan (ATP) lub adenozynodifosforan (ADP) w adenozynomonofosforan (AMP), oraz CD73 (5'-nukleotydazy), która przekształca AMP w ADO10.
Zewnątrzkomórkowa ADO wywołuje odpowiedzi fizjologiczne poprzez wiązanie się z czterema receptorami ADO zlokalizowanymi w błonie komórkowej, mianowicie A1, A2A, A2B i A3. Każdy z receptorów wykazuje inne powinowactwo do ADO oraz specyficzną dystrybucję tkankową. Wszystkie receptory posiadają siedem domen transbłonowych i są sprzężone z wewnątrzkomórkowymi białkami wiążącymi GTP (białkami G), które mogą indukować (białko Gs) lub hamować (białko Gi) aktywność cyklazy adenylanowej, a w konsekwencji produkcję wewnątrzkomórkowego cAMP. W związku z tym zmiany poziomu cAMP w cytoplazmie wpływają na aktywność wewnątrzkomórkowych kinaz białkowych podczas odpowiedzi fizjologicznych.11W warunkach fizjologicznych stężenie zewnątrzkomórkowej ADO wynosi poniżej 1 µM, który może niespecyficznie aktywować receptory A1, A2A i A3. Jednakże aktywacja podtypu A2B wymaga znacznie wyższych stężeń nukleozydu, takich, jakie powstają w warunkach patofizjologicznych. Alternatywnie, zewnątrzkomórkowa ADO może być degradowana do anozyny (INO) przez adenozynodeaminazę (ADA) oraz CD26, białko kompleksujące ADA, które lokalizuje tę enzym na powierzchni komórki. Inną możliwością jest internalizacja ADO do wnętrza komórki poprzez równowagowe transportery nukleozydów (ENT) i fosforylacja do AMP przez białko kinazy ADO12,13.
Celem niniejszego protokołu jest opis analitycznej metody odwrotnej fazowej wysokosprawnej chromatografii cieczowej (RP-HPLC) w celu ilościowego oznaczenia w jednym przebiegu substratu AMP oraz produktów ADO i INO, generowanych przez ludzkie limfocyty. Nasze doświadczenie zdobyto początkowo z wykorzystaniem komórek od pacjentów z przewlekłą białaczką limfocytową (CLL), która charakteryzuje się ekspansją dojrzałej populacji limfocytów B CD19+/CD5+ konstytutywnie wykazujących ekspresję CD3914,15. Wykazaliśmy, że około 30% pacjentów z CLL wykazuje ekspresję ektoenzymu CD73 i że fenotyp ten koreluje ze złym rokowaniem16. Ta subpopulacja komórek białaczkowych koekspresujących CD39 i CD73 może aktywnie produkować zewnątrzkomórkowe ADO z ADP i/lub AMP. Preinkubacja komórek CLL CD73+ z α,β-metylenowo-ADP (APCP), znanym inhibitorem aktywności enzymatycznej CD73, całkowicie blokuje syntezę zewnątrzkomórkowego ADO, co potwierdza, że CD73 jest enzymem ograniczającym szybkość tej kaskady16.
Komórki CLL wykazują również ekspresję ADA oraz białka kompleksującego ADA, CD26, które odpowiadają za konwersję ADO do INO. Dzięki zastosowaniu specyficznych inhibitorów ADA, takich jak chlorowodorek erythro-9-(2-hydroksy-3-nonyl)adeniny (EHNA) i ksylokortyna (dCF), możliwe jest zablokowanie zewnątrzkomórkowej degradacji ADO do INO. Ponadto wstępna inkubacja z inhibitorem ADA w połączeniu z dipirydamolem, który blokuje transportery nukleozydów, zwiększa akumulację ADO w nadsączach komórkowych.
Następnie rozszerzyliśmy ten protokół na komórki pochodzące z innych linii, w tym na limfocyty T i komórki mieloidalne, potwierdzając zależną od CD73 produkcję ADO. Wyniki te sugerują, że niniejszy protokół HPLC jest niezwykle wszechstronny i może być stosowany w odniesieniu do różnych linii komórkowych oraz różnych warunków hodowli (Rycina 1).
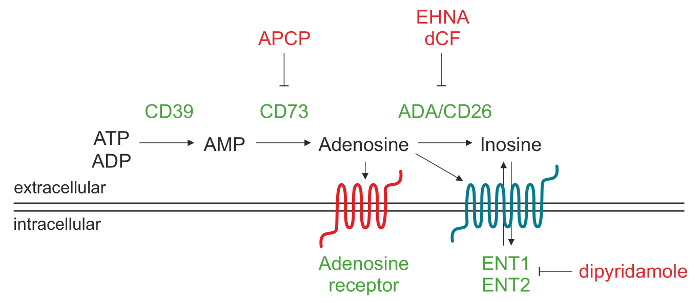
Rycina 1. Schematyczny opis mechanizmu enzymatycznego odpowiedzialnego za pozakomórkową produkcję ADO. Adenozynotrifosforan (ATP) i/lub adenozynodifosforan (ADP) mogą być degradowane przez CD39 do adenozynomonofosforanu (AMP), który z kolei jest przekształcany przez CD73 w nukleozyd adenozynę (ADO). Po wytworzeniu ADO w przestrzeni pozakomórkowej może ona ponownie wniknąć do komórki poprzez transportery nukleozydów (ENT), zostać przekształcona w anozynę (INO) lub związać się z różnymi typami receptorów P1 dla ADO. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Próbki krwi od pacjentów z CLL pobierane są zgodnie z wytycznymi instytucjonalnymi oraz Deklaracją Helsińską.
1. Izolacja limfocytów białaczkowych z próbek krwi pacjentów z CLL
- Pobrać próbkę krwi do probówki z heparyną sodową (z zieloną zakrętką)17.
- Przygotować rozcieńczenie krwi pełnej w stosunku 1:3 w 1x soli fizjologicznej fosforanowej (PBS) w temperaturze pokojowej (RT).
- Oczyścić mononuklearne komórki krwi obwodowej (PBMC) z próbek krwi metodą wirowania w gradiencie gęstości.
- Wlać 5 ml medium do wirowania gęstościowego (np. Ficoll) do probówki wirówkowej o pojemności 15 ml, a następnie ostrożnie nanieść 10 ml rozcieńczonej krwi. Bezzwłocznie wirować przy 1,500 x g przez 20 min w RT.
- Odssać część nadsączu za pomocą szklanej pipety Pasteura podłączonej do pompy próżniowej i zebrać pierścień PBMC z interfejsu między medium do wirowania gęstościowego a rozcieńczoną plazmą za pomocą pipety 5 ml. Przenieść zawartość do probówki wirówkowej 50 ml i przemyć PBS (końcowa objętość 50 ml). Wirować przy 500 x g przez 5 min w 4 °C.
- Odssać nadsącz szklaną pipetą Pasteura, resuspendować osad w 50 ml PBS i policzyć komórki przy użyciu hemocytometru.
- Przebarwić PBMC przeciwciałami anty-CD19 i -CD5 do cytometrii przepływowej zgodnie ze standardowym protokołem immunobarwienia i sprawdzić skład subpopulacji PBMC18.
Uwaga: Limfocyty w CLL są CD19+/CD5+. - Oznaczyć % komórek CD19+/CD5+ za pomocą cytometru przepływowego18. Oczyścić limfocyty B od pacjentów z ≥95% leukemicznych komórek CD19+/CD5+ zgodnie z instrukcjami szczegółowo opisanymi w kroku 2 dotyczącymi negatywnej izolacji limfocytów B19.
2. Oczyszczanie leukemicznych limfocytów B metodą izolacji negatywnej
- Resuspendować 107 PBMC/ml w PBS z 0,1% albuminy surowicy bydlęcej (BSA) i 2 mM EDTA, pH 7,4 (bufor do izolacji).
- Do 107 komórek dodać 10 µg mysich przeciwciał monoklonalnych pierwotnych anty-CD3, -CD14 i -CD16, a następnie inkubować przez 30 min w 4 °C.
- Przemyć komórki buforem do izolacji i odwirować przy 500 x g przez 5 min w 4 °C.
- Resuspendować komórki w buforze do izolacji w stężeniu 107 PBMC/ml.
- Przed inkubacją z komórkami resuspendować magnetyczne kulki z owczymi przeciwciałami anty-mysie IgG w fiolce. Przenieść 100 µl kulek na 107 komórek do probówki.
- Dodać 1 mL buforu do izolacji i umieścić probówkę w uchwycie magnetycznym na 1 min. Odpipetować nadsącz za pomocą pipety 5 ml.
- Wyjąć probówkę z magnesu i resuspendować przemyte kulki w 100 µl buforu do izolacji.
- Inkubować 107 komórek ze 100 µl kulek magnetycznych przez 30 min w 4 °C przy delikatnym przechylaniu i rotacji.
- Umieścić probówkę w uchwycie magnetycznym na 2 min i przenieść nadsącz z niezwiązanymi komórkami CD19+/CD5+ do nowej probówki za pomocą pipety 5 ml.
- Po zakończeniu protokołu izolacji, 100 µl komórek zbarwić przeciwciałami anty-CD19 i -CD5 do cytometrii przepływowej i inkubować przez 30 min w 4 °C. Przemyć komórki 3 ml PBS z 1% BSA, odpipetować nadmiar nadsączu i ponownie sprawdzić czystość limfocytów B za pomocą cytometrii przepływowej19.
Uwaga: Jeśli czystość limfocytów B jest niższa niż 95%, należy przeprowadzić dodatkowy etap izolacji negatywnej.
3. Przygotowanie roztworów standardu i roztworów zapasowych inhibitorów
- Aby przygotować AMP, odważ 0,00345 g AMP i rozpuść w 5 ml medium bezsurowiczego, aby otrzymać 2 mM roztwór standardowy AMP.
- Aby przygotować ADO, odważ 0,00265 g ADO i rozpuść w 5 ml medium bezsurowiczego, aby otrzymać 2 mM roztwór standardowy ADO.
- Aby przygotować INO, odważ 0,00268 g INO i rozpuść w 5 ml medium bezsurowiczego, aby otrzymać 2 mM roztwór standardowy INO.
- Przygotuj 400 µM roztwór AMP, ADO i INO, mieszając 1 ml 2 mM roztworu stokowego z 4 ml medium bezsurowiczego (objętość końcowa 5 ml).
- Wykonaj rozcieńczenie 1:4 każdego 400 µM roztworu standardowego, aby uzyskać stężenie 100 µM, pipetując 500 µl roztworu 400 µM do 1 500 µl medium bezsurowiczego (objętość końcowa 2 ml).
- Przygotuj rozcieńczenia seryjne każdego związku w medium bezsurowiczym, aby uzyskać następujące stężenia: 100 µM - 50 µM - 25 µM - 10 µM - 5 µM - 2,5 µM - 1 µM - 0,5 µM - 0,25 µM.
Uwaga: Na przykład, pipetuj 1 ml roztworu 100 µM do 1 ml medium bezsurowiczego (rozcieńczenie 1:2), aby uzyskać stężenie 50 µM, a następnie kontynuuj pozostałe rozcieńczenia.
- Przygotuj 10 mM roztwór stokowy APCP rozpuszczony w PBS; podziel na aliquoty i przechowuj w temperaturze -30 °C.
- Przygotuj 10 mM roztwory stokowe chlorowodorku EHNA, dCF i dipyrydamolu rozpuszczone w dimetylosulfoksydzie (DMSO); podziel na aliquoty i przechowuj w temperaturze -30 °C.
4. Programowanie metody HPLC
- Przygotować bufor octanu amonu o stężeniu 7 mM, rozpuszczając 0,770 g octanu amonu w 2 L podwójnie dejonizowanej wody (Bufor A). Dostosować pH do wartości 3,0 za pomocą kwasu solnego.
- Przygotować szklaną butelkę zawierającą co najmniej 2 L ultrazczystego acetonitrylu do HPLC (Bufor B) i podłączyć kolumnę guardingową oraz kolumnę analityczną do układu HPLC.
Uwaga: Kolumny i bufory pozostają w temperaturze RT podczas użytkowania. - Zalogować się do oprogramowania HPLC i wybrać przycisk „browse project”. Przejść do menu „file”, wybrać „new method”, a następnie „instrument method”.
- Zaprogramować metodę równoważenia kolumny zgodnie z Tabelą 1. Ustawić szybkość przepływu na 1,00 ml/min i zaprogramować detektor UV na odczyt przy 260 nm. Zapisać metodę instrumentu, ponownie wybrać „new method” z menu „file”, a następnie „method set”. Wybrać wcześniej zapisaną metodę instrumentu i zapisać bieżący zestaw metod pod tą samą nazwą.
| Czas | Przepływ (ml/min) | %A | %B |
| 1.00 | 100 | 0 | |
| 1.24 | 1.00 | 100 | 0 |
| 6.22 | 1.00 | 2 | 98 |
| 18.65 | 1.00 | 2 | 98 |
Tabela 1: Metoda równoważenia kolumny. Schematyczny przedstawienie zmian rozpuszczalnika podczas równoważenia kolumny. Bufor A: 7 mM octanu amonu, pH 3.0. Bufor B: acetonitryl.
- Powtórz krok 4.3, aby zaprogramować metodę analizy próbki wskazaną w Tabeli 2. Ustaw szybkość przepływu na 1,00 mL/min i zaprogramuj detektor UV na odczyt przy 260 nm. Zapisz metodę urządzenia i powtórz tę samą procedurę opisaną w kroku 4.4, aby zapisać zestaw metod.
| Czas | Przepływ (ml/min) | %A | %B |
| 1.00 | 0 | 100 | |
| 3.74 | 1.00 | 0 | 100 |
| 13.71 | 1.00 | 15 | 85 |
| 17.00 | 1.00 | 100 | 0 |
| 20.00 | 1.00 | 100 | 0 |
Tabela 2: Metoda analizy próbek. Schematyczne przedstawienie zmian rozpuszczalników dla pomiaru związków purynowych metodą HPLC. Bufor A: 7 mM octanu amonu, pH 3.0. Bufor B: acetonitryl.
- Wybierz przycisk „run samples”, a następnie z menu „file” wybierz opcję „new sample set method”.
- Wybierz opcję „empty” i wprowadź numer fiolki (w autosamplerze), nazwę próbki oraz objętość wtrysku (50 µl). W kolumnie „method set” wybierz wcześniej zapisany zestaw metod i wprowadź całkowity czas analizy (min).
Uwaga: Przed analizą każdej próbki wprowadź w kolumnie „method set” metodę równoważenia kolumny (Tabela 1) oraz podaj całkowity czas analizy (min).
5. Wyznaczenie standardowej krzywej kalibracyjnej dla każdego związku
- Wstrzyknij 50 µl próbki ślepej (specyficzne medium bezsurowicze, które nie zawierat adenozynodeaminazy) oraz każdej próbki standardowej zgodnie z metodami opisanymi w Tabeli 1 i Tabeli 2.
- Przed każdym przebiegiem próbki zastosuj metodę kolumny równoważącej (Tabela 1) i ustaw warunki gradientu opisane w Tabeli 2, aby uzyskać odpowiednią separację pików. Czasy retencji AMP, ADO i INO w tych warunkach HPLC podano w Tabeli 3.
| Czas retencji | λmaksymalny | |
| AMP | 8,00 min | 260 |
| INO | 11,00 min | 260 |
| ADO | 11.90 min | 260 |
Tabela 3: Czasy retencji związków purynowych.Typowe czasy retencji zaobserwowane dla AMP, ADO i INO. Detektor UV jest zaprogramowany na odczyt przy 260 nm.
- Wyznacz pole powierzchni piku dla AMP, ADO i INO przy różnych stężeniach, wybierając przycisk „process” w oprogramowaniu HPLC, a następnie opcję „integrate”. Alternatywnie można ręcznie zaznaczyć punkty początkowe i końcowe każdego piku.
- Wykreśl zależność pól powierzchni pików od nominalnego stężenia każdego standardu, aby otrzymać dziewięciopunktową krzywą kalibracyjną (100, 50, 25, 10, 5, 2.5, 1, 0.5, 0.25 µM).
- Oblicz równanie linii prostej dla AMP, ADO i INO: y = mx + b,
gdzie x to stężenie w µM, a y odpowiada polu powierzchni piku.
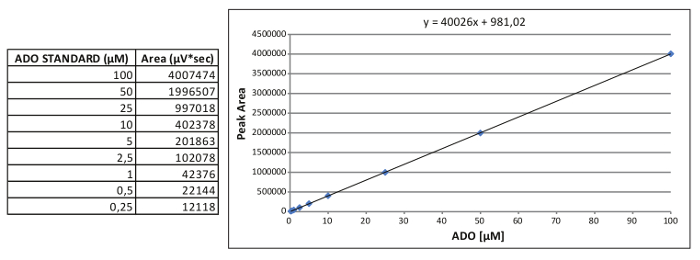
Rycina 2. Wyznaczenie krzywej wzorca wewnętrznego. Reprezentatywna krzywa kalibracyjna dla ADO oraz uzyskane równanie względne. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
6. Obróbka wstępna inhibitorami i inkubacja z substratem (AMP)
- Aby zbadać zużycie AMP oraz generowanie ADO i INO bez hamowania CD73, ADA i transporterów nukleozydów, zawiesić 2 x 10⁶ komórek CLL CD19+/CD5+ (wyizolowanych i oczyszczonych w krokach 1 i 2) w 250 µl medium bezsurowiczego i wysiać komórki na płytkę 48-dołkową (lub do probówki do mikrocentryfugi o pojemności 1,5 ml).
- Aby zablokować aktywność enzymatyczną CD73, rozcieńczyć roztwór zapasowy APCP (10 mM) w medium hodowlanym w stosunku 1:1 000, aby uzyskać stężenie końcowe 10 µM. Zawiesić 2 x 10⁶ komórek CLL w 250 µl medium hodowlanego zawierającego APCP i poddać obróbce wstępnej przez 60 min w 37 °C w inkubatorze do hodowli komórkowych.
- Aby zablokować konwersję ADO do INO, rozcieńczyć roztwór zapasowy chlorowodorku EHNA i/lub dCF (oba 10 mM) w medium bezsurowiczym w stosunku 1:1 000, aby uzyskać stężenie końcowe 10 µM. Zawiesić 2 x 10⁶ komórek CLL w 250 µl medium hodowlanego zawierającego EHNA i/lub dCF. Inkubować przez 30 min w 37 °C w inkubatorze do hodowli komórkowych.
- Aby zablokować pobieranie ADO przez transportery nukleozydów, rozcieńczyć roztwór zapasowy dipirydamolu (10 mM) w medium bezsurowiczym w stosunku 1:1 000, aby uzyskać stężenie końcowe 10 µM. Zawiesić 2 x 10⁶ komórek CLL w 250 µl medium hodowlanego zawierającego dipirydamol i inkubować przez 30 min w 37 °C w inkubatorze do hodowli komórkowych.
- Przygotować pojedyncze roztwory APCP, EHNA, dCF i dipirydamolu rozcieńczone 1:1 000 w 400 µM AMP.
- Dodać 250 µl 400 µM AMP lub AMP z inhibitorami, aby uzyskać stężenie końcowe 200 µM AMP. Uwzględnić warunek bez substratu, który będzie służył jako próbka ślepa.
- Inkubować od 30 do 60 min w 37 °C.
Uwaga: Optymalne stężenie AMP oraz czas inkubacji zostały określone eksperymentalnie. - Po zakończeniu czasu inkubacji zebrać 500 µl nadnadłożów do zimnych probórek do mikrocentryfugi (na lodzie) i natychmiast odwirować przy 17 000 x g w 4 °C przez 5 min.
- Przenieść nadnadłoża do nowych probówek do mikrocentryfugi o pojemności 1,5 ml i natychmiast przechowywać w -80 °C lub przystąpić do przygotowania próbek do analiz HPLC.
7. Przygotowanie próbek do HPLC
- Przefiltrować nadsączniki do nowych probówek mikrocentryfużowych o pojemności 1,5 ml, używając filtrów strzykawkowych 0,2 µm. Do filtrowania należy używać strzykawek 1 ml.
- Jeśli system HPLC jest wyposażony w autoprobnik, należy przygotować szklane fiolki do HPLC i zastosować mikroinserty 0,1 ml w przypadku małych objętości próbki.
- Przenieść co najmniej 100 µl próbki do szklanej fiolki za pomocą mikropipety lub szklanej pipety Pasteura. Należy uważać, aby przenieść ciecz bez pęcherzyków powietrza, a następnie zamknąć fiolkę zakrętką z gwintem.
- Próbki są teraz gotowe do analizy metodą RP-HPLC.
8. Pomiary puryn metodą HPLC
- Wybierz przycisk „run samples”; z menu „file” wybierz opcję „new sample set method”.
- Wybierz opcję „empty” i określ: numer fiolki (w autosamplerze), nazwę próbki oraz objętość wtrysku (50 µl).
- Wybierz metodę równoważenia kolumny oraz metodę analizy próbki opisane odpowiednio w Tabeli 1 i Tabeli 2 dla wszystkich następujących pomiarów ślepych prób i próbek.
Uwaga: Metodę równoważenia kolumny (Tabela 1) należy ustawić przed każdą analizą próbki. - Wstrzyknij 50 µl próby ślepej (pożywka bez surowicy) oraz każdej z próbek.
- Określ stężenie puryn w każdej próbce, skwantyfikuj AMP, ADO i INO, uzyskując pola powierzchni pików w czasach retencji opisanych w Tabeli 3.
- Wybierz przycisk „process”, a następnie opcję „integrate”. Alternatywnie można ręcznie wybrać punkty początkowy i końcowy każdego pojedynczego piku, aby uzyskać pomiar pola powierzchni. Odbywa się to poprzez wyrysowanie linii między punktem początkowym a końcowym piku.
- Wyznacz stężenie w µM, stosując równanie otrzymane dla krzywej wzorcowej: y = mx + b, gdzie x oznacza stężenie w µM, a y to pole powierzchni piku zmierzone w nieznanej próbce.
Uwaga: Przykład krzywej wzorcowej dla kalibracji ADO przedstawiono na Rysunku 2, gdzie: x = (y area - 981.02)/40026
- Przyjmując, że 2 x 10⁶ komórek resuspenderowano w 0,500 ml pożywki, oblicz liczbę µmoli AMP, ADO i INO zużytych i/lub wytworzonych przez 106 komórek CLL, stosując następującą proporcję:
µmoles : 1,000 ml = x µmoles : 0.250 ml
Uwaga: Liczba µmoli w 1,000 ml (liczba µmoli w 1 L) jest równoważna stężeniu w µM, a x to liczba µmoli nukleotydu lub nukleozydu wytworzonych przez 106 komórek.- Na koniec przelicz µmole na nmole zużyte i/lub wytworzone przez 106 komórek CLL:
nmoles = µmoles x 1,000
- Na koniec przelicz µmole na nmole zużyte i/lub wytworzone przez 106 komórek CLL:
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Aby ocenić procent (%) komórek białaczkowych w świeżo oczyszczonych PBMC od reprezentatywnego pacjenta z CLL, komórki znakuje się przeciwciałami anty-CD19 i anty-CD5. Lewy panel Rysunku 3 przedstawia cytofluorymetryczny wykres kropkowy z selektywnym bramkowaniem żywych komórek. Rysunek 3 pokazuje przykład PBMC od pacjenta z CLL przed (panel środkowy) i po (panel prawy) oczyszczaniu limfocytów B.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Opisany tutaj protokół pozwala na ocenę aktywności maszynerii adenozynergicznej CD39/CD73 w pożywkach do hodowli komórkowych z oczyszczonych ludzkich komórek białaczkowych. Dzięki tej metodzie HPLC możemy śledzić i ilościowo mierzyć enzymatyczne wytwarzanie ADO (zależne od CD73) i jego późniejszą degradację do INO (zależne od CD26 / ADA). Stosowanie inhibitorów enzymów pozwala na kontrolowanie protokołu i przeprowadzanie kontroli wewnętrznych. Zaletami i nowościami tego protokołu są to, że i) można go stosować do komórek...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca jest wspierana przez Associazione Italiana Ricerca Cancro (IG #12754).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Krew ludzka | |||
| Woda Milli-Q | Podwójnie dejonizowana woda | Millipore | |
| Ficoll-Paque Plus | GE-Healthcare | 17-1440-03 | |
| oczyszczony anty-CD3, -CD14, -CD16 | wyprodukowany we własnym zakresie | mysi monoklonalny | |
| PE z oznaczeniem anty-CD19 | Miltenyi Biotec | 120-014-229 | |
| z oznaczeniem FITC anty-CD5 | Miltenyi Biotec | 130-096-574 | |
| Dynabeads owcze anty-mysie IgG | Invitrogen | 11031 | |
| Sól fizjologiczna buforowana fosforanami (PBS) | Amresco | E404-200TABS tabletki | |
| albumina surowicy bydlęcej (BSA) | ID Bio | 1000-70 | standardowy |
| bufor | PBS 0,1% BSA 2 mM EDTA, pH 7,4 | ||
| AIM V surowica wolne podłoże | GIBCO | 12055-091 | płyn (klasa badawcza) |
| adenozyno5'-difosforan (ADP) | Sigma-Aldrich | A2754 | |
| adenozyno5'-monosfat (AMP) | Sigma-Aldrich | A1752 | |
| adenozyna (ADO) | Sigma-Aldrich | A9251 | |
| inozyna (INO) | Sigma-Aldrich | I4125 | |
| & alfa;,β-metyleno-ADP (APCP) | Sigma-Aldrich | M8386 | Inhibitor CD73 |
| Chlorowodorek EHNA | Sigma-Aldrich | E114 | deaminazy adenozynowej |
| Deoksykoformycyna (dCF) | Tocris | 2033 | inhibitor deaminazy adenozynowej |
| Dimetylosulfotlenek (DMSO) | Sigma-Aldrich | D2650 | |
| Dipirydamol | Sigma-Aldrich | D9766 | transportera nukleozydów |
| acetonitryl (CHROMASOLV Plus) | Sigma-Aldrich | 34998 | |
| octan amonu | Sigma-Aldrich | 9688 | 7 mM, pH 3,0 |
| kwas solny | Sigma-Aldrich | 30721-1L | min. 37% |
| Nazwa | Firma | Katalog Numer | Komentarze |
| Sprzęt | |||
| Bü licznik komórek rker | hemocytometr | VWR | 631-0920 |
| DynaMag-15 Magnet | Invitrogen | 12301D | Dynal magnetyczny separator kulek |
| mikrowirówka probówki safe-lock | Eppendorf | 030-120-0086 | 1,5 ml |
| probówki wirówkowe PET | Corning | 430053/430304 | 15 – 50 ml |
| Filtry strzykawkowe Minisart RC4 | Sartorius Stedim Biotech | 17821 | membrana 0,2 i mikro; |
| m fiolki z krótkim gwintem | VWR | 548-0029 | 1,5 ml/mikrowkładki szklane |
| VWR | 548-0006 | 0,1 ml/nakrętki szklane | |
| VWR | 548-0085 | 9 mm/PP niebieskie | |
| Atlantis dC18 Wody kolumnowe | 186001344 | 5 &mikro; m, 4.6 mm x 150 mm | |
| Atlantis dC18 Kolumna ochronna | Wody | 186001323 | 5 & mikro; m, 4,6 mm x 20 mm |
| Moduł separacyjny Waters Alliance 2965 | Moduł | separacji wody | |
| HPLC Detektor fotodiodowy (PDA) Waters 2998 Detektor | UV | Waters | |
| Oprogramowanie Empower2 | Waters |
Bibliografia
- Naganuma, M., Wiznerowicz, E. B., Lappas, C. M., Linden, J., Worthington, M. T., Ernst, P. B. Cutting edge: Critical role for A2A adenosine receptors in the T cell-mediated regulation of colitis. J Immunology. 177 (5), 2765-2769 (2006).
- Nemeth, Z. H., et al. Adenosine receptor activation ameliorates type 1 diabetes. FASEB J. 21 (10), 2379-2388 (2007).
- Fan, M., Jamal Mustafa, S. Role of adenosine in airway inflammation in an allergic mouse model of asthma. Int Immunopharmacol. 6 (1), 36-45 (2006).
- Csoka, B., et al. A2B adenosine receptors protect against sepsis-induced mortality by dampening excessive inflammation. J Immunol. 185 (1), 542-550 (2010).
- Peart, J. N., Headrick, J. P. Adenosinergic cardioprotection: multiple receptors, multiple pathways. Pharmacol Ther. 114 (2), 208-221 (2007).
- Ohta, A., et al. A2A adenosine receptor protects tumors from antitumor T cells. Proc Natl Acad Sci U S A. 103 (35), 13132-13137 (2006).
- Hasko, G., Linden, J., Cronstein, B., Pacher, P. Adenosine receptors: therapeutic aspects for inflammatory and immune diseases. Nat Rev Drug Discov. 7 (9), 759-770 (2008).
- Cronstein, B. N. Adenosine, an endogenous anti-inflammatory agent. J Appl Physiol (1985). 76 (1), 5-13 (1994).
- Molina-Arcas, M., Casado, F. J., Pastor-Anglada, M. Nucleoside transporter proteins. Curr Vasc Pharmacol. 7 (4), 426-434 (2009).
- Deaglio, S., et al. Adenosine generation catalyzed by CD39 and CD73 expressed on regulatory T cells mediates immune suppression. J Exp Med. 204 (6), 1257-1265 (2007).
- Linden, J. Regulation of leukocyte function by adenosine receptors. Adv Pharmacol. 61, 95-114 (2011).
- Antonioli, L., Blandizzi, C., Pacher, P., Hasko, G. Immunity, inflammation and cancer: a leading role for adenosine. Nat Rev Cancer. 13 (12), 842-857 (2013).
- Antonioli, L., Csoka, B., Fornai, M., et al. Adenosine and inflammation: what's new on the horizon. Drug Discov Today. 19 (8), 1051-1068 (1051).
- Chiorazzi, N., Rai, K. R., Ferrarini, M. Chronic lymphocytic leukemia. N Engl J Med. 352 (8), 804-815 (2005).
- Abousamra, N. K., Salah El-Din, M., Hamza Elzahaf, E., Esmael, M. E. Ectonucleoside triphosphate diphosphohydrolase-1 (E-NTPDase1/CD39) as a new prognostic marker in chronic lymphocytic leukemia. Leuk Lymphoma. 56 (1), 113-119 (2015).
- Serra, S., et al. CD73-generated extracellular adenosine in chronic lymphocytic leukemia creates local conditions counteracting drug-induced cell death. Blood. 118 (23), 6141-6152 (2011).
- Chen, L. S., Keating, M. J., Gandhi, V. Blood collection methods affect cellular protein integrity: implications for clinical trial biomarkers and ZAP-70 inn CLL. Blood. 124 (7), 1192-1195 (2014).
- Kalina, T., et al. EuroFlow standardization of flow cytometer instrument settings and immunophenotyping protocols. Leukemia. 26 (9), 1986-2010 (2012).
- Deaglio, S., et al. CD38 and ZAP-70 are functionally linked and mark CLL cells with high migratory potential. Blood. 110 (12), 4012-4021 (2007).
- Sachsenmeier, K. F., et al. Development of a novel ectonucleotidase assay suitable for high-throughput screening. J Biomol Screen. 17 (7), 993-998 (2012).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
