Niedojrzałe komórki dendrytyczne mogą być selektywnie różnicowane w tolerogenne lub dojrzałe komórki dendrytyczne, aby regulować równowagę między odpornością a tolerancją. W pracy przedstawiono sposób generowania z niedojrzałych komórek dendrytycznych pochodzących z monocytów (moDC), tolerogennych in vitro i dojrzałych moDC, które różnią się fenotypami metabolicznymi.
Artykuł metodologiczny
Wytwarzanie niedojrzałych, dojrzałych i tolerogennych komórek dendrytycznych o różnych fenotypach metabolicznych
W tym artykule
Podsumowanie
Streszczenie
Odpowiedź immunologiczna wynika ze złożonej interakcji między niespecyficznym wrodzonym układem odpornościowym antygenu a adaptacyjnym układem odpornościowym specyficznym dla antygenu. Układ odpornościowy to stała równowaga w utrzymywaniu tolerancji na własne molekuły i szybkim reagowaniu na patogeny. Komórki dendrytyczne (DC) są potężnymi profesjonalnymi komórkami prezentującymi antygen, które łączą wrodzony układ odpornościowy z adaptacyjnym układem odpornościowym i równoważą odpowiedź adaptacyjną między sobą a nie-sobą. W zależności od sygnałów dojrzewania, niedojrzałe komórki dendrytyczne mogą być selektywnie stymulowane do różnicowania się w immunogenne lub tolerogenne DC. Immunogenne komórki dendrytyczne dostarczają sygnały proliferacji do limfocytów T specyficznych dla antygenu w celu ekspansji klonalnej; podczas gdy tolerogenne komórki dendrytyczne regulują tolerancję poprzez delecję limfocytów T specyficznych dla antygenu lub klonalną ekspansję regulatorowych komórek T. Ze względu na tę unikalną właściwość komórki dendrytyczne są bardzo poszukiwane jako środki terapeutyczne w leczeniu nowotworów i chorób autoimmunologicznych. Komórki dendrytyczne mogą być ładowane specyficznymi antygenami in vitro i wstrzykiwane do organizmu ludzkiego w celu wytworzenia specyficznej odpowiedzi immunologicznej, zarówno immunogennej, jak i tolerogennej. W niniejszej pracy przedstawiono sposób wytwarzania in vitro z monocytów, niedojrzałych komórek dendrytycznych pochodzących z monocytów (moDC), tolerogennych i dojrzałych moDC, które różnią się ekspresją markerów powierzchniowych, funkcją i fenotypami metabolicznymi.
Wprowadzenie
DC został po raz pierwszy opisany przez Paula Langerhansa (komórki Langerhansa) pod koniec XIX wieku, jak wspomina Jolles 1 i scharakteryzowany przez Ralpha Steinmana i Zanvila Cohna w 1973 roku, którzy rozpoznali je jako profesjonalne komórki prezentujące antygen 2. DC znajdują się we krwi obwodowej i w większości tkanek ciała, szczególnie obficie w tkankach narażonych na działanie środowiska zewnętrznego, takich jak skóra (obecna jako komórki Langerhansa) oraz w wyściółce nosa, płuc, żołądka i jelit, które umożliwiają im napotkanie antygenów zewnętrznych. Niedojrzałe DC mają zdolność endocytarną, ale stosunkowo niską zdolność do stymulacji limfocytów T 3. Niedojrzałe DC wyrażają różne receptory rozpoznawania wzorców (PRR), które wychwytują wzorce molekularne związane z patogenami (PAMP) lub wzorce molekularne związane z uszkodzeniem (DAMP) 4. Aktywacja sygnałów niebezpieczeństwa napędza dojrzewanie w kierunku immunogennych DC, podczas gdy własne cząsteczki powodują brak odpowiedzi limfocytów T i apoptozę 5. Immunogenne DC charakteryzują się regulacją w górę cząsteczek MHC i kostymulujących cząsteczek powierzchniowych oraz ich zdolnością do przygotowania naiwnych limfocytów T 6,7.
Niedojrzali DC mogą również dojrzewać do stanu indukującego Treg lub tolerogennego w odpowiedzi na metabolit witaminy D3 1a,25(O)2D3 i niektóre środki immunosupresyjne, takie jak interleukina-10 (IL-10), deksametazon i rapamycyna 8-9. Tolerogenne DC charakteryzują się ekspresją immunoreceptorowych motywów hamujących opartych na tyrozynie (ITIM) zawierających receptory powierzchniowe i ligandy. Transdukcja sygnału ITIM zawierających członków rodziny ILT, ILT3 i ILT4 w tolerogennych DC hamuje alloproliferację i napędza ekspansję Foxp3 + Treg 10,11. Te unikalne właściwości tolerogennych DC prowadzą do ich głębokiej siły działania in vivo, a mianowicie zdolności do wywoływania trwałej tolerancji na przeszczepione przeszczepy allogeniczne i hamowania rozwoju chorób autoimmunologicznych. Tolerogenne DC mogą być zatem postrzegane jako podtyp dojrzałych spolaryzowanych DC, które działają w hamowaniu aktywacji immunologicznej.
Obecnie istnieją dwa ogólne podzbiory komórek dendrytycznych w ludzkiej krwi obwodowej: plazmocytoidy DC i mieloidalne DC 12. Krążące DC są rzadkie, stanowią mniej niż 2% leukocytów w ludzkiej krwi, co stanowi trudność w izolacji odpowiedniej liczby DC w celu zbadania ich funkcji immunoregulacyjnych. Aby przezwyciężyć ten problem, DC zróżnicowane monocytami są wykorzystywane jako model in vitro do badania funkcji komórek dendrytycznych. Te DC in vitro mają podobne receptory i funkcje w porównaniu do DC in vivo. Szczegółowe porównanie DC in vivo i DC pochodzących z monocytów in vitro (moDC) jest badane przez inne laboratoria 13,14,15. Poinformowano również, że moDC i CD1c + DC były równoważne w prezentowaniu antygenu i indukowaniu funkcji limfocytów T15.
W tym artykule opisujemy metodę generowania niedojrzałych moDC z monocytów krwi obwodowej, a następnie różnicowania ich na immunogenne i tolerogenne DC. Te komórki dendrytyczne pochodzące z monocytów (moDC) charakteryzują się markerami powierzchniowymi, profilem cytokin, funkcjami immunoregulacyjnymi i stanami metabolicznymi. Immunogenne i tolerogenne komórki dendrytyczne wytwarzają różne cytokiny, które powodują ekspansję allogenicznych limfocytów T lub limfocytów T regulatorowych. W niniejszej pracy profilowanie cytokin jest wykonywane za pomocą systemów wykorzystujących technologię multipleksową. Pożywkę wzrostową komórek inkubuje się z unieruchomionymi kolorowymi kulkami unieruchomionymi przeciwciałami i odczytuje w kompaktowym analizatorze. Stany metaboliczne DC są analizowane za pomocą analizatorów strumienia zewnątrzkomórkowego, które mierzą szybkość zużycia tlenu, wskaźnik oddychania komórkowego i szybkość zakwaszenia zewnątrzkomórkowego, która odzwierciedla strumień glikolityczny w komórkach dendrytycznych. Pomiar tych wskaźników bioenergetycznych zapewnia środki do śledzenia zmian w metabolizmie komórkowym, które są niezbędne w rozwoju i funkcjonowaniu komórek dendrytycznych.
Protokół
Badanie to zostało zatwierdzone przez Institutional Review Board (NUS-IRB 10-250).
1. Izolacja komórek jednojądrzastych krwi obwodowej (PBMCs)
- Przygotowanie odczynnika
- Przygotować PBS/EDTA: buforowany fosforanem roztwór soli fizjologicznej (PBS) i uzupełnić 2 mM kwasem etylenodiaminotetraoctowym (EDTA). Wysterylizuj ten roztwór, filtrując przez filtr 0,2 μm. Uwaga: przed użyciem przechowywać PBS/EDTA w temperaturze 4 °C i ogrzać się do temperatury pokojowej.
- Przygotować bufor barwiący: roztwór soli fizjologicznej buforowany fosforanami (PBS) z 2% płodową surowicą bydlęcą (FBS), 10 mM kwasu 4-(2-hydroksyetylo)-1-piperazynoetanosulfonowego (HEPES) i 2 mM kwasu etylenodiaminotetraoctowego (EDTA). Wysterylizuj ten roztwór, filtrując przez filtr 0,2 μm.
- Zbierz krew ze stożka krwi
Uwaga: Stożek krwi zawiera składniki białych krwinek pobrane ze szpitala po krowoferezie. Jeśli krew jest zbierana w probówkach z heparyną lub EDTA, rozcieńczyć krew PBS w stosunku 1:1 i przejść do kroku 1.3; w przypadku otrzymania kożuchy rozcieńczyć kożuchy z PBS w stosunku 1:2 i przejść do kroku 1.3.- Odetnij dwa końce stożka, aby krew mogła wypłynąć do probówki o pojemności 50 ml. Należy pamiętać, że stożek zawiera zwykle 10 ml krwi.
- Za pomocą strzykawki z końcem zawierającej 30 ml PBS/EDTA umyć stożek i zebrać go w probówce o pojemności 50 ml.
- Rozcieńczyć krew dalej za pomocą PBS/EDTA do końcowej objętości 80 ml.
- Izolacja PBMC przez odwirowanie gęstości16
- Podamy po 15 ml Ficollu do 4 świeżych probówek o pojemności 50 ml.
- Za pomocą pipety serologicznej o pojemności 25 ml dodać 20 ml rozcieńczonej krwi na warstwę Ficollu. Zwróć uwagę, aby trzymać probówkę o pojemności 50 ml pod kątem 45 i uważać, aby nie zakłócić interfazy.
- Odwirować probówki o stężeniu 805 x g bez hamulców przez 30 minut, 20 °C.
- Usunąć warstwę plazmy i zebrać pierścień PBMC leżący tuż pod warstwą plazmy za pomocą pipety Pasteura. Połączyć cztery probówki PBMC w dwie probówki o pojemności 50 ml. Należy pamiętać, aby unikać zbierania przezroczystej warstwy poniżej PBMC.
- Dodać PBS/EDTA do końcowej objętości 50 ml na probówkę PBMC i odwirować przy 548 x g z hamulcami przez 10 minut, 20 °C.
- Odessać supernatant i ponownie zawiesić osad w każdej probówce z 25 ml buforu barwiącego i połączyć w jedną probówkę o pojemności 50 ml.
- Wirować przy 367 x g z hamulcami przez 5 min, 4 °C.
- Odessać supernatant i ponownie zawiesić osad z 10 ml buforu barwiącego.
2. Wzbogacanie monocytów przez separację magnetyczną17
- Określ numer komórki
- Weź 20 μl zawiesiny komórek PBMC i wymieszaj z 20 μl błękitu trypanowego, aby policzyć liczbę żywych komórek za pomocą cytometru.
- Zawiesina komory wirówki przy 367 x g z hamulcami przez 10 min, 4 °C.
- Całkowicie odessać supernatant i ponownie zawiesić osad komórkowy do stężenia 10-7 komórek na 80 μl buforu barwiącyego.
- Etykietowanie magnetyczne
- Dodać 20 μl mikrogranulek CD14 na 10-7 komórek, dobrze wymieszać i inkubować przez 15 minut w temperaturze 2 - 8 °C.
- Przemyć komórki, dodając 1 ml buforu barwiącego na10-7 komórek i odwirować przy 367 x g z przerwami przez 10 minut, 4 °C.
- Całkowicie odessać supernatant i ponownie zawiesić osad komórkowy w stężeniu10-7 komórek na 50 μl buforu barwiącego.
- Separacja magnetyczna
- Użyj kolumny średniej wielkości, aby uzyskać maksymalnie 2 x 10⁸ komórek.
Uwaga: Wybierz odpowiednią kolumnę i separator zgodnie z całkowitą liczbą komórek i liczbą komórek CD14+ zalecaną w arkuszu danych. - Umieścić kolumnę w polu magnetycznym odpowiedniego separatora i przygotować kolumnę przez przepłukanie 500 μl buforu barwiącego.
- Zawiesinę komórek należy pipetować na kolumnę i zbierać nieoznakowane komórki, które przechodzą przez kolumnę, za pomocą probówki o pojemności 15 ml.
- Wymień nową probówkę o pojemności 15 ml pod kolumną i przemyj kolumnę 3 razy 500 μl buforu barwiącego. Upewnij się, że zbiornik kolumny jest pusty przed dodaniem nowego bufora barwiącego między praniami.
- Wyjmij kolumnę z separatora i umieść ją na świeżej probówce o pojemności 15 ml.
- Odpipetować 1 ml buforu barwiącego na kolumnę. Natychmiast wypłucz magnetycznie oznakowane ogniwa, mocno wciskając tłok (dostarczony w zestawie) do kolumny.
- Powtórz kroki od 2.3.2 do 2.3.6, używając eluowanej frakcji na nowej kolumnie, aby zwiększyć czystość komórek CD14+. Należy pamiętać, że kulki zostaną automatycznie uwolnione z komórek w hodowli podczas kroku 3.2.
- Użyj kolumny średniej wielkości, aby uzyskać maksymalnie 2 x 10⁸ komórek.
3. Różnicowanie komórek dendrytycznych do różnych stanów aktywacji
- Przygotowanie odczynnika (poziom endotoksyny musi być mniejszy niż 0,1 EU/ml we wszystkich odczynnikach)
- Przygotuj pożywkę do hodowli komórkowych: RPMI 1640 uzupełniony 10% płodową surowicą bydlęcą (FBS), 1% aminokwasami endogennymi (NEAA) i 0,05 mM 2-merkaptoetanolem (2ME). Wysterylizuj ten roztwór, filtrując przez filtr 0,2 μm.
- Przygotować cytokiny: rozpuścić IL-4 i GM-CSF w wodzie klasy do hodowli komórkowych odpowiednio do stężenia 0,25 mg/ml w warunkach aseptycznych. Podwielokrotność cytokin rozmieścić w probówkach mikrowirówek o objętości 200 μl i przechowywać w temperaturze -80 °C.
- Przygotować zapas witaminy D3: rozpuścić witaminę D3 w wodzie klasy do hodowli komórkowych do stężenia 100 mM w warunkach aseptycznych. Witaminę D3 rozlać do 1,5 ml probówek do mikrowirówek i przechowywać w temperaturze -20 °C.
- Przygotować zapas deksametazonu: rozpuścić deksametazon w wodzie przeznaczonej do hodowli komórkowych do stężenia 10 mM w warunkach aseptycznych. Porcję deksametazonu rozlać do 1,5 ml probówek do mikrowirówek i przechowywać w temperaturze -20 °C.
- Przygotować LPS: rozpuścić lipopolisacharydy (LPS) w wodzie przeznaczonej do hodowli komórkowych do stężenia 1 mg/ml w warunkach aseptycznych. Porcję LPS rozlać do probówek mikrowirówek o pojemności 1,5 ml i przechowywać w temperaturze -20 °C.
- Generowanie różnych moDC
- Nasiona 4 zestawów monocytów CD14 + w stężeniu 0,3 - 0,5 x 10⁶ / ml pożywki do hodowli komórkowych uzupełnione 200 ng / ml GM-CSF i 200 ng / ml IL-4 w 6 dołkach. Należy pamiętać, że jest to Dzień 0, a objętość pożywki w każdym 6 dołkach wynosi 2 ml.
- Inkubować komórki w inkubatorze do hodowli tkankowych w temperaturze 37 °C z 5% CO2 .
- Usunąć 850 μl pożywki z kultury w dniu 4 i odwirować przy 300 x g przez 5 minut, 4 °C. Odessać supernatant i ponownie zawiesić osad w 1 ml pożywki do hodowli komórkowej zawierającej 2 razy (200 ng/ml GM-CSF i 200 ng/ml IL-4). Dodaj tę mieszaninę komórek z powrotem do hodowli. Należy pamiętać, że stężenie 2x dodane dla GM-CSF i IL-4 stanie się 1x, gdy 1 ml pożywki zostanie ponownie dodany do kultury.
- Dodaj 1 μl bulionu witaminy D3 i 1 μl wywaru deksametazonu na ml pożywki do dwóch zestawów w dniu 5, aby wytworzyć tolerogenne moDC. Należy pamiętać, że końcowe stężenie witaminy D3 wynosi 100 nM, a deksametazonu 10 nM; Dodanie GM-CSF i IL-4 nie jest wymagane w dniu 5.
- Dodać 200 ng/ml GM-CSF i 200 ng/ml IL-4 do wszystkich zestawów w dniu 6.
- Dodaj 1 μg/ml LPS do jednego z zestawów traktowanych tylko GM-CSF i IL-4 w dniu 6, aby wytworzyć dojrzałe moDC.
- Dodać 1 μg/ml LPS do jednego zestawu tolerogennych moDC w dniu 6, aby wytworzyć tolerogenne moDC tolerogenne LPS.
- Zbierz różne typy moDC w dniu 7, przepłukując naczynie hodowlane PBS, EDTA do cytometrii przepływowej lub innych badań. Należy pamiętać, że zbierane są tylko nieprzylegające komórki. Należy pamiętać, że procentowa wydajność monocytów CD14 + dla niedojrzałych moDC, dojrzałych moDC, tolerogennych moDC i tolerogennych DC tolerogennych LPS wynosi odpowiednio około 90%, 50%, 60% i 60% i różni się w zależności od dawców krwi i partii FBS.
4. Cytometria przepływowa
- Charakterystyka markerów powierzchni komórek na moDC
- Odłączyć komórki od naczynia hodowlanego, pipetując. Umyć komórki raz PBS/EDTA i ponownie zawiesić komórki w stężeniu 5 x 10⁵ komórek na 50 μl buforu barwiącego w probówce do mikrowirówek o pojemności 1,5 ml.
- Inkubować 0,5 x 10 6-komórkowych porcji z HLADR sprzężonym z PerCP (1:100), CD80 sprzężonym z PE (1:50), CD83 sprzężonym z PE (1:25), CD86 sprzężonym z PE (1:50), CD11c sprzężonym APC (1:50), CD14 sprzężonym z PE (1:50) i BDCA3 sprzężonym z PE (1:50) i ILT3 sprzężonym z APC (1:25) w ciemności przez 30 minut w temperaturze 4 °C. Dopasowane izotypem MAb sprzężone PerCP (1:20), MAb sprzężone z PE (1:11), MAb sprzężone z APC (1:11) będą służyć jako kontrole ujemne.
- Wykryć poziomy ekspresji markerów powierzchniowych za pomocą cytometru przepływowego 18.
- Analiza potencjału błonowego mitochondriów moDC
- Przygotować roztwór podstawowy 1 mM czerwonej chlorometylo-X-rozaminy (CMXRos), dodając 94,1 μl dimetylosulfotlenku (DMSO) na 50 μg liofilizowanego czerwonego CMXRos.
- Inkubować 2 x 10⁵ moDC ze 100 nM Red CMXRos w 1 ml zbilansowanego roztworu soli Hanka (HBSS) przez 30 minut w temperaturze 37 °C w probówce o pojemności 15 ml.
- Dodać 2 ml PBS/EDTA do komórek i odwirować przy 300 x g przez 5 minut w temperaturze pokojowej. Powtórz 2 razy. Odessać supernatant i ponownie zawiesić osad komórkowy w 300 μl PBS, EDTA, 2% FCS do analizy cytometrii przepływowej. Zwróć uwagę, aby użyć kanału PE do analizy sygnału Red CMXRos.
- Charakterystyka markerowa limfocytów T
- Inkubować 50 μl limfocytów T allo CD4+ znakowanych 1,2 x 10(1:100) znakowanych CFSE (wygenerowanych z kroku 5.6) z CD3 sprzężonym z PerCP (1:200), CD4 sprzężonym PE/Cy7 (1:400) i CD25 sprzężonym APC/Cy7 (1:100) w ciemności przez 30 minut w temperaturze 4 °C. Wybarwić komórki T za pomocą komercyjnego zestawu z Foxp3-Alexa Fluor 647 (1:50) w ciemności przez 1 godzinę w temperaturze pokojowej.
5. Badania nad aloreakcjami
- Przygotować 5 mM roztwór podstawowy estru sukcynimidylowego karboksyfluoresceiny (CFSE), dodając 18 μl DMSO do liofilizowanego CFSE, zgodnie z protokołem producenta.
- Oczyść limfocyty T CD4 + z PBMC
- Określ liczbę komórek, pobierając 20 μl zawiesiny komórek PBMC i mieszając z 20 μl błękitu trypanowego, aby policzyć liczbę żywych komórek za pomocą cytometru.
- Zawiesina komory wirówki przy 367 x g z hamulcami przez 10 min, 4 °C.
- Całkowicie odessać supernatant i ponownie zawiesić osad komórkowy w stężeniu 5 x 10 7 komórek na 1 ml buforu barwiącego w probówce z polistyrenu o pojemności 5 ml.
- Dodaj koktajl wzbogacający ludzkie limfocyty T CD4 + w 50 μl / ml komórek. Dobrze wymieszać i inkubować w temperaturze pokojowej (15 - 25 °C) przez 10 minut.
- Wiruj cząstki magnetyczne przez 30 sekund i dodaj cząstki magnetyczne w komórkach o stężeniu 100 μl/ml. Dobrze wymieszaj i inkubuj w temperaturze pokojowej przez 5 minut.
- Dodać bufor barwiący do zawiesiny komórek o łącznej objętości 2,5 ml. Wymieszać komórki w probówce, delikatnie pipetując w górę i w dół 2 - 3 razy. Umieść probówkę w magnesie i inkubuj przez 5 minut.
- Odwróć magnes za pomocą rurki i zdekantuj zawiesinę (zawierającą limfocyty T) do nowej probówki z polistyrenu o pojemności 5 ml.
- Określić liczbę komórek i inkubować 1,2 x 10⁶ limfocytów T CD4+ z 5 μM CFSE w 1 ml PBS przez 20 minut w temperaturze 37 °C, chroniąc przed światłem.
- Dodać do komórek pięciokrotność pierwotnej objętości pożywki do hodowli komórkowych (przygotowanej zgodnie z krokiem 3.1.1) i inkubować przez 5 minut.
- Wirować przy 300 x g przez 5 minut, 4 °C i ponownie zawiesić osad w pożywce do hodowli komórkowych o stężeniu 2 x10,5 na 75 μl.
- Dodać 75 μl limfocytów T CD4 + znakowanych 2 x 10⁵ znakowanych CFSE do każdej kultury moDC zawierającej 75 μl pożywki do hodowli komórkowej z 0, 2,5 x 10³, 5 x 10³, 10 x 103, 20 x 103 i 40 x 103 moDC w 96 dołkowych płytkach z dnem U. Hodowla przez 6 dni w inkubatorze do hodowli tkankowych w temperaturze 37 °C przy 5% CO2 .
- Zebrać przez pipetowanie limfocytów T CD4+ do probówki o pojemności 15 ml i odwirować przy 300 x g przez 5 minut, 4 °C. Zebrać supernatant do analizy cytokin i ponownie zawiesić osad komórkowy w 2 ml PBS/EDTA i odwirować przy 300 x g przez 5 minut w temperaturze 4 °C.
6. Analiza cytokin19
- Zebrać supernatanty z badań alloreakcji zgodnie z opisem w kroku 5.5.
- Przygotowanie odczynnika do analizy panelu magnetycznego ludzkiej cytokiny/chemokiny
- W celu przygotowania butelki do mieszania kulek unieruchomionych przeciwciałami do pojedynczych fiolek z kulkami (dołączonych do zestawu), należy wirować przez 1 minutę. Dodać 60 μl z każdej fiolki z kulkami przeciwciał do butelki do mieszania (dołączonej do zestawu) i doprowadzić do końcowej objętości 3 ml za pomocą rozcieńczalnika kulek (w zestawie).
- W celu przygotowania kontroli jakości należy rozpuścić Kontrolę jakości 1 i Kontrolę jakości 2 (zawarte w zestawie) w 250 μl wody dejonizowanej.
- W celu przygotowania buforu do płukania należy rozcieńczyć 30 ml 10x buforu do płukania (dołączonego do zestawu) w 270 ml wody dejonizowanej.
- W celu przygotowania wzorca cytokin ludzkich należy rozpuścić wzorzec cytokin ludzkich (dołączony do zestawu) w 250 μl wody dejonizowanej, aby uzyskać stężenie 10 000 pg/ml.
- Dodać 50 μl 10 000 pg/ml wzorca cytokin ludzkich do 200 μl buforu testowego (dostarczonego w zestawie) w probówce mikrowirówkowej o pojemności 1,5 ml, aby uzyskać 2,000 pg/ml wzorca roboczego. Przenieś 50 μl wzorca cytokin ludzkich o stężeniu 2 000 pg / ml do 200 μl buforu testowego (dostarczonego w zestawie) w probówce mikrowirówki o pojemności 1,5 ml, aby uzyskać roboczą normę 400 pg / ml.
- Przenieść 50 μl wzorca cytokin ludzkich 400 pg / ml do 200 μl buforu testowego (dostarczonego w zestawie) w probówce mikrowirówkowej o pojemności 1,5 ml, aby uzyskać normę roboczą 80 pg / ml. Przenieść 50 μl wzorca cytokin ludzkich o stężeniu 80 pg/ml do 200 μl buforu testowego (dostarczonego w zestawie) w probówce mikrowirówkowej o pojemności 1,5 ml, aby uzyskać 16 pg/ml wzorca roboczego.
- Przenieś 50 μl wzorca cytokin ludzkich 16 pg / ml do 200 μl buforu testowego (dostarczonego w zestawie) w probówce mikrowirówkowej o pojemności 1,5 ml, aby uzyskać normę roboczą 3,2 pg / ml. Wzorzec roboczy 0 pg / ml zawiera tylko 200 μl buforu testowego w probówce mikrowirówki o pojemności 1,5 ml.
- Wstępnie zwilżoną płytkę filtracyjną (dołączoną do zestawu) poprzez pipetowanie 200 μl buforu testowego (w zestawie) do każdej studzienki płyty filtracyjnej. Uszczelnij i umieść płytkę filtracyjną na wytrząsarce płytowej na 10 minut w temperaturze pokojowej.
- Odessać bufor testowy i dodać 25 μl każdego wzorca lub kontroli jakości do odpowiednich studzienek.
- Dodać 25 μl pożywki do hodowli komórkowych (przygotowanej zgodnie z krokiem 3.1.1) do tła, wzorców i studzienek kontrolnych.
- Dodać 25 μl buforu do oznaczania do dołków na próbki i dodać 25 μl próbki do odpowiednich dołków na próbki.
- Spłukać butelkę do mieszania zawierającą kulki unieruchomione przeciwciałami i dodać 25 μl zmieszanych kulek do każdej studzienki. Uszczelnić płytkę i inkubować z mieszaniem na wytrząsarce płytkowej przez noc w temperaturze 4 °C.
- Odessać płyn i umyć płytkę 2 razy, dodając 200 μl/studzienkę buforu do płukania i zasysając płyn.
- Dodaj 25 μl przeciwciał wykrywających (dostarczonych) do każdej studzienki. Zamknąć i inkubować z mieszaniem na wytrząsarce płytkowej przez 1 godzinę w temperaturze pokojowej.
- Dodać 25 μl streptawidyny-fikoerytryny (dostarczonej) do każdej studzienki zawierającej 25 μl przeciwciał wykrywających. Uszczelnić i inkubować z mieszaniem na wytrząsarce płytkowej przez 30 minut w temperaturze pokojowej.
- Odessać płyn i umyć płytkę zgodnie z opisem w kroku 6.8.
- Dodać 150 μl/ studzienki płynu osłonkowego do wszystkich studzienek i ponownie zawiesić kulki na wytrząsarce płytkowej na 5 minut.
- Wykrywanie intensywności fluorescencji koralików za pomocą systemu 3D 20. Przeanalizuj dane dotyczące mediany intensywności fluorescencji przy użyciu pięcioparametrowej metody dopasowania krzywej logarytmiczno-logistycznej do obliczania stężeń cytokin/chemokin w próbkach21.
7. Pomiary wskaźnika zużycia tlenu w czasie rzeczywistym (OCR) i wskaźnika zakwaszenia zewnątrzkomórkowego (ECAR)
- Przygotowanie odczynników/materiałów
- Przygotować pożywkę OCR: Pożywkę do oznaczania uzupełnioną 25 mM glukozy i 1 mM pirogronianu sodu (pH 7,35). Wysterylizuj ten roztwór, filtrując przez filtr 0,2 μm. Należy pamiętać, że to podłoże jest przygotowywane bez FBS, ponieważ składniki FBS są złożone i różnią się w zależności od partii.
- Przygotuj pożywkę ECAR: Pożywkę bazową uzupełnioną 2 mM L-glutaminą (pH 7,35). Wysterylizuj ten roztwór, filtrując przez filtr 0,2 μm. Należy pamiętać, że to podłoże jest przygotowywane bez wodorowęglanów, glukozy, pirogronianu i FBS. Należy pamiętać, że FBS ma pojemność buforową i będzie zakłócać odczyt ECAR.
- Przygotowanie związków do pomiarów OCR: Zawiesić oligomycynę w 630 μl pożywki OCR, aby uzyskać 100 μM roztworu podstawowego i rozcieńczyć pożywką OCR do stężenia roboczego 16 μM. Zawiesić 4-(trifluorometoksy)fenylohydrazon cyjanku karbonylu (FCCP) z 720 μl pożywki OCR, aby uzyskać 100 μM roztworu podstawowego i rozcieńczyć pożywką OCR do stężenia roboczego 4,5 μM. Zawiesić rotenon/antymycynę A w 540 μl pożywki OCR, aby uzyskać 50 μM roztworu podstawowego i rozcieńczyć pożywką OCR do stężenia roboczego 10 μM.
- Przygotować związki do pomiarów ECAR: Zawiesić glukozę za pomocą 3 ml pożywki ECAR, aby uzyskać 100 mM roztworu podstawowego i rozcieńczyć do 80 mM stężenia roboczego. Zawiesić oligomycynę z 720 μl pożywki ECAR, aby uzyskać 100 μM roztworu podstawowego i rozcieńczyć do stężenia roboczego 18 mM. Zawiesić 2-deoksy-D-glukozę w 1,5 ml pożywki ECAR, aby uzyskać 1000 mM roztworu podstawowego.
- Odpipetować 200 μl kalibru do każdego dołka wkładu i przechowywać w temperaturze 37 °C bez CO2 na dzień przed pomiarami.
- Pomiary OCR w czasie rzeczywistym
- Zebrać moDC i ponownie zawiesić każdy rodzaj moDC w pożywce OCR w stężeniu 60 x 103 na 150 μl pożywki OCR.
- Wysiać 60 x 103 komórek/basenik na 96-dołkowej płaskiej płytce z płaskim dnem pokrytej poli-D-lizyną i inkubować w inkubatorze niezawierającym zawartościCO2 2 przez 1 godzinę w temperaturze 37 °C. Należy zwrócić uwagę, aby użyć 50 μl 50 ng/ml poli-D-lizyny do powlekania płytki przez 1 godzinę i umyć sterylną wodą. Przed użyciem utrzymuj płytkę w suchym miejscu przez 2 godziny w temperaturze pokojowej.
- Odpipetować 25 μl pożywki OCR do portu iniekcyjnego A dla wszystkich studzienek; 25 μl pożywki OCR zawierającej 16 μM oligomycyny w porcie B dla wszystkich studzienek; 25 μl pożywki OCR zawierającej 4,5 μM (FCCP) w porcie iniekcji C dla wszystkich studzienek i 25 μl pożywki OCR zawierającej 10 mM rotenonu/antymycyny A w porcie iniekcji D dla wszystkich studzienek. Należy zauważyć, że końcowe stężenie dołka dla oligomycyny wynosi 2 μM, FCCP wynosi 0,5 μM, a rotenon/antymycyna A wynosi 1 μM.
- Umieść płytkę w analizatorze strumienia zewnątrzkomórkowego i przeprowadź pełne badanie OCR ze wszystkimi moDC jednocześnie w czterech kolejnych etapach: oddychanie podstawowe (po wstrzyknięciu pożywki z portu A), hamowanie kompleksu mitochondrialnego V (po wstrzyknięciu leku z portu B), maksymalna indukcja oddychania (po wstrzyknięciu leku z portu C) i hamowanie łańcucha transportu elektronów (po wstrzyknięciu leku z portu D) 22. Należy pamiętać, że pomiędzy wstrzyknięciami są 3 cykle i 6-minutowy odstęp między pomiarami.
- Pomiary ECAR w czasie rzeczywistym
- Zebrać moDC i ponownie zawiesić każdy rodzaj moDC w pożywce ECAR w stężeniu 60 x 103 na 150 μl pożywki ECAR.
- Wysiewać 6 x 10⁴ komórek/basenik na 96-dołkowej płaskiej płytce z płaskim dnem pokrytej poli-D-lizyną i inkubować w inkubatorze innym niż CO2 2 przez 1 godzinę w temperaturze 37 °C.
- Odpipetować 25 μl pożywki ECAR do portu A do wstrzykiwań dla wszystkich studzienek; 25 μl pożywki ECAR zawierającej 10 mM glukozy w porcie iniekcyjnym B dla wszystkich studzienek; 25 μl pożywki ECAR zawierającej 18 μM oligomycyny w porcie iniekcyny C dla wszystkich studzienek i 25 μl pożywki OCR zawierającej 1 000 mM 2-deoksy-D-glukozy w porcie D do wstrzykiwań dla wszystkich studzienek. Należy zauważyć, że końcowe stężenie studzienki dla glukozy wynosi 10 μM, oligomycyna wynosi 2 μM, a 2-deoksy-D-glukoza wynosi 100 mM.
- Umieścić płytkę w analizatorze strumienia zewnątrzkomórkowego i przeprowadzić pełne badanie ECAR ze wszystkimi moDC jednocześnie w czterech kolejnych etapach: oddychanie podstawowe (po wstrzyknięciu pożywki z portu A), indukcja glikolizy (po wstrzyknięciu leku z portu B), maksymalna indukcja glikolizy (po wstrzyknięciu leku z portu C) i hamowanie glikolizy (po wstrzyknięciu leku z portu D) 22.
- Analizuj różnice statystyczne za pomocą jednokierunkowej ANOVA z wielokrotnym porównaniem Tukeya w teście końcowym.
Wyniki
Oczyszczanie monocytów i różnicowanie komórek dendrytycznych
Monocyty oczyszczono z PBMC poprzez wirowanie krwi obwodowej w gradiencie gęstości (Rysunek 1A), a następnie przeprowadzono magnetyczną separację z selekcją pozytywną CD14+ (Rysunek 1B). Komórki hodowano w pożywce kompletnej w obecności GM-CSF i IL-4 w celu uzyskania niedojrzałych komórek dendrytycznych (Rysunek 2A). Dodanie witaminy D3 i deksametazonu po GM-CSF i IL-4 doprowadziło do różnicowania niedojrzałych moDC w tolerogenne moDC (Rysunek 2B). LPS dodano w celu indukcji dojrzewania niedojrzałych moDC dojrzałych moDC (Rysunek 2C), natomiast tolerogenne moDC stymulowano LPS, aby zweryfikować ich oporność na dojrzewanie (Rysunek 2D). Próbki krwi wykorzystane w tej pracy pobrano od zdrowych dawców po uzyskaniu uprzedniej świadomej zgody.
Charakterystyka moDC
Charakterystyka markerów powierzchniowych metodą cytometrii przepływowej
Analiza markerów powierzchniowych DC wykazała, że dojrzałe moDC wykazują najwyższy poziom markerów dojrzewania HLA-DR, CD83 i CD86 w porównaniu z tolerogennymi moDC traktowanymi LPS, tolerogennymi moDC oraz niedojrzałymi moDC (Rysunek 3). Wyniki te dowiodły, że tolerogenne moDC były bardziej oporne na dojrzewanie w porównaniu z niedojrzałymi moDC po stymulacji LPS. Ponadto tolerogenne moDC traktowane LPS oraz tolerogenne moDC wykazywały zwiększoną ekspresję CD14, BDCA3 (CD141) oraz transkryptu podobnego do immunoglobuliny (ILT)3 w porównaniu z niedojrzałymi i dojrzałymi moDC. Tolerogenne moDC wygenerowane w niniejszej pracy są zgodne z wcześniejszymi doniesieniami 23.
Charakterystyka funkcjonalna moDC
moDC indukowane do dojrzewania stają się immunogenne i uwalniają cytokiny, które promują proliferację limfocytów T CD4+. Oceńiono immunogenność różnych podtypów moDC poprzez pomiar proliferacji współhodowanych limfocytów T. Tolerogenne moDC wykazały niską immunogenność w porównaniu z dojrzałymi moDC, co objawiało się niską alloproliferacją limfocytów T CD4+ (Rysunek 4A). Tolerogenne moDC charakteryzują się niską produkcją cytokin IFN-Γ i IL-12p40 oraz wysoką produkcją IL-10 w współhodowcach alloreakcyjnych z limfocytami T CD4+ (Rysunek 4B). Ponadto zwiększenie liczby tolerogennych moDC w współhodowcach z dojrzałymi moDC, które indukowały allospecyficzne limfocyty T CD4+, zwiększyło częstotliwość występowania regulacyjnych limfocytów T CD25high Foxp3+ (Rysunek 4C).
Analiza aktywności mitochondrialnej
Red CMXRos jest wykorzystywany do obrazowania aktywności mitochondriów w celu analizy poziomu potencjału błony mitochondrialnej w moDC. Zaobserwowano, że tolerogenne moDC wykazują wyższą aktywność mitochondrialną w porównaniu z innymi podtypami zróżnicowanych moDC (Rysunek 5A). Następnie, za pomocą bioanalizatora, oceniono tempo mitochondrialnego zużycia tlenu (OCR) dla różnych podtypów moDC. Pomiary OCR umożliwiają uzyskanie wysokiej rozdzielczości wglądu w profil metaboliczny, dostarczając informacji obejmujących, między innymi, oddychanie podstawowe, rezerwową wydolność oddechową, przeciek protonowy oraz oddychanie pozamitochondrialne. Pomiar OCR stanowi sposób oceny zdolności komórek do reagowania na stres. Komórki poddawane są perturbacjom metabolicznym poprzez sukcesywne dodawanie trzech różnych związków. Pierwszą iniekcją jest oligomycyna (sprzęgacz ATP), która hamuje kompleks V łańcucha transportu elektronów (ETC), blokując syntezę ATP. Krok ten pozwala określić procent tlenu zużywanego na syntezę ATP oraz procent tlenu zużywanego na pokonanie przecieku protonów przez wewnętrzną błonę mitochondrialną. Druga iniekcja to FCCP (akcelerator ETC), który zaburza syntezę ATP, transportując jony wodoru przez błonę mitochondrialną zamiast przez kanał protonowy Kompleksu V. Spadek potencjału błony mitochondrialnej prowadzi do szybkiego zużycia energii i tlenu bez generowania ATP. Leczenie FCCP może być wykorzystane do obliczenia rezerwowej wydolności oddechowej komórek. Zachowanie rezerwowej wydolności oddechowej w warunkach stresu jest kluczowe dla przetrwania komórek. Wydolność ta jest determinowana przez kilka czynników, w tym dostępność substratu oraz zdolność funkcjonalną enzymów zaangażowanych w ETC. Trzecia iniekcja to kombinacja rotenonu, inhibitora Kompleksu I, oraz antymycyny A, inhibitora Kompleksu III. Kombinacja ta całkowicie hamuje oddychanie mitochondrialne, w wyniku czego obserwuje się spadek OCR spowodowany upośledzeniem funkcji mitochondriów (Rysunek 5C). Tolerogenne moDC wykazywały wyższe podstawowe poziomy OCR niż dojrzałe moDCs (Rysunek 5D). Ponadto tolerogenne, LPS-tolerogenne i niedojrzałe moDCs wykazały zwiększoną rezerwową wydolność oddechową w porównaniu z dojrzałymi moDCs (Rysunek 5E).
Charakterystyka metaboliczna moDC
Ponieważ podczas glikolizy z komórek uwalniane są kwas mlekowy i protony, przeanalizowano aktywność glikolityczną moDC, wykonując analizę tempa zakwaszenia zewnątrzkomórkowego (ECAR) w czasie rzeczywistym (Rysunek 6B). W obecności glukozy tempo glikolizy wszystkich moDC wzrosło w porównaniu ze stanem podstawowym, przy czym dojrzałe moDC wykazywały wyższe tempo glikolizy niż niedojrzałe moDC (Rysunek 6D). Tolerogenne i niedojrzałe moDC wykazały wyższą maksymalną glikolizę (indukowaną oligomycyną w obecności glukozy) w porównaniu z moDC traktowanymi LPS (Rysunek 6B). Wydajność glikolityczna tolerogennych i niedojrzałych moDC była wyższa niż w przypadku dojrzałych moDC (Rysunek 6E). W przeciwieństwie do wysokiego tempa glikolizy, rezerwa glikolityczna była najniższa w dojrzałych moDC (Rysunek 6F).
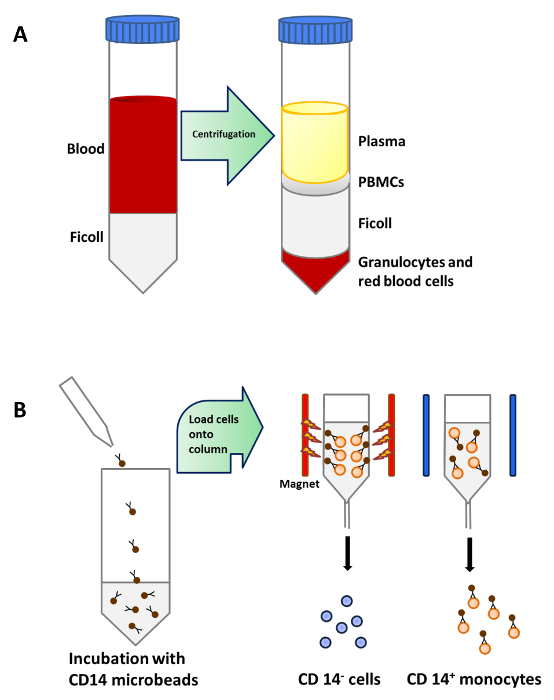
Rysunek 1: Oczyszczanie monocytów z krwi obwodowej. (A) Przed wirowaniem do każdej probówki o pojemności 50 ml ostrożnie nanosi się 25 ml krwi na 15 ml Ficollu. Po wirowaniu gradientowym PBMC koncentrują się w warstwie poniżej osocza. (B) Komórki PBMC inkubuje się z mikrokuleczkami sprzężonymi z monoklonalnymi przeciwciałami przeciwko ludzkiemu CD14 (izotyp: mysi IgG2a), a następnie nanosi się je na kolumnę umieszczoną w polu magnetycznym separatora w celu izolacji CD14+ monocyty Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.

Rysunek 2: Charakterystyka morfologiczna moDC. (A) Do oczyszczonych komórek CD14 dodaje się 20 ng/ml GM-CSF oraz IL-4+ monocyty w dniu 0, 4 i 6 w celu wygenerowania niedojrzałych moDC; oraz (B) dodatkowy etap stymulacji 10 nM witaminą D3 i 10 nM deksametazonem w 5. dniu pozwala na otrzymanie tolerogennych moDC. Niedojrzałe moDC oraz tolerogenne moDC są stymulowane za pomocą 1 µg/ml LPS w 6. dniu w celu wygenerowania (C) dojrzałe moDC i (D) LPS-tolerogenne moDC. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
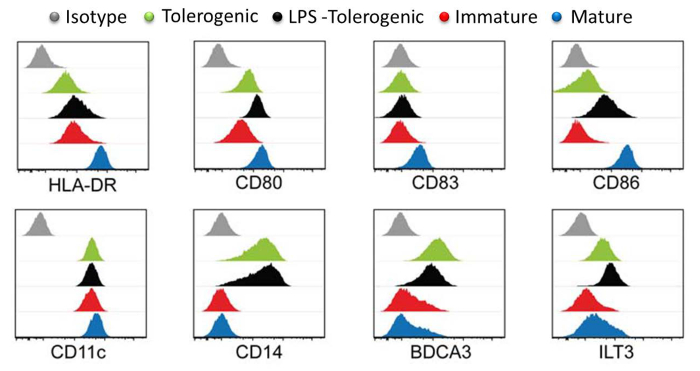
Rysunek 3: Charakterystyka markerów powierzchniowych metodą cytometrii przepływowej. Poziomy ekspresji markerów powierzchniowych HLA-DR, CD80, CD83, CD86, CD1, CD14, BDCA3 i LT3 w tolerogennych (zielone), LPS-tolerogennych (czarne), niedojrzałych (czerwone) i dojrzałych (niebieskie) moDC. Kontrole izotypowe przedstawiono w kolorze szarym. Dla każdego typu komórek naniesiono na siebie poszczególne histogramy z liczbą komórek na osi Y i logarytmem intensywności fluoroforu na osi X. Wszystkie histogramy są reprezentatywne dla czterech niezależnych eksperymentów. Rysunek został zmodyfikowany z J Immunol 194 (1), 5174-5186, doi: 10.4049/jimmunol.130316 (1 czerwca 2015). Powielone i ponownie opublikowane za zgodą właściciela praw autorskich. Copyright 2015. The American Association of Immunologists, Inc. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
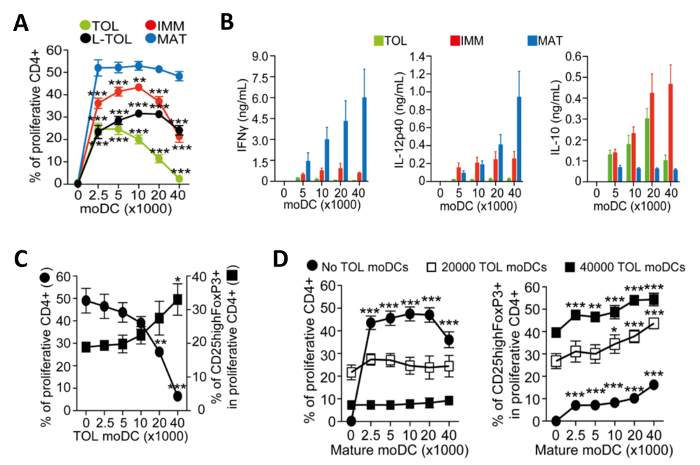
Rysunek 4: Charakterystyka funkcjonalna moDC. (A) Ilościowe oznaczenie częstotliwości alloproliferacji komórek CD4+ Limfocyty T indukowane w kokulturze z rosnącą liczbą tolerogennych (TOL; zielony), LPS-tolerogennych (L-TOL; czarny), niedojrzałych (IMM; czerwony) i dojrzałych (MAT; niebieski) moDC. Dane złączono z czterech niezależnych eksperymentów; średnia + S.E.M. Różnice statystyczne między wszystkimi moDC a dojrzałymi moDC analizowano za pomocą dwuczynnikowej analizy wariancji (ANOVA) z testem post-hoc Dunnetta dla porównań wielokrotnych. (B) Analiza cytokin IFN-Γ (panel lewy), IL-12p40 (panel środkowy) i Il-10 (panel prawy) w supernatantach z alloreakcji między CD4+ Limfocyty T współhodowane z rosnącą liczbą moDC o charakterze tolerogennym (zielony), niedojrzałym (czerwony) lub dojrzałym (niebieski). Dane zrzucono z sześciu niezależnych eksperymentów; średnia ± S.E.M. (C) CD4+ Alloproliferacja limfocytów T oraz ekspansja limfocytów T regulacyjnych indukowane kokulturą z dojrzałymi moDC w obecności rosnącej liczby tolerogennych moDC. Lewa oś Y, częstość CD4+ Proliferacja limfocytów T. Prawa oś Y, częstość występowania CD25wysoki Foxp3+ komórki bramkowane na proliferujące CD4+ Limfocyty T. Dane zostały zgromadzone z trzech niezależnych eksperymentów; średnia ± S.E.M. Różnice statystyczne pomiędzy obecnością a brakiem tolerogennych moDC analizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem post hoc Dunnetta dla porównań wielokrotnych. (D) Alloproliferacja limfocytów T CD4+ (lewo) oraz częstość występowania komórek CD25highFoxP3+ (prawo) indukowana współhodowlą z tolerogennymi moDC w obecności rosnącej liczby dojrzałych moDC. Dane zrzucono z dwóch do trzech niezależnych eksperymentów; średnia ± S.E.M. Różnice statystyczne między obecnością a brakiem dojrzałych moDC analizowano za pomocą dwuczynnikowej analizy wariancji (ANOVA) z testem post-hoc Dunnetta dla porównań wielokrotnych. Rysunek został zmodyfikowany z J Immunol 194 (1), 5174-5186, doi: 10.4049/jimmunol.130316 (1 czerwca 2015). Reprodukowano i przedrukowano za zgodą właściciela praw autorskich. Copyright 2015. The American Association of Immunologists, Inc. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 5: Analiza aktywności mitochondrialnej moDC. (A) Poziomy potencjału błony mitochondrialnej (Red CMXRos) w moDC wyznaczono za pomocą analizy cytometrycznej. Połączono dane z czterech niezależnych eksperymentów. Średnia ± błąd standardowy średniej (S.E.M.). (B) Schematyczne przedstawienie oddychania mitochondrialnego w czasie rzeczywistym. Analiza OCR rozpoczynająca się od oddychania podstawowego, a następnie po dodaniu oligomycyny (inhibicja kompleksu V), FCCP (indukcja oddychania maksymalnego) oraz mieszaniny rotenonu i antymycyny A (inhibicja łańcucha transportu elektronów [ETC]). Mitochondrialna SRC (wynik odjęcia oddychania podstawowego od maksymalnego) jest wyznaczana z krzywej OCR. (C) Reprezentatywna analiza kinetyczna OCR mitochondriów (pmol/min) w moDC tolerogennych (TOL, zielony), LPS-tolerogennych (L-TOL, czarny), niedojrzałych (IMM, czerwony) i dojrzałych (MAT, niebieski) przy zastosowaniu sekwencyjnego dodawania oligomycyny (Olig), FCCP oraz rotenonu/antymycyny A (Rot-AA). (D) Ilościowe oznaczenie OCR podstawowego oddychania moDC i (E) rezerwy wydolności oddechowej moDC. Dane zostały zgromadzone z pięciu niezależnych eksperymentów. Średnia ± B.S.E. Rysunek został zmodyfikowany z J Immunol 194 (1), 5174-5186, doi: 10.4049/jimmunol.130316 (1 czerwca 2015). Powielone i przedrukowane za zgodą właściciela praw autorskich. Copyright 2015. The American Association of Immunologists, Inc. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 6: Charakterystyka metaboliczna moDC. (A) Schematyczne przedstawienie glikolizy w czasie rzeczywistym. Analiza ECAR rozpoczyna się od podstawowego poziomu ECAR, w którym komórki inkubowano w pożywce bez glukozy, po czym następowało dodanie glukozy (indukcja glikolizy), oligomycyny (która indukuje maksymalną glikolizę komórkową i hamuje kompleks V), a na koniec 2-deoxy-D-glukozy (hamowanie glikolizy). Z krzywej ECAR wyznacza się tempo glikolizy (indukcja glikolizy pomniejszona o podstawowy poziom ECAR), wydolność glikolityczną (glikoliza maksymalna pomniejszona o podstawowy poziom ECAR) oraz rezerwę glikolityczną (glikoliza maksymalna pomniejszona o indukcję glikolizy). (B) Reprezentatywne badanie kinetyczne ECAR (mpH/min) zależnego od glikolizy w tolerogennych (TOL, zielony), LPS-tolerogennych (L-TOL, czarny), niedojrzałych (IMM, czerwony) i dojrzałych (MAT, niebieski) moDC przy zastosowaniu sekwencyjnego dodawania glukozy (Gluc), oligomycyny (Olig) i 2-DG. (C) Słupki przedstawiają bazowe poziomy ECAR (D) tempo glikolizy (E) zdolność glikolityczna, a (F) rezerwa glikolityczna moDC. Dane zostały zgrupowane z trzech niezależnych eksperymentów; średnia ± SEM. Różnice statystyczne przeanalizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem post hoc Tukeya dla porównań wielokrotnych. Rysunek zmodyfikowano na podstawie J Immunol 194 (1), 5174-5186, doi: 10.4049/jimmunol.130316 (1 czerwca 2015). Powielone i ponownie opublikowane za zgodą właściciela praw autorskich. Copyright 2015. The American Association of Immunologists, Inc. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
Dyskusja
W artykule opisano metodę wytwarzania z monocytów niedojrzałych moDC, tolerogennych moDC i dojrzałych moDC. Ważne kroki w tym protokole zostały szczegółowo omówione w poniższych punktach. Ważne jest, aby pamiętać, że ludzka krew obwodowa jest używana jako materiał wyjściowy w tym protokole i należy stosować uniwersalne środki ostrożności przy obchodzeniu się z ludzką krwią. Chociaż technicznie wykonalne jest wyprowadzenie DC ze szpiku kostnego u ludzi 24, różnicowanie DC in vitro z komórek znajdujących się we krwi obwodowej jest preferowane ze względu na dostępność krwi obwodowej w porównaniu ze szpikiem kostnym. Wśród komórek znajdujących się we krwi obwodowej, hematopoetyczne komórki macierzyste i monocyty CD34 + są powszechnie stosowane do wytwarzania DC in vitro . Hematopoetyczne komórki macierzyste CD34 + są hodowane z GM-CSF i TNF-α w celu uzyskania podzbiorów CD1a + i CD14 + , które są następnie dalej różnicowane w komórki Langerhansa i komórki dendrytyczne. I odwrotnie, monocyty są hodowane w GM-CSF i IL-4 w celu wytworzenia niedojrzałych moDC. Do wzbogacania monocytów z krwi obwodowej stosuje się kilka protokołów; Na przykład poprzez przyleganie do plastikowych naczyń, zestawów do elutriacji i izolacji 25, 26. Zaletą protokołu przestrzegania zaleceń lekarskich jest minimalne uszkodzenie komórek i stosunkowo opłacalność, jednak czystość komórek może być zagrożona; Wymagany jest dodatkowy krok, aby odłączyć komórki do dalszych eksperymentów. Elutriacja to technika polegająca na rozdzielaniu komórek na podstawie ich wielkości i gęstości. Zaletą elutriacji jest żywotność komórek, a monocyty mogą być łatwo wykorzystywane do dalszych eksperymentów; jednak technika ta jest ograniczona dostępnością elutriatora i niemożnością oddzielenia różnych populacji komórek (limfocytów T i monocytów) o podobnych parametrach sedymentacji. Dostępne na rynku zestawy izolacyjne wykorzystują mikrokulki magnetyczne do pozytywnej lub negatywnej selekcji populacji monocytów. Niektóre protokoły są nastawione na izolację monocytów przy użyciu selekcji negatywnej, ponieważ izolowane monocyty pozostają "nietknięte" (nie są związane markerami lub mikrogranulkami). W tym protokole kulki CD14 zostały użyte do pozytywnej selekcji ludzkich monocytów z PBMC. CD14 nie ma domeny cytoplazmatycznej, a wiązanie przeciwciała z CD14 nie wyzwala transdukcji sygnału. Co więcej, mikrogranulki odrywają się od monocytów po hodowli, a tym samym nie utrudniają procesu różnicowania. Ponadto CD14 ulega silnej ekspresji na większości monocytów i słabo na neutrofilach i niektórych szpikowych komórkach dendrytycznych, stąd ta metoda izolacji skutkuje wyższą czystością komórek niż inne metody17.
Monocyty krwi mogą być różnicowane w DC lub makrofagi, a los monocytów w dużej mierze zależy od środowiska cytokin. W tym artykule moDC są generowane przez dodanie czynnika stymulującego tworzenie kolonii granulocytów i makrofagów (GM-CSF) i interleukiny 4 (IL-4) do ludzkich monocytów krwi obwodowej. GM-CSF jest wymagany do przeżycia monocytów, a IL-4 wywiera działanie hamujące na różnicowanie makrofagów; a kombinatoryczne dodawanie GM-SCSF i IL-4 do monocytów daje wyższy odsetek niedojrzałych moDC w porównaniu z pojedynczą cytokiną27. Istnieją inne protokoły, które generują moDC poprzez dodanie czynnika martwicy nowotworu alfa (TNF-α), interferonu alfa (IFN-α) i interleukiny 13 (IL-13) do monocytów krwi obwodowej 28,29,30. Połączenie GM-CSF i IL-4 zostało zoptymalizowane w latach 90. i obecnie jest akceptowanym protokołem, który generuje plastikowe niedojrzałe DC zróżnicowane na immunogenne lub tolerogenne moDC i spolaryzowane na moDC promujące Th1, Th2 lub Th17.
Niedojrzałe moDC różnicują się w tolerogenne moDC przez dodanie witaminy D3 i deksametazonu. Istnieje kilka protokołów generowania tolerogennych DC, na przykład poprzez hamowanie czynnika jądrowego-kappa B (NF-kB), aktywację β-kateniny, witaminę D3, deksametazon i rapamycynę 31,32,33,34,35,9,36,37. Chociaż donoszono, że zarówno witamina D3, jak i sam deksametazon wywołują działanie tolerogenne na DC, połączenie witaminy D3 i deksametazonu powoduje większe zahamowanie alloproliferacji niż w przypadku stosowania pojedynczych leków. W związku z tym istniejący protokół wytwarzania tolerogennych DC został zmodyfikowany na kombinację witaminy D3 i deksametazonu. Metoda ta jest obecnie akceptowana jako model dla ludzkich tolerogennych DC o użyteczności terapeutycznej. Ważne jest również, aby pamiętać, że odtworzona witamina D3 i deksametazon mają krótki okres przydatności do spożycia.
W tym protokole dodano lipopolisacharydy (LPS) jako induktor dojrzewania DC. Niedojrzałe moDC można również indukować do dojrzewania za pomocą koktajlu prozapalnego: (TNF-α), Interleukiny 1 beta (IL-1β), Interleukiny 6 (IL-6) i prostaglandyny E2) lub cytokin prozapalnych (TNF-α i interferonu gamma (IFN-Γ)). Koktajl prozapalny generuje dojrzałe moDC o wysokich funkcjach kostymulujących i migracyjnych, ale wytwarzają one stosunkowo niski poziom IL-1238. Sama TNF-α lub IFN-Γ nie jest w stanie indukować stabilnego fenotypu dendrytycznego 39. LPS stymuluje receptor Toll-podobny 4 (TLR4), pośredniczy w aktywacji kinaz białkowych aktywowanych NF-kB i mitogenem (MAPK) w celu indukowania dojrzewania DC. Dojrzewanie DC indukowane przez LPS wykazuje regulację w górę markerów dojrzewania DC (CD83, CD86, HLA-DR), a także doprowadziło do produkcji IL-12p70. Ponadto etap ten może być dalej modyfikowany w celu sparowania LPS z agonistami TLR3 w celu wytworzenia dojrzałych DC do klinicznych szczepionek przeciwnowotworowych. W niniejszej pracy wykazano, że tolerogenne DC są oporne na dojrzewanie po leczeniu LPS. Te półdojrzałe, takie jak DC, nie są immunogenne i nie uwalniają cytokin prozapalnych 40.
Ograniczenia tego protokołu polegają na procesie różnicowania. Proces trwa 8 dni od dnia 0 do dnia 7, co stanowi trudność w dostosowaniu do analiz o wysokiej przepustowości. Modyfikacja protokołu jest wymagana, aby skrócić proces różnicowania, a jednocześnie uzyskać dużą liczbę żywotnych DC w różnych stanach. Po drugie, DC są generowane przez dodanie cytokin w tym protokole, a cytokiny te nie utrzymują populacji DC przez długi okres czasu. Co więcej, cytokiny są stosowane w stężeniach znacznie wyższych niż in vivo i mogą powodować tendencyjny rozwój szlaków, które nie są fizjologicznie identyczne z DC in vivo . Na przykład wykazano, że hodowle prekursorów DC in vitro reagują na GM-CSF, który nie jest niezbędną cytokiną do prawidłowego różnicowania DC in vivo41. Niemniej jednak stymulacja cytokin może być użyteczną metodą generowania dużej liczby DC in vitro do eksperymentów. Możliwość poddania tych komórek wygenerowanych w tym protokole innym analizom, takim jak barwienie immunofluorescencyjne, cytometria przepływowa, badania reakcji allo i badania metaboliczne, zwiększa użyteczność tej metody. Te DC in vitro służą jako dobry model do poszerzania wiedzy na temat rozwoju, dojrzewania i prezentacji antygenu DC, co wcześniej było trudne do wykonania w przypadku rzadkiej liczby DC in vivo .
Zdolność DC do regulowania odporności immunologicznej w porównaniu z tolerancją czyni je atrakcyjnymi kandydatami w terapiach przeciwko nowotworom i chorobom autoimmunologicznym 42,43,44,45. Immunogenne DC wygenerowane w tym protokole mogą być wykorzystane do poprawy skuteczności szczepień przeciwko chorobom zakaźnym i nowotworom; podczas gdy tolerogenne DC mogą być stosowane do kontrolowania niepożądanych odpowiedzi limfocytów T i zapobiegania odrzuceniom po przeszczepie. Skomplikowana równowaga między odpornością a tolerancją zależy w ogromnym stopniu od statusu różnicowania DC. Różnicowanie DC to skoordynowany program komórkowy, który jest regulowany przez wiele szlaków sygnałowych i los metaboliczny. Różne stany różnicowania DC różnią się potrzebami bioenergetycznymi i biosyntezowymi; na przykład aktywowane DC wymagają bardziej energetycznych adaptacji metabolicznych ważnych dla przetrwania i migracji w porównaniu z DC w stanie spoczynku. Ważne jest, aby pamiętać, że witamina D3, deksametazon i rapamycyna są znane ze swojej zdolności do indukowania tolerogennych DC i opisano wpływ na metabolizm DC. W niniejszej pracy scharakteryzowano metabolizm energetyczny moDC z różnych stanów różnicowania za pomocą analizatorów strumienia zewnątrzkomórkowego, przy czym tolerogenne moDC wykazywały najwyższą plastyczność metaboliczną, a dojrzewanie wywołane LPS zmniejszało tę plastyczność. Metabolizm anaboliczny wspomaga dojrzewanie DC, podczas gdy metabolizm kataboliczny wpływa na tolerogenne funkcje DC46. Centra prądu wygenerowane za pomocą tego protokołu można wykorzystać do oceny, czy zmiana stanu metabolicznego DC jest kluczem do modyfikacji odporności i tolerancji w terapiach. Podsumowując, przedstawiliśmy protokół generowania niedojrzałych, tolerogennych i dojrzałych moDC, kluczowy dla badania funkcji immunoregulacyjnych DC.
Oświadczenia
Opłaty za otwarty dostęp do tego artykułu zostały zapewnione przez firmę Agilent Technologies.
Podziękowania
Ta praca była wspierana przez Agencję ds. Nauki, Technologii i Badań Naukowych (dla J.E.C.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ficoll | GE Healthcare | 17-1440-03 | Izolacja PBMC |
| Strzykawka | Becton, Dickinson | 302832 | Izolacja PBMC |
| 1,5 ml probówka wirówkowa | Axygen | MCT-150-C | PBMC |
| 15 ml probówka sokoła | Falcon | 352096 | izolacja PBMC |
| 50 ml rurka falcon | Falcon | 352070 | Izolacja PBMC |
| Wirówka | Eppendorf | 5810R | PBMC izolacja |
| 0,2 i mikro; Filtr m | Sartorius stedim biotech | 17597 | do izolacji |
| PBMC | Miltenyi biotec | 130-042-201 | Wzbogacanie monocytów |
| Separator MiniMACS | Miltenyi biotec | 130-042-102 | Wzbogacanie monocytów |
| Woda klasy hodowli komórkowej | Invitrogen, Life Technologies | Hodowla komórkowa | |
| RPMI | Gibco, Life Technologies | 11875-093 | Hodowla komórkowa |
| FBS | Hyclone | SH30070103 | Hodowla komórkowa |
| Penicylina-streptomycyna | Gibco, Life Technologies | 15140 | Hodowla komórkowa |
| Fosforan Buforowana sól fizjologiczna | Gibco, Life Technologies | 10010-031 | Hodowla komórkowa |
| NEAA | Gibco, Life Technologies | 11140-040 | Hodowla komórkowa |
| EDTA | Gibco, Life Technologies | 15575 | Hodowla komórkowa |
| HEPES | Gibco, Life Technologies | 15630-080 | Hodowla komórkowa |
| Pirogronian sodu | Gibco, Life Technologies | 11360-070 | Hodowla komórkowa |
| GM-CSF | Miltenyi biotec | 130-093-868 | Hodowla komórkowa |
| IL-4 | Miltenyi biotec | 130-093-924 | Hodowla komórkowa |
| Witamina D3 | Sigma | D1530 | Hodowla komórkowa |
| Deksametazon | Sigma | D2915 | Hodowla komórkowa |
| LPS | Sigma | l2755 | Hodowla komórkowa |
| trypan niebieski | Gibco, Life Technologies | 15250-061 | Hodowla komórkowa |
| Inksamitan PerCP HLADR | BioLegend | 307628 | Cytometria |
| CD80 sprzężona z PE | Nauki biologiczne | 557227 | Cytometria |
| CD83 sprzężona z PE | BD Biosciences | 556855 | Cytometria |
| CD86 sprzężona z PE | BD Biosciences | 555665 | Cytometria |
| CD11c sprzężona z APC | BD Biosciences | 340544 | Cytometria |
| CD14 sprzężona z PE | Miltenyi biotec | 130-091-242 | Cytometria |
| BDCA3 sprzężona z PE | Miltenyi biotec | 130-090-514 | Cytometria |
| ILT3 sprzężona z APC | eBioscience | 12-5139-73 | Cytometria |
| Dopasowany izotyp PerCP- sprzężony Mab | BioLegend | 400250 | Dopasowany izotyp cytometrii |
PE - sprzężony Mab | Miltenyi biotec | 130-091-835 | Dopasowany izotyp cytometrii |
APC- sprzężony Mab | Miltenyi biotec | 130-091-836 | Cytometria |
| BD LSR II Cytometr przepływowy | BD Pharmingen | BD LSR II | Cytometria |
| cytofix/cytoperm | Cytometria 554714 Biosciences | Cytometria | |
| APC/CY7-sprzężone CD25 | BD pharmingen | 557753 | Cytometria |
| PE/CY7-sprzężona CD4 | Biolegend | 300512 | Cytometria |
| CD3 sprzężona z PerCP | Biolegend | 300428 | Cytometria |
| EasySep Zestaw do wzbogacania ludzkich limfocytów T CD4+ | STEMCELL Technologies | 19052 | Badanie alloreakcji |
| Magnes EasySep | STEMCELL Technologies | 18000 | Badanie alloreakcji |
| Cell Trace Zestaw do proliferacji komórek CFSE | Sondy molekularne | C34554 | Badanie alloreakcji |
| HBSS | Gibco, Life Technologies | 14025092 | Badanie alloreakcji |
| Alexa Fluor 647 sprzężony FoxP3 | BD Biosciences | 560889 | |
| Milliplex MAP Human Cytokina/Chemokine panel z kulkami magnetycznymi | Millipore | HCYTOMAG-60K | Analiza cytokin |
| 5 ml Rurka polistyrenowa | Falcon | 352058 | Analiza cytokin |
| Luminex Scover Fluid | Millipore | SHEATHFLUID | Analiza cytokin |
| System FLEXMAP 3D z oprogramowaniem xPONENT | Luminex Corporation | FLEXMAP | Analiza cytokin |
| 3D MitoTracker Red CMXRos | Cell Signalling | 9082 | Aktywność mitochondrialna |
| DMSO | Sigma Aldrich | D2650 | Aktywność mitochondrialna |
| XF Assay Medium (OCR) | Seahorse Bioscience | 102352-000 | Adaptacja metaboliczna |
| Glukoza | Sigma Aldrich | G8769 | Adaptacja metaboliczna |
| XF Podłoże podstawowe (ECAR) | Konik morski | Bioscience 102353-100 | Adaptacja metaboliczna |
| L-glutamina | Gibco, Life Technologies | 25030-081 | Adaptacja metaboliczna |
| Calibrant | Seahorse Bioscience | 100840-000 | Adaptacja metaboliczna |
| XF Cell Mito Stress kit | Seahorse Bioscience | 103015-100 | Adaptacja metaboliczna |
| XF Zestaw stresu glikolizy | Seahorse Bioscience | 103020-100 | Adaptacja metaboliczna |
| Konik morski | Konik morski | Bioscience XFe96 | Adaptacja metaboliczna |
Bibliografia
- Jolles, S. Paul Langerhans. J Clin Pathol. 55 (4), 243-24 (2002).
- Steinman, R. M., Cohn, Z. A. Identification of a novel cell type in peripheral lymphoid organs of mice. I. Morphology, quantitation, tissue distribution. J Exp Med. 137 (5), 1142-1162 (1973).
- Steinman, R. M., Swanson, J. The endocytic activity of dendritic cells. J Exp Med. 182 (2), 283-288 (1995).
- Hemmi, H., Akira, S. TLR signalling and the function of dendritic cells. Chem Immunol Allergy. 86, 120-135 (2005).
- Mueller, D. L. Mechanisms maintaining peripheral tolerance. Nat Immunol. 11 (1), 21-27 (2010).
- Inaba, K., et al. Efficient presentation of phagocytosed cellular fragments on the major histocompatibility complex class II products of dendritic cells. J Exp Med. 188 (11), 2163-2173 (1998).
- Caux, C., et al. B70/B7-2 is identical to CD86 and is the major functional ligand for CD28 expressed on human dendritic cells. J Exp Med. 180 (5), 1841-1847 (1994).
- Paavonen, J., Lehtinen, M. Interactions between human papillomavirus and other sexually transmitted agents in the etiology of cervical cancer. Curr Opin Infect Dis. 12 (1), 67-71 (1999).
- Ohtani, M., et al. Mammalian target of rapamycin and glycogen synthase kinase 3 differentially regulate lipopolysaccharide-induced interleukin-12 production in dendritic cells. Blood. 112 (3), 635-643 (2008).
- Wilde, B., et al. Dendritic cells in renal biopsies of patients with ANCA-associated vasculitis. Nephrol Dial Transplant. 24 (7), 2151-2156 (2009).
- Al-Hello, H., et al. An enterovirus strain isolated from diabetic child belongs to a genetic subcluster of echovirus 11, but is also neutralised with monotypic antisera to coxsackievirus A9. J Gen Virol. 89, 1949-1959 (2008).
- Ziegler-Heitbrock, L., et al. Nomenclature of monocytes and dendritic cells in blood. Blood. 116 (16), 74-80 (2010).
- Osugi, Y., Vuckovic, S., Hart, D. N. Myeloid blood CD11c(+) dendritic cells and monocyte-derived dendritic cells differ in their ability to stimulate T lymphocytes. Blood. 100 (8), 2858-2866 (2002).
- Reynolds, G., Haniffa, M. Human and Mouse Mononuclear Phagocyte Networks: A Tale of Two Species. Front Immunol. 6, (2015).
- Jefford, M., et al. Functional comparison of DCs generated in vivo with Flt3 ligand or in vitro from blood monocytes: differential regulation of function by specific classes of physiologic stimuli. Blood. 102 (5), 1753-1763 (2003).
- Menck, K., et al. Isolation of human monocytes by double gradient centrifugation and their differentiation to macrophages in teflon-coated cell culture bags. J Vis Exp. (91), (2014).
- Zhou, L., et al. Impact of human granulocyte and monocyte isolation procedures on functional studies. Clin Vaccine Immunol. 19 (7), 1065-1074 (2012).
- Menon, V., Thomas, R., Ghale, A. R., Reinhard, C., Pruszak, J. Flow cytometry protocols for surface and intracellular antigen analyses of neural cell types. J Vis Exp. (94), (2014).
- Faresjo, M. A useful guide for analysis of immune markers by fluorochrome (Luminex) technique. Methods Mol Biol. 1172, 87-96 (2014).
- Baker, H. N., Murphy, R., Lopez, E., Garcia, C. Conversion of a capture ELISA to a Luminex xMAP assay using a multiplex antibody screening method. J Vis Exp. (65), (2012).
- Defawe, O. D., et al. Optimization and qualification of a multiplex bead array to assess cytokine and chemokine production by vaccine-specific cells. J Immunol Methods. 382 (1-2), 117-128 (2012).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. (46), (2010).
- Chunharas, A., Pabunruang, W., Hongeng, S. Congenital self-healing Langerhans cell histiocytosis with pulmonary involvement: spontaneous regression. J Med Assoc Thai. 85, 1309-1313 (2002).
- Bai, L., Feuerer, M., Beckhove, P., Umansky, V., Schirrmacher, V. Generation of dendritic cells from human bone marrow mononuclear cells: advantages for clinical application in comparison to peripheral blood monocyte derived cells. Int J Oncol. 20 (2), 247-253 (2002).
- Felzmann, T., et al. Monocyte enrichment from leukapharesis products for the generation of DCs by plastic adherence, or by positive or negative selection. Cytotherapy. 5 (5), 391-398 (2003).
- Berger, T. G., et al. Efficient elutriation of monocytes within a closed system (Elutra) for clinical-scale generation of dendritic cells. J Immunol Methods. 298 (1-2), 1-2 (2005).
- Sallusto, F., Lanzavecchia, A. Efficient presentation of soluble antigen by cultured human dendritic cells is maintained by granulocyte/macrophage colony-stimulating factor plus interleukin 4 and downregulated by tumor necrosis factor alpha. J Exp Med. 179 (4), 1109-1118 (1994).
- Pace, S. T., Gelman, B. B., Wong, B. R. Primary Langerhans cell histiocytosis of the lacrimal gland in an adult. Can J Ophthalmol. 50 (3), 40-43 (2015).
- Ravanfar, P., Wallace, J. S., Pace, N. C. Diaper dermatitis: a review and update. Curr Opin Pediatr. 24 (4), 472-479 (2012).
- Gebhardt, C., et al. A case of cutaneous Rosai-Dorfman disease refractory to imatinib therapy. Arch Dermatol. 145 (5), 571-574 (2009).
- Vazquez, P., Robles, A. M., de Pablo, F., Hernandez-Sanchez, C. Non-neural tyrosine hydroxylase, via modulation of endocrine pancreatic precursors, is required for normal development of beta cells in the mouse pancreas. Diabetologia. 57 (11), 2339-2347 (2014).
- Pellacani, G., et al. Distinct melanoma types based on reflectance confocal microscopy. Exp Dermatol. 23 (6), 414-418 (2014).
- Shi, Y., et al. Hepatic involvement of Langerhans cell histiocytosis in children--imaging findings of computed tomography, magnetic resonance imaging and magnetic resonance cholangiopancreatography. Pediatr Radiol. 44 (6), 713-718 (2014).
- Haustein, M., Terai, N., Pablik, J., Pillunat, L. E., Sommer, F. Therapy-resistant swelling of the upper eyelid in childhood. Ophthalmologe. 111 (1), 53-57 (2014).
- Haidinger, M., et al. A versatile role of mammalian target of rapamycin in human dendritic cell function and differentiation. J Immunol. 185 (7), 3919-3931 (2010).
- Macedo, C., Turquist, H., Metes, D., Thomson, A. W. Immunoregulatory properties of rapamycin-conditioned monocyte-derived dendritic cells and their role in transplantation. Transplant Res. 1 (1), 16(2012).
- Fischer, R., Turnquist, H. R., Taner, T., Thomson, A. W. Use of rapamycin in the induction of tolerogenic dendritic cells. Handb Exp Pharmacol. 188 (188), 215-232 (2009).
- Nicolette, C. A., et al. Dendritic cells for active immunotherapy: optimizing design and manufacture in order to develop commercially and clinically viable products. Vaccine. 25, 47-60 (2007).
- Han, T. H., et al. Evaluation of 3 clinical dendritic cell maturation protocols containing lipopolysaccharide and interferon-gamma. J Immunother. 32 (4), 399-407 (2009).
- Paananen, A., et al. Molecular and biological analysis of echovirus 9 strain isolated from a diabetic child. J Med Virol. 69 (4), 529-537 (2003).
- HC, O. N., Wilson, H. L. Limitations with in vitro production of dendritic cells using cytokines. J Leukoc Biol. 75 (4), 600-603 (2004).
- Mest, H. J., et al. Glucose-induced insulin secretion is potentiated by a new imidazoline compound. Naunyn Schmiedebergs Arch Pharmacol. 364 (1), 47-52 (2001).
- Puc, J., et al. Mitochondrial activity after cold preservation of pancreatic islet cells treated with pefloxacin (PFX). Ann Transplant. 3 (1), 38-41 (1998).
- Alarcon, C., Serna, J., Perez-Villamil, B., de Pablo, F. Synthesis and differentially regulated processing of proinsulin in developing chick pancreas, liver and neuroretina. FEBS Letters. 436 (3), 361-366 (1998).
- Jekunen, A. P., Kairemo, K. J., Paavonen, T. Imaging of Hand-Schuller-Christian syndrome by a monoclonal antibody. Clin Nucl Med. 22 (11), 771-774 (1997).
- Pearce, E. J., Everts, B. Dendritic cell metabolism. Nat Rev Immunol. 15 (1), 18-29 (2015).
Przedruki i uprawnienia
