Myszy wytwarzają złożony, wielosylabowy repertuar wokalizacji ultradźwiękowych (USV). Te USV są szeroko stosowane jako odczyty zaburzeń neuropsychiatrycznych. Protokół ten opisuje niektóre z praktyk, których nauczyliśmy się i opracowaliśmy, aby konsekwentnie indukować, zbierać i analizować cechy akustyczne i składnię piosenek myszy.
Artykuł metodologiczny
Wywoływanie i analizowanie piosenek z wokalizacji ultradźwiękowej (USV) samców myszy
W tym artykule
Podsumowanie
Streszczenie
Myszy wytwarzają ultradźwiękowe wokalizacje (USV) w różnych kontekstach społecznych w okresie rozwoju i dorosłości. Te USV są używane do pobierania matka-szczenię1, interakcje młodocianych2, interakcje przeciwnej i tej samej płci3,4,5, oraz territorial interactions6. Przez dziesięciolecia USV były używane przez badaczy jako proxy do badania zaburzeń neuropsychiatrycznych i rozwojowych lub behawioralnych7,8,9, a ostatnio do zrozumienia mechanizmów i ewolucji komunikacji głosowej wśród kręgowców10. W ramach interakcji seksualnych dorosłe samce myszy wytwarzają piosenki USV, które mają pewne cechy podobne do pieśni godowych ptaków śpiewających11. Wykorzystanie takiego wielosylabowego repertuaru może zwiększyć potencjalną elastyczność i przenoszone przez nie informacje, ponieważ mogą być one zróżnicowane pod względem sposobu organizacji i ponownego łączenia elementów, a mianowicie składni. W tym protokole opisano niezawodną metodę wywoływania piosenek USV od samców myszy w różnych kontekstach społecznych, takich jak ekspozycja na świeży mocz samic, znieczulone zwierzęta i samice rui. Obejmuje to warunki do wywołania dużej ilości sylab u myszy. Ograniczamy nagrywanie dźwięków otoczenia za pomocą niedrogich komór dźwiękowych i przedstawiamy metodę kwantyfikacji do automatycznego wykrywania, klasyfikowania i analizowania USV. Ta ostatnia obejmuje ocenę współczynnika wywołań, repertuaru wokalnego, parametrów akustycznych i składni. Opisano różne podejścia i spostrzeżenia na temat korzystania z playbacków do badania preferencji zwierzęcia do określonych rodzajów piosenek. Metody te wykorzystano do opisania zmian akustycznych i składniowych w różnych kontekstach u samców myszy oraz preferencji dotyczących piosenek u samic.
Wprowadzenie
W porównaniu do ludzi, myszy wytwarzają zarówno wokalizacje o niskiej, jak i wysokiej częstotliwości, później znane jako wokalizacje ultradźwiękowe (USV) powyżej naszego zakresu słyszenia. USV są produkowane w różnych kontekstach, w tym od pozyskiwania matki ze szczeniakiem, interakcji z młodocianymi, po interakcje dorosłych płci przeciwnej lub tej samej4,12. Te USV składają się z różnorodnego, wielosylabowego repertuaru, który można kategoryzować ręcznie9 lub automatycznie10,11. Rola tych USV w komunikacji jest w ostatnich latach coraz częściej badana. Obejmują one wykorzystanie USV jako odczytów mysich modeli zaburzeń neuropsychiatrycznych, rozwojowych lub behawioralnych7,8 oraz wewnętrzne stany motywacyjne/emocjonalne13. Uważa się, że USV przekazują wiarygodne informacje o stanie emitera, które są przydatne dla odbiornika14,15.
W 2005 roku, Holy and Guo 11, wysunęli ideę, że dorosłe samce myszy USV są zorganizowane jako ciąg wielosylabowych elementów wywoławczych lub sylab podobnych do ptaków śpiewających. U wielu gatunków repertuar wielosylabowy pozwala emiterowi łączyć i porządkować sylaby na różne sposoby, aby zwiększyć potencjalną informację przenoszoną przez piosenkę. Uważa się, że różnice w tej składni mają etologiczne znaczenie dla zachowań seksualnych i preferencji partnera16,17. Późniejsze badania wykazały, że samce myszy były w stanie zmienić względny skład typów sylab, które produkują przed, w trakcie i po obecności samicy5,18. Oznacza to, że dorosłe samce myszy używają swoich USV do zachowań godowych, albo w celu przyciągnięcia lub utrzymania bliskiego kontaktu z samicą, albo w celu ułatwienia krycia19,20,21. Są one również emitowane w interakcjach męsko-męskich, prawdopodobnie w celu przekazania informacji społecznych podczas interakcji4. Aby uchwycić te zmiany w repertuarze, naukowcy zwykle mierzą cechy spektralne (parametry akustyczne, takie jak amplituda, częstotliwości itp.), liczbę sylab lub wywołań USV oraz opóźnienie do pierwszego USV. Jednak niewielu faktycznie przygląda się szczegółowo dynamice sekwencji tych USV22. Niedawno nasza grupa opracowała nowatorską metodę pomiaru dynamicznych zmian w sekwencjach sylab USV: 23. Wykazaliśmy, że kolejność sylab w piosence (a mianowicie składnia) nie jest przypadkowa, że zmienia się w zależności od kontekstu społecznego i że słuchające zwierzęta wykrywają te zmiany jako etologicznie istotne.
Zauważamy, że wielu badaczy zajmujących się komunikacją zwierząt nie przypisuje terminowi 'składnia' dokładnie tego samego znaczenia, co składnia używana w ludzkiej mowie. W przypadku badań nad komunikacją zwierząt rozumiemy po prostu uporządkowaną, nielosową sekwencję dźwięków z pewnymi regułami. Ponadto w przypadku ludzi wiadomo, że określone sekwencje mają określone znaczenie. Nie wiemy, czy tak jest w przypadku myszy.
W tym artykule i powiązanym filmie staramy się dostarczyć niezawodne protokoły do nagrywania USV samców myszy w różnych kontekstach i wykonywania odtwarzania. Wykorzystanie trzech kolejno używanych programów do: 1) automatycznych nagrań; 2) wykrywanie i kodowanie sylab; oraz 3) zademonstrowano dogłębną analizę cech i składni sylab (ryc. 1). Dzięki temu możemy dowiedzieć się więcej o strukturze i funkcji USV samców myszy. Uważamy, że takie metody ułatwiają analizę danych i mogą otworzyć nowe horyzonty w charakterystyce normalnej i nieprawidłowej komunikacji głosowej w mysich modelach odpowiednio zaburzeń komunikacyjnych i neuropsychiatrycznych.
Protokół
Oświadczenie etyczne: Wszystkie protokoły eksperymentalne zostały zatwierdzone przez Duke University Institutional Animal Care and Use Committee (IACUC) zgodnie z protokołem #A095-14-04. Uwaga: Patrz Tabela 1 w sekcji "Materiały i wyposażenie" w celu uzyskania szczegółowych informacji na temat używanego oprogramowania.
1. Stymulowanie i rejestrowanie USV myszy
- Przygotowanie samców przed sesjami nagraniowymi
UWAGA: Reprezentatywne wyniki uzyskano przy użyciu młodych dorosłych samców myszy B6D2F1/J (w wieku 7 - 8 tygodni). Protokół ten można dostosować do każdego szczepu.- Ustaw cykl oświetlenia w pomieszczeniu dla zwierząt na 12-godzinny cykl światła/ciemności, chyba że jest to wymagane inaczej. Postępuj zgodnie ze standardowymi zasadami dotyczącymi trzymania od 4 do 5 samców w klatce, chyba że jest to wymagane lub konieczne. Trzy dni przed nagraniem wystawiaj samce indywidualnie na działanie dojrzałej płciowo i chłonnej samicy (do 3 samców z jedną samicą na klatkę) tego samego szczepu przez noc.
- Następnego dnia wyjmij samicę z klatki samca i umieść samce bez samic przez co najmniej dwa dni przed pierwszą sesją nagraniową, aby zwiększyć społeczną motywację do śpiewania (na podstawie naszych anegdotycznych analiz metodą prób i błędów).
- Przygotowanie pudełek do nagrywania
- Użyj lodówki plażowej (wymiary wewnętrzne to dł. 27 x szer. 23 x wys. 47 cm), aby działała jako studio tłumiące dźwięk (rysunek 2A). Wywierć mały otwór w górnej części pudełka, aby przewód mikrofonu mógł się wprowadzić.
UWAGA: Preferowane jest nagrywanie zwierząt w środowisku wytłumionym dźwiękiem i odizolowanym wizualnie, aby nagrać dziesiątki myszy jednocześnie bez słyszenia lub widzenia się nawzajem, zapobieżenia nagrywaniu zanieczyszczającego hałasu sprzętu w pomieszczeniu i osób znajdujących się w pomieszczeniu oraz uzyskania czystych nagrań dźwiękowych myszy (rysunek 2B). Nie zauważyliśmy echa ani zniekształceń dźwięku podczas porównywania wokalizacji tej samej myszy wewnątrz i na zewnątrz komory tłumienia dźwięku (ryc. 2C); Tam raczej dźwięki mogą być głośniejsze i mieć mniej harmonicznych wewnątrz komory. - Podłącz mikrofon do przewodu, przewód do karty dźwiękowej, a kartę dźwiękową do komputera, aby pracować z oprogramowaniem do nagrywania dźwięku (np. oprogramowaniem A na rysunku 1 i w tabeli 1). Niezbędne jest odpowiednie oprogramowanie do nagrywania dźwięku, takie jak oprogramowanie A, które generuje .wav pliki dźwiękowe.
- Umieść pustą klatkę (58 x 33 x 40 cm) w dźwiękoszczelnym pudełku i wyreguluj wysokość mikrofonu tak, aby membrana mikrofonu znajdowała się 35 - 40 cm nad dnem klatki, a mikrofon był wyśrodkowany nad klatką (patrz rysunek 2A).
- Użyj lodówki plażowej (wymiary wewnętrzne to dł. 27 x szer. 23 x wys. 47 cm), aby działała jako studio tłumiące dźwięk (rysunek 2A). Wywierć mały otwór w górnej części pudełka, aby przewód mikrofonu mógł się wprowadzić.
- Konfiguracja oprogramowania rejestrującego A (tabela 1) do nagrywania ciągłego
- Kliknij dwukrotnie i otwórz oprogramowanie A. Kliknij i otwórz menu "konfiguracja" i wybierz Urządzenie o nazwie, częstotliwość próbkowania (250 000 Hz), Format (16 bitów).
- Wybierz opcję "Wyzwalacz" i zaznacz "Przełącz".
UWAGA: To ustawienie umożliwia rozpoczęcie nagrywania poprzez naciśnięcie (F1, F2 itp.) podczas umieszczania bodźca w klatce myszy. - Wprowadź identyfikator myszy w parametrze "Nazwa".
- Ustaw maksymalny rozmiar pliku na żądane minuty nagrywania (zwykle ustawiamy na 5 minut).
UWAGA: Im dłuższe minuty, tym większa ilość potrzebnej pamięci masowej komputera. Jeśli tryb ciągły nie jest ustawiony, oprogramowanie odcina uderzenia utworu na początku lub na końcu sekwencji na podstawie ustawionych parametrów, a zatem nie można wiarygodnie określić ilościowo sekwencji.
- Nagrywaj USV przy użyciu różnych bodźców. Uwaga: Każdy bodziec może być używany niezależnie w zależności od potrzeb eksperymentalnych użytkownika.
- Delikatnie podnieś zwierzę, które ma być nagrywane, za ogon i umieść je w klatce bez ściółki (aby zapobiec odgłosom ruchu na pościeli) wewnątrz dźwiękoszczelnego pudełka, a następnie umieść na niej metalową pokrywę klatki z otwartymi drutami, pokrywą skierowaną do góry.
- Zamknąć pudełko z tłumikiem dźwięku i pozwolić zwierzęciu przyzwyczaić się do niego przez 15 minut. W tym momencie przeprowadzić przygotowanie bodźców (1.4).
- Przygotowanie bodźców
- Przygotowanie świeżych próbek moczu (UR) jako bodziec
- Próbki moczu należy pobrać maksymalnie 5 minut przed sesją nagraniową, aby zapewnić maksymalny efekt w wywoływaniu śpiewu u samców. UWAGA: Mocz, który zalega dłużej, a zwłaszcza przez wiele godzin lub w nocy, nie jest tak skuteczny24,25, co zweryfikowaliśmy empirycznie23.
- Wybierz samicę lub samca (w zależności od płci bodźca, który ma być użyty) w jednej klatce, chwyć skórę za szyję i skrępuj zwierzę jedną ręką, tak jak w przypadku procedury wstrzykiwania leku z odsłoniętym brzuchem.
- Za pomocą pęsety chwyć bawełnianą końcówkę (3 - 4 mm długości x 2 mm szerokości). Delikatnie pocieraj i naciskaj na pęcherz zwierzęcia, aby usunąć jedną kroplę świeżego moczu. Wytrzyj pochwę kobiety lub penisa mężczyzny, aby zebrać całą kroplę na bawełnianej końcówce.
- Następnie wybierz inną klatkę. I powtórz tę samą procedurę z inną samicą lub samcem, ale z tą samą bawełnianą końcówką, której wcześniej używano.
UWAGA: Ta procedura upewnia się, że mocz co najmniej dwóch samic lub samców z dwóch niezależnych klatek znajduje się na tej samej bawełnianej końcówce, aby zabezpieczyć się przed rują lub innymi indywidualnymi efektami, ponieważ wiadomo, że cykl rui może wpływać na zachowanie śpiewania18,26. - Umieść bawełnianą końcówkę, która ma być używana, w czystej szklanej lub plastikowej szalce Petriego.
UWAGA: Ponieważ bawełniana końcówka z moczem będzie musiała zostać zużyta w ciągu najbliższych 5 minut, nie ma potrzeby jej zakrywania, aby zapobiec parowaniu.
- Przygotowanie żywego bodźca żeńskiego (FE) jako bodźca
- Wybierz jedną lub dwie nowe klatki dojrzałych płciowo samic. Zidentyfikuj samice w stadium rui lub rui za pomocą oględzin (szeroki otwór pochwy i różowe otoczenie, jak pokazano w27,28). Oddziel je w innej klatce do czasu użycia.
- Przygotowanie znieczulonych zwierząt, samic (AF) lub samców (AM) jako bodziec
- W przypadku AF wybierz samicę z powyższej puli (w rui lub rui). Dla AM wybierz samca z klatki dorosłych samców myszy.
- Znieczulić kobietę lub mężczyznę wstrzyknięciem dootrzewnowym roztworu ketaminy/ksylazyny (odpowiednio 100 i 10 mg/kg).
- Użyj maści do oczu, aby zapobiec odwodnieniu oczu, gdy zwierzę jest znieczulone. Sprawdź prawidłowe znieczulenie, testując odruch wycofania łapy po uszczypnięciu. Umieść znieczulone zwierzę w czystej klatce na ręczniku papierowym, z klatką na poduszce grzewczej ustawioną na "minimalne ciepło", aby zapewnić kontrolę temperatury ciała.
- W razie potrzeby użyj ponownie tych samych zwierząt do 2 do 3 razy podczas różnych sesji nagraniowych, zanim się obudzą (zwykle około 45 minut). Umieść je z powrotem na poduszce grzewczej po każdej sesji nagraniowej.
- Kontroluj częstość oddechów poprzez oględziny (~ 60 - 80 oddechów na minutę) i temperaturę ciała, dotykając zwierzęcia co 5 minut (powinno być ciepłe w dotyku).
- Gdy będziesz gotowy do nagrywania, kliknij przycisk "Nagraj" w oprogramowaniu A.
UWAGA: Nagrania nie rozpoczną się, dopóki użytkownik nie kliknie przycisku klucza powiązanego z każdym kanałem; Monitoruj obraz na żywo z klatek na ekranie komputera, aby upewnić się, że zwierzęta śpiewają, a nagrania są prawidłowo uzyskiwane. - Jednocześnie naciśnij odpowiedni przycisk żądanego pola (pól) do nagrania (tj. F1 dla pola 1) i wprowadź pożądany bodziec.
- Przedstaw jeden z bodźców w następujący sposób. Umieść bawełnianą końcówkę ze świeżymi próbkami moczu w klatce lub umieść żywą samicę w klatce lub umieść jedno ze znieczulonych zwierząt (AF lub AM) na metalowej pokrywie klatki.
- Cicho zamknij pudełko nagrywania i pozwól nagrywać przez ustawioną liczbę minut (np. 5 minut, jak opisano w rozdziale 1.3).
- Po nagraniu kliknij czerwony przycisk stop square, aby zatrzymać nagrywanie.
- Jeśli znieczulone zwierzę zostało użyte jako bodziec, otwórz dźwiękoszczelne pudełko z nagraniami, wyjmij znieczulone zwierzę z metalowej pokrywy klatki i umieść je z powrotem na poduszce grzewczej przed następną sesją nagraniową, a jeśli nie używasz już zwierzęcia jako bodźca, sprawdzaj je co 15 minut, aż odzyska wystarczającą świadomość, aby utrzymać pozycję leżącą mostka.
- Otwórz klatkę i wyjmij przytomne zwierzę testowe, a następnie umieść je z powrotem w klatce domowej. Wyczyść klatkę testową 70% alkoholem i wodą destylowaną.
- Przygotowanie świeżych próbek moczu (UR) jako bodziec
2. Przetwarzanie plików .wav i kodowanie sylab za pomocą analizatora piosenek myszy v1.3
- Otwórz oprogramowanie do kodowania B (Rysunek 1, Tabela 1) i umieść folder zawierający skrypt programowy C "Mouse Song Analyzer" (Rysunek 1, Tabela 1) w ścieżce oprogramowania B, klikając "ustaw ścieżkę" i dodaj folder w oprogramowaniu B. Następnie zamknij oprogramowanie B, aby zapisać.
- Skonfiguruj ustawienia identyfikacji sylabowej połączonego oprogramowania B+C. UWAGA: Skrypt programowy C kod automatycznie tworzy nowy folder o nazwie "sonogramy" z plikami w formacie .sng w tym samym folderze, w którym znajdują się pliki .wav. Zazwyczaj lepiej jest umieścić wszystkie .wav pliki z tej samej sesji nagraniowej wygenerowane za pomocą oprogramowania A w tym samym folderze.
- Otwórz oprogramowanie B skonfigurowane za pomocą C.
UWAGA: Ta wersja oprogramowania B jest w pełni kompatybilna ze skryptem programowym C. Nie można zagwarantować, że jakiekolwiek późniejsze wersje zaakceptują wszystkie funkcje zawarte w bieżącym kodzie. - Przejdź do interesującego Cię folderu zawierającego nagranie .wav pliki do analizy za pomocą okna "bieżący folder".
- W "oknie poleceń" wprowadź polecenie "whis_gui".
- W nowym oknie whis-gui obserwuj kilka sekcji podokien z różnymi parametrami (Rysunek 3), w tym "Parametry sonogramu", "Opcje gwizdka" i wszystkie inne. Dostosuj parametry wykrywania USV. Użyj następujących ustawień parametrów do wykrywania sylab USV od myszy laboratoryjnych (np. szczepów myszy B6D2F1/J i C57BL/6J używanych w naszych badaniach):
- W sekcji Parametry sonogramu dostosuj minimalną częstotliwość do 15 000 Hz, maksymalną częstotliwość do 125 000 Hz, częstotliwość próbkowania (liczbę częstotliwości) na 256 kHz i próg na 0,3.
- W sekcji Opcje gwizdka dostosuj próg czystości do 0,075, minimalny czas trwania sylaby do 3 ms, minimalny czas przemiatania częstotliwości do 20 000 Hz, a czas trwania filtra do 3 ms.
- W pozostałych sekcjach dostosuj minimalny czas trwania nuty na 3 ms, a minimalną liczbę nut na 1.
- Aby zapoznać się z protokołem kategoryzacji sylab, zaznacz pola w środkowej części okna whis_gui:
Domyślna kategoryzacja jest oparta na Holy i Guo11 oraz Arriaga et al.10, który koduje sylabę przez liczbę skoków wysokości i kierunek skoku: S dla prostej sylaby ciągłej; D dla jednego skoku w dół; U jak jeden skok w górę; DD dla dwóch sekwencyjnych skoków w dół; DU dla jednego skoku w dół i jednego skoku w górę; itd. Będzie to ustawienie domyślne, jeśli użytkownik niczego nie wybierze. Użytkownik ma możliwość przeprowadzenia analizy na określonych typach sylab, zaznaczając każde z reprezentatywnych pól.
Aby wybrać kategoryzację sylab, zgodnie z opisem Scattoni i wsp.9, dodatkowo wybierz kategorię Split s, która dzieli ten typ na więcej podkategorii na podstawie kształtu sylaby.
Wybierz opcję Harmoniczne, jeśli użytkownik chce dalej sortować sylaby na te z harmonicznymi i bez harmonicznych.
- Otwórz oprogramowanie B skonfigurowane za pomocą C.
- Klasyfikuj sylaby w .wav interesujących Cię plikach
- Zaznacz wszystkie .wav pliki z jednej sesji nagraniowej w lewej górnej części okna whis_gui.
- Kliknij "Pobierz sonogramy" w środku okna whis_gui (Rysunek 3). Zostanie utworzony nowy folder zawierający sonogramy w formacie pliku .sng. Zaznacz wszystkie sonogramy (pliki .sng) w lewym górnym rogu okna whis-gui. Wpisz "Identyfikator zwierzęcia" i "Identyfikator sesji" w polach poniżej okna pliku sonogramu. Następnie kliknij proces sonogramów.
- Obserwuj trzy typy plików w folderze sonogramu: "Animal ID-Session ID -Notes.csv" (zawiera informacje o nutach wyodrębnionych z sylab), "Animal ID-Session ID -Syllables.csv", (zawiera wartości wszystkich sklasyfikowanych sylab, w tym ich cechy spektralne i całkowitą liczbę sylab wykrytych w sonogramach), "Animal ID-Session ID -Traces.mat", (zawiera graficzne reprezentacje wszystkich sylab).
UWAGA: Plik "Animal ID-Session ID -Syllables" czasami zawiera niewielki procent (2 - 16%) niesklasyfikowanych sylab USV, które są bardziej złożone niż te wybrane, lub które mają dwie sylaby zwierzęce nakładające się na siebie23. W razie potrzeby można je sprawdzić oddzielnie od pliku śledzenia.
- Obserwuj trzy typy plików w folderze sonogramu: "Animal ID-Session ID -Notes.csv" (zawiera informacje o nutach wyodrębnionych z sylab), "Animal ID-Session ID -Syllables.csv", (zawiera wartości wszystkich sklasyfikowanych sylab, w tym ich cechy spektralne i całkowitą liczbę sylab wykrytych w sonogramach), "Animal ID-Session ID -Traces.mat", (zawiera graficzne reprezentacje wszystkich sylab).
3. Kwantyfikacja struktury akustycznej i składni sylaby
UWAGA: Instrukcje dotyczące kroków, które należy podjąć w celu wstępnej analizy składni, znajdują się w arkuszu kalkulacyjnym "READ ME!" pliku "Song Analysis Guide v1.1.xlsx", naszym specjalnie zaprojektowanym kalkulatorze arkuszy kalkulacyjnych E (Rysunek 1, Tabela 1).
- Otwórz plik wyjściowy skryptu oprogramowania C "Identyfikator zwierzęcia-Identyfikator sesji -Syllables.csv" uzyskany w powyższej sekcji za pomocą oprogramowania arkusza kalkulacyjnego D (Rysunek 1, Tabela 1). Zawiera całkowitą liczbę sylab wykrytych we wszystkich sonogramach oraz wszystkie ich cechy spektralne.
- Jeśli nie został jeszcze przekonwertowany, w oprogramowaniu arkusza kalkulacyjnego D przekonwertuj ten plik .csv na separację kolumn w oprogramowaniu D, aby umieścić każdą wartość w poszczególnych kolumnach.
- Otwórz plik "Song Analysis Guide v1.1.xlsx" również w oprogramowaniu D. Następnie kliknij arkusz kalkulacyjny szablonu, a następnie skopiuj i wklej dane pliku "Identyfikator zwierzęcia-Identyfikator sesji -Syllables.csv" do tego arkusza zgodnie z zaleceniami w instrukcjach arkusza szablonów. Usuń wiersze z kategorią sylab "Niesklasyfikowane".
- Po usunięciu wierszy "Niesklasyfikowane" najpierw skopiuj i ponownie przelicz dane ISI (interwał międzysylabowy) z kolumny O do kolumny E. Następnie skopiuj wszystkie dane z kolumny A do N do arkusza kalkulacyjnego "Dane".
- W arkuszu kalkulacyjnym danych wprowadź identyfikatory zwierząt (kolumna AF) i długość zapisu (w minutach; kolumna AC).
UWAGA: Identyfikatory zwierząt muszą być zgodne z tymi, które zostały wprowadzone w konfiguracji nagrywania. Plik wykryje wprowadzone znaki i porówna je z nazwami .wav plików. - Określ punkt odcięcia ISI, aby zdefiniować sekwencję, korzystając z arkusza kalkulacyjnego oznaczonego "Gęstość ISI", wyniku "wykresu ISI".
UWAGA: W naszym poprzednim badaniu23, ustaliliśmy punkt odcięcia na dwa odchylenia standardowe od środka ostatniego szczytu. Składał się z długich interwałów (LI) trwających ponad 250 ms, które oddzielały różne pojedynki piosenek w trakcie sesji śpiewania. - Zobacz główne wyniki w arkuszu kalkulacyjnym "Cechy" (grupującym wszystkie cechy spektralne zmierzone dla każdego zwierzęcia).
UWAGA: Jeśli użytkownik użył domyślnego ustawienia kategorii sylab w skrypcie programowym C opisanym w sekcji 2.8.9, sylaby są następnie klasyfikowane do 4 kategorii, jak opisano powyżej oraz w Chabout, et al. 23: 1) prosta sylaba bez żadnych skoków wysokości, « s » ; 2) dwie sylaby nutowe oddzielone pojedynczym skokiem w górę (« u »); 3) dwie sylaby nutowe oddzielone pojedynczym skokiem w dół (« d »); oraz 4) bardziej złożone sylaby z dwoma lub więcej skokami wysokości dźwięku między nutami (« m »). - Aby uzyskać wartości składniowe, kliknij arkusz kalkulacyjny "Globalne prawdopodobieństwa", który oblicza prawdopodobieństwa każdej pary typów przejścia sylab, niezależnie od sylab początkowych, używając następującego równania 23.
P (Występowanie typu przejścia) = Całkowita liczba wystąpień typu przejścia / Całkowita liczba przejść wszystkich typów - Kliknij arkusz kalkulacyjny "Prawdopodobieństwa warunkowe", aby obliczyć prawdopodobieństwa warunkowe dla każdego typu przejścia względem sylab początkowych, który wykorzystuje następujące równanie:
P (wystąpienie typu przejścia przy danej sylabie początkowej) = całkowita liczba wystąpień typu przejścia / całkowita liczba wystąpień wszystkich typów przejścia z tą samą sylabą początkową - Aby sprawdzić, czy i które z powyższych prawdopodobieństw przejścia różnią się od nielosowych, używając modelu Markowa pierwszego rzędu, zgodnie z podejściem w23, użyj niestandardowego oprogramowania F (np. Składnia decorder w R studio; Rysunek 1, tabela 1) z następującymi skryptami R: Tests_For_Differences_In_Dynamics_Between_Contexts.R dla grup w różnych warunkach; lub Tests_For_Differences_In_Dynamics_Between_Genotypes.R dla między grupami w tych samych warunkach.
- Wykonaj test chi-kwadrat lub inny test według własnych preferencji, aby sprawdzić statystyczne różnice w prawdopodobieństwie przejścia tego samego zwierzęcia w różnych kontekstach (parami), postępując zgodnie z podejściem w23.
UWAGA: Więcej szczegółów na temat modelu statystycznego używanego do porównywania składni między grupami można znaleźć w23. Badacze mogą użyć innych podejść do analizy globalnych lub warunkowych prawdopodobieństw przejścia, które opracowali sami lub inni. - Aby graficznie przedstawić sekwencje jako diagramy składniowe, wprowadź wartości do oprogramowania do tworzenia wykresów sieciowych G (patrz Rysunek 1, Tabela 1), z węzłami oznaczającymi różne kategorie sylab oraz kolorem strzałki i/lub pikselem grubości reprezentującym zakresy wartości prawdopodobieństwa między sylabami.
UWAGA: Dla jasności, w przypadku globalnych wykresów prawdopodobieństwa pokazujemy tylko przejścia wyższe niż 0,005 (wyższe niż 0,5% wystąpienia szansy). Dla prawdopodobieństw warunkowych używamy progu 0,05, ponieważ każde prawdopodobieństwo w "modelu globalnym" jest niższe, biorąc pod uwagę, że dzielimy przez całkowitą liczbę sylab, a nie tylko przez jeden konkretny typ sylaby.
4. Preferencje dotyczące edycji i testowania utworów dla danego rodzaju utworu
UWAGA: Odtwarzanie USV może być wykorzystane do eksperymentalnego testowania reakcji behawioralnej zwierzęcia, w tym preferencji dla określonego typu piosenki. Ponieważ preferencje samic mogą się zmieniać w zależności od stanu rui, w przypadku samic upewnij się, że są w tym samym stanie rui przed badaniem w następujący sposób:
- Przygotuj samice z doświadczeniem seksualnym na kilka dni przed eksperymentem z odtwarzaniem
- Wystaw dojrzałe płciowo samice (> 7 tygodni) samcowi na 3 dni przed eksperymentami, aby wywołać ruję (efekt Whitten 28), umieszczając je w klatce separacyjnej (przezroczysty, solidny plastik z wywierconymi otworami), pozwalając samicy zobaczyć i powąchać samca, ale zapobiegając stosunkowi płciowemu.
- Monitoruj cykl rui, a gdy widoczna jest ruja lub ruja (otwór pochwy i różowe otoczenie, jak pokazano w27), umieść samice z powrotem w ich własnej klatce. Są gotowe do badania następnego dnia.
- Przygotuj pliki utworów do odtwarzania
- Korzystanie z funkcji kopiowania i wklejania w oprogramowaniu do przetwarzania dźwięku H (np. SASLap Pro; Rysunek 1, Tabela 1), aby utworzyć dwa edytowane pliki .wav z pożądanymi warunkami, które mają być użyte dla bodźców. Aby zabezpieczyć się przed ilością wokalizacji jako zmienną, upewnij się, że dwa pliki dźwiękowe zawierają taką samą liczbę sylab i długość sekwencji (napadów piosenek) od tych samych lub różnych mężczyzn/kobiet z pożądanych kontekstów (np. UR).
- Otwórz pierwszy plik zawierający utwór z warunku 1 w oprogramowaniu H. Następnie przejdź do File > Specials > Dodaj kanał(y) z pliku i wybierz drugi plik dźwiękowy do przetestowania z warunku 2. Spowoduje to utworzenie 2 kanałów, po jednym dla każdego warunku.
- W razie potrzeby dostosuj głośność wizualnie, aby upewnić się, że woluminy obu plików pasują do siebie, przechodząc do opcji Edytuj > wolumin.
- Następnie przejdź do Edit > Format > Sampling Frequency Conversion i wybierz konwersję z 250 000 Hz na 1 000 000 Hz, aby przekształcić pliki .wav z częstotliwości próbkowania 256 kHz na 1 MHz. Ten krok jest niezbędny, aby urządzenie odtwarzające mogło odczytać .wav files.
- Zapisz te nowe pliki jako pliki testowe do odtworzenia. Upewnij się, że zidentyfikowałeś, który utwór jest w którym kanale (1 lub 2). Dla jasności nazwij go "file name.wav".
- Przejdź do opcji Exit > Format > Swap Channels (Zamień kanały) i zamień oba kanały. Zapisz zamienione wersje pod inną nazwą. UWAGA: Będzie to odwrotna kopia z odwróconymi kanałami, nazwana później 'file name_swapped.wav'.
- Przygotuj aparat odtwarzający
- Wyczyść urządzenie odtwarzające "Y-maze" 70% alkoholem, a następnie wodą destylowaną. Osusz go ręcznikami papierowymi. Nasz labirynt Y jest domowej roboty nieprzezroczystym, solidnym czarnym plastikowym aparatem, z ramionami o długości 30 cm i dwoma wywierconymi otworami na skrajnych końcach labiryntu, aby umożliwić dopasowanie głośnika ultradźwiękowego do poziomu podłogi ramion (ryc. 4A).
- Upewnij się, że głośniki znajdują się we właściwych pozycjach i są podłączone do karty dźwiękowej, a karta jest podłączona do komputera.
- Otwórz oprogramowanie A, wybierz opcję Odtwórz urządzenie > i wybierz urządzenie odtwarzającej karty dźwiękowej. Wybierz opcję "użyj szybkości nagłówka pliku". Przejdź do opcji Odtwórz > Listę odtwarzania i załaduj interesujący Cię plik zawierający dwa kanały (np. "file.wav"). Wybierz "tryb pętli". Ustaw magnetowid nad labiryntem, aby objąć nim cały labirynt.
- Przeprowadzanie eksperymentu z odtwarzaniem
- Umieść badaną samicę w labiryncie na 10-minutowy okres przyzwyczajenia. Po 10 minutach, jeśli samica nie znajduje się w ramieniu startowym, delikatnie wepchnij samicę z powrotem do ramienia startowego i zamknij plastikowe okienko rozdzielające.
- Wybierz przygotowany plik ("file.wav") do odtworzenia i odtwórz go. Rozpocznij nagrywanie wideo i upewnij się, że zidentyfikowałeś, który kanał znajduje się na którym ramieniu labiryntu Y (tj. UR po lewej stronie lub FE po prawej stronie) za pomocą papierowej notatki w polu widzenia nagrywania wideo.
- Pozwól kobiecie usłyszeć piosenki w trybie pętli i zbadaj labirynt przez żądaną liczbę minut (tj. 5 minut): jest to jedna sesja. Wwróć samicę z powrotem do ramienia startowego. Pozwól jej odpocząć przez 1 minutę podczas przygotowywania następnej sesji. Usuń wszelkie ślady moczu i odchody wodą destylowaną.
- Załaduj plik "file_swapped.wav". Zmień położenie papierowych notatek do nagrania wideo. Przesuń lewy na prawą stronę i odwrotnie. Po 1 minutach odtwórz plik. Uwolnij samicę na drugą sesję.
- Powtórz kroki od 4.4.3 do 4.4.4, w sumie 4 sesje x 5 minut, aby kontrolować wykrywanie potencjalnego odchylenia bocznego podczas testu. Zatrzymaj nagrywanie wideo po zakończeniu wszystkich sesji, klikając czerwony przycisk zatrzymania. Oczyść labirynt 70% alkoholem i wodą destylowaną między samicami.
- Powtórz wszystkie kroki z różnymi przykładami piosenek tydzień później z tymi samicami, aby uzyskać wyniki wystarczające do sprawdzenia wiarygodności wyników.
- Później obejrzyj filmy i użyj timera na filmie i stopera, aby zmierzyć czas spędzony przez samice w każdym ramieniu podczas każdej sesji. Przeanalizuj dane wynikowe statystycznie pod kątem możliwych preferencji utworów.
Wyniki
W niniejszym protokole scharakteryzowano zmiany w zachowaniu wokalnym i składni samców myszy B6D2F1/J. Ogólnie, stosując ten protokół, udało nam się zarejestrować średnio na jednego samca podczas 5 min sesji: 675 ± 98,5 sklasyfikowanych sylab w odpowiedzi na UR samicy, 615,6 ± 72 w FE, 450 ± 134 w AF, 75,6 ± 38,9 w AM oraz 0,2 ± 0,1 w UR samca (n = 12 samców). Częstotliwości wynosiły ~ 130 sylab/min dla UR samicy, ~ 120 sylab/min dla FE lub ~ 100 sylab/min dla kontekstów AF (Rysunek 5A). Samce produkują znacznie większą liczbę sylab w odpowiedzi na świeżo zebrany mocz w porównaniu z moczem zebranym przez noc10,23. Samce śpiewają również znacznie mniej w obecności znieczulonego samca lub świeżego moczu samca (Rysunek 5A). Samce zmieniają także swój repertuar w zależności od kontekstu23. Na przykład samce B6D2F1/J znacząco zwiększają produkcję sylab kategorii „m” z wielokrotnymi skokami wysokości dźwięku w warunkach kontaktu z moczem samicy (Rysunek 5B). Zmieniają one również cechy akustyczne poszczególnych sylab w zależności od kontekstu. Na przykład samce B6D2F1/J śpiewają sylaby o wyższej amplitudzie i szerokości pasma w kontekście moczu samicy oraz o wyższej czystości widmowej w kontekście budzącej się samicy w porównaniu do pozostałych warunków (Rysunek 6)23.
Niniejszy protokół zapewnia również sposób pomiaru dynamicznych cech sekwencji, a tym samym zmian składni. Wykorzystując metodę zaadaptowaną z pracy Ey, et al. 22, używamy ISI do zdefiniowania przerw między sekwencjami (Rycina 7A)23, a następnie wykorzystujemy te przerwy do rozróżnienia i analizy czasowych wzorców sekwencji sylab. Wykazaliśmy, że dłuższe sekwencje są generowane w kontekście obecności czuwającej samicy (Rycina 7B)23. Technika ta pozwala nam obliczyć stosunek sekwencji złożonych (składających się z co najmniej 2 wystąpień typu sylaby „m”) do sekwencji prostych (składających się z jednej sylaby typu „m” lub bez niej, a zatem głównie z typu „s”). Stwierdziliśmy, że u samców B6D2F1/J kontekst moczu samicy wywołał wyższy stosunek w porównaniu do pozostałych grup (Rycina 7C)23, co wskazuje, że generowały one bardziej złożone sylaby w warunkach ekspozycji na mocz samicy, ale także, że sylaby te są rozłożone na większą liczbę sekwencji.
Jesteśmy również w stanie obliczyć warunkowe prawdopodobieństwa przejść z jednego typu sylaby na inny (łącznie 24 typy przejść, w tym przejścia ze stanu „ciszy” i do stanu „ciszy”)23. Stwierdziliśmy, że w różnych kontekstach wybór typów przejść dla danych sylab początkowych różni się u myszy, a w warunkach ekspozycji na mocz samic występuje większa różnorodność składniowa (Rycina 8)23. Obserwacje te są zgodne z wcześniejszymi doniesieniami wykazującymi, że samce mogą zmieniać cechy akustyczne lub skład repertuaru swoich wokalizacji w odpowiedzi na różne bodźce i doświadczenia4,5,24.
Na koniec, niniejszy protokół zawiera wytyczne dotyczące badania preferencji samic za pomocą odtwarzania nagrań. Stwierdziliśmy, że samice B6D2F1/J preferują pieśni bardziej złożone (zawierające 2 lub więcej sylab „m”) w porównaniu do pieśni prostych23. Większość samic częściej wybierała pozostanie po stronie labiryntu w kształcie litery Y, w której odtwarzano pieśni złożone (Ryc. 4B).
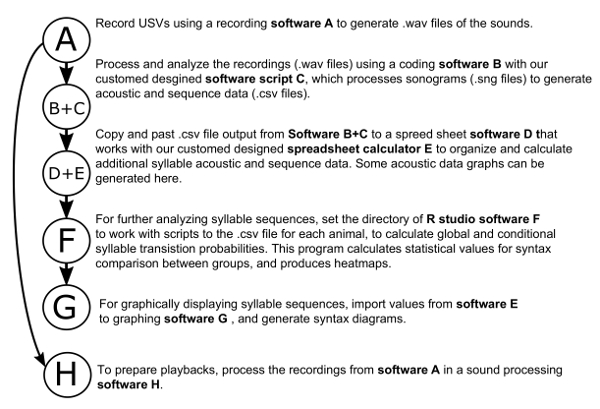
Rysunek 1: Schemat wykorzystania oprogramowania i analizy. Każdy program i powiązany z nim kod został oznaczony literą, aby ułatwić identyfikację i opisanie ich zastosowania w tekście głównym. W nawiasach ( ) znajdują się konkretne programy wykorzystane w naszym protokole. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
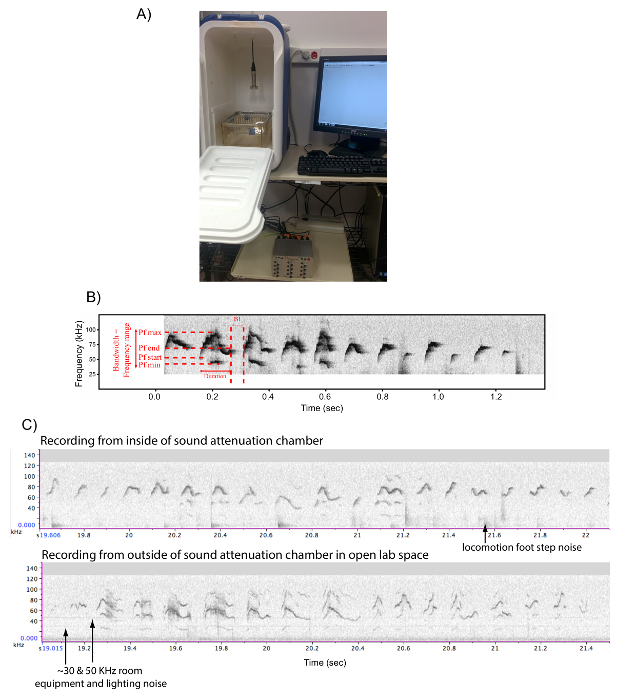
Rysunek 2: Układ do rejestracji pieśni samców myszy. (A) Zdjęcie izolacyjnej skrzynki do rejestracji dźwięku i układu do nagrywania wokalizacji USV. (B) Przykładowy sonogram nagrania wykonanego za pomocą Oprogramowania A (Tabela 1), zawierający szczegółowe cechy widmowe obliczone przez program „Mouse Song Analyzer v1.3”: czas trwania, odstęp między sylabami (ISI), częstotliwość szczytowa minimalna (Pf min), częstotliwość szczytowa maksymalna (Pf max), częstotliwość szczytowa początkowa (Pf start), częstotliwość szczytowa końcowa (Pf end) oraz szerokość pasma. (C) Sonogramy innego samca śpiewającego do żywej samicy, wewnątrz skrzynki izolacyjnej oraz poza skrzynką, na stole laboratoryjnym w tym samym pomieszczeniu. Nasze anegdotyczne obserwacje wskazują, że nagrania tego samego zwierzęcia w skrzynce wykazują większą głośność (silniejszą intensywność) i mniej harmonicznych, jednak nie stwierdzono obecności ech w skrzynce bez pianki akustycznej. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
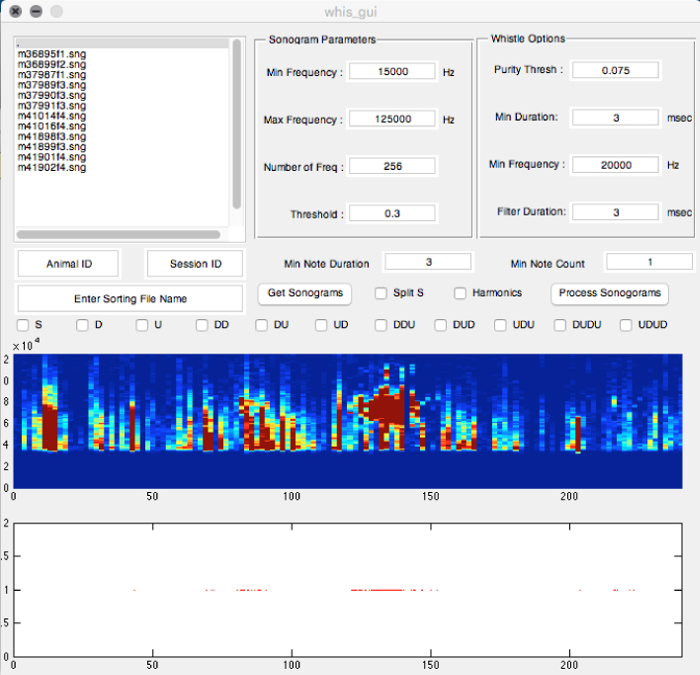
Rysunek 3: Zrzut ekranu okna whis_gui programu „Mouse Song Analyzer v1.3” przedstawiający różne dostępne opcje analizy. Przedstawione parametry to te, których użyto do rejestracji USV samców na rysunkach i w analizach danych (z wyjątkiem minimalnego czasu trwania noty, który wynosił 3 ms). Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
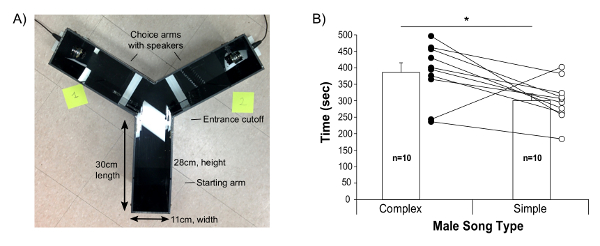
Rycina 4: Preferencje samic pomiędzy odtwarzaniem pieśni złożonych i prostych. (A) Zdjęcie użytego aparatu labiryntu w kształcie litery Y wraz z pomiarami wymiarów. (B) Czas spędzony przez samice w każdym ramieniu podczas odtwarzania pieśni złożonej (wywołanej moczem samicy) lub prostszej (wywołanej przez czuwaną samicę) tego samego samca. Dane przedstawiono dla n = 10 samic myszy B6D2F1J jako średnia ± SE, z zaznaczeniem wartości indywidualnych; 9 z 10 samic wykazało preferencję dla pieśni o bardziej złożonej sylabie/sekwencji. * p < 0.05 parowy test t studenta. Rycina zmodyfikowana z Chabout, et al. 23 za zgodą autorów. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
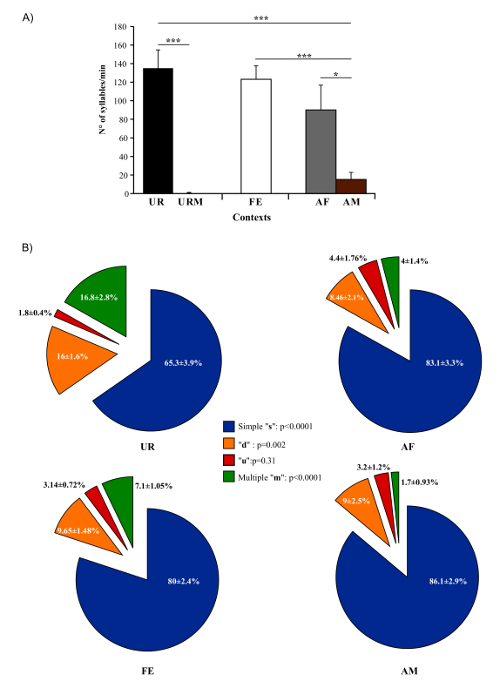
Rysunek 5: Liczba emitowanych sylab i repertuar w różnych warunkach. (A) Szybkość produkcji sylab u samców w różnych kontekstach. (B) Skład repertuaru samców w obecności moczu samicy (UR), znieczulonej samicy (AF), przebudzonej samicy (FE) oraz znieczulonego samca (AM). Dane przedstawiono jako średnia ± SEM. * p<0.03; ** p<0.005; *** p<0.0001 dla testu t Studenta dla prób zależnych po korekcji Benjamini i Hochberga (n = 12 samców). Rysunek z Chabout, et al. 23 za zgodą autora. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
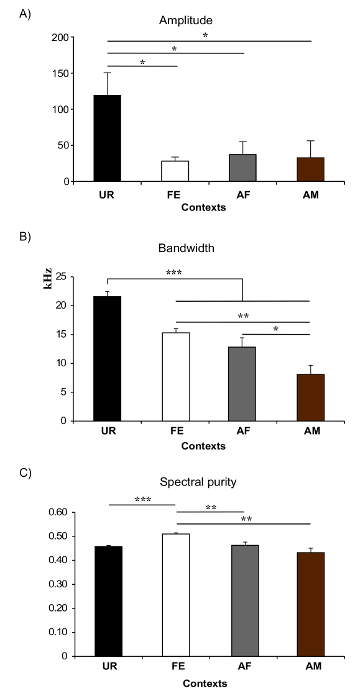
Rycina 6: Przykłady cech widmowych w różnych kontekstach. (A) Amplituda. * p < 0,025 dla post-hoc sparowanego testu t studenta po korekcie. (B) Zakres częstotliwości lub szerokość pasma. *: p < 0,041; **: p < 0,005; ***: p < 0,0001 po korekcie. (C) Czystość widmowa sylab. * p: < 0,025; **: p < 0,005; ***: p < 0,0001 po korekcie. Skróty: mocz samicy (UR), znieczulona samica (AF), czuwająca samica (FE) oraz znieczulony samiec (AM). Ryciny zmodyfikowane z Chabout, et al. 23 za zgodą autorów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
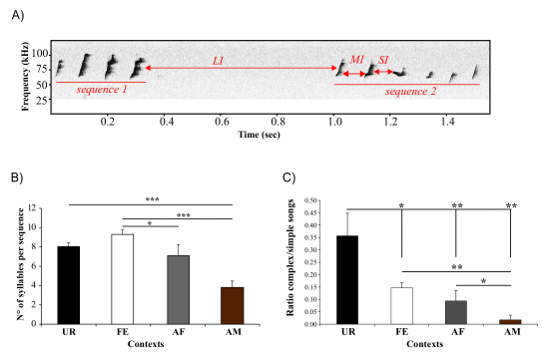
Rycina 7: Pomiary sekwencji. (A) Wykorzystanie ISI do rozdzielenia sekwencji. Krótkie ISI (SI) i średnie ISI (MI) służą do oddzielania sylab w obrębie sekwencji, a długie ISI powyżej 250 ms (LI) oddzielają dwie sekwencje. (B) Długość sekwencji, mierzona jako liczba sylab na sekwencję, wytwarzana przez samce w różnych kontekstach. *: p < 0,025; ** p < 0,005; *** p < 0,0001 po korekcie. (C) Stosunek pieśni złożonych do pieśni prostych wytwarzanych przez samce w różnych kontekstach. * p < 0,041; ** p < 0,005; *** p < 0,0001 po korekcie. Dane przedstawiono jako średnia ± SEM (n = 12 samców). Rycina z Chabout, et al. 23 za zgodą autorów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
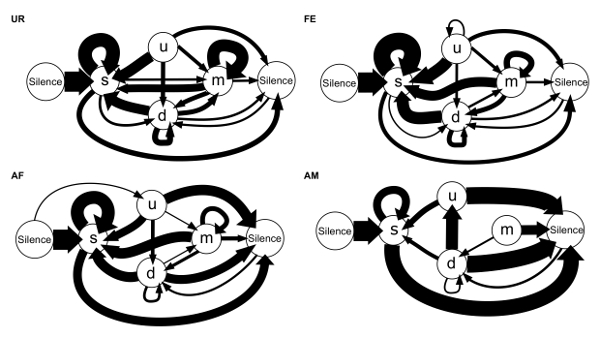
Rysunek 8: Diagramy składni sylab dla sekwencji opartych na prawdopodobieństwach warunkowych dla poszczególnych kontekstów. Grubość strzałek jest proporcjonalna do występowania prawdopodobieństwa warunkowego danego typu przejścia w każdym kontekście, uśrednionego dla n = 12 samców: P (wystąpienie przejścia przy danej sylabie początkowej). Dla przejrzystości nie pokazano rzadkich przejść o prawdopodobieństwie poniżej 0,05. Rysunek z Chabout, et al. 23 za zgodą autorów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Protokół ten zapewnia podejścia do zbierania, ilościowego określania i badania wokalizacji zalotów samców myszy w laboratorium w odniesieniu do różnych bodźców, głównie związanych z samicami. Jak przedstawiono wcześniej w Chabout i wsp. 23oraz w reprezentatywnych wynikach, zastosowanie tej metody pozwoliło nam odkryć zależne od kontekstu wokalizacje i składnię, które mają znaczenie dla odbierających samic. Standaryzacja tych bodźców zapewni zebranie wiarygodnej liczby USV i pozwoli na szczegółową analizę pieśni i repertuaru godowego samca.
Kiedy żywa samica jest obecna z samcem, protokół nie pozwala nam jednoznacznie zidentyfikować emitera wokalizacji. Jednak wcześniejsze badania wykazały, że większość wokalizacji emitowanych w takim kontekście pochodziła od samców26,29. Większość badań wykorzystujących przedstawiciela tego samego gatunku (mężczyznę lub samicę) jako bodziec dla samców uważa, że ilość wokalizacji samic w tych kontekstach jest znikoma 4,5,22,30. Jednak w niedawnym artykule wykorzystano triangulację do zlokalizowania wokalizacji emitera w warunkach przebywania w grupie31 i wykazano, że w obrębie diady samica przyczynia się do ~10% USV. W niniejszym protokole użycie znieczulonej samicy pozwala użytkownikowi na badanie męskich wokalizacji w obecności samicy bez jej wokalizacji. W przeciwieństwie do oczekiwań tego ostatniego badania31, nie znaleźliśmy różnicy w liczbie emitowanych sylab między warunkami FE i AF23. Możliwe, że żywe samice nie przyczyniły się znacząco do nagrań lub że samce wokalizowały mniej w obecności żywych samic w porównaniu ze znieczulonymi samicami. Niemniej jednak uważamy, że przyszłe eksperymenty powinny rozważyć zastosowanie tej metody triangulacji do oceny potencjalnego wpływu udziału kobiet.
Dostępne jest inne oprogramowanie, które może wykonać niektóre z opisanych przez nas kroków, chociaż nie wierzymy w sposób wystarczający dla pytań, które zadaliśmy, używając kombinacji trzech programów: Oprogramowanie A, skrypt programowy Mouse Song Analyzer C przy użyciu oprogramowania B, oprogramowanie do analizy składni przy użyciu niestandardowego oprogramowania do arkuszy kalkulacyjnych obliczenia D + E, i składnia deorder za pomocą R. Na przykład w niedawno opublikowanym artykule zaproponowano oprogramowanie o nazwie VoICE, które pozwala użytkownikowi na automatyczne wyodrębnianie zmiennych akustycznych z sonogramów lub bezpośrednio na jednostkach, które zostały ręcznie wybrane przez użytkownika32. Jednak zautomatyzowane lub półautomatyczne analizy sekwencji nie są tak szczegółowe jak nasze podejście. Niektóre komercyjne programy mogą automatycznie analizować cechy akustyczne, ale nie zapewniają automatycznej klasyfikacji sylab; Użytkownik musi następnie posortować różne sylaby. Grimsley, Gadziola i in. 33 opracowali oparty na stole wirtualny program organów wokalnych myszy, który grupuje sylaby w oparciu o wspólne cechy akustyczne, ale nie zapewnia automatycznego wykrywania sylab. Ich program34 jest wyjątkowy, ponieważ tworzy nowatorskie sekwencje z nagranych piosenek przy użyciu modeli Markowa, a tym samym ma bardziej zaawansowane funkcje niż prosta edycja.
Większość wcześniejszych badań komunikacyjnych na myszach koncentrowała się na stronie emitera35,36. Niewiele badań dotyczyło strony odbiorcy 30,37,38. Protokoły odtwarzania i dyskryminacji zapewniają prosty test do badania strony odbiorcy, taki jak ten również niedawno opisany przez Asaba, Kato i in. 39. W tym badaniu autorzy użyli pudełka testowego dwuwyboru, oddzielonego pianką akustyczną, zamiast opisanego tutaj pudełka Y-labirynt. Obie konfiguracje wyboru mają zalety i wady. Po pierwsze, labirynt Y nie izoluje dźwięku od jednego ramienia do drugiego, ale pudełko z dwoma opcjami tak. Jednak korzystając z projektu Y-labirynt, zwierzę może szybko ocenić dwie piosenki, które są odtwarzane jednocześnie, i przejść do preferowanej. Niemniej jednak, eksperymenty z odtwarzaniem ogólnie pomagają eksperymentatorom określić znaczenie, a tym samym funkcje wokalizacji generowanych dla zwierząt współżyjących. Podsumowując, po opanowaniu technik tego protokołu i analiz, czytelnicy powinni być w stanie odpowiedzieć na wiele pytań, które wpływają na kontekst, genetykę i neurobiologię USV myszy.
Używając myszy B6D2F1/J, bodźce związane z samicami prawie zawsze wywołują USV u samców, których przetestowaliśmy w naszym laboratorium. Bardzo ważne jest, aby zebrać wystarczającą liczbę sylab (> 100 w ciągu 5 minut), aby móc uzyskać silną analizę statystyczną. W celu rozwiązania problemu, jeśli nie są nagrywane żadne USV (lub jest ich za mało), sprawdź konfigurację, aby upewnić się, że dźwięki są nagrywane. Wykonaj inspekcję na żywo tego, co dzieje się w klatce podczas nagrywania, patrząc na sonogram w czasie rzeczywistym na ekranie komputera po wprowadzeniu bodźca. W przeciwnym razie spróbuj ponownie wystawić samca na kontakt z dojrzałą płciowo / receptywną samicą w nocy, a następnie trzymaj go samotnie przez kilka dni lub do tygodnia przed ponownym nagraniem. Opierając się na anegdotycznych obserwacjach, stwierdzamy, że niektóre samce śpiewają dużo jednego dnia (przez prawie pełne 5 minut), a następnego dnia niewiele, a potem znowu innego dnia. Nie znamy powodu, dla którego występuje taka zmienność w obrębie podmiotu, ale przypuszczamy, że jest to prawdopodobnie motywacja lub sezonowość u samców, a stan rui u samic. Jeśli nie zostaną zarejestrowane żadne USV, spróbuj nagrać zwierzę przez wiele dni, aby wychwycić te zmienne efekty. W przeciwieństwie do ptaków śpiewających, nie zauważyliśmy wyraźnych różnic w ilości śpiewu w zależności od pory dnia. Okazuje się, że samce nie śpiewają dużo (< 100 sylab w ciągu 5 minut) przed ukończeniem 7 tygodnia życia.
Przedstawione tutaj metody detekcji pozwalają w ciągu kilku minut wyodrębnić tysiące sylab i wszystkie parametry akustyczne. Ale jak każda metoda automatycznego wykrywania, jest bardzo wrażliwa na szumy tła. Korzystanie z oprogramowania do wykrywania Mouse Song Analyzer z hałaśliwymi nagraniami (na przykład ze zwierząt nagranymi z pościelą) może wymagać dostosowania "progu" wykrywania, aby zapewnić większą elastyczność. Spowoduje to jednak również zwiększenie liczby sylab fałszywie dodatnich, a automatyczne wykrywanie może się nie powieść. W takich okolicznościach można zastosować kodowanie ręczne.
Jak wspomniano wcześniej, liczba, repertuar i opóźnienie wokalizacji są bardzo zmienne w zależności od szczepu, dlatego może być konieczna zmiana parametrów (długość nagrania, bodziec, automatyczne wykrywanie sylab itp.) dla niektórych szczepów, aby zapewnić optymalne nagrania do analiz statystycznych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez fundusze Instytutu Medycznego Howarda Hughesa dla EDJ. Dziękujemy Pr. Sylvie Granon (NeuroPSI - University Paris south XI - FRANCJA) za użyczenie nam sprzętu głośnikowego. Dziękujemy również członkom Jarvis Lab za ich wsparcie, dyskusje, poprawki i komentarze do tej pracy, w szczególności Joshui Jonesowi Macopsonowi za pomoc w tworzeniu figur i testów. Dziękujemy dr Gustavo Arriaga za pomoc w tworzeniu oprogramowania Mouse Song Analyzer, aktualizację go do wersji 1.3 i inne aspekty tego protokołu. Wersja 1.0 oprogramowania została opracowana przez Holy i Guo, a wersje 1.1 i 1.3 przez Arriaga.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Dźwiękoszczelna chłodziarka plażowa | Zobacz papier Gus zawiera więcej informacji na temat konkretnego rodzaju | Wymiary wewnętrzne (dł. 27 x szer. 23 x wys. 47 cm): | |
| Pojemnościowy mikrofon ultradźwiękowy CM16/CMPA | Avisoft Bioacoustics, Berlin, Niemcy | #40011 | Zawiera przedłużacz |
| Karta dźwiękowa Ultrasound Gate 1216H | Avisoft Bioacoustics, Berlin, Niemcy | #34175 | 12-kanałowa karta dźwiękowa |
| Ultrasound Gate Player 216H | Avisoft Bioacoustics, Berlin, Niemcy | #70117 | 2-kanałowy odtwarzacz odtwarzania |
| Ultradźwiękowy głośnik elektrostatyczny ESS polaroid | Avisoft Bioacoustics, Berlin, Niemcy | #60103 | 2 głośniki odtwarzające |
| Klatka testowa | As | #PC75J | Wysokość 30 x 8 x 13 cm; separacja plexi z pleksiglasu |
| domowej roboty | - | plexi 4 x 13 cm z otworami 1 cm | |
| Kamera wideo | Logitech | C920 | Kamera internetowa logitech HD Pro C920 |
| Podkładka grzewcza | Promień słoneczny | 722-810-000 | |
| Labirynt Y | Wymiary | wewnętrzne (dł. 30 x szer. 11 x wys. 29 cm): | |
| Pęseta | |||
| Software | |||
| Avisoft Recorder (Software A) | Avisoft Bioacoustics, Berlin, Niemcy | #10101, #10111, #10102, #10112 | http://www.avisoft.com |
| MATLAB R2013a (Oprogramowanie B) | MathWorks | - | MATLAB R2013a (8.1.0.604) |
| Analizator śpiewu myszy v1.3 (oprogramowanie C) | Specjalnie zaprojektowany przez Holy, Guo, Arriaga i Jarvis; Działa z oprogramowaniem B | http://jarvislab.net/wp-content/uploads/2014/12/Mouse_Song_Analyzer_ v1.3-2015-03-23.zip | |
| Microsoft Office Excel 2013 (Oprogramowanie D) | programu | Microsoft-Microsoft | Office Excel |
| v1.1 (Oprogramowanie E) | Specjalnie zaprojektowane przez Chabout & Jarvis. Arkusze kalkulatora Excel, działa z oprogramowaniem D | http://jarvislab.net/wp-content/uploads/2014/12/Song-analysis_Guided.xlsx | |
| Składnia decorder v1.1 (Oprogramowanie F) | Specjalnie zaprojektowane przez Sakar, Chabout, Dunson, Jarvis - w R studio | https://www.rstudio.com/products/rstudio/download/ | |
| Graphiz (Software G) | AT& T Research i inne | http://www.graphviz.org | |
| Avisoft SASLab (Software H) | Avisoft Bioacoustics, Berlin, Niemcy | #10101, #10111, #10102, #10112 | |
| http://www.avisoft.comReodczynniki | |||
| Xylazine (20 mg/mL) | Anased-Ketamine | ||
| HCl (100 mg/mL) | Henry Schein | #045822 | |
| destylowana | |||
| Maść na oczy | Maść weterynaryjna Puralume | NDC 17033-211-38 | |
| Bawełniane końcówki | |||
| szalka |
Bibliografia
- Amato, F. R., Scalera, E., Sarli, C., Moles, A. Pups call, mothers rush: does maternal responsiveness affect the amount of ultrasonic vocalizations in mouse pups. Behav. Genet. 35, 103-112 (2005).
- Panksepp, J. B., et al. Affiliative behavior, ultrasonic communication and social reward are influenced by genetic variation in adolescent mice. PloS ONE. 2, e351(2007).
- Moles, A., Costantini, F., Garbugino, L., Zanettini, C., D'Amato, F. R. Ultrasonic vocalizations emitted during dyadic interactions in female mice: a possible index of sociability. Behav. Brain Res. 182, 223-230 (2007).
- Chabout, J., et al. Adult male mice emit context-specific ultrasonic vocalizations that are modulated by prior isolation or group rearing environment. PloS ONE. 7, e29401(2012).
- Yang, M., Loureiro, D., Kalikhman, D., Crawley, J. N. Male mice emit distinct ultrasonic vocalizations when the female leaves the social interaction arena. Front. Behav. Neurosci. 7, (2013).
- Petric, R., Kalcounis-Rueppell, M. C. Female and male adult brush mice (Peromyscus boylii) use ultrasonic vocalizations in the wild. Behaviour. 150, 1747-1766 (2013).
- Bishop, S. L., Lahvis, G. P. The autism diagnosis in translation: shared affect in children and mouse models of ASD. Autism Res. 4, 317-335 (2011).
- Lahvis, G. P., Alleva, E., Scattoni, M. L. Translating mouse vocalizations: prosody and frequency modulation. Genes Brain & Behav. 10, 4-16 (2011).
- Scattoni, M. L., Gandhy, S. U., Ricceri, L., Crawley, J. N. Unusual repertoire of vocalizations in the BTBR T+tf/J mouse model of autism. PloS ONE. 3, (2008).
- Arriaga, G., Zhou, E. P., Jarvis, E. D. Of mice, birds, and men: the mouse ultrasonic song system has some features similar to humans and song-learning birds. PloS ONE. 7, (2012).
- Holy, T. E., Guo, Z. Ultrasonic songs of male mice. PLoS Biol. 3, 2177-2186 (2005).
- Portfors, C. V. Types and functions of ultrasonic vocalizations in laboratory rats and mice. J. Amer. Assoc. Lab. Anim. Science: JAALAS. 46, 28-28 (2007).
- Wohr, M., Schwarting, R. K. Affective communication in rodents: ultrasonic vocalizations as a tool for research on emotion and motivation. Cell Tissue Res. , 81-97 (2013).
- Pasch, B., George, A. S., Campbell, P., Phelps, S. M. Androgen-dependent male vocal performance influences female preference in Neotropical singing mice. Animal Behav. 82, 177-183 (2011).
- Asaba, A., Hattori, T., Mogi, K., Kikusui, T. Sexual attractiveness of male chemicals and vocalizations in mice. Front. Neurosci. 8, (2014).
- Balaban, E. Bird song syntax: learned intraspecific variation is meaningful. Proc. Natl. Acad. Sci. USA. 85, 3657-3660 (1988).
- Byers, B. E., Kroodsma, D. E. Female mate choice and songbird song repertoires. Animal Behav. 77, 13-22 (2009).
- Hanson, J. L., Hurley, L. M. Female presence and estrous state influence mouse ultrasonic courtship vocalizations. PloS ONE. 7, (2012).
- Pomerantz, S. M., Nunez, A. A., Bean, N. J. Female behavior is affected by male ultrasonic vocalizations in house mice. Physiol. & Behav. 31, 91-96 (1983).
- White, N. R., Prasad, M., Barfield, R. J., Nyby, J. G. 40- and 70-kHz Vocalizations of Mice (Mus musculus) during Copulation. Physiol. & Behav. 63, 467-473 (1998).
- Hammerschmidt, K., Radyushkin, K., Ehrenreich, H., Fischer, J. Female mice respond to male ultrasonic 'songs' with approach behaviour. Biology Letters. 5, 589-592 (2009).
- Ey, E., et al. The Autism ProSAP1/Shank2 mouse model displays quantitative and structural abnormalities in ultrasonic vocalisations. Behav. Brain Res. 256, 677-689 (2013).
- Chabout, J., Sarkar, A., Dunson, D. B., Jarvis, E. D. Male mice song syntax depends on social contexts and influences female preferences. Front. Behav. Neurosci. 9. 76, (2015).
- Hoffmann, F., Musolf, K., Penn, D. J. Freezing urine reduces its efficacy for eliciting ultrasonic vocalizations from male mice. Physiol. & Behav. 96, 602-605 (2009).
- Roullet, F. I., Wohr, M., Crawley, J. N. Female urine-induced male mice ultrasonic vocalizations, but not scent-marking, is modulated by social experience. Behav. Brain Res. 216, 19-28 (2011).
- Barthelemy, M., Gourbal, B. E., Gabrion, C., Petit, G. Influence of the female sexual cycle on BALB/c mouse calling behaviour during mating. Die Naturwissenschaften. 91, 135-138 (2004).
- Byers, S. L., Wiles, M. V., Dunn, S. L., Taft, R. A. Mouse estrous cycle identification tool and images. PloS ONE. 7, (2012).
- Whitten, W. K. Modification of the oestrous cycle of the mouse by external stimuli associated with the male. J. Endocrinol. 13, 399-404 (1956).
- Whitney, G., Coble, J. R., Stockton, M. D., Tilson, E. F. ULTRASONIC EMISSIONS: DO THEY FACILITATE COURTSHIP OF MICE. J. Comp. Physiolog. Psych. 84, 445-452 (1973).
- Asaba, A., et al. Developmental social environment imprints female preference for male song in mice. PloS ONE. 9, 87186(2014).
- Neunuebel, J. P., Taylor, A. L., Arthur, B. J., Egnor, S. E. Female mice ultrasonically interact with males during courtship displays. eLife. 4, (2015).
- Burkett, Z. D., Day, N. F., Penagarikano, O., Geschwind, D. H., White, S. A. VoICE: A semi-automated pipeline for standardizing vocal analysis across models. Scientific Reports. 5, 10237(2015).
- Grimsley, J. M., Gadziola, M. A., Wenstrup, J. J. Automated classification of mouse pup isolation syllables: from cluster analysis to an Excel-based "mouse pup syllable classification calculator". Front. Behav. Neurosci. 6, (2012).
- Grimsley, J. M. S., Monaghan, J. J. M., Wenstrup, J. J. Development of social vocalizations in mice. PloS ONE. 6, (2011).
- Portfors, C. V., Perkel, D. J. The role of ultrasonic vocalizations in mouse communication. Curr. Opin. Neurobiol. 28, 115-120 (2014).
- Merten, S., Hoier, S., Pfeifle, C., Tautz, D. A role for ultrasonic vocalisation in social communication and divergence of natural populations of the house mouse (Mus musculus domesticus). PloS ONE. 9, 97244(2014).
- Neilans, E. G., Holfoth, D. P., Radziwon, K. E., Portfors, C. V., Dent, M. L. Discrimination of ultrasonic vocalizations by CBA/CaJ mice (Mus musculus) is related to spectrotemporal dissimilarity of vocalizations. PloS ONE. 9, 85405(2014).
- Holfoth, D. P., Neilans, E. G., Dent, M. L. Discrimination of partial from whole ultrasonic vocalizations using a go/no-go task in mice. J. Acoust. Soc. Am. 136, 3401(2014).
- Asaba, A., Kato, M., Koshida, N., Kikusui, T. Determining Ultrasonic Vocalization Preferences in Mice using a Two-choice Playback. J Vis Exp. , (2015).
Przedruki i uprawnienia
