Tutaj opisujemy metody preparowania tkanek płodowych i matczynych z ludzkiego łożyska, a następnie izolacji i ekspansji mezenchymalnych komórek macierzystych/zrębowych (MSC) z tych tkanek.
Artykuł metodologiczny
Izolacja i ekspansja mezenchymalnych komórek macierzystych/zrębowych pochodzących z ludzkiej tkanki łożyska
W tym artykule
Podsumowanie
Streszczenie
Mezenchymalne komórki macierzyste/zrębowe (MSC) są obiecującymi kandydatami do zastosowania w terapiach komórkowych. W większości przypadków odpowiedź terapeutyczna wydaje się być zależna od dawki komórkowej. Ludzkie łożysko donoszone jest bogate w MSC i jest fizycznie dużą tkanką, która jest zwykle wyrzucana po urodzeniu. Łożysko jest idealnym materiałem wyjściowym do produkcji na dużą skalę wielokomórkowych dawek allogenicznego MSC. Łożysko jest narządem płodu-matki, z którego można wyizolować tkankę płodową lub matczyną. W tym artykule opisano anatomię łożyska i procedurę rozwarstwiania tkanki decidua (matczynej), kosmków kosmówkowych (płodowych) i płytki kosmówkowej (płodowej). Protokół następnie określa, w jaki sposób wyizolować MSC z każdego wypreparowanego regionu tkanki i zapewnia reprezentatywną analizę rozszerzonego MSC pochodzącego z odpowiednich typów tkanek. Metody te są przeznaczone do przedklinicznej izolacji MSC, ale zostały również przystosowane do klinicznego wytwarzania łożyskowego MSC do stosowania terapeutycznego u ludzi.
Wprowadzenie
Mezenchymalne komórki macierzyste/zrębowe (MSC) stają się obiecującym kandydatem do zastosowania w terapiach komórkowych 1. Wydaje się, że większość aplikacji jest ukierunkowana na naprawę tkanek za pośrednictwem MSC lub regulację immunologiczną 2. W wielu z tych zastosowań allogeniczny MSC może być równie skuteczny jak autologiczny MSC 3. Zastosowanie allogenicznego MSC ma tę zaletę ekonomiczną, że jest kompatybilne z produkcją na dużą skalę wielu dawek komórkowych z jednej tkanki źródłowej 4 w celu leczenia wielu pacjentów.
Historycznie, badania przedkliniczne i kliniczne wykorzystywały MSC pochodzące ze szpiku kostnego 4. Szpik kostny jest zwykle pobierany z grzebienia biodrowego dawcy ochotnika. Proces ten jest inwazyjny i tylko niewielka objętość szpiku (~20 ml) jest pobierana przez pojedyncze nakłucie. Wygenerowanie klinicznie znaczącej liczby MSC wymaga rozległej ekspansji in vitro. Potencja komórek zmniejsza się wraz z pasażem numer 3, tworząc paradoks, w którym teoretyczna liczba komórek wymagana do skuteczności klinicznej jest tym większa, im bardziej rozszerza się populacja komórek. W przeciwieństwie do aspiratów szpiku kostnego, łożysko donoszone jest fizycznie dużą tkanką wyjściową (zwykle 500-750 g 4), którą można pobrać w sposób aseptyczny podczas cesarskiego cięcia bez ryzyka dla dawcy. MSC pochodzące z łożyska mają długotrwałą proliferację 5 i zdolność immunomodulacyjną 6, przewyższając MSC pochodzące ze szpiku kostnego. W poprzednim badaniu wykazaliśmy, że łożysko z pojedynczą terminologią zawierało wystarczającą ilość MSC do wytworzenia do 7 000 dawek klinicznych 4. Te cechy sprawiają, że łożysko jest idealną tkanką źródłową do produkcji allogenicznego MSC.
Łożysko to narząd płodowo-matczyny składający się zarówno z tkanki płodu, jak i matki7, a zatem MSC pochodzenia płodowego lub matczynego może być teoretycznie izolowany. Poniższe piśmiennictwo zawiera szczegółowe informacje na temat rozwoju i patologii, a także badania mikroskopowego i makroskopowego ludzkiego łożyska i przydatków 8,9. Łożysko właściwe składa się głównie z naczyń krwionośnych płodu oraz komórek wydzielniczych i podporowych zwanych trofoblastami, tworzących kosmki kosmówkowe pokryte kosmówką czołową (płytką) 8. Rozgałęzione kosmki łożyskowe są skąpane w matczynej krwi dostarczanej ze spiralnych tętnic macicy, umożliwiając wymianę składników odżywczych, hormonów i gazów między płodem a matką. Łożysko jest zakotwiczone w błonie śluzowej macicy za pośrednictwem matczynych komórek zrębu liściastego, a trofoblasty zewnątrzkosmkowe płodu są przeplatane w macierzy zewnątrzkomórkowej 8. Kosmki zbiegają się na płytce kosmówkowej płodu, gdzie tworzą pępowinę 8.
Wynikiem pierwszych Międzynarodowych Warsztatów na temat Komórek Macierzystych pochodzących z Łożyska (2008) było docenienie potrzeby standaryzacji izolacji i charakterystyki komórek z ludzkiego łożyska 10. Ze względu na anatomię łożyska, rozwarstwienie różnych tkanek, izolacja MSC i przewidywane wyniki hodowli mogą być przytłaczające dla nowicjuszy w tej dziedzinie. W tym protokole pobieranie tkanek kosmówkowych łożyska, a następnie izolacja i ekspansja MSC jest szczegółowo opisane. Charakterystyka MSC za pomocą cytometrii przepływowej i różnicowania in vitro jest uważana za rutynową 5,11-13, a zatem tylko pokrótce opisana tutaj.
Jak podkreślono w niedawnym systematycznym przeglądzie literatury 14, MSC uzyskane z łożyskowych kosmków kosmówkowych są ogólnie uważane za płodowe. Chociaż tylko 18% badań dotyczyło pochodzenia uzyskanego MSC, a spośród nich tylko połowa badań dotyczyła MSC płodu, a druga połowa zgłaszała populacje matczyne lub mieszane MSC. Każdy z trzech opisanych tutaj składników tkankowych (kosmki kosmówkowe, płytka kosmówkowa i decidua basalis) składa się głównie z błony/kosmków płodu i niewielkiej części komórek matczynych pochodzących z macicy, które pozostają przyczepione do dostarczonego łożyska. Przedstawiamy dane wskazujące, że wyizolowanie MSC od matczynej strony łożyska, a nie od strony płodu łożyska, jak wcześniej informowaliśmy 5,11, jest bardziej odpowiednim materiałem wyjściowym, jeśli pożądane jest MSC matki. Protokół ten opisuje również zastosowanie XY FISH do walidacji wkładu płodu lub matki w hodowle komórkowe. Chociaż jest to standardowy protokół producenta, analiza ta jest często zaniedbywana, a jej znaczenie niedoceniane 14.
Protokół
Komisje Etyczne ds. Badań Naukowych na Ludziach w Mater Health Services, Royal Brisbane and Women's Hospital, Queensland University of Technology i University of Queensland zatwierdziły badania i pobieranie próbek ludzkiego łożyska wykorzystanych w badaniu. Wszystkie protokoły były zgodne z krajowymi wytycznymi badawczymi. Pacjenci wyrazili świadomą pisemną zgodę na wykorzystanie tkanek do celów badawczych.
Łożyska w trzecim trymestrze ciąży uzyskano od zdrowych matek po rutynowych porodach przez cesarskie cięcie (CS) w terminie z wyżej wymienionych szpitali w Brisbane w Australii. W tym badaniu wykorzystano niezgodne ciąże męskie w próbkach donoszonych w celu odróżnienia komórek płodu od komórek matczynych. Płeć płodu została określona za pomocą badania ultrasonograficznego przed urodzeniem i/lub oględzin noworodka po urodzeniu przez personel kliniczny. Fluorescencyjna hybrydyzacja in situ chromosomów X i Y (FISH) została wykorzystana do dalszej walidacji płci i pochodzenia płodowego lub matczynego tkanki zachowanej z oryginalnych łożysk.
1. Przed zbiorem przygotuj następujące
Uwaga: Podczas sporządzania roztworów enzymatycznych należy przestrzegać szczegółowych wymagań i stężeń podanych przez producenta dla każdego produktu. Enzymy są często dostarczane jako surowa mieszanka białek, dlatego podobne enzymy różnych firm mogą mieć różne działania/stężenia. Z tego powodu należy zapoznać się z zaleceniami producenta i może być konieczne odpowiednie zmodyfikowanie przygotowania roztworu.
- Przygotuj lub kup od 1,5 do 2 litrów całkowicie sterylnego roztworu soli Hanka (HBSS) dla tego protokołu.
- Przygotować roztwór podstawowy kolagenazy I, odważając kolagenazę typu I i rozpuścić 1 mg/ml w HBSS i delikatnie odwirować, aby zapewnić całkowite rozpuszczenie. Określić objętość HBSS (zawierającą wapń i magnez) potrzebną do doprowadzenia roztworu kolagenazy do 100 jednostek (U)/μl (1000x roztwór podstawowy), a następnie przefiltrować za pomocą filtra strzykawkowego 0,2 μm. Porcję objętości 1 ml rozlać do probówek o pojemności 1,5 ml i przechowywać w temperaturze -20 °C do czasu, gdy będzie potrzebna.
- Przygotować roztwór podstawowy dypazy, rozpuszczając niesterylną mieszaninę dyspazy w stężeniu 10 mg/ml w roztworze soli fizjologicznej buforowanej fosforanami (DPBS) firmy Dulbecco bez wapnia i magnezu. Dalej rozcieńczyć DPBS bez wapnia i magnezu do końcowego stężenia 2,4 U/ml. Filtr sterylizować przez filtr strzykawkowy 0,2 μm. Podaniec objętość 1 ml w probówkach o pojemności 1,5 ml i przechowywać w temperaturze -20 °C do czasu, gdy będzie potrzebna.
- Przygotować roztwór podstawowy dezoksyrybonukleazy (DNazy)-I, rozpuszczając DNazę-I w stężeniu 10 mg/ml w 0,15 M NaCl. Przefiltruj przez filtr strzykawkowy 0,2 μm. Podaniec objętość 1 ml w probówkach o pojemności 1,5 ml i przechowywać w temperaturze -20 °C do czasu, gdy będzie potrzebna.
- Przygotować roboczy roztwór wytrawiający przez połączenie 100 j./ml kolagenazy typu I, I,5 μg/ml DNazy I i 2,4 μg/ml dypazy w DMEM bez surowicy. Świeżo rozmrozić i rozcieńczyć wywary enzymatyczne bezpośrednio przed użyciem. W przybliżeniu wymagany jest stosunek objętości roztworu trawiącego do objętości tkanki wynoszący 1:1 (np. 10 ml tkanki, odmierzonej w probówce o pojemności 50 ml, wymaga 10 ml roztworu wytrawiającego).
- Przygotuj roztwór 4% paraformaldehydu (PFA) w PBS i dostosuj do pH 7,4 15. Przechowywać 25 ml porcji w temperaturze -20 °C przez długi czas lub w temperaturze 4 °C przez 1 tydzień.
- Przygotuj pożywkę hodowlaną MSC z DMEM-Low Glucose (DMEM-LG) uzupełnioną 1x roztworem antybiotykowym i przeciwgrzybiczym oraz 10% nieinaktywowaną termicznie płodową surowicą bydlęcą. FBS klasy MSC można kupić u wielu dostawców FBS.
- Autoklaw sterylizuje sprzęt do preparacji z wyprzedzeniem zgodnie z wytycznymi instytucji. Należą do nich nożyczki, kleszcze, skalpele i duża metalowa taca do sekcji. Zebrać dodatkowe sterylne naczynia z tworzyw sztucznych do hodowli tkankowych i materiały eksploatacyjne (np. ostrza skalpela, probówki o pojemności 50 ml i 15 ml, pipety o pojemności 25 ml, 10 ml i 5 ml oraz kolby do hodowli komórkowycho długości 75 lub 175 cm2).
- Stosować standardowy sprzęt laboratoryjny do pierwotnych hodowli komórkowych: komorę bezpieczeństwa biologicznego klasy II odpowiednią do pierwotnej izolacji komórek, inkubator do hodowli komórkowych ustawiony na 5 % CO2 i temperaturze 37 °C, kołyskę w inkubatorze o temperaturze 37 °C oraz wirówkę o pojemności probówek 50 ml.
- Używaj odpowiedniego sprzętu ochrony osobistej: fartuch laboratoryjny, 2 pary rękawic (przez cały czas), okulary ochronne i obuwie z zakrytymi palcami zgodnie z wytycznymi instytucji.
- Przygotuj z wyprzedzeniem odpowiednie roztwory odkażające dla próbek krwi ludzkiej zgodnie z wytycznymi instytucjonalnymi i pojemnikami na płynne odpady biologiczne.
2. Izolacja łożyska MSC
- Przygotowanie łożyska
- Ubierz się w wymagane środki ochrony osobistej. Ustawić komorę bezpieczeństwa biologicznego z wymaganymi materiałami, roztworami i pojemnikami na odpady w celu przeprowadzenia procedury aż do mineralizacji enzymatycznej (sekcja 2.5.6).
- Uzyskaj łożysko za świadomą zgodą i aprobatą etyczną. Pobrać łożysko przez cesarskie cięcie w aseptycznych warunkach chirurgicznych i zapakować w sterylną torbę lub wiadro do transportu do laboratorium.
- Podczas transportu i przed sekcją łożysko należy przechowywać w temperaturze pokojowej lub 4 °C.
Uwaga: Tkanka może być przechowywana do 6 godzin bez wpływu na wydajność hodowli komórkowych.- Tam, gdzie to możliwe, należy ograniczyć czas między pobraniem łożyska a przetworzeniem tkanki. Zalecenie to opiera się na kwestiach praktycznych. W niektórych przypadkach opóźniliśmy proces izolacji komórek nawet o 6 godzin po urodzeniu. W takich przypadkach łożyska były przechowywane w temperaturze pokojowej lub 4 °C (w laboratorium lub w punkcie pobierania nabrań). Nie zaobserwowano żadnych wykrywalnych różnic, poza ogólną zmiennością dawcy, w MSC uzyskanym z łożysk, gdy były one przechowywane w temperaturze 4 °C lub w temperaturze pokojowej.
- Umieścić pojemnik z łożyskiem w komorze bezpieczeństwa biologicznego. Otwórz pojemnik i przenieś łożysko do sterylnej tacy.
- Otworzyć błony płodowe (worek owodniowy lub laeve owodniowo-kosmówkowe) 8. Orientuj się w częściach łożyska. Po stronie płodu znajduje się pępowina, która na ogół jest centralnie umieszczona w łożysku. Strona matczyna (wyłożona decidua basalis), która jest przeciwna do strony płodu, ma wyraźne liścienie (lub płaty).
- Aby rozpocząć preparację, ułóż łożysko tak, aby pępowina była skierowana do góry w sterylnej tacy.
Uwaga: Protokół ten ma na celu uzyskanie wystarczającej liczby komórek do wysiewu do jednej kolby T175 z każdego z trzech typów tkanek. Każde trawienie rozpoczyna się od około 10 g tkanki. Jest to podobna liczba początkowa kolb, jak w przypadku hodowli MSC rozpoczętych z 20 ml aspiratu szpiku kostnego. Jeśli pożądanych jest więcej komórek, można pobrać więcej tkanki, a protokół można skalować liniowo. Rozmiary tkanki, które mają zostać pobrane, wskazują jedynie na to, co jest praktyczne w przypadku tkanki łożyska. W kosmkach łożyskowych jest kilka cech charakterystycznych, które można wykorzystać jako punkt odniesienia. Wskazane wymiary służą jako szacunkowe, a pępowina służy jako punkt orientacyjny na powierzchni płodu.
- Rozwarstwienie tkanki dziesiętnej (D)
- Odwróć łożysko tak, aby powierzchnia matczyna (decidua basalis) była skierowana do góry. Upewnij się, że strona płodu z punktem wprowadzenia pępowiny jest skierowana w dół.
- Wytnij kawałki o grubości 0,5 cm od matczynej strony łożyska (zawierające tkankę decidua basalis).
- Umieść kawałki tkanek na szalce Petriego zawierającej HBSS podczas sekcji, aby utrzymać nawodnienie fragmentów tkanki.
- Przenieść wystarczającą ilość tkanki do napełnienia probówki do oznaczenia 10 ml w probówce o pojemności 50 ml (jest to około 10 g tkanki).
- Rozwarstwienie tkanki płytki kosmówkowej (CP)
- Mechanicznie usunąć błonę owodniową z płodowej powierzchni łożyska (nie z worka owodniowego), pozostawiając nienaruszony liść kosmówkowy (płytkę kosmówkową).
- Wytnij kawałki o szerokości ~1 cm i głębokości 0,5 cm od płytki kosmówkowej. Zbierz płytkę kosmówkową z obszaru najbliższego pępowinowi, z dala od krawędzi łożyska.
- Umieść kawałki tkanek na szalce Petriego zawierającej HBSS podczas sekcji, aby utrzymać je nawodnione.
- Przenieś wystarczającą ilość tkanki, aby wypełnić probówkę o pojemności 50 ml do oznaczenia 10 ml (~10 g tkanki).
- Rozwarstwienie tkanki kosmówki kosmówkowej (CV)
- Wypreparować tkankę CV ~1 cm o wymiarach2 x 0,5-1 cm głębokości z tkanki łożyska, z której CP został już usunięty. Ponownie zbierz CV z obszaru najbliższego pępowinowi, z dala od krawędzi łożyska. Staraj się zachować co najmniej 1 cm odległości od matczynej strony łożyska (zawierającej tkankę decidua basalis); Celem jest pobranie tkanki z wnętrza tkanki kosmków łożyskowych.
- Umieść kawałki tkanek na szalce Petriego zawierającej HBSS podczas sekcji, aby utrzymać ich nawodnienie.
- Przenieś wystarczającą ilość tkanki, aby wypełnić probówkę o pojemności 50 ml do oznaczenia 10 ml (~10 g tkanki).
- Mielenie i trawienie enzymatyczne tkanek łożyska D, CP i CV
- Ponieważ w trzech różnych probówkach o pojemności 50 ml znajduje się ~10 g tkanek D, CP lub CV, napełnij każdą probówkę około 40 ml HBSS i kilkakrotnie odwróć probówkę w celu umycia tkanki (powtarzaj przez ~10 sekund).
- Zdekantować supernatant i powtórzyć ten etap płukania 2-3 razy, aż roztwór będzie w dużej mierze wolny od krwi. Użyj pipety o pojemności 10 ml lub długiej pęsety, aby upewnić się, że kawałki tkanki nie zostaną utracone z probówki (probówek) podczas dekantacji supernatantu.
- Umieść kawałki tkanki na 10-centymetrowej szalce Petriego przy minimalnym przenoszeniu płynu. Posiekaj/zmiel tkankę na drobne kawałki o grubości około 1-5 mm3 za pomocą nożyczek lub żyletki.
- Przenieść zmielone tkanki z powrotem do odpowiednio oznakowanych (D, CP lub CV) probówek o pojemności 50 ml.
- Dodać świeżo przygotowaną pożywkę trawienną w stosunku co najmniej 1:1 z tkanką (np. 10 ml tkanki plus 10 ml pożywki trawiennej). Załóż nakrętkę na każdą probówkę i odwróć probówki kilka razy, aby wymieszać.
- Inkubować tkanki w probówkach z pożywką trawiącą przez 1-2 godziny w temperaturze 37 °C. Na tym etapie nie jest konieczna nawilżona atmosfera i 5%CO2.
Uwaga: Szybkie wstrząsanie jest wymagane w celu skutecznego oddzielenia komórek od tkanki i maksymalizacji wydajności MSC. Ograniczony plon będzie widoczny w przypadku bardzo małej liczby komórek przyłączonych do kolby hodowlanej po 48 godzinach i czasie pierwszego pasażu dłuższym niż 1-2 tygodnie. Czas inkubacji i metoda wytrząsania zależą od inkubatora o temperaturze 37 °C dostępnego w laboratorium i mogą wymagać optymalizacji.- W przypadku inkubatora z szybkim i kontrolowanym mechanizmem wytrząsania, należy umieścić tkankę i pożywkę trawiącą w probówce o pojemności 50 ml lub sterylnej kolbie stożkowej, umieścić w inkubatorze i ustawić prędkość wytrząsania na 250 obr./min. Spowoduje to pełne strawienie tkanki w ciągu 1 godziny.
- Alternatywnie, w przypadku inkubatora z delikatnym mechanizmem kołysania lub bez mechanizmu kołysania, ręcznie potrząsaj rurką szybko i energicznie ręcznie przez 10 sekund co 30 minut przez 1,5 do 2 godzin. Okres inkubacji enzymów to odpowiedni czas na wyrzucenie odpadów, oczyszczenie szafy bezpieczeństwa biologicznego z niepotrzebnych przedmiotów, zmianę fartucha laboratoryjnego, jeśli jest zabrudzony i przygotowanie się do kolejnej części procedury.
- Pobieranie komórek jednojądrzastych i posiewanie do kolb
Uwaga: Z poprzedniego kroku są trzy probówki o pojemności 50 ml (D, CP lub CV) z kawałkami tkanek trawiących. Kiedy roztwór trawienia tkankowego rozwija mętny wygląd, a w tkance widoczne są białe naczynia krwionośne, trawienie jest zakończone.- Dodać 30 ml pożywki MSC zawierającej FBS do każdej probówki w celu dezaktywacji enzymów zawartych w roztworze wytrawiającym.
- Aby oddzielić komórki jednojądrzaste od dużych, niestrawionych szczątków, należy odwirować pulsacyjnie probówkę o pojemności 50 ml. Na krótko pozwól wirówce osiągnąć 340 x g przez 5 sekund, a następnie zatrzymaj się. Zmusi to duże zanieczyszczenia do osadzania się na dnie probówki, pozostawiając komórki jednojądrzaste w płynnej zawiesinie.
Uwaga: Komórki jednojądrzaste pozostaną w fazie ciekłej, jeśli probówka zostanie tylko krótko (pulsacyjnie) odwirowana. Jeśli wirowanie zostanie przedłużone, komórki jednojądrzaste również osadzą się na dnie probówki z kawałkami tkanki, powodując niepożądaną utratę komórek. - Zebrać supernatant zawierający komórki jednojądrzaste i przenieść go do nowej probówki o pojemności 50 ml za pomocą pipety.
- Dodać 30 ml pożywki lub HBSS do pozostałych resztek tkanki łożyska i energicznie wstrząsnąć. Pozwoli to na zawieszenie pozostałych oderwanych komórek jednojądrzastych i umożliwi ponowne pobranie przypuszczalnego MSC z tkanki.
- Pulsacyjnie odwirować probówkę po raz drugi i ponownie przenieść supernatant do nowej probówki o pojemności 50 ml. Powtórz ten krok po raz trzeci, aby zmaksymalizować wydajność zbierania komórek jednojądrzastych z każdego źródła tkanki.
- Zebrać supernatanty z każdego z poszczególnych typów tkanek w dwóch probówkach o pojemności 50 ml. Daje to w sumie 6 probówek (po 2 probówki z każdego D, CP i CV). Wirować każdą probówkę przez 5 minut przy 340 x g. Ten krok spowoduje osadzenie komórek jednojądrzastych na dnie probówek.
- Ostrożnie zdekantować lub odpipetować supernatant do odpadów. Nie ma potrzeby usuwania każdej kropli supernatantu.
Uwaga: Osad komórkowy będzie kruchy z powodu dużej liczby czerwonych krwinek. Uważaj, aby przypadkowo nie wyrzucić granulatu, jeśli dekantujesz bezpośrednio z probówki o pojemności 50 ml. - Po usunięciu większości supernatantu delikatnie przesunąć probówkę kilka razy palcem, aby usunąć osad komórkowy. Połączyć granulki tak, aby na każdą tkankę D, CP lub CV przypadała pojedyncza probówka i ponownie zawiesić je w 35 ml pożywki MSC.
- Opcjonalnie: Przefiltrować frakcję jednojądrzastą przez sitko o siatkowej siatce 100 μm umieszczone w probówce o pojemności 50 ml w celu usunięcia grudek komórek lub materiału włóknistego.
Uwaga: Należy zachować ostrożność, ponieważ filtry mogą się łatwo zapychać i przepełniać. Dodatkowo pęcherzyki powietrza mogą utrudniać opróżnianie filtrów. W takim przypadku powoli wyjmij filtr z rurki, aby umożliwić przepływ powietrza pod filtrem, przemyj filtr pożywką do hodowli komórkowych lub wymień na nowy filtr. Wydaje się, że wyłączenie etapu filtracji nie wpływa na wydajność ani jakość kolejnych kultur MSC.- Opcjonalnie na tym etapie można przeprowadzić lizę krwinek czerwonych (RBC) lub wirowanie w gradiacji gęstości 15. Jednak z naszego doświadczenia wynika, że erytrocyty nie zakłócają przyłączania się ani proliferacji MSC, a zatem liza RBC nie jest konieczna. Komórki jednojądrzaste można by policzyć na tym etapie, gdyby przeprowadzono usunięcie RBC 15. Chociaż zdecydowana większość komórek na tym etapie nie będzie MSC, ale będą trofoblastami pochodzenia płodowego, komórkami śródbłonka i komórkami krwiotwórczymi, a także komórkami krwiotwórczymi pochodzenia matczynego i komórkami zrębu dziesiętnego.
- Przenieść zawiesinę komórkową dla każdej tkanki D, CP lub CV do pojedynczej kolby T175 i wyhodować w wilgotnym inkubatorze w temperaturze 37 °C i 5% CO2 .
- Ekspansja komórki po izolacji
- Po upływie 48 godzin od początkowej izolacji usunąć pożywkę z każdej z kolb (D, CP i CV) i zastąpić ją 35 ml świeżej pożywki MSC. Zużyte podłoże i oderwane komórki można wyrzucić, ponieważ przypuszcza się, że przypuszczalne MSC są przyłączone do kolby do hodowli tkankowej 16. Kolby należy umieścić z powrotem w inkubatorze na kolejne 24 godziny.
- Po dodatkowych 24 godzinach hodowli przemyć kolby dwukrotnie DPBS (25 ml) w celu usunięcia zanieczyszczeń i erytrocytów. Zamieszać płyn wokół dna kolby, aby usunąć erytrocyty. Użyj pipety, aby usunąć płyn i zanieczyszczenia. Dodać 35 ml pożywki MSC do kolb i umieścić kolby z powrotem w inkubatorze.
- Wymieniaj pożywkę dwa razy w tygodniu i inkubuj kultury, aż monowarstwy komórek zlewają się w 80-90%. Ta początkowa ekspansja trwa od 4 do 14 dni, w zależności od jakości tkanki, ilości materiału wyjściowego oraz wydajności i czasu inkubacji z roztworem trawiącym.
3. Subkultura pMSCs
- Gdy kultury są w 80-90% zlewne, przemyj dwukrotnie 20 ml 1x HBSS lub DPBS i wyrzuć mycie. Dodać substytut trypsyny do każdej kolby (tj. użyć 5 ml dla kolby T175).
- Inkubować kolby przez 5 minut w temperaturze 37 °C w celu uwolnienia MSC z powierzchni hodowli tkankowej. Postukaj w boki kolby co ~2 minuty, aby ułatwić odłączenie.
- Po oderwaniu komórek od powierzchni i umieszczeniu ich w zawiesinie pojedynczej komórki, należy je przemyć z kolby pożywką MSC i zebrać komórki w probówkach. Pożywka MSC rozcieńczy i dezaktywuje substytut trypsyny (użyć ~15 ml pożywki MSC na kolbę T175).
- Przenieść zawartość każdej kolby do hodowli tkankowej do probówki o pojemności 50 ml.
- Odwiruj probówki o masie 340 x g przez 5 minut, aby granulować komórki.
- Odrzucić supernatant i ponownie zawiesić granulki komórek w 1 ml pożywki MSC.
- Rozcieńczyć 10 μl zawiesiny komórek w 10 μl błękitu trypanowego. Policz komórki za pomocą hemocytometru i oblicz całkowitą liczbę komórek 15.
- Przenieść komórki do nowych kolb w ilości 1 150 komórek/cm2 w świeżych pożywkach MSC i inkubować w inkubatorze do hodowli tkankowych. Przy tej gęstości wysiewu wysiewaj 200 000 MSC do każdej nowej kolby T175 w 35 ml pożywki MSC. Odżywiaj komórki dwa razy w tygodniu, aż do 80-90% zlewania się. Wysiewać kolejne pasaże przy 1 150 komórkach/cm2 lub 200 000 MSC do każdej kolby T175.
- Gdy komórki Pasażu 1 (P1) lub P2 zlewają się, należy zakonserwować większość komórek do wykorzystania w przyszłości i ponownie zasadzić tylko jedną kolbę T175 w celu dalszej propagacji i charakteryzacji. Rozmnożone komórki można wykorzystać w P3 lub P4 do testów różnicowania mezodermalnego i charakterystyki komórek za pomocą cytometrii przepływowej.
Uwaga: We wczesnych pasażach może być bardzo mało słabo oddzielonych kolonii, ale lokalne zagęszczenie komórek w każdej kolonii może być bardzo wysokie. Nie jest to idealne rozwiązanie, ponieważ miejscowe gęste upakowanie komórek spowoduje zahamowanie kontaktu, opóźniając wzrost i zmniejszając wydajność hodowli. Zalecamy, aby w przypadku zaobserwowania gęstych kolonii komórki zostały zebrane i ponownie wysiane do nowej kolby. Ten proces redystrybucji zapewnia komórkom miejsce do proliferacji, a ogólna wydajność hodowli ulegnie poprawie. - Aby dokonać kriokonserwacji MSC, należy zebrać ~1 x 10⁶ komórek w 1 ml 90% FCS i 10% dimetylosulfotlenku (DMSO) i zamrozić przy użyciu standardowych protokołów.
Uwaga: W sekcji dotyczącej wyników reprezentatywnych znajdują się opisy charakterystyki MSC za pomocą cytometrii przepływowej, różnicowania mezodermalnego i analizy XY FISH w celu określenia płci trzech różnych (D, CP i CV) rozszerzonych populacji komórek. W naszym badaniu łożyska pochodziły od dzieci płci męskiej; w ten sposób wszystkie komórki płodowe można rozróżnić jako męskie (chromosom Y), a wszystkie komórki matczyne można rozróżnić jako żeńskie (tylko chromosom X).
Wyniki
Procedura izolacji MSC z łożyska została podsumowana na Rysunku 1.Trzy obszary anatomii łożyska, z których izolowano MSC, zostały zaznaczone na Rysunku 2.Są to błona błoniasta matki oraz tkanki w przeważającej mierze płodowe: płytka chorialna i kosmki chorialne. Wiele podręczników, artykułów i zasobów internetowych szczegółowo opisuje rozwój i funkcjonalną rolę poszczególnych tkanek łożyska (patrz odniesienie 8).
Morfologia hodowli 48 h po izolacji i usunięciu resztek tkankowych.
Po 48 h hodowli MSC przywrą do plastiku do hodowli tkankowej, podczas gdy RBC i większość innych resztek komórkowych nie przywrą. W tym momencie należy wymienić pożywkę na 35 ml świeżej pożywki hodowlanej. Przed wymianą pożywki trudno jest dokonać precyzyjnych obserwacji ze względu na dużą liczbę RBC, które utrudniają ocenę wizualną. Wygląd nadsączu hodowli może się znacznie różnić w zależności od dawcy łożyska. Zmienność tę można zaobserwować wizualnie w przykładach 1 i 2 (Rycina 3A). Te dwie izolacje MSC, które wydawały się bardzo różne, zostały przeprowadzone jednocześnie z dwóch różnych łożysk. Jednak po przemyciu obie hodowle wyglądały podobnie (patrz przemyty przykład 3, Rycina 3A).
Pod mikroskopem, po wymianie pożywki po 48 h, do kolby przytwierdzone będą tylko nieliczne komórki (Rysunek 3B), a komórki te będą wyglądać znacznie inaczej niż szerzej ekspandowane MSC. Widoczne będą niektóre szczątki oraz erytrocy w postaci pływających lub przytwierdzonych grudek, co nie będzie zakłócać wzrostu MSC. Dłuższe komórki fibroblastyczne przylegające do dna kolby stanowią prawdopodobnie mieszaninę komórek, w tym MSC, komórek hematopoetycznych, trofoblastycznych lub śródbłonkowe. Ponownie, komórki inne niż MSC nie wpływają negatywnie na kultury MSC, ponieważ komórki te zazwyczaj nie przeżywają więcej niż 1-2 pasaże w warunkach hodowli MSC. Mimo pewnych różnic w początkowym wyglądzie kultur, późniejsze wyniki ekspansji są zazwyczaj spójne.
Morfologia kultur MSC w czasie.
W tym reprezentatywnym przykładzie, siedem dni po izolacji, widoczne były małe fibroblastyczne kolonie MSC, choć można było również dostrzec komórki niebędące MSC w postaci komórek okrągłych lub słabo przylegających (Rycina 4A). Przytwierdzone komórki to te, które pierwotnie określano mianem „fibroblastów tworzących jednostki kolonogenne” (CFU-F). 17 i później nazwane MSC 18Trzynasty dzień po izolacji kolonie MSC o fenotypie fibroblastycznym były duże (Rysunek 4B). Zazwyczaj w tym momencie warstwa pojedyncza osiąga konfluencję na poziomie 80–90% i należy przeprowadzić pasaż komórek. Od drugiego pasażu warstwa pojedyncza MSC łożyska pocznie wykazywać charakterystyczną morfologię przypominającą wiry w momencie osiągnięcia konfluencji (Rycina 4C). Jeśli komórki nie zostaną przesiane przy niskiej gęstości, nie zaobserwuje się już tworzenia CFU-F. Przy niskiej gęstości MSC pochodzące z łożyska mają mniejszy, bardziej kwadratowy wygląd niż MSC pochodzące z szpiku kostnego dorosłych. 1Podczas gdy MSC pochodzące z łożyska i MSC pochodzące z szpiku kostnego wykazują podobne tempo proliferacji, komórki pochodzące z łożyska są mniej podatne na szybkie starzenie. 5.
Charakterystyka łożyskowych MSC in vitro.
Każda namnożona populacja komórek musi zostać poddana charakterystyce, aby upewnić się, że spełnia standardowe kryteria MSC 16, obejmujące (1) przyleganie do tworzywa sztucznego (2) obecność mezenchymalnych markerów powierzchniowych oraz brak hematopoetycznych markerów powierzchniowych oraz (3) zdolność do różnicowania mezodermalnego.
MSC z łożyska wykazują adhezję do tworzyw sztucznych.
Jak pokazano na Rysunku 4, MSC w hodowli wykazują adhezję do tworzyw sztucznych i posiadają morfologię fibroblastopodobną; potwierdza to, że komórki spełniają pierwsze kryterium definiujące MSC 16.
MSC łożyskowe wykazują mezenchymalne markery powierzchniowe.
Drugą definiującą charakterystyką MSC jest obecność mezenchymalnych markerów powierzchniowych oraz brak hematopoetycznych markerów powierzchniowych 16. Ponieważ nie istnieje pojedynczy marker zdolny do jednoznacznej identyfikacji MSC, w celu wyodrębnienia komórek o charakterze mezenchymalnym, a nie hematopoetycznym, zazwyczaj stosuje się panele markerów w połączeniu z analizą cytometrii przepływowej. W przedstawionym tutaj reprezentatywnym zestawie danych (Rycina 5A) oceniono ekspresję komórkową markerów mezenchymalnych CD73, CD105, CD90, CD146 i CD44, markerów hematopoetycznych CD45 i CD34 oraz HLA-DR, a także markera endotelialnego CD31. Wszystkie przeciwciała wykorzystane w procesie charakterystyki MSC łożyskowych są wymienione w Tabeli materiałów/sprzętu. Barwienie przeprowadzono zgodnie z instrukcjami producenta, a metody analizy zostały opisane tutaj 19.
Komórki wykazywały pozytywny wynik w kierunku markerów mezenchymalnych CD73, CD105, CD44 oraz ujemny wynik w kierunku markerów powierzchniowych CD45, CD34, HLA-DR i CD31, co było zgodne z oczekiwaniami 5,20. W naszym reprezentatywnym zbiorze danych około 37% i 57% komórek było pozytywnych odpowiednio dla CD90 i CD146 21. Zarówno CD90, jak i CD146 są powszechnie stosowanymi markerami MSC 21. Profile markerów powierzchniowych MSC mogą się różnić w zależności od źródła tkanki MSC, składu pożywki lub numeru pasażu 22. W naszym wieloletnim doświadczeniu nie zaobserwowaliśmy długoterminowej kontaminacji MSC pochodzących z łożyska komórkami niemezenchymalnymi po 1-2 pasażach 5,11.
MSC łożyskowe wykazują potencjał do różnicowania mezenchymalnego
Z definicji MSC muszą posiadać in vitro zdolność do różnicowania w kierunku mezodermalnym 5,13Potencjał różnicowania w kierunku mezodermalnym jest zazwyczaj oceniany za pomocą testów różnicowania trój- lub dwulinijnego. Testy dwulinijowe oceniają zazwyczaj zdolność do różnicowania osteogenicznego i adipogenicznego, natomiast testy trójlinijne dodatkowo oceniają zdolność do różnicowania chondrogenicznego. Na przedstawionych tutaj reprezentatywnych wynikach pokazujemy, że namnożone populacje MSC tworzą zarówno złogi wapnia, wskazujące na różnicowanie osteogeniczne, jak i wakuole lipidowe, wskazujące na adipogenezę (Rysunek 5B).
W celu charakterystyki opisanych tutaj populacji MSC, komórki wysiano do 24 studzienek hodowlanych w zagęszczeniu 6 x 10⁴ komórek w 1 ml pożywki indukcyjnej. Składniki pożywki wymieniono w Tabeli materiałów/sprzętu. Choć formulacje pożywek indukcyjnych są powszechne w literaturze, w publikacjach występuje znaczna zmienność w ich składzie. Z tego powodu krótko opisujemy tutaj nasze formulacje pożywek indukcyjnych oraz metody barwienia. Pożywka do indukcji osteogennej zawierała DMEM-HG, 10% FBS, 1x roztwór antybiotykowo-antymykotyczny, 10 mM β-glycerol phophate, 100 nM dexamethasone oraz 50 μM L-ascorbic acid 2-phosphate. Pożywka do indukcji adipogennej zawierała DMEM-HG, 10% FBS, 1x roztwór antybiotykowo-antymykotyczny, 10 μg/ml insulin, 100 nM dexamethasone, 200 μM indomethacin oraz 500 μM 3-isobutyl-1-methyl xanthine. Hodowle utrzymywano w inkubatorze w temperaturze 37 °C i 5% CO2 przez 14 dni. Pożywkę indukcyjną wymieniano dwa razy w tygodniu w trakcie okresu hodowli. Po 14 dniach indukcji hodowle charakteryzowano pod kątem obecności macierzy kostnej (osteogeneza) lub wakuol lipidowych (adipogeneza) zgodnie z naszą poprzednią publikacją 5. Analizę odkładania wapniowej macierzy osteogennej przeprowadzono poprzez odessanie pożywki, utrwalenie hodowli w 4% paraformaldehyde przez 20 min, przemycie monowarstwy DPBS, a następnie barwienie Alizarin Red S zgodnie z instrukcjami producenta. Indukcję adipogenną oceniano poprzez odessanie pożywki, utrwalenie hodowli w 4% paraformaldehyde przez 20 min, przemycie monowarstwy i barwienie roztworem Oil Red O zgodnie z instrukcjami producenta. Zabarwione złogi wapnia i wakuole tłuszczowe wizualizowano następnie pod mikroskopem świetlnym, a uzyskane obrazy zapisano do późniejszego wykorzystania.
W poprzednich publikacjach szerzej scharakteryzowaliśmy potencjał różnicowania MSC pochodzących z łożyska 4,5. Osteogeneza MSC pochodzących z łożyska jest podobna do MSC pochodzących z szpiku kostnego, podczas gdy adipogeneza jest zazwyczaj mniej wydajna w przypadku MSC pochodzących z łożyska 5. Z kilku powodów nie przeprowadzamy rutynowo różnicowania chondrogennego, choć zostało to przez nas wcześniej opisane dla placental-MSC 5. Po pierwsze, choć zdolność do różnicowania mezodermalnego jest cechą definiującą MSC, prawdopodobnie ma ona znaczenie wtórne 23-25, zwłaszcza gdy korzyść terapeutyczna prawdopodobnie wynika z wydzielin parakrynnych MSC 26. Po drugie, mimo że Dominici et al. zaproponowali minimalne kryteria dla klinicznej produkcji ludzkich dorosłych MSC pochodzących z szpiku kostnego 16, nowsze badania wskazują, że MSC z różnych nisz mają różne właściwości inherentne i zdolności do różnicowania 5,13,27-32. W rzeczywistości Parolini et al. zasugerowali, że MSC pochodzące z łożyska powinny różnicować się w „jedną lub więcej linii mezodermalnych”, a nie we wszystkie trzy linie 10. Wreszcie, wiele badań nad MSC wyklucza różnicowanie chondrogenne, ponieważ przebiega ono poprzez podobną wewnątrzkomórkową ścieżkę sygnalizacyjną co osteogeneza (ścieżka rodziny TGFβ) 33-35.
Przy zastosowaniu tej metody hodowli MSC łożyskowe mają pochodzenie matczyne, niezależnie od anatomicznej lokalizacji materiału wyjściowego.
W wielu publikacjach przyjmuje się, że komórki izolowane z błony chorionowej płodu po hodowli dają MSC płodowe 14. Jednakże, jak zgłaszaliśmy wcześniej 5, wszystkie hodowle pochodzące z błony chorionowej płodu, prowadzone zgodnie z tym protokołem, szybko ulegają wzbogaceniu w matczyne MSC, co byłoby intuicyjnie oczekiwane w przypadku hodowli matczynych MSC decydualnych. W tych reprezentatywnych wynikach wykorzystaliśmy tkankę łożyskową od noworodków płci męskiej, aby umożliwić łatwe odróżnienie wkładu komórek płodowych i matczynych w namnożonych populacjach komórek. Do tych badań wykorzystaliśmy zestaw XY FISH wymieniony w Tabeli materiałów/sprzętu i postępowaliśmy zgodnie z instrukcjami producenta.
W przedstawionych tutaj reprezentatywnych danych, hodowle pochodzące z błony podstawnej macicy składały się w ~90% z komórek macierzystych (XX) i w ~10% z komórek płodowych (XY) w pasażu 0 (Rycina 6). Do pasażu 2 populacje komórek pochodzące z tkanek macierzystych składały się w ~100% z komórek macierzystych (XX), a komórki płodowe (XY) były niewykrywalne. Sugeruje to, że fizyczna dyssekcja tkanki macierzystej doprowadziła do wzbogacenia kolejnych hodowli w komórki macierzyste. Należy jednak rozważyć wyniki hodowli pochodzących z kosmków błony trofoblastycznej płodu oraz z płytki kosmkowej. W pasażu 0 zarówno hodowle z kosmków błony trofoblastycznej, jak i z płytki kosmkowej składały się w ~85% z komórek XY, czyli pochodzenia płodowego, co wskazuje, że ukierunkowana dyssekcja wzbogaciła materiał w komórki płodowe (Rycina 6). W pasażu 0 obie hodowle zawierały ~15% zanieczyszczeń komórkami macierzystymi (XX). Co zaskakujące, w pasażu 2 obie hodowle płodowe były zasiedlone w ~100% przez komórki macierzyste (XX), a komórki płodowe (XY) nie były już wykrywalne. Analiza FISH dla XY ujawnia, że komórki macierzyste (chromosomy XX) szybko i konsekwentnie przejmują hodowle pochodzące z płodowych tkanek trofoblastycznych. Jest to krytyczna obserwacja dotycząca hodowli, która jest często pomijana 5. Szczegóły tej analizy zostały zawarte w niniejszym protokole, ponieważ demonstrują one bardzo istotną obserwację, wedle której komórki macierzyste szybko zasiedlają wszystkie hodowle, gdy stosowane jest DMEM uzupełnione o 10% FBS bez dodatkowych czynników przeznaczonych do wspierania populacji pochodzenia płodowego.

Rysunek 1: Podsumowanie procedury izolacji MSC z łożyska. (Krok 1Zapoznaj się z anatomią łożyska.Krok 2) Nożyczkami ręcznie wyciąć 10 g tkanki z błony podstawnej, kosmków chorionu lub płytki chorionicznej. (Krok 3) Rozdrobnij wycięte fragmenty decidua, kosmków błonowych lub tkanek blaszki błonowej na drobne kawałki za pomocą nożyczek lub skalpela.
(Krok 4) Uwolnić komórki z drobnych fragmentów poprzez 1-2 godzinne trawienie w dyspazie i kolagenazie I.
(Krok 5) Oddzielić komórki od tkanki włóknistej za pomocą wirowania pulsacyjnego i/lub przemycia ich przez sitko komórkowe. Zebrać i resuspender komórki w medium hodowlanym, a następnie przenieść do kolb hodowlanych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Mezenchymalne komórki macierzyste (MSC) zostaną wyselekcjonowane na podstawie ich zdolności do przylegania do tworzywa sztucznego oraz zdolności do przeżycia i proliferacji w podłożu hodowlanym. Na koniec, w sekcji wyników, namnożone komórki MSC mogą zostać scharakteryzowane i zamrożone do wykorzystania w przyszłych eksperymentach.

Rysunek 2: Anatomia ludzkiego łożyska rozwiniętego oraz tkanki izolowane w tej procedurze. Pierwszą pobieraną tkanką jest macierzysta błona podstawna (decidua). Decidua to tkanka, która pozostaje w postaci cienkiej warstwy na powierzchni łożyska po jego oddzieleniu od ściany macicy (decidua jest oznaczona zielonymi markerami). Drugą tkanką, którą pobiera się z wnętrza łożyska, są płodowe kosmki chorionowe (niebieskie markery). Trzecią pobieraną tkanką jest płodowa płytka chorionowa (czerwone markery) (adaptowano z referencji 36). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 3: Morfologia kultur 48 h po izolacji i usunięciu resztek tkankowych. (A) Wygląd nadnadpływu hodowli może znacznie różnić się między dawcami łożysk przed wypłukaniem resztek. Przykładowe kultury 1 i 2 demonstrują tę zmienność. Te dwie izolacje przeprowadzono jednocześnie, ale z dwóch różnych łożysk. Po wypłukaniu kultury będą wolne od RBC oraz resztek tkankowych, co pokazano w przykładzie 3. Wyniki późniejszej ekspansji są zazwyczaj spójne. (B) Po wymianie pożywki po 48 h do kolby przytwierdzone będzie tylko kilka komórek. Pasek skali = 200 μm. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.

Rysunek 4: Morfologia hodowli MSC w czasie. (A) Siedem dni po izolacji widoczne są małe fibroblastyczne kolonie MSC, choć obecne będą również komórki niebędące MSC w formie komórek okrągłych lub słabo przylegających. (B) 13 dni po izolacji kolonie fibroblastyczne MSC są duże, a monowarstwa MSC jest często konfluenta i gotowa do pasażowania. (C) Od drugiego pasażu i dalej, monowarstwa MSC w stanie konfluencji wykazuje charakterystyczną morfologię przypominającą wiry. Pasek skali = 200 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
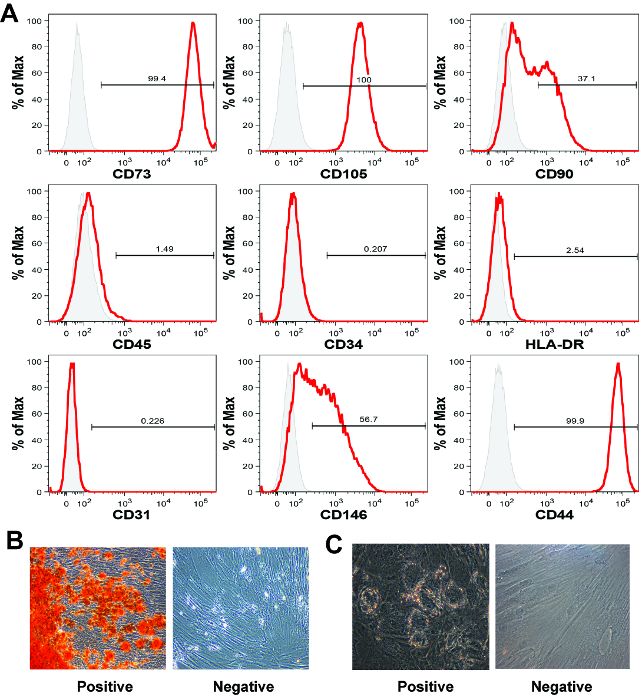
Rycina 5: Charakterystyka MSC za pomocą cytometrii przepływowej oraz różnicowanie mezodermalne. (A) MSC pochodne z kosmków błonowych łożyska wykazują klasyczny profil markerów MSC w analizie cytometrii przepływowej, choć w przypadku tych markerów powierzchniowych ekspresja jest podobna dla wszystkich typów ludzkich MSC. Każdy histogram przedstawia intensywność sygnału (oś x) w stosunku do znormalizowanej liczby komórek na osi y (% of Max). W tym reprezentatywnym zestawie danych komórki były pozytywne dla CD73, CD105 i CD44 oraz negatywne dla markerów hematopoetycznych CD45, CD34 i HLA-DR. (B) MSC łożyskowe zazwyczaj wykazują silne różnicowanie osteogenne, jednak (C) różnicowanie adipogenne może być mniej wydajne niż w przypadku MSC pochodnych z szpiku kostnego. Zdjęcia w podpisach B i C wykonano przy powiększeniu 40X. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
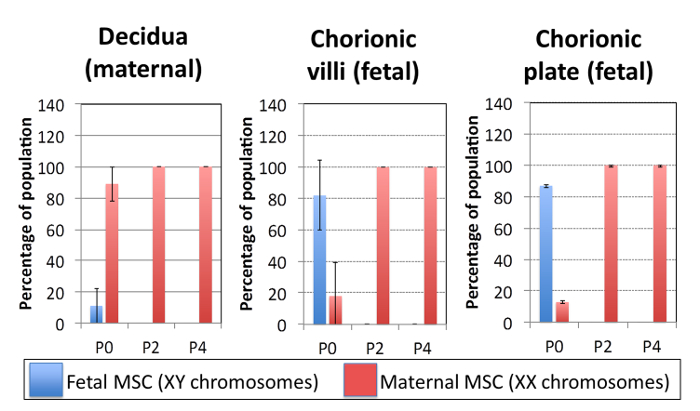
Rycina 6: Przy zastosowaniu tej metody hodowli łożyskowe MSC mają pochodzenie matczyne, niezależnie od anatomicznej lokalizacji materiału wyjściowego.Wykresy przedstawiają ilościowe określenie składu komórek płodowych (męskich, XY) i matczynych (żeńskich, XX) w hodowlach łożyskowych MSC wyizolowanych z tkanek błony podstawnej decyzualnej, kosmków błonowych i płytki kosmkowej przy każdym drugim pasażu. Komórki matczyne (XX) szybko i powtarzalnie dominują w hodowlach pochodzących z płodowych tkanek kosmkowych. Płodowe = męskie = wykryte chromosomy XY w pojedynczej komórce, matczyne = żeńskie = wykryte chromosomy XX w pojedynczej komórce. Przedstawione tutaj dane pochodzą z N = 3 niezależnych łożysk dawców od chłopców, przy minimum 100 komórkach barwionych metodą FISH na XY i przeliczonych dla każdego punktu danych. Słupki reprezentują średnie, a słupki błędów odzwierciedlają jedno odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Łożysko jest fizycznie dużym narządem płodu-matki, z którego można wyizolować płód lub matkę MSC 22. W tym artykule przedstawiliśmy szczegółowy przegląd anatomii łożyska i instrukcje, jak dokładnie wypreparować tkankę decidua (matczyną), kosmówkę kosmówkową (płodową) i płytkę kosmówkową (płodową) (krok 2.2-2.4). Następnie nakreśliliśmy solidny protokół, który umożliwia izolację MSC z każdej z tych trzech tkanek (Krok 2.5-2.6). Ekspansja MSC łożyska jest wydajna, a posiewy wyglądają podobnie do kultur MSC pochodzących ze szpiku kostnego (ryc. 3 i 4). Różnicowanie osteogenne jest wiarygodne (ryc. 5B), podczas gdy różnicowanie adipogenne jest na ogół mniej efektywne (ryc. 5C) 5.
Wielu nowicjuszy w tej dziedzinie zakłada, że posiewy pochodzące z kosmków kosmówkowych płodu lub tkanek płytki kosmówkowej zostaną wzbogacone o MSC płodu. Jednak w naszych rękach wzbogacanie komórek płodowych jest przejściowe tylko wtedy, gdy stosuje się standardowe podłoże ekspandujące MSC, takie jak DMEM-LG + 10% FBS 5. W tym miejscu przedstawiamy reprezentatywne wyniki przy użyciu tkanek łożyska pochodzących od dziecka płci męskiej. Wykorzystując tkankę łożyska od dziecka płci męskiej, komórki płodu można łatwo zidentyfikować jako posiadające chromosomy XY, podczas gdy komórki matczyne można zidentyfikować jako posiadające chromosomy XX. Rysunek 6 przedstawia wyniki XY FISH dla reprezentatywnej hodowli. Podczas gdy płodowe MSC (XY) są wzbogacone (do 80%) w początkowych hodowlach pochodzących z płodowych kosmków kosmówkowych lub tkanek płytki kosmówkowej, te same kultury są szybko wyprzedzane (~100%) przez matczyne (XX) MSC w ciągu pierwszych dwóch pasaży. W standardowej pożywce, składającej się z DMEM-LG + 10% FBS, kilka MSC pochodzących od matki, które zanieczyszczają tkanki płodu, konkuruje z komórkami pochodzącymi od płodu w hodowli.
Kluczowym krokiem nakreślonym w tym protokole jest docenienie anatomii łożyska i miejsca, z którego można najskuteczniej pobrać tkanki płodowe i matczyne. Jak opisano w sekcji dotyczącej reprezentatywnych wyników, rozwarstwienie tkanki płodu umożliwia przejściowe wzbogacenie MSC pochodzącego z płodu. Ulepszenia w formułowaniu pożywek ekspandujących, poprzez suplementację specyficznymi pożywkami egzogennych czynników wzrostu, powinny pozwolić na selektywną ekspansję populacji MSC pochodzących od płodu i wytwarzanie produktu komórkowego, który jest wzbogacony o komórki płodu, a nie matki (nasza grupa opracowuje obecnie takie preparaty pożywki). Wytwarzanie płodowych populacji MSC może mieć wiele zalet, ponieważ uważa się, że płodowe MSC mają większe właściwości angiogenezę i immunosupresję niż równoważne populacje MSC matki 37.
W każdym z opisanych protokołów izolacji użyliśmy około 10 g tkanki. Całe łożysko waży zwykle 500-750 g, a w poprzednich pracach wykazaliśmy, że dzięki zautomatyzowanemu trawieniu tkanek i procesom bioreaktora do ekspansji komórek, powinno być możliwe wyprodukowanie ponad 7000 klinicznych dawek komórek z jednego łożyska 4. Liczby te podkreślają potencjalną przydatność MSC pochodzącego z łożyska w allogenicznych terapiach MSC oraz znaczenie tej metody niezależnie od pochodzenia MSC (płodowego lub matczynego). Z terapeutycznego punktu widzenia niezwykle ważne jest, aby użytkownicy mieli pełne zrozumienie produktu komórkowego i zdolność do niezawodnego wytwarzania tego produktu komórkowego. Mamy nadzieję, że nasz film pomoże naukowcom zrozumieć anatomię łożyska, wyizolować MSC z łożyska i przewidzieć prawdopodobny skład komórek płodu lub matki w ich hodowlach.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
RP był wspierany przez National Health and Medical Research Council (NHMRC) Postdoctoral Training Fellowship. VS był wspierany przez stypendium University of Queensland International Postgraduate Student. MRD było wspierane przez NHMRC i Inner Wheel Australia.
Dziękujemy personelowi klinicznemu i pielęgniarskiemu za pomoc w wyrażeniu zgody pacjenta i pobraniu próbek. Dziękujemy prof. Nickolas Fisk, prof. Kerry Atkinson i dr Rohanowi Lourie za wnikliwe dyskusje na temat położnictwa, rozwoju płodu i łożyska oraz anatomii łożyska.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Reodczynniki | |||
| HBSS | Gibco/Invitrogen | 14185-052 | Długa nazwa: Hanks Zrównoważony roztwór soli |
| FBS | Gibco/Invitrogen | Długa nazwa: Substytut trypsyny w surowicy bydlęcej płodu | |
| Gibco/Invitrogen | 12563-029 | Długa nazwa: TrypLE Select | |
| DMEM-LG | Gibco/Invitrogen | 11885-092 | Długa nazwa: Dulbecco' s Modified Eagles Medium-Low Glucose |
| DMEM-HG | Gibco/Invitrogen | 11965118 | Długa nazwa: Dulbecco' s Zmodyfikowana glukoza Eagles Medium-HIgh (4,5 g/L) |
| PBS (bez Mg+Ca+) | Gibco/Invitrogen | 14190-250 | Długa nazwa: Dulbecco's Sól fizjologiczna buforowana fosforanem, bez magnezu i wapnia |
| Anti-anti-anti-Gibco | /Invitrogen | 15240-062 | Długa nazwa: roztwór antybiotykowo-przeciwgrzybiczy x100 |
| proszek paraformaldehydu lub 4% roztwór | dowolny | ||
| Collagenase I | Invitrogen | 17100-017 | 2 500 U/ml |
| Dnaza I | Sigma | D5025 | 10 mg/ml w 0,15 M NaCl |
| Dispase | Invitrogen | 17105-041 | 10 mg/ml w wodzie (20 000 U/ml). |
| Materiał< / mocny> | Firma | Numer katalogowy | Komentarze |
| Jednorazowe: | |||
| 50 ml probówki wirówkowe | Falcon lub dowolnej marki | ||
| , szalki Petriego, sterylne placyki (średnica 25 cm i 10 cm) | Nunc | ||
| Sitka do komórek (100 μ m) | Becton Dickinson | 352340 | |
| 175 i 75 cm2 (T175 i T75) kolby do hodowli tkankowych | Nunc | ||
| 5 ml, 10 ml, 25 ml sterylne pipety serolgiczne | dowolnej marki | ||
| Materiał<< | silny>silny>Firma | Numer katalogowy | Uwagi |
| < mocny>Sprzęt:< / mocny> | |||
| Wirówka | |||
| Inkubator do hodowli tkankowych 37 & Deg; C, 5% CO2 | |||
| Szafa | |||
| Sterylne nożyczki i pęsety | |||
| Stojaki na probówki | |||
| Pipetery typu Gilson lub równoważne | |||
| sterylnymi końcówkami 1 000 i mikro; l, 200 i mikro; l, 20 &mikro;l. | |||
| inkubator kołyszący lub wstrząsający (37 & C) | |||
| ochrony | |||
| roztwory czyszczące (odpowiednie do krwi), | |||
| pojemniki na odpady, odpowiednie pojemniki na tkanki/krew | |||
| odczynniki do charakterystyki MSC | |||
| przeciwciało (identyfikator klonu) | Producent | Nr katalogowy | Isotype |
| CD73 (AD2) | Miltenyi Biotec | 130-095-183 | Mysz IgG1 |
| CD105 (43A4E1) | Miltenyi Biotec | 130-094-941 | Mysz IgG1 |
| CD90/Thy-1 (AC122) | Miltenyi Biotec | 130-095-403 | Mysz IgG1 |
| CD45 (5B1) | Miltenyi Biotec | 130-080-202 | Mysz IgG2a |
| CD34 (AC136) | Miltenyi Biotec | 130-090-954 | Mysz IgG2a |
| HLA-DR (AC122) | Miltenyi Biotec | 130-095-298 | Mysz IgG2a |
| CD31 (PECAM-1) | BD Pharmingen | 555446 | Mysz IgG1 |
| CD146 (541-10B2) | Miltenyi Biotec | 130-092-849 | Mysz IgG1 |
| CD44 (DB105) | Miltenyi Biotec | 130-095-180 | Mysz IgG1 |
| Isotype Controls (Clone ID) | Producent | Nr katalogowy | |
| Izotyp myszy IgG1 (IS5-21F5) | Miltenyi Biotec | 130-092-214 | |
| Izotyp myszy IgG1 (IS5-21F5) | Miltenyi Biotec | 130-092-212 | |
| Izotyp myszy IgG1 (IS5-21F5) | Miltenyi Biotec | 130-092-213 | |
| Mysz IgG2a (S43.10) | Miltenyi Biotec | 130-091-837 | |
| Mysz IgG2a (S43.10) | Miltenyi Biotec | 130-098-849 | |
| Bufor MACS | Miltenyi Biotec | 130-091-221 | |
| Różnicowanie osteogenne | Producent | Numer katalogowy | |
| DMEM-HG | Gibco/Invitrogen | 11965118 | Długa nazwa: Dulbecco' s Modified Eagles Medium-HIgh Glucose (4,5 g / L) |
| FBS | Gibco/Invitrogen | Długa nazwa: Płodowa surowica bydlęca | |
| Anti-anti-anti-Gibco | /Invitrogen | 15240-062 | Długa nazwa: roztwór antybiotykowo-przeciwgrzybiczy x100 |
| Deksametazon | Sigma | D4902 | |
| β-Glycerol Phophate | Sigma | 50020 | |
| Kwas L-askorbinowy 2-fosforan | Sigma | A8960-5G | |
| Alizarin Red S | Sigma | A5533-25G | Do barwienia matrycy wapniowej |
| Dyferencjacja adipogeniczna | Producent | Nr katalogowy | |
| DMEM-HG | Gibco/Invitrogen | 11965118 | Długie imię: Dulbecco' s Modified Eagles Medium-HIgh Glucose (4,5 g / L) |
| FBS | Gibco/Invitrogen | Długa nazwa: Płodowa surowica bydlęca | |
| Anti-anti-anti-Gibco | /Invitrogen | 15240-062 | Długa nazwa: roztwór antybiotykowo-przeciwgrzybiczy x100 |
| insulina | Sigma | I2643 | |
| Deksametazon | Sigma | D4902 | |
| Indometacyna | Sigma | I7378 | |
| 3-izobutylo-1-metyloksantyna | Sigma | I5879 | |
| Olej Czerwony roztwór O | Sigma | O1391-250ML | Do barwienia wakuoli lipidowej |
| XY FISH do określania płodowego lub matczynego pochodzenia komórek | |||
| XY chomosomu zestaw FISH | Vysis (Abbott Molecular) | 07J20-050 | Długa nazwa: X SpectrumOrange/Y SpectrumGreen Zestaw sondy fluorescencyjnej DNA znakowanej bezpośrednio |
Bibliografia
- Brooke, G., et al. Therapeutic applications of mesenchymal stromal cells. Semin Cell dev Biol. 18, 846-858 (2007).
- Wei, X., et al. Mesenchymal stem cells: a new trend for cell therapy. Acta Phamacol Sin. 34, 747-754 (2013).
- Ma, S., et al. Immunobiology of mesenchymal stem cells. Cell Death Differ. 21, 216-225 (2014).
- Timmins, N. E., et al. Closed system isolation and scalable expansion of human placental mesenchymal stem cells. Biotechnol Bioeng. 109, 1817-1826 (2012).
- Barlow, S., et al. Comparison of human placenta- and bone marrow-derived multipotent mesenchymal stem cells. Stem Cell Dev. 17, 1095-1107 (2008).
- Jones, B. J., Brooke, G., Atkinson, K., McTaggart, S. J. Immunosuppression by placental indoleamine 2,3-dioxygenase: a role for mesenchymal stem cells. Placenta. 28, 1174-1181 (2007).
- Parolini, O., et al. Toward cell therapy using placenta-derived cells: disease mechanisms, cell biology, preclinical studies, and regulatory aspects at the round table. Stem Cell Dev. 19, 143-154 (2010).
- Benirschke, K., Burton, G. J., Baergen, R. N. Pathology of the Human Placenta. , 6 edn (2012).
- Moore, K., Persaud, T., Torchia, M. The developing human: clinically oriented embryology. , Elsevier/ Saunders. (2013).
- Parolini, O., et al. Concise review: isolation and characterization of cells from human term placenta: outcome of the first international Workshop on Placenta Derived Stem Cells. Stem cells. 26, 300-311 (2008).
- Brooke, G., et al. Manufacturing of human placenta-derived mesenchymal stem cells for clinical trials. Brit J Haematol. 144, 571-579 (2009).
- Pelekanos, R. A., et al. Intracellular trafficking and endocytosis of CXCR4 in fetal mesenchymal stem/stromal cells. BMC cell biology. 15, 15(2014).
- Chen, Y. S., et al. Small molecule mesengenic induction of human induced pluripotent stem cells to generate mesenchymal stem/stromal cells. Stem Cells Transl Med. 1, 83-95 (2012).
- Heazlewood, C. F., et al. High incidence of contaminating maternal cell overgrowth in human placental mesenchymal stem/stromal cell cultures: a systematic review. Stem Cells Transl Med. 3, 1305-1311 (2014).
- Horn, P., Bork, S., Wagner, W. Standardized isolation of human mesenchymal stromal cells with red blood cell lysis. Methods Mol Biol. 698, 23-35 (2011).
- Dominici, M., et al. Minimal criteria for defining multipotent mesenchymal stromal cells. The International Society for Cellular Therapy position statement. Cytotherapy. 8, 315-317 (2006).
- Friedenstein, A. J., et al. Precursors for fibroblasts in different populations of hematopoietic cells as detected by the in vitro colony assay method. Exp Hematol. 2, 83-92 (1974).
- Caplan, A. I. Mesenchymal stem cells. J Orthop Res. 9, 641-650 (1991).
- Futrega, K., et al. The microwell-mesh: A novel device and protocol for the high throughput manufacturing of cartilage microtissues. Biomaterials. 62, 1-12 (2015).
- Liu, Y., Goldberg, A. J., Dennis, J. E., Gronowicz, G. A., Kuhn, L. T. One-step derivation of mesenchymal stem cell (MSC)-like cells from human pluripotent stem cells on a fibrillar collagen coating. PloS one. 7, 33225(2012).
- Maleki, M., Ghanbarvand, F., Reza Behvarz, M., Ejtemaei, M., Ghadirkhomi, E. Comparison of mesenchymal stem cell markers in multiple human adult stem cells. Int J Stem Cell. 7, 118-126 (2014).
- Hass, R., Kasper, C., Bohm, S., Jacobs, R. Different populations and sources of human mesenchymal stem cells (MSC): A comparison of adult and neonatal tissue-derived MSC. Cell Commun Signal. 9, 12(2011).
- Bianco, P., Robey, P. G., Simmons, P. J. Mesenchymal stem cells: revisiting history, concepts, and assays. Cell stem cell. 2, 313-319 (2008).
- Bianco, P., et al. The meaning, the sense and the significance: translating the science of mesenchymal stem cells into medicine. Nature med. 19, 35-42 (2013).
- Da Silva Meirelles, L., Caplan, A. I., Nardi, N. B. In search of the in vivo identity of mesenchymal stem cells. Stem cells. 26, 2287-2299 (2008).
- Caplan, A. I., Correa, D. The MSC: an injury drugstore. Cell Stem Cell. 9, 11-15 (2011).
- Wegmeyer, H., et al. Mesenchymal Stromal Cell Characteristics Vary Depending on Their Origin. Stem Cell Dev. , (2013).
- Guillot, P. V., Gotherstrom, C., Chan, J., Kurata, H., Fisk, N. M. Human first-trimester fetal MSC express pluripotency markers and grow faster and have longer telomeres than adult MSC. Stem cells. 25, 646-654 (2007).
- Covas, D. T., et al. Multipotent mesenchymal stromal cells obtained from diverse human tissues share functional properties and gene-expression profile with CD146+ perivascular cells and fibroblasts. Exp Hemol. 36, 642-654 (2008).
- Crisan, M., et al. A perivascular origin for mesenchymal stem cells in multiple human organs. Cell stem cell. 3, 301-313 (2008).
- Pelekanos, R. A., et al. Comprehensive transcriptome and immunophenotype analysis of renal and cardiac MSC-like populations supports strong congruence with bone marrow MSC despite maintenance of distinct identities. Stem cell res. 8, 58-73 (2012).
- da Silva Meirelles, L., Chagastelles, P. C., Nardi, N. B. Mesenchymal stem cells reside in virtually all post-natal organs and tissues. J Cell Sci. 119, 2204-2213 (2006).
- James, A. W. Review of Signaling Pathways Governing MSC Osteogenic and Adipogenic Differentiation. Scientifica (Cairo). 2013, 684736(2013).
- Xu, C., et al. Cross-Talking between PPAR and WNT Signaling and Its Regulation in Mesenchymal Stem Cell Differentiation. Curr Stem Cell Res Ther. , (2015).
- Zhuang, H., et al. Molecular Mechanisms of PPAR-gamma Governing MSC Osteogenic and Adipogenic Differentiation. Curr Stem Cell Res Ther. , (2015).
- Moore, K., Persaud, T., Torchia, M. Before We Are Born: Essentials of Embryology and Birth Defects. , Elsevier Health Sciences. 8 edn (2011).
- Zhu, Y., et al. Placental mesenchymal stem cells of fetal and maternal origins demonstrate different therapeutic potentials. Stem Cell Res Ther. 5, 48(2014).
Przedruki i uprawnienia
