Tutaj wyjaśniamy protokół modelowania mikrośrodowiska biofizycznego, w którym sieciowanie i zwiększona sztywność błony podstawnej (BM) indukowana przez zaawansowane produkty końcowe glikacji (AGE) ma patologiczne znaczenie.
Artykuł metodologiczny
Jak badać sztywność błony podstawnej jako biofizyczny wyzwalacz w raku prostaty i innych patologiach związanych z wiekiem lub chorobach metabolicznych
W tym artykule
Podsumowanie
Streszczenie
Tutaj opisujemy protokół, który może być wykorzystany do badania mikrośrodowiska biofizycznego związanego ze zwiększoną grubością i sztywnością błony podstawnej (BM) podczas patologii związanych z wiekiem i zaburzeń metabolicznych (np. rak, cukrzyca, choroby mikronaczyniowe, retinopatia, nefropatia i neuropatia). Założeniem modelu jest nieenzymatyczne sieciowanie odtworzonej matrycy BM (rBM) poprzez traktowanie aldehydem glikolowym (GLA) w celu promowania wytwarzania zaawansowanych produktów końcowych glikacji (AGE) w reakcji Maillarda. Przedstawiono przykłady technik laboratoryjnych, które można wykorzystać do potwierdzenia generowania AGE, nieenzymatycznego sieciowania i zwiększonej sztywności w rBM poddanych działaniu GLA. Obejmują one przygotowanie natywnego rBM (traktowanego solą fizjologiczną buforowaną fosforanami, PBS) i sztywnego rBM (traktowanego GLA) w celu oznaczenia: zawartości jego AGE za pomocą analizy fotometrycznej i mikroskopii immunofluorescencyjnej, jego nieenzymatycznego sieciowania za pomocą elektroforezy w żelu poliakryloamidowym dodecylosiarczanu sodu (SDS PAGE) oraz mikroskopii konfokalnej oraz jego zwiększonej sztywności za pomocą reometrii. Opisana tutaj procedura może być stosowana do zwiększenia sztywności (modułów sprężystości, E) rBM do 3,2 razy, zgodnie z pomiarami wykonanymi w zdrowej i chorej tkance gruczołu krokowego człowieka. Aby odtworzyć biofizyczne mikrośrodowisko związane ze starzeniem się i chorą gruczołem krokowym, wprowadzono trzy typy komórek gruczołu krokowego do natywnego rBM i sztywnego rBM: RWPE-1, komórki nabłonka prostaty (PEC) pochodzące z normalnego gruczołu krokowego; BPH-1, PEC pochodzące z gruczołu krokowego dotkniętego łagodnym przerostem gruczołu krokowego (BPH); i PC3, komórki przerzutowe pochodzące z wtórnego guza kości wywodzącego się z raka prostaty. Można mierzyć wiele parametrów, w tym wielkość, kształt i charakterystykę inwazyjną gruczołów 3D utworzonych przez RWPE-1 i BPH-1 na natywnym i sztywnym rBM oraz średnią długość komórki, prędkość migracji i trwałość ruchu komórek sferoid 3D utworzonych przez komórki PC3 w tych samych warunkach. Można również ocenić komórkowe szlaki sygnałowe i subkomórkową lokalizację białek.
Wprowadzenie
Błona podstawna (BM) to arkusz wyspecjalizowanej macierzy zewnątrzkomórkowej (ECM), która utrzymuje stabilne granice tkanek poprzez oddzielanie warstw komórek nabłonkowych od zrębu1. Sieciowanie kowalencyjne między sąsiednimi potrójnymi helisami kolagenu IV w BM stabilizuje ich boczne powiązanie poprzez ustanowienie nieregularnej sieci super skręconych helis2. Te kolagenowe sieci dożylne działają jak rusztowanie dla jego interakcji z lamininą i innymi składnikami BM1. Układ strukturalny BM zapewnia mu wytrzymałość mechaniczną i sztywność niezbędną do prawidłowego rozwoju nabłonka gruczołowego3.
Podczas starzenia się i choroby BM stopniowo gęstnieje i sztywnieje3,4. Na przykład 3-krotny wzrost modułu sprężystości (E) BM oka występuje między 50 a 80 rokiem życia w normalnej populacji, a usztywnienie to nasila się w zaburzeniach metabolicznych, takich jak cukrzyca5. Zmiany strukturalne i biomechaniczne w BM, które powodują jego zwiększoną sztywność, zachodzą, gdy jego składniki ECM, kolagen IV i laminina, stają się nieenzymatycznie usieciowane po ekspozycji na zaawansowane produkty końcowe glikacji (AGE).
Celem opisanej tutaj metody było stworzenie modelu do badania, w jaki sposób sztywność BM, spowodowana ekspozycją na AGE, sprzyja inwazyjności komórek nabłonka prostaty (PEC) i komórek nowotworu prostaty (PTC) w kontekście przejścia na raka prostaty z przerzutami (PCa). Aby to zrobić, poprzednia metoda stosowana do generowania 3D gruczołowych acini z komórek nabłonka sutka (MEC) w odtworzonych żelach rBM6 została dostosowana do dodatkowego etapu, w którym żele rBM są wstępnie traktowane aldehydem glikolowym (GLA). Opisano kilka technik oceny sieciowania i usztywnienia indukowanego GLA wstępnie poddanych obróbce żeli rBM, w tym analizę fotometryczną, elektroforezę w żelu poliakrylamidowym dodecylosiarczanu sodu (SDS PAGE), mikroskopię konfokalną i analizę reometryczną. Typy komórek gruczołu krokowego wybrane do hodowli na wstępnie usztywnionym rBM obejmują: RWPE-1, PEC pochodzące z normalnego gruczołu krokowego7; BPH-1, PEC pochodzące z gruczołu krokowego dotkniętego BPH8; i PC3, przerzutowe PTC pochodzące z guza wtórnego zlokalizowanego w kości kręgowej pacjenta z rakiem prostaty (PCa)9.
Oprócz postępu w badaniach nad patologią gruczołów krokowych, protokół usztywniania żeli rBM poprzez ich leczenie GLA może być dostosowany do zbadania, w jaki sposób sztywność BM przyczynia się do innych patologii związanych z wiekiem i zaburzeń metabolicznych. Na przykład, model może być bezpośrednio zastosowany do zbadania, w jaki sposób rak z przerzutami jest wywoływany przez sztywność BM w narządach takich jak piersi, okrężnica, jajnik i trzustka poprzez włączenie odpowiednich typów komórek. Co więcej, protokół może zostać dostosowany do zbadania, w jaki sposób sztywny BM sprzyja biomechanicznym mechanizmom progresji choroby w chorobach mikronaczyniowych związanych z cukrzycą, retinopatii, nefropatii i neuropatii.
Protokół
1. Indukcja sztywności BM wywołana przez leczenie GLA (sieciowanie nieenzymatyczne)
- Rozmrozić zamrożoną fiolkę z matrycą BM (10 ml) przez inkubację w temperaturze 4 °C (na lodzie w chłodni lub lodówce) aż zawartość fiolki stanie się płynna (8-16 godzin).
Ostrzeżenie: Jeśli chłodnia/lodówka nie jest używana, przykryj całą butelkę lodem. Zapobiegnie to krzepnięciu roztworu podstawowego BM. - Do przyszłych doświadczeń i w celu uniknięcia powtarzających się cykli zamrażania i rozmrażania należy przygotować 25 porcji po 0,4 ml z każdej nowej 10 ml fiolki z matrycą BM. Fiolki należy przechowywać w temperaturze -80 °C do upływu terminu ważności wskazanego przez producenta. W razie potrzeby rozmrażać fiolki w temperaturze 4 °C, odstawiając je na lodzie przez 2 godziny.
- Przygotuj równą powierzchnię lodu. Umieścić szkiełko z 8 dołkami na wierzchu lodu, aby utrzymać temperaturę 4 °C podczas procedury powlekania. Rozmrozić fiolkę z matrycą BM w temperaturze 4 °C.
Uwaga: Jedna fiolka o pojemności 0,4 ml z matrycą BM wystarcza do pokrycia całego szkiełka z 1 x 8-dołkową komorą. Podczas obchodzenia się z fiolką należy przechowywać przykrytą lodem, aby zapobiec zestaleniu się matrycy BM. - Odetnij nożyczkami końcówkę dozującą końcówki pipety o pojemności 200 μl. Schłodzić tępo zakończoną końcówkę pipety o pojemności 200 μl do temperatury 4 °C i umieścić ją w przyrządzie pipetującym o pojemności 200 μl. Pobrać 40 μl zimnego roztworu matrycy BM do końcówki pipety i przenieść go do studzienki na schłodzonym szkiełku podstawowym z 8-dołkową komorą.
Uwaga: 40 μl roztworu BM wystarcza na pokrycie powierzchni 0,8cm2. Podczas powlekania końcówki pipet należy przechowywać w chłodnym miejscu, aby uniknąć zestalenia roztworu BM. Nie wprowadzaj pęcherzyków powietrza do roztworu matrycy BM i upewnij się, że studzienka jest równomiernie pokryta bez tworzenia się widocznego menisku na krawędziach. - Powtórz krok 1.4 w zależności od wymaganej liczby studzienek i komór.
- Po powlekaniu umieścić szkiełko 8-dołkowe w temperaturze 37 °C na 30 minut, aby przyspieszyć polimeryzację BM. Bardzo ostrożnie zamknąć drzwi inkubatora, aby uniknąć niepożądanych zakłóceń płynnego rBM. Nie należy przekraczać 30-minutowego czasu inkubacji, aby uniknąć odwodnienia żelu rBM.
Uwaga: Otrzymany żel jest natywnym rozpuszczonym BM (rBM). Etap inkubacji w temperaturze 37 °C nie wymaga 5 % emisji CO2 . Jednak dla wygody należy wykonać ten krok w inkubatorze do hodowli tkankowych ustawionym na temperaturę 37 °C i 5 % CO2 (z nawilżaniem). - Przygotować 50 mM aldehydu glikolowego (GLA) rozcieńczonego w 0,2 M buforze fosforanowym (pH 7,8). Wysterylizuj roztwór, przepuszczając go przez filtr strzykawkowy o wielkości 0,22 mikrona za pomocą strzykawki o pojemności 50 ml.
- W przypadku reakcji sieciowania w końcowej objętości 250 μl 50 mM GLA należy dodać 25 μl 0,5 M cyjanoborowodorku sodu lub 2,5 M aminoguanidyny do 125 μl 100 mM GLA (2x podstawa) i 100 μl 0,2 M buforu fosforanowego (pH 7,8). Wysterylizować roztwory podstawowe, przepuszczając je przez filtr strzykawkowy o wielkości 0,22 mikrona za pomocą strzykawki o pojemności 50 ml.
Ostrzeżenie: Podczas pracy pod wyciągiem należy obchodzić się z cyjanoborowodorkiem sodu w fartuchu laboratoryjnym, rękawicach, osłonie twarzy i respiratorze.
- W przypadku reakcji sieciowania w końcowej objętości 250 μl 50 mM GLA należy dodać 25 μl 0,5 M cyjanoborowodorku sodu lub 2,5 M aminoguanidyny do 125 μl 100 mM GLA (2x podstawa) i 100 μl 0,2 M buforu fosforanowego (pH 7,8). Wysterylizować roztwory podstawowe, przepuszczając je przez filtr strzykawkowy o wielkości 0,22 mikrona za pomocą strzykawki o pojemności 50 ml.
- Dodać 250 μl roztworu GLA w celu przykrycia spolimeryzowanego żelu rBM i inkubować w temperaturze 37 °C przez 6 godzin w celu uzyskania półsztywnego żelu rBM lub 14 godzin w celu uzyskania sztywnego żelu rBM.
Uwaga: Objętość dodanego GLA musi pokrywać spolimeryzowany żel rBM i powinna być odpowiednio dostosowana. Jeżeli stosuje się różne czasy inkubacji GLA, żele rBM powinny być analizowane w celu określenia zwiększenia sztywności rBM (patrz krok 2.4).- Przygotować kontrolę ujemną, inkubując natywny żel rBM w 250 μl sterylnego roztworu soli fizjologicznej buforowanej fosforanami (PBS) przez 14 godzin w temperaturze 37 °C.
- Przygotować dwie dodatkowe kontrole, w których tworzenie zasady Schiffa lub przegrupowanie adduktu Amadoriego podczas reakcji sieciowania jest zahamowane przez dodanie 50 mM cyjanoborowodorku sodu lub 250 mM aminoguanidyny.
- Przygotować 1 M ester etylowy glicyny (GEE) rozcieńczony w PBS. Wysterylizuj roztwór, przepuszczając go przez filtr strzykawkowy o wielkości 0,22 mikrona za pomocą strzykawki o pojemności 50 ml.
- Po wskazanym czasie inkubacji ostrożnie usunąć roztwór GLA z usieciowanych żeli rBM, roztwór GLA zawierający inhibitory z kontrolnych żeli rBM oraz PBS z kontrolnych natywnych żeli rBM. Dodać 250 μl roztworu GEE do wszystkich żeli rBM i inkubować w temperaturze 37 °C przez 1 godz.
Uwaga: Ten krok wygasza reakcję sieciowania. - Umyj wszystkie żele rBM 10 razy w 500 μl PBS, aby usunąć wszelkie ślady GLA i GEE. Żele rBM należy inkubować przez noc w temperaturze 37 °C w 400 μl PBS, aby zapobiec ich odwodnieniu.
- Przeanalizuj żele rBM pod kątem akumulacji AGE, nieenzymatycznego sieciowania i właściwości lepkosprężystych (kroki 2.1-2.4). Do analizy reometrycznej ich właściwości lepkosprężystych należy przygotować żele rBM w pierścieniach klonujących (krok 2.4).
- W przypadku hodowli komórkowej przed wysiewem komórek należy przepłukać żele rBM 2 razy pożywką hodowlaną o objętości 500 μl (kroki 5 i 6). Mycie należy wykonywać delikatnie, tak aby końcówka pipety nie dotykała powierzchni żelu.
2. Kwantyfikacja sieciowania nieenzymatycznego i sztywności rBM poddanego działaniu GLA
- Analiza fotometryczna
- Zmierz akumulację AGE w żelach poddanych działaniu GLA i kontroluj rBM za pomocą analizy fotometrycznej w celu określenia zakresu reakcji Maillarda.
- Po kroku 1.11 usunąć PBS z żeli rBM w 8-dołkowych szkiełkach komorowych i dodać 250 μl lodowatej wody podwójnie destylowanej. Inkubować w temperaturze 4 °C przez 16-24 godziny, aby upewnić się, że matryca jest całkowicie upłynniona.
Uwaga: peptydy rBM w tym roztworze zawierają AGE o właściwościach autofluorescencyjnych. - Przenieść skroplony roztwór BM do probówki o pojemności 1,5 ml i zmierzyć emisję fluorescencyjną roztworu za pomocą spektrofotometru (długość fali wzbudzenia = 370 nm; długość fali emisji = 440 nm).
- Po kroku 1.11 usunąć PBS z żeli rBM w 8-dołkowych szkiełkach komorowych i dodać 250 μl lodowatej wody podwójnie destylowanej. Inkubować w temperaturze 4 °C przez 16-24 godziny, aby upewnić się, że matryca jest całkowicie upłynniona.
- Zmierz akumulację AGE w żelach poddanych działaniu GLA i kontroluj rBM za pomocą analizy fotometrycznej w celu określenia zakresu reakcji Maillarda.
- SDS-PAGE Analiza peptydów bromku cyjanu
- Rozpuścić żele rBM poddane działaniu GLA i kontrolne na żelu poliakrylamidowym, aby potwierdzić, że GLA indukował sieciowanie i tworzenie makrowłókien.
- Odwirować skroplony roztwór BM zebrany w kroku 2.1.1.2 przy 10 000 x g przez 5 minut w temperaturze pokojowej.
- Przygotować roztwór podstawowy zawierający 2 g/ml bromku cyjanu rozcieńczonego w acetonitrylu.
Ostrzeżenie: Z bromkiem cyjanogenu należy zawsze obchodzić się pod wyciągiem, nosząc fartuch laboratoryjny, rękawice, osłonę twarzy i respirator. - Usunąć supernatant, zawiesić ponownie osad żelu BM w 500 μl 20 mg/ml bromku cyjanu + 70 % v/v kwasu mrówkowego i inkubować przez noc w temperaturze pokojowej.
- Za pomocą jednorazowej strzykawki o pojemności 1 ml przenieść zawieszone granulki żelu BM do kasety dializacyjnej o masie cząsteczkowej odciętej 3,5 kDa.
- Zanurz kasetę w szklanej zlewce o pojemności 500 ml zawierającej 500 ml podwójnie destylowanej wody i mieszadło magnetyczne. Umieścić go na mieszadle magnetycznym i dializować przez noc (16 godzin) w temperaturze 4 °C (w chłodnym pomieszczeniu), aby usunąć wszelkie ślady bromku cyjanu i kwasu mrówkowego.
- Za pomocą jednorazowej strzykawki o pojemności 1 ml przenieś dializowany roztwór BM z kasety do probówki o pojemności 1,5 ml.
- Poddać analizie 25 μl każdej próbki BM w żelu poliakrylamidowym12% v/v 10,11. Podążając za SDS-PAGE, przeprowadzić barwienie srebrem żelu poliakrylowoamidowego12, aby uwidocznić wzór elektroforetyczny peptydów bromku cyjanu13.
- Rozpuścić żele rBM poddane działaniu GLA i kontrolne na żelu poliakrylamidowym, aby potwierdzić, że GLA indukował sieciowanie i tworzenie makrowłókien.
- Analiza mikroskopii immunofluorescencyjnej
- Przeprowadzić barwienie immunofluorescencyjne żeli traktowanych GLA i kontrolnych rBM za pomocą przeciwciał anty-AGE/pentozydyny, anty-kolagenu IV i anty-lamininy, a następnie mikroskopii konfokalnej w celu wizualizacji nagromadzonych AGE i rearanżacji strukturalnych włókien kolagenu IV/lamininy w usieciowanych żelach rBM13,
Uwaga: Podczas inkubacji i płukania należy zawsze używać wystarczającej objętości, aby pokryć cały żel rBM bez dotykania powierzchni rBM końcówką pipety. Szczegółowe informacje na temat analizy 3D kultur acini za pomocą immunofluorescencji znajdują się w odnośniku6, a w przypadku mikroskopii konfokalnej 3D acini patrz odniesienie14.- Przemyć żele rBM poddane działaniu GLA i kontrolujące w 8-dołkowych szkiełkach komorowych 2 razy za pomocą 300 μl PBS+ (PBS zawierający 0,1 mM CaCl2 i 0,5 mM MgCl2) przez 5 minut w temperaturze pokojowej.
- Usunąć PBS+, a następnie dodać 300 μl 4% w/v paraformaldehydu (PFA) rozcieńczonego w PBS+, aby pokryć każdy żel rBM. Inkubować przez 30 minut w temperaturze pokojowej w celu utrwalenia składników rBM.
- Usunąć 4 % roztwór PFA z w/v. Dodać dodać 300 μl 75 mM roztworu NH4Cl + 0,5 mM MgCl2 i inkubować przez 5 minut w temperaturze pokojowej (powtórzyć 5 razy), aby schłodzić utrwalenie.
- Przygotować bufor immunofluorescencyjny (bufor IF), sporządzając następujący roztwór w sterylnej wodzie: 130 mM NaCl, 7 mM Na2HPO4, 3,5 mM NaH2PO4, 7,7 mM NaN3, 0,1% w/v albuminy surowicy bydlęcej, 0,5% v/v eteru tert-oktylofenylowego glikolu polietylenowego i 0,05% v/v monolaurynianu sorbitolu glikolu polietylenowego.
- Przygotować bufor blokujący IF, uzupełniając bufor IF 20 % v/v koziej surowicy.
- Usunąć roztwór hartowniczy i dodać 300 μl buforu blokującego IF do żeli rBM, aby zapobiec reakcjom niespecyficznym. Inkubuj 2 godziny w temperaturze pokojowej na platformie wytrząsającej.
- Usunąć bufor blokujący IF i inkubować żele rBM przez 16 godzin w temperaturze 4 °C z 300 μl pierwszorzędowego przeciwciała rozcieńczonego w buforze blokującym IF (1: 500 mysich przeciwciał anty-pentozydynowych; 1/250 króliczych anty-kolagenowych IV pAb; 1/250 króliczych anty-lamininy A/C pAb).
Uwaga: Inkubacja trwająca dłużej niż 20 godzin w temperaturze 4 °C może spowodować upłynnienie rBM. - Usunąć przeciwciało pierwszorzędowe i przemyć 3 razy (po 10 minut) 300 μl buforu IF w temperaturze pokojowej na platformie wytrząsającej.
- Usunąć bufor IF i dodać 300 μl przeciwciała drugorzędowego (koziego przeciwciała anty-króliczego lub anty-mysiego IgG [H+L]) sprzężonego z fluorochromem rozcieńczonym w stosunku 1:500 w buforze blokującym IF. Inkubować przez 2 godziny w temperaturze pokojowej na platformie wytrząsającej.
- Usunąć przeciwciało drugorzędowe i inkubować w 300 μl buforu IF przez 10 minut w temperaturze pokojowej. Usunąć bufor IF i przemyć 3 x 10 min w 300 μl PBS+ w temperaturze pokojowej.
- Napraw i schładzaj po raz drugi, jak opisano powyżej (kroki 2.3.1.2 i 2.3.1.3).
- Zamontuj barwione żele rBM w podłożu montażowym i przeanalizuj tworzenie się gęstych wiązek głównych składników za pomocą mikroskopii epifluorescencyjnej lub konfokalnej.
Uwaga: Szczegółowe informacje na temat analizy 3D kultur acini za pomocą immunofluorescencji znajdują się w odnośniku6, a w przypadku mikroskopii epifluorescencyjnej i konfokalnej 3D acini patrz odniesienie14.
- Przeprowadzić barwienie immunofluorescencyjne żeli traktowanych GLA i kontrolnych rBM za pomocą przeciwciał anty-AGE/pentozydyny, anty-kolagenu IV i anty-lamininy, a następnie mikroskopii konfokalnej w celu wizualizacji nagromadzonych AGE i rearanżacji strukturalnych włókien kolagenu IV/lamininy w usieciowanych żelach rBM13,
- Analiza reologiczna
- Wykonaj analizę reometryczną żeli traktowanych GLA i kontroluj żele rBM w celu zmierzenia ich lepkosprężystości (sztywności).
- Żele rBM o grubości 1 mm ułożyć w okrągłej formie o średnicy 8 mm. W tym celu należy umieścić pierścień klonujący (o średnicy 8 mm) w studzience 24-dołkowej płytki hodowlanej i dodać roztwór matrycy BM przygotowany zgodnie z opisem w krokach 1.3-1.6.
Uwaga: W celu dokładnego podsumowania żeli rBM używanych do eksperymentów, żele rBM przygotowane do analizy reometrycznej muszą mieć taką samą powierzchnię i grubość, jak żele rBM ustawione w komorach 8-dołkowych. Żele rBM analizowane na rysunku 3 miały grubość 1 mm i średnicę 8 mm. - Żele rBM ustawione w pierścieniach klonowania należy traktować PBS, GLA przez 6 godzin i GLA przez 14 godzin, jak opisano powyżej (kroki od 1.8 do 1.11).
- Zmierzyć moduł sprężystości (E) żeli rBM o średnicy 8 mm na reometrze o geometrii ząbkowanej płytki równoległej 8 mm, w zakresie odkształcenia 1-3%, przy oscylacji o stałej częstotliwości 1 Hz i temperaturze 21 °C. Dodatkowe informacje na temat analizy reometrycznej żeli ECM można znaleźć w piśmiennictwie, patrz odniesienie13,15,16.
Uwaga: E wyznacza się na podstawie wynikowego modułu magazynowania przy ścinaniu (G') za pomocą następującego równania E = 2 * G' * (1 + v), gdzie v jest współczynnikiem Poissona wynoszącym 0,5, jak opisano w odniesieniu13,15,16.
- Żele rBM o grubości 1 mm ułożyć w okrągłej formie o średnicy 8 mm. W tym celu należy umieścić pierścień klonujący (o średnicy 8 mm) w studzience 24-dołkowej płytki hodowlanej i dodać roztwór matrycy BM przygotowany zgodnie z opisem w krokach 1.3-1.6.
- Wykonaj analizę reometryczną żeli traktowanych GLA i kontroluj żele rBM w celu zmierzenia ich lepkosprężystości (sztywności).
3. Hodowla i obchodzenie się z normalną linią PEC, RWPE-1
- Hoduj komórki RWPE-1 w pożywce wolnej od surowicy keratynocytów (KSFM) uzupełnionej 5 ng/ml naskórkowego czynnika wzrostu (EGF), 50 μg/ml ekstraktu z przysadki bydlęcej (BPE) i 50 μg/ml penicyliny z 50 μg/ml streptomycyny (kompletny KSFM).
Uwaga: Aby uniknąć indukcji przejścia z nabłonka do mezenchymalnego (EMT), nie należy wystawiać komórek RWPE-1 na działanie surowicy. Pozwól, aby cały KSFM osiągnął RT przez 30 minut po wyjęciu z magazynu w temperaturze 4 °C i nie podgrzewaj w łaźni wodnej o temperaturze 37 °C, ponieważ spowoduje to dezaktywację EGF i BPE. - Odessać cały KSFM ze zlewającej się 10 cm2 płytki komórek RWPE-1, przepłukać 5 ml wstępnie podgrzanego PBS i dodać 5 ml 0,05% v/v trypsyny, upewniając się, że wszystkie komórki są pokryte roztworem.
- Umieścić komórki w inkubatorze do hodowli tkankowych ustawionym w standardowych warunkach 37 °C i 5% CO2 (z nawilżaniem) na 5 do 10 minut. Sprawdź stopień trypsynizacji po 5 minutach i delikatnie postukaj w płytkę hodowlaną, aby oderwać komórki.
Uwaga: Komórki RWPE-1 nie tolerują długich okresów trypsynizacji, dlatego zaleca się, aby nie dotykać więcej niż dwóch płytek jednocześnie. Ważne jest również, aby oddzielić wszystkie komórki od płytki, aby uniknąć selekcji klonalnej.
- Umieścić komórki w inkubatorze do hodowli tkankowych ustawionym w standardowych warunkach 37 °C i 5% CO2 (z nawilżaniem) na 5 do 10 minut. Sprawdź stopień trypsynizacji po 5 minutach i delikatnie postukaj w płytkę hodowlaną, aby oderwać komórki.
- Gdy wszystkie komórki RWPE-1 odłączą się, dodać 5 ml ciepłego PBS zawierającego 2 % v/v płodowej surowicy cielęcej (FCS) w celu ugaszenia trypsyny. Delikatnie pipetuj w górę i w dół, aby rozbić agregaty komórek przed przeniesieniem komórek do probówki wirówkowej.
- Odwirować oddzielone komórki w temperaturze 125-150 x g przez 5 minut w temperaturze 25 °C, odrzucić supernatant i ponownie zawiesić osad komórek w 5 ml pełnego KSFM aż do uzyskania zawiesiny pojedynczych komórek.
- Przenieść 1 ml ponownie zawieszonych komórek do nowej probówki i dodać 9 ml kompletnego KSFM w celu rozmnożenia komórek w rozcieńczeniu pasażowym 1:5 do późniejszego użycia doświadczalnego. Policz pozostałe komórki za pomocą hemocytometru w celu ustawienia acini (patrz sekcja 5.1).
Uwaga: Nie hoduj komórek RWPE-1 przez więcej niż 10 pasaży, ponieważ po dłuższych okresach hodowli nie tworzą one acini o prawidłowej architekturze. - Zmieniaj pożywki hodowlane co 48 godzin, aby upewnić się, że EGF i BPE pozostają aktywne.
Uwaga: Uwzględnij tę zmianę podłoża w przypadku wszelkich zabiegów, które trwają dłużej niż 48 godzin.
4. Hodowla i obchodzenie się z linią komórkową BPH, BPH-1
- Hodowla komórek BPH-1 w pożywce RPMI 1640 uzupełniona 5 % v/v FCS, 50 U/ml penicyliny i 50 μg/ml streptomycyny. Przed użyciem podgrzać pożywkę hodowlaną, PBS i 0,25% w/v roztwór trypsyny-0,53 M EDTA do temperatury 37 °C.
Uwaga: Komórki można również hodować w pożywkach o stężeniu 2,5 % v/v FCS8. - Odessać pożywkę hodowlaną z konfluentnej 10cm2 płytki komórek BPH-1 i przemyć komórki 2 x 3 ml PBS w celu usunięcia wszystkich śladów pożywki hodowlanej surowicą, która może wygasić reakcję trypsyny.
- Odessać PBS i dodać 3 ml roztworu trypsyny-EDTA, aby pokryć komórki. Umieścić płytkę w inkubatorze nastawionym na 37 °C i 5% CO2 (z nawilżaniem) na 5 minut. Usuń roztwór trypsyny-EDTA, gdy komórki są okrągłe, ale pozostają przymocowane do naczynia. Umyj komórki 5 ml PBS.
- Po usunięciu PBS dodać 5 ml pożywki hodowlanej i delikatnie pipetować w górę i w dół, aby uzyskać zawiesinę pojedynczych komórek. Przenieść komórki do probówki o pojemności 15 ml.
- Pobrać 2 ml zawiesiny komórek do nowej probówki wirówkowej z 8 ml kompletnej pożywki i umieścić komórki BPH-1 na 10 cm2 płytce hodowlanej w rozcieńczeniu 1:5 w celu późniejszego użycia doświadczalnego. Policz pozostałe komórki za pomocą hemocytometru w celu ustawienia acini (patrz sekcja 5.2).
Uwaga: Zachowaj numer przejścia, ponieważ starsze komórki BPH-1 nie tworzą acini o odpowiedniej architekturze. Fragment o numerze większym niż 10 nie jest pożądany. - Zmieniaj pożywkę co 72 godziny.
5. 3D Kultura gruczołu krokowego Acini na rodzimym i sztywnym rBM
- Jeśli do tworzenia aciny używane są komórki RWPE-1, należy rozcieńczyć 5 000 komórek przygotowanych w kroku 3.5 w 300 μl kompletnego KSFM uzupełnionego 2 % v/v roztworu BM.
- Jeśli komórki BPH-1 są używane do tworzenia acini, rozcieńczyć 2 500 komórek przygotowanych w kroku 4.5 w 300 μl pożywki hodowlanej RPMI 1640 uzupełnionej 2 % v/v roztworu BM.
Uwaga: Komórki BPH-1 są większe niż komórki RWPE-1, dlatego stosuje się mniejszą liczbę komórek BPH-1, aby uzyskać podobny rozkład acini po 6 dniach hodowli. - Delikatnie wysiewaj komórki na natywnym i usztywnionym przez AGE rBM i ostrożnie umieść kultury w inkubatorze ustawionym na 37 °C i 5% CO2 (z nawilżaniem), aby zapewnić równomierne rozprowadzenie rosnących acini w studzience i że każda komórka dzieli się, aby wytworzyć jedną acina.
- Co 2 dni należy zastąpić pożywkę hodowlaną świeżą pożywką zawierającą 2 % roztwór BM v/v, aby upewnić się, że komórki mają czynniki wzrostu wymagane do prawidłowej homeostazy acina.
- Monitorowanie morfologii ziarniastej w rosnących kulturach za pomocą mikroskopii jasnego pola13.
Uwaga: Po 3 dniach w hodowli pojedyncze komórki utworzą skupisko >3 komórek, a po 1 tygodniu zaobserwuje się acini gruczołu krokowego o średnicy ~50 μm. - Postępuj zgodnie z protokołem opisanym w 2.3, aby przeprowadzić immunofluorescencję przy użyciu przeciwciał specyficznych dla markerów adhezji macierzy komórkowej, adhezji komórka-komórka, polarności apiko-podstawowej i inwazyjności13.
- Użyć podłoża montażowego z 4',6-diamidyno-2-fenyloindolem (DAPI) lub dołączyć dodatkowy etap (po 2.3.12) do barwienia jąder komórkowych przez inkubację z DAPI przez 5 minut i przemywać 2 x 5 minut PBS+.
6. 3D Hodowla agregatów komórek nowotworowych prostaty na natywnym i sztywnym rBM
- Hodowla komórek PC3 w pożywce RPMI 1640 zawierającej 10 % v/v FCS i 50 U/ml penicyliny z 50 μg/ml streptomycyny. Przed użyciem podgrzać pożywkę hodowlaną, PBS i 0,25% w/v roztwór trypsyny-0,53 M EDTA do temperatury 37 °C.
- Odessać pożywkę hodowlaną z naczyń hodowlanych o długości 10cm2 komórek PC3 i umyć komórki 2x 3 ml PBS, aby usunąć wszelkie ślady FCS, które mogą wygasić reakcję trypsyny.
- Odessać PBS i dodać 3 ml roztworu trypsyny-EDTA, aby przykryć komórki i inkubować przez 1 minutę.
- Gdy komórki staną się zaokrąglone, ale pozostaną przyczepione do naczynia, ostrożnie odessać roztwór trypsyny-EDTA i przemyć 3 ml PBS, aby usunąć wszelkie ślady trypsyny.
- Po usunięciu PBS dodać 5 ml pożywki hodowlanej i delikatnie pipetować w górę i w dół, aby uzyskać zawiesinę pojedynczych komórek. Przenieść komórki do probówki o pojemności 15 ml.
- Pobrać 1 ml zawiesiny komórek PC3 do nowej probówki wirówkowej i dodać 9 ml pożywki hodowlanej. Umieścić komórki na naczyniu hodowlanym o średnicy 10cm2 (rozcieńczenie 1:10) w celu późniejszego użycia doświadczalnego. Policz pozostałe komórki za pomocą hemocytometru.
- Rozcieńczyć 2 500 komórek PC3 przygotowanych w kroku 6.6 w 300 μl pożywki hodowlanej RPMI 1640 uzupełnionej 2 % v/v roztworu BM, aby umożliwić utworzenie gradientowego żelu w hodowli.
- Delikatnie wysiewaj komórki na natywnym i usztywnionym przez AGE rBM i ostrożnie umieść kulturę w inkubatorze ustawionym na 37 °C i 5% CO2 (z nawilżaniem), aby zapewnić równomierne rozprowadzenie rosnących sferoid w studzience.
- Zmieniaj pożywkę co 72 godziny.
- Aby zbadać wpływ sztywnego (bogatego w AGE) rBM na migrację komórek nowotworu prostaty, zobrazuj komórki PC3 za pomocą mikroskopii poklatkowej wideo w jasnym polu przy użyciu kontroli temperatury/CO2 i wilgotnej komory17,
Uwaga: Komórki PC3 rosną w pasmach na natywnym rBM i nie tworzą acini ze światłem, ale jeśli pozostawi się je do wzrostu dłużej niż 72 godziny na natywnym rBM, utworzą sferoidy 3D. - Po pobraniu danych ręcznie śledź komórki PC3 i oblicz ich prędkość migracji, kształt (współczynnik wydłużenia) i trwałość migracji17-19,
Uwaga: Trwałość = stosunek D/T, D = odległość od początku do końca trajektorii komórki, T = całkowita długość trajektorii komórki.
Wyniki
Kultury 3D acini prostaty na sztywnym rBM
Po 6 dniach hodowli, PEC wywodzące się z prawidłowej tkanki prostaty (RWPE-1) (Ryc. 1A) oraz tkanki BPH (BPH-1) (Ryc. 1B) tworzą na natywnym (traktowanym PBS) rBM acini, które są zorganizowane w jednorodne sferoidy komórek nabłonkowych. Acini te wykazują również cechy wysoce zorganizowanych PEC z polaryzacją od strony apikalnej do bazalnej oraz widoczną przestrzenią luminalną13,20.
Acini utworzone przez PEC pochodzące z prawidłowej tkanki prostaty (RWPE-1) (Ryc. 1A) oraz tkanki BPH (BPH-1) (Ryc. 1B) na usztywnionym (bogatym w AGE) rBM (poddanym działaniu GLA) wykazują zaburzoną architekturę (zmiana kształtu z sferoidalnego na wielokątny oraz protruzja/migracja komórek z acini do rBM bogatego w AGE) (Ryc. 1A). Acini te charakteryzują się również silnie zdezorganizowanymi PEC, które utraciły polarność od wierzchołkową do podstawnej, z niewielką lub nieistniejącą przestrzenią luminalną13.
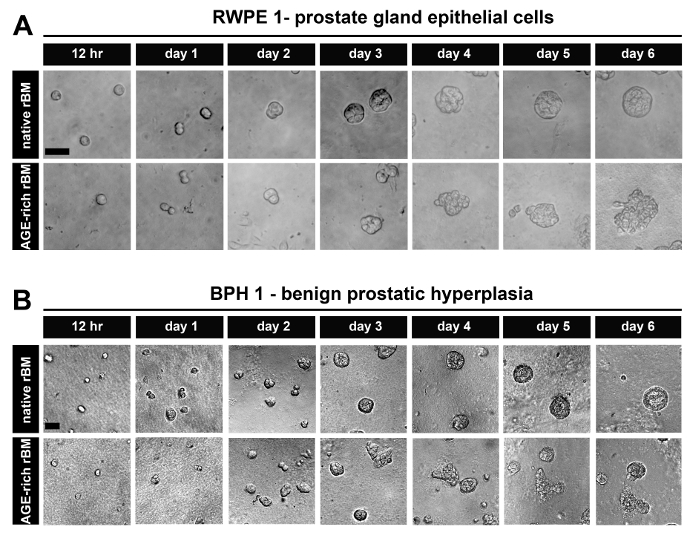
Rysunek 1: Komórki nabłonka prostaty hodowane jako 3D gruczołowe acini na natywnej i sztywnej zrekonstytuowanej błonie podstawnej (rBM). (A) Obrazy w jasnym polu komórek RWPE-1 hodowanych od 12 h do 6 dni na żelach rBM traktowanych PBS (natywna) lub 50 mM glikolaldehydem przez 14 h (bogata w AGE; sztywna); pasek skali = 50 µm. (B) Komórki BPH-1, hodowane zgodnie z opisem w panelu A; paski skali = 50 µm; dane są reprezentatywne dla 3 niezależnych eksperymentów. Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
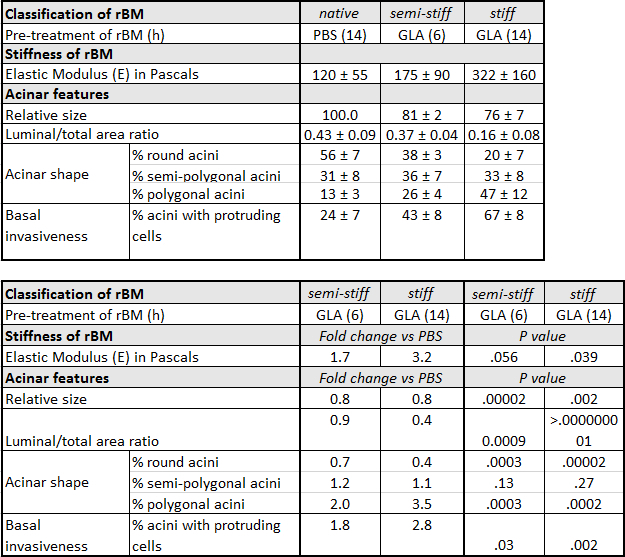
Tabela 1: Charakterystyka cewek acynarnych nabłonka prostaty RWPE-1 hodowanych na naturalnej, półsztywnej i sztywnej zrekonstytuowanej błonie podstawnej (rBM). Cewki acynarne RWPE-1 hodowano na rBM poddanych wstępnej obróbce w PBS przez 14 h (naturalna), glikolaldehydem (GLA) przez 6 h (półsztywna) lub GLA przez 14 h (sztywna). W przypadku kształtu cewek obliczono odsetek (%) ± odchylenie standardowe (SD) cewek okrągłych, półpoligonalnych i poligonalnych na podstawie 5 niezależnych eksperymentów (ilościowo określono 50 cewek na warunek). Względną wielkość cewek obliczono (naturalna rBM = 100 %) na podstawie 3 niezależnych eksperymentów. W celu oceny inwazyjności obliczono % ± SD cewek z jedną lub więcej komórkami prototypującymi na podstawie 3 niezależnych eksperymentów. Krotność zmiany (fold change) obliczono, dzieląc średnią wartość uzyskaną w warunkach półsztywnych lub sztywnych przez odpowiednią wartość dla warunków naturalnych. Wartości p obliczono za pomocą testu t Student'a (α = 0.05).
Zależny od wieku wzrost sztywności rBM promuje migrację komórek raka prostaty PC3
Komórki PC3 hodowane na natywnej rBM migrują, utrzymując ciągły kontakt międzykomórkowy, podczas gdy komórki PC3 hodowane na rBM bogatej w AGE (sztywnej) poruszają się niezależnie od siebie (Rysunek 2A). Po 72 h hodowli komórki PC3 tworzą ogniska (sferoidy) na natywnej rBM (traktowanej PBS), natomiast komórki PC3 na sztywnej (bogatej w AGE) rBM nie tworzą sferoidów i migrują niezależnie (Rysunek 2B). Komórki PC3 na sztywnej (bogatej w AGE) rBM są bardziej wydłużone niż komórki PC3 hodowane na natywnej rBM (Rysunek 2C). Komórki PC3 na sztywnej rBM migrują szybciej niż komórki PC3 hodowane na natywnej rBM (Rysunek 2D). Komórki PC3 na sztywnej rBM wykazują zmniejszoną uporczywość ruchu w porównaniu do komórek PC3 hodowanych na natywnej rBM (Rysunek 2E).
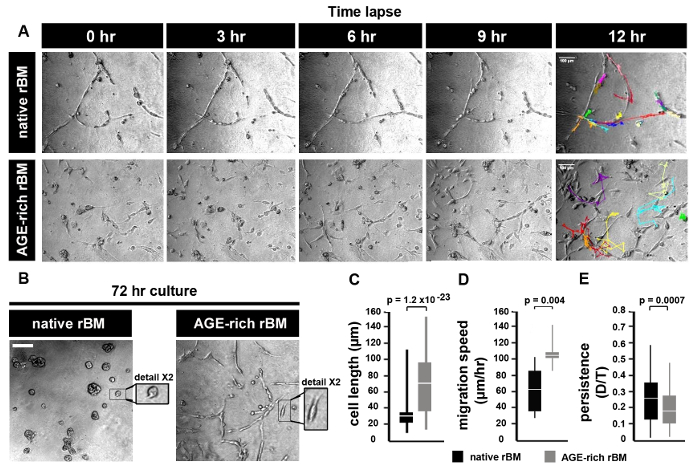
Rycina 2: Migracja komórek nowotworu prostaty na natywnej i sztywnej zrekonstytuowanej błonie podstawnej (rBM). (A) Obrazy w jasnym polu komórek PC3 hodowanych na żelach rBM traktowanych PBS (natywne) lub 50 mM glikolaldehydem przez 14 h (bogate w AGE, sztywne). Obrazowanie komórek wykonano za pomocą mikroskopu w jasnym polu (obiektyw 10X) z częstotliwością akwizycji 1 obrazu na godzinę przez 12 h, a następnie przeprowadzono śledzenie komórek w celu wygenerowania trajektorii. Przedstawione obrazy odpowiadają punktom czasowym po 0, 3, 6, 9 i 12 h. Trajektorie pojedynczych komórek pokazano dla punktu czasowego 12 h. Pasek skali = 100 µm. (B) Komórki PC3 hodowane na natywnej lub sztywnej rBM przez 72 h, obrazowane zgodnie z opisem w panelu (A). Pasek skali = 100 µm. Szczegół pokazuje wybrany obszar przy powiększeniu 2X. (C) Średnia ± S.D. długość komórek (µm); istotna różnica między natywną rBM a sztywną rBM (p = 1.2 x 10⁻²³). (D) Średnia ± S.D. prędkość (µm/hr) obliczona z trajektorii komórek; istotna różnica między natywną rBM a sztywną rBM (p = 0.004). (E) Średnia ± S.D. trwałość ruchu komórek (stosunek D/T, gdzie D = odległość od początku do końca trajektorii komórki, T = całkowita długość trajektorii komórki); istotna różnica między natywną rBM a sztywną rBM (p = 0.0007). Dla paneli C-E przeanalizowano >10 komórek, dane są reprezentatywne dla 3 niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Protokół generowania trójwymiarowych (3D) cewek gruczołowych z komórek nabłonkowych piersi (MECs) w czystych żelach z rBM6 został zmodyfikowany w poprzednim badaniu poprzez dodanie 4 mg/ml kolagenu typu I do macierzy rBM. Dodatek kolagenu spowodował wzrost modułu sprężystości żelu rBM ze 175 ± 37 do 1589 ± 380 Pa. Ten 9,1-krotny wzrost sztywności modulował wzrost, przeżywalność, migrację i różnicowanie MECs21. Protokół zmodyfikowano ponownie, wprowadzając etap traktowania D-(-)-rybozą w celu promowania nieenzymatycznego sieciowania kolagenu typu I dodanego do żelu rBM. Stwierdzono, że wynikający z tego 15-krotny wzrost sztywności współdziała z transformacją onkogenną MECs, promując ich inwazyjne zachowanie22. Podejście eksperymentalne polegające na dodawaniu kolagenu typu I do żeli rBM ułatwia bezpośrednią interakcję MECs z włóknami kolagenowymi, co w tkance ludzkiej zachodzi dopiero po proteolitycznej degradacji bariery fizycznej między stromą a nabłonkiem, tworzonej przez BM. Poprzez generowanie 3D cewek gruczołowych z komórek nabłonkowych prostaty (PECs) w czystych żelach rBM wstępnie traktowanych GLA, niniejszy protokół otwiera drogę do badania, w jaki sposób sztywność BM per se może wywoływać ich inwazyjne zachowanie (Rycina 3). Poziomy sztywności BM indukowane w tym protokole mają znaczenie fizjologiczne. Inkubacja z 50 mM GLA przez odpowiednio 6 h i 14 h zwiększyła moduły sprężystości czystego żelu rBM do 175 ± 90 oraz 322 ± 160 Pa, w porównaniu do 122 ± 55 Pa w żelach rBM traktowanych PBS (Tabela 1). Ten 1,7- do 3,2-krotny wzrost sztywności rBM odzwierciedla 2,5- do 3,4-krotny wzrost sztywności zaobserwowany w tkance złośliwej w porównaniu do prawidłowej prostaty lub tkanki z BPH23-26. Jak opisano w niedawnej publikacji13, zmiany morfologiczne indukowane przez akumulację AGE i sztywność rBM w cewkach PEC można ilościowo określić pod kątem statystycznie istotnego przejścia z kształtu zaokrąglonego na wielokątny, zmniejszenia stosunku powierzchni światła do całkowitej powierzchni cewki oraz obecności komórek migrujących z acina do bogatego w AGE rBM (Rycina 3). Immunoblotting może być również wykorzystany do oceny markerów EMT (np. utraty E-kadheryny13) oraz zachowania kurczliwego (np. fosforylowanej lekkiej łańcuchowej miozyny-2, pMLC213) w PECs hodowanych w prawidłowym oraz sztywnym rBM (Rycina 3). Dalsza ewaluacja z wykorzystaniem barwienia immunofluorescencyjnego i mikroskopii konfokalnej może zostać zastosowana do wizualizacji BM (np. lamininy, kolagenu IV i akumulacji AGE13), polarności komórkowej od strony apikalnej do bazalnej (np. apikalnej lokalizacji EEA1: wczesnego antygenu endosomalnego 1 oraz GM130: markera cis-Golgi o masie 130 kDa13) oraz wzorców rozmieszczenia cząsteczek adhezyjnych (np. lokalizacji E-kadheryny w połączeniach międzykomórkowych13) (Rycina 3).
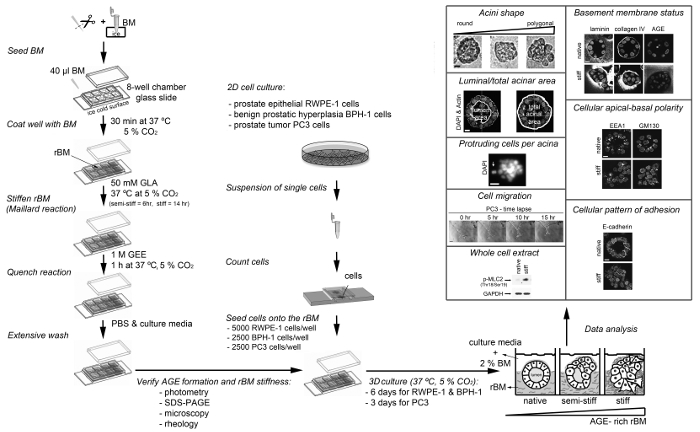
Rysunek 3: Przegląd przedstawionych tutaj różnych protokołów. Schemat przedstawia sposób przygotowania i utwardzania zrekonstytuowanej błony podstawnej (rBM) za pomocą glikolaldehydu (reakcja Maillarda), sposób wysiewania komórek na utwardzoną rBM, sposób analizy utwardzonej rBM (stopień reakcji Maillarda) oraz procedury, które można wykorzystać do analizy zmian komórkowych i molekularnych indukowanych przez rBM bogatą w AGE. AGE, zaawansowane produkty glikacji; BM, błona podstawna; DAPI, 4',6-diamidino-2-fenyloindol; EEA1, wczesny antygen endosomalny 1; GAPDH, gliceraldehyd-3-fosforanowa dehydrogenaza; GLA, glikolaldehyd; GEE, ester etylowy glicyny; GM130, marker cis-Golgiego 130 kDa; p-MLC2 (Thr18/Ser19), łańcuch lekki miozyny-2 fosforylowany w pozycjach treonina 18 i seryna 19; rBM, zrekonstytuowana błona podstawna; SDS-PAGE, elektroforeza w żelu poliakrylamidowym z dodecylofosforanem sodu. Dla acynów RWPE1 pasek skali = 10 µm; dla sferoidów komórek nowotworowych PC3 pasek skali = 100 µm. Rysunek został zmodyfikowany na podstawie referencji13. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Konieczne będzie podjęcie kroków rozwiązywania problemów, jeśli jako czynnik sieciujący dla rBM zostanie wybrana D-(-)-ryboza. Podczas opracowywania protokołu stwierdzono, że inkubacja z 1 M D-(-)-rybozą przez 72 hr, zgodnie z wcześniejszym opisem dla żeli rBM/kolagenowych22, prowadziła do odwodnienia i kurczenia się żeli rBM. Ocena zastosowania niższych stężeń D-(-)-rybozy oraz krótszych czasów inkubacji może pomóc w przezwyciężeniu tego ograniczenia.
Potencjalne ograniczenie w przyszłych zastosowaniach protokołu może wystąpić w sytuacjach, gdy wymagany jest wyższy poziom sztywności rBM. Jeśli w celu uzyskania większej sztywności żelu rBM zastosowane zostaną dłuższe czasy inkubacji i wyższe stężenia GLA, konieczne będzie ocenienie, czy warunki te wpływają na przeżywalność i proliferację komórek, zgodnie z wcześniejszymi opisami13. Należy również zauważyć, że inkubacja komórek RWPE-1 z surowicą indukuje fenotypową transformację typu EMT, dlatego należy unikać ekspozycji na surowicę lub materiały zawierające surowicę. Na przykład, jeśli eksperymenty obejmują transfekcję oligonukleotydów krótkiego interferującego RNA (siRNA), procedura powinna zostać zoptymalizowana przy użyciu komórek RWPE-1 hodowanych w KSFM, bez przenoszenia komórek do mediów transfekcyjnych z niską zawartością surowicy. To ograniczenie może wpłynąć na poziom wyciszenia genów osiągany podczas stosowania przejściowych metod siRNA w tym modelu. W przypadku niektórych białek docelowych zaleca się zastosowanie indukowalnych wektorów shRNA w celu regulowanego wyciszania genów i uzyskania pożądanego obniżenia poziomu białka. W przyszłych modelach można wprowadzić adaptacje uwzględniające enzymatyczne sieciowanie za pomocą oksydazy lizylowej (LOX)17 związanej z komórkami zrębu lub komórkami nowotworowymi.
Niniejszy protokół ułatwi przyszłe badania nad mechanizmami proinwazyjnymi wywołanymi przez zależną od AGE sztywność błony podstawnej w PECs (RWPE-1, BPH-1) oraz ocenę celów antymetastatycznych w inwazyjnych PTCs (PC3). Biorąc pod uwagę, że BPH jest uważana za zaburzenie metaboliczne27, protokół ten toruje również drogę do lepszego zrozumienia związku między zaburzeniami metabolicznymi a zwiększonym ryzykiem raka prostaty. Ponieważ sztywność błony podstawnej indukowana ekspozycją na AGE może być wyzwalaczem inwazyjności w innych typach nowotworów, interesujące będzie wykorzystanie tego protokołu do stworzenia podobnych modeli obejmujących prawidłowe komórki nabłonkowe i komórki nowotworowe z innych organów (np. piersi, jelita grubego, jajników, trzustki).
Kluczowe etapy protokołu wraz z ich czasem trwania przedstawiono w Rysunku 4. Podczas pierwszego etapu niezbędne jest utrzymywanie roztworu zapasowego rBM w temperaturze 4 °C podczas rozmrażania, aby zapobiec jego polimeryzacji. Końcówki do pipet nie powinny być wprowadzane do roztworu zapasowego rM, dopóki nie zostaną schłodzone do 4 °C>. W kolejnym kroku ważne jest również upewnienie się, że szkiełka komorowe osiągnęły temperaturę 4 °C przed pokryciem ich roztworem rBM. Gdy tylko temperatura roztworu rBM wzrośnie powyżej 4 °C, ulegnie on nieodwracalnej polimeryzacji, tworząc żel. Niezbędne jest, aby nie zakłócać rBM podczas etapu polimeryzacji, aby zapewnić utworzenie gładkiej powierzchni odpowiedniej do hodowli komórkowej i analizy mikroskopowej. Czas inkubacji z GLA, z inhibitorami reakcji Maillarda (cyjanoborowodorek sodu i aminoguanidyna) lub bez nich, określi stopień sztywności żelu rBM. W przypadku zapotrzebowania na warunki półsztywne zaleca się 6-godzinną inkubację z GLA, a w przypadku warunków sztywnych – inkubację 14-godzinną (Tabela 1). Jeśli pożądany jest inny stopień sztywności, można zastosować alternatywne czasy inkubacji lub stężenia GLA. W takim przypadku konieczne jest włączenie analizy reologicznej żeli rBM jako niezbędnego etapu. Po etapie przerywania reakcji Maillarda poprzez inkubację z GEE i następujących po niej etapach płukania PBS, żele rBM można wykorzystać natychmiast lub przechowywać w temperaturze 4 °C do 48 h przed użyciem do hodowli komórek. Po przygotowaniu hodowli komórkowych ważne jest zmienianie pożywki (wraz z wszelkimi substancjami do traktowania) co dwa dni. Zaleca się utrzymywanie trójwymiarowych (3D) hodowli komórkowych przez 3-12 dni, w zależności od badanych parametrów. W przypadku 3D acini PEC zaleca się analizę hodowli po 6 dniach, a w przypadku 3D sferoidów PTC analizę zaleca się w pierwszej kolejności po 3 dniach hodowli.
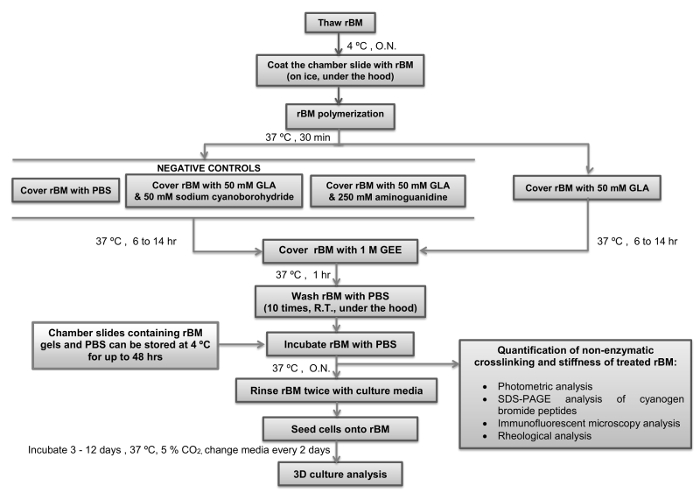
Rycina 4: Przegląd protokołu z zaznaczonymi krytycznymi krokami i ramami czasowymi. Schemat blokowy przedstawia sposób przygotowania i utwardzania zrekonstytuowanej błony podstawnej (rBM) za pomocą glikolaldehydu (reakcja Maillarda) z zaznaczeniem krytycznych kroków i czasu trwania. Wskazano również punkty, w których można przerwać protokół i przechowywać żele rBM. rBM, zrekonstytuowana błona podstawna; GLA, glikolaldehyd; GEE, ester etylowy glicyny; O.N., przez noc; PBS, roztwór soli fosforanowej; R.T., temperatura pokojowa. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Simonowi Haywardowi (Vanderbilt University Medical Center) za komórki BPH-1; oraz Thomasowi Coxowi i Janine Erler (Centrum Badań i Innowacji Biotechnologicznych, Uniwersytet w Kopenhadze) za ich pomoc w pomiarach reologicznych. Badanie MR-T zostało sfinansowane przez Worldwide Cancer Research, dawniej The Association of International Cancer Research (grant 08-0803 dla JS), Ambasadę Brytyjską w Montevideo oraz Agencia Nacional de Investigación e Innovación (UK_RH_2015_1_2 do MR-T). MC był wspierany przez Prostate Cancer UK (grant S14-017 dla JS i GS). KW został ufundowany przez Chińską Radę Stypendialną. MAM został sfinansowany przez Biuro Kultury Arabii Saudyjskiej.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| I - Materiał do hodowli jednowarstwowej | |||
| BPH-1 | Baza danych linii komórkowych CaP | PCaCL-132 | Kontakt: simon.hayward@mcmail.vanderbilt.edu |
| Kompletne podłoża bez keratynocytów w surowicy | ThermoFisher Scientific | 17005-075 | Nie ogrzewać się w temperaturze 37 & ordm; C przed użyciem |
| Surowica cielęca płodu | First Link UK Ltd | 02-00-850 | Sklep pod adresem -20 º C w podwielokrotnościach |
| PC3 | American Type Culture Collection | CRL-1435 | |
| Penicylina/streptomycyna | ThermoFisher Scientific | 15070-063 | |
| Bufor fosforanowy Sól fizjologiczna w tabletkach (Dulbecco A) | Oxoid | BR0014G | |
| RPMI 1640 średni | Sigma-Aldrich | R5886 | ciepły w 37 & ordm; C kąpiel wodna przed użyciem |
| RWPE-1 | American Type Culture Collection | CRL-11609 | |
| Roztwór trypsyny-EDTA | Sigma-Aldrich | T4049 | |
| Nazwa | Company | Numer katalogowy | Komentarze |
| II - Materiał do hodowli 3D | |||
| Acetonitryl | Sigma-Aldrich | 271004 | |
| Chlorowodorek aminoguanidyny | Sigma-Aldrich 396494 | Działa drażniąco na oczy, układ oddechowy i skórę | |
| Szkiełka komorowe, 8-dołkowe | Thermo Scientific Nunc Lab-Tek | TKT-210-816M | |
| Culture Matrix odtworzona membrana podstawna (rBM) ekstrakt zredukowanego czynnika wzrostu | AMS Biotechnology | 3445-005-01 | Przechowuj membranę podstawną (BM) przy -80 º C w podwielokrotnościach |
| Bromek cyjanu | Sigma-Aldrich | C91492 | Działa toksycznie przez skórę kontaktową i wdychanie |
| Kwas mrówkowy | Sigma-Aldrich | 695076 | |
| Chlorowodorek estru etylowego glicyny (GEE) | Sigma-Aldrich | 50060 | Działa drażniąco na oczy |
| Dimer aldehydu glikolowego (GLA) | Sigma-Aldrich | G6805 | |
| Cyjanoborowodorek sodu | Sigma-Aldrich | 71435 | Wysoce łatwopalny; Działa toksycznie przez kontakt ze skórą i wdychanie |
| Filtr strzykawkowy 0,22 mikrona | Appleton Woods | BC680 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| III - Materiał do ilościowego określenia reakcji Maillarda | |||
| 4',6-diamidyn-2-fenyloindol (DAPI) | ThemoFisher Scientific | D3571 | wrażliwy na światło i przechowywany w temperaturze -20 º C w podwielokrotnościach Cylindry |
| klonujące | Sigma-Aldrich | C1059 | |
| Kozia anty-mysia IgG (H+L) Alexa Fluor 488 koniugat | ThemoFisher Scientific | A-11001 | światłoczuły |
| Kozioł anty-królik IgG (H+L) Alexa Fluor 488 koniugat | ThemoFisher Scientific | A-11034 | światłoczuła |
| surowica kozia | Abcam | ab7481 | Przechowywać pod adresem -20 º C w podwielokrotnościach Nośniki montażowe |
| Vectashield | Vector Laboratories | H-1000 | |
| Mysz klon anty-pentozydyny PEN-12 mAb | TransGenic Inc | KH012 | |
| Paraformaldehyd (PFA) | Sigma-Aldrich | F8775 | Przechowywać w temperaturze -20 º C w podwielokrotnościach |
| Królicze przeciwciało poliklonalne anty-kolagen ludzki IV | Przeciwciała Acris | R1041 | Przechowywać w temperaturze -20 º C w podwielokrotnościach |
| Królik anty-laminina A/C pAb | Santa Cruz Biotechnology Inc | sc-7292 | Przechowywać pod adresem -20 º C w podwielokrotnościach |
| Eter tert-oktylofenylowy glikolu polietylenowego (Triton-X100) | Sigma-Aldrich | T9284 | |
| Monolaurynian glikolu polietylenowego sorbitanu (Tween-20) | Sigma-Aldrich | P1379 | |
| Kaseta do dializy Slide-A-Lyzer | ThemoFisher Scientific | 66333 | |
| Nazwa | Company | < strong>Numer katalogowy | Uwagi |
| IV - Sprzęt | |||
| ARG2 reometr rotacyjny z kontrolowanym odkształceniem | T.A. Instruments | ||
| Mikroskop Axiovert S100 (20-krotne powiększenie) | Zeiss Komora | ||
| do mikroskopu Zeiss Axio S100 | Mikroskop Solent Scientific | ||
| Confocal Axiovert 200M (powiększenie 40X, 63X) | Mikroskop Zeiss | ||
| Olympus LH50A wyposażony w kamerę cyfrową wykorzystującą kontrast fazowy | Olimpia | ||
| Spektrofotometr czytnika płytek PHERAstar Plus | BMG Labtech | ||
| Nazwa | Firma | Numer katalogowy | Uwagi |
| V - Oprogramowanie | |||
| Image J 1.47v | Narodowy Instytut Zdrowia, USA | ||
| Urządzenia molekularne | MetaXpress |
Bibliografia
- Timpl, R., Brown, J. C. Supramolecular assembly of basement membranes. Bioessays. 18 (2), 123-132 (1996).
- Yurchenco, P. D., Ruben, G. C. Type IV collagen lateral associations in the EHS tumor matrix. Comparison with amniotic and in vitro networks. Am J Pathol. 132 (2), 278-291 (1988).
- Halfter, W., et al. Protein composition and biomechanical properties of in vivo-derived basement membranes. Cell Adh Migr. 7 (1), 64-71 (2013).
- Candiello, J., Cole, G. J., Halfter, W. Age-dependent changes in the structure, composition and biophysical properties of a human basement membrane. Matrix Biol. 29 (5), 402-410 (2010).
- To, M., et al. Diabetes-induced morphological, biomechanical, and compositional changes in ocular basement membranes. Exp Eye Res. 116, 298-307 (2013).
- Debnath, J., Muthuswamy, S. K., Brugge, J. S. Morphogenesis and oncogenesis of MCF-10A mammary epithelial acini grown in three-dimensional basement membrane cultures. Methods. 30 (3), 256-268 (2003).
- Bello, D., Webber, M. M., Kleinman, H. K., Wartinger, D. D., Rhim, J. S. Androgen responsive adult human prostatic epithelial cell lines immortalized by human papillomavirus 18. Carcinogenesis. 18 (6), 1215-1223 (1997).
- Hayward, S. W., et al. Establishment and characterization of an immortalized but non-transformed human prostate epithelial cell line: BPH-1. In Vitro Cell Dev Biol Anim. 31 (1), 14-24 (1995).
- Kaighn, M. E., Narayan, K. S., Ohnuki, Y., Lechner, J. F., Jones, L. W. Establishment and characterization of a human prostatic carcinoma cell line (PC-3). Invest Urol. 17 (1), 16-23 (1979).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Towbin, H., Staehelin, T., Gordon, J. Electrophoretic transfer of proteins from polyacrylamide gels to nitrocellulose sheets: procedure and some applications. Proc Natl Acad Sci U S A. 76 (9), 4350-4354 (1979).
- Rabilloud, T. Mechanisms of protein silver staining in polyacrylamide gels: a 10-year synthesis. Electrophoresis. 11 (10), 785-794 (1990).
- Rodriguez-Teja, M., et al. AGE-modified basement membrane cooperates with Endo180 to promote epithelial cell invasiveness and decrease prostate cancer survival. J Pathol. 235 (4), 581-592 (2015).
- Graf, B. W., Boppart, S. A. Imaging and analysis of three-dimensional cell culture models. Methods Mol Biol. 591, 211-227 (2010).
- Yao, N. Y., Larsen, R. J., Weitz, D. A. Probing nonlinear rheology with inertio-elastic oscillations. J Rheology. 52 (4), 1013-1025 (2008).
- Baker, A. M., Bird, D., Lang, G., Cox, T. R., Erler, J. T. Lysyl oxidase enzymatic function increases stiffness to drive colorectal cancer progression through FAK. Oncogene. 32 (14), 1863-1868 (2013).
- Caley, M. P., et al. Tumor-associated Endo180 requires stromal-derived LOX to promote metastatic prostate cancer cell migration on human ECM surfaces. Clin Exp Metastasis. 3 (2), 151-165 (2016).
- Sturge, J., Wienke, D., East, L., Jones, G. E., Isacke, C. M. GPI-anchored uPAR requires Endo180 for rapid directional sensing during chemotaxis. J Cell Biol. 162 (5), 789-794 (2003).
- Sturge, J., Wienke, D., Isacke, C. M. Endosomes generate localized Rho-ROCK-MLC2-based contractile signals via Endo180 to promote adhesion disassembly. J Cell Biol. 175 (2), 337-347 (2006).
- Rodriguez-Teja, M., et al. Survival Outcome and EMT Suppression Mediated by a Lectin Domain Interaction of Endo180 and CD147. Mol Cancer Res. 13 (3), 538-547 (2015).
- Paszek, M. J., et al. Tensional homeostasis and the malignant phenotype. Cancer Cell. 8 (3), 241-254 (2005).
- Levental, K. R., et al. Matrix crosslinking forces tumor progression by enhancing integrin signaling. Cell. 139 (5), 891-906 (2009).
- Carson, W. C., et al. Material characterization of ex vivo prostate tissue via spherical indentation in the clinic. Med Eng Phys. 33 (3), 302-309 (2011).
- Hoyt, K., et al. Tissue elasticity properties as biomarkers for prostate cancer. Cancer Biomark. 4 (4-5), 213-225 (2008).
- Krouskop, T. A., Wheeler, T. M., Kallel, F., Garra, B. S., Hall, T. Elastic moduli of breast and prostate tissues under compression. Ultrason Imaging. 20 (4), 260-274 (1998).
- Zhang, M., et al. Quantitative characterization of viscoelastic properties of human prostate correlated with histology. Ultrasound Med Biol. 34 (7), 1033-1042 (2008).
- Corona, G., et al. Benign prostatic hyperplasia: a new metabolic disease of the aging male and its correlation with sexual dysfunctions. Int J Endocrinol. , Article ID:329456 (2014).
Przedruki i uprawnienia
